本文介绍了一种诱导与分析的方法方案 体外 中性粒细胞胞外诱捕网(NETs)。通过定量DNA、抗菌肽(LL37)及酶活性,获得数据显示在相似的受控条件下,由微生物和化学刺激诱导产生的NETs在组成和形态上存在差异。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
中性粒细胞通过多种机制在先天免疫反应中发挥第一道细胞防御作用,例如形成中性粒细胞胞外诱捕网(neutrophil extracellular traps, NETs)。本研究采用标准化方法分析微生物和化学刺激物诱导的NETs在形态和组成上的变化 体外 用于诱导和表征人类细胞中NET的方法。本文所述方案可用于分析NET的形态(裂解性或非裂解性)和组成(DNA-蛋白质结构及酶活性),以及可溶性因子或细胞接触对这些特征的影响。此外,本文描述的技术可经修改用于评估外源性可溶性因子或细胞接触对NET组成的影响。
所采用的技术包括利用双密度梯度(1.079–1.098 g/mL)从人外周血中纯化多形核细胞,通过瑞氏染色、台盼蓝排斥法及流式细胞术(包括前向散射光与侧向散射光分析以及7AAD染色)验证,可确保细胞纯度和活性达到最佳水平(≥ 95%)。中性粒细胞胞外诱捕网(NET)的形成通过微生物刺激诱导铜绿假单胞菌,金黄色葡萄球菌,以及 白色念珠菌)以及化学刺激物(佛波酯,HOCl)进行刺激,并通过DNA-DAPI染色、抗菌肽cathelicidin(LL37)免疫荧光染色以及酶活性(中性粒细胞弹性蛋白酶、组织蛋白酶G和髓过氧化物酶)定量来表征NETs。图像通过荧光显微镜采集,并使用ImageJ软件进行分析。
引言
中性粒细胞是血液中最丰富的白细胞,在清除病原体过程中通过多种机制发挥关键作用,其中包括释放由DNA以及多种细胞核、细胞质和颗粒抗菌蛋白组成的大分子染色质结构1,2。最早描述中性粒细胞这种抗菌作用的文献由Takei等人3于1996年发表。这些作者报道了一种不同于凋亡和坏死性凋亡的新型细胞死亡方式,表现为中性粒细胞出现核破裂,随后核质释放到细胞质中,并在佛波酯(phorbol myristate acetate, PMA)刺激孵育3小时后细胞膜通透性增加2,3。然而,直到2004年,“"中性粒细胞胞外诱捕网(neutrophil extracellular traps, NETs)"”这一术语才被正式提出4。
中性粒细胞胞外诱捕网(NET)的形成已在多种条件下被观察到,例如细菌、真菌感染等5,病毒的6以及寄生虫感染,用于中和、杀灭微生物并防止其扩散7其他研究表明,无菌性刺激物(如细胞因子、单钠尿酸或胆固醇晶体、自身抗体、免疫复合物以及活化的血小板)也可在非致病条件下引发该过程。7脂多糖(LPS)、白细胞介素-8(IL-8)和佛波酯(PMA)是最早被发现的 体外 被描述为NET诱导剂的刺激物,以及 体内 NET在急性炎症的两个模型——实验性痢疾和自发性人类阑尾炎中的致病过程参与作用已得到证实4DNA 是 NET 的关键组分。其适当的结构和组成对于捕获和杀灭微生物至关重要,可通过向被捕获的微生物递送高局部浓度的抗菌分子来实现。这一点已通过短时间脱氧核糖核酸酶(DNase)处理得到证实,该处理可使 NET 解体并丧失其杀微生物特性。4除DNA外,中性粒细胞胞外诱捕网(NETs)还包括组蛋白、中性粒细胞弹性蛋白酶(NE)、组织蛋白酶G(CG)、蛋白酶3、乳铁蛋白、明胶酶、髓过氧化物酶(MPO)以及抗菌肽(AMPs)等结合蛋白,后者如阳离子促炎肽cathelicidin LL-37等8,9此类聚集体可形成直径达50 nm的较大纤维结构。这些因素可破坏微生物的毒力因子或病原体细胞膜的完整性;此外,抗菌肽(AMPs)还能稳定中性粒细胞胞外诱捕网(NET)来源的DNA,防止其被细菌核酸酶降解10.
调控NET形成的特异性机制尚未完全阐明。目前研究最为清楚的NET释放通路是通过ERK信号通路,该通路可导致NADPH氧化酶活化和活性氧(ROS)的产生,同时增加细胞内钙离子浓度,从而触发MPO通路的活化。后者将过氧化氢转化为次氯酸,并通过氧化作用活化中性粒细胞弹性蛋白酶(NE)11,12。NE负责降解细胞骨架中的肌动蛋白丝,以阻断吞噬作用,并将这些成分转运至细胞核,经蛋白水解切割以及PAD4介导的脱氨基作用进行加工,促使染色质纤维去致敏,进而与颗粒和胞质蛋白结合,最终释放到细胞外7。这些蛋白酶包括来自嗜天青颗粒中嗜天青颗粒复合物(azurosome complex)释放的蛋白酶,以及其他如组织蛋白酶G(cathepsin G)等蛋白酶13。
根据中性粒细胞形态学变化的不同,中性粒细胞胞外诱捕网(NETs)可分为两种类型:一种是导致细胞死亡的自杀性或裂解性NET形成4,另一种是由活细胞介导的生理性或非裂解性NET形成,其通过囊泡释放核DNA或线粒体DNA实现,并残留具有吞噬能力的无核细胞质体14,15。通常,由线粒体DNA组成的NETs呈现细长纤维状14形态,而由核DNA构成的NETs则呈云雾状外观3。然而,目前尚不清楚中性粒细胞如何选择其DNA来源。与以往认为NET形成的经典途径需要数小时的描述不同,生理性途径可在5–60分钟内迅速激活15。
尽管取得了这些进展,中性粒细胞胞外诱捕网(NET)的组成会因刺激物的不同而有所差异;例如,不同类型的黏液型和非黏液型菌株 P. aeruginosa 诱导形成含有33种常见蛋白和多达50种可变蛋白的NETs7因此,有必要统一相关技术,以便在研究团队中得出客观的结论。本文描述了一种包含多种技术的实验方案,可用于比较和评估由不同微生物诱导产生的中性粒细胞胞外陷阱(NETs)的组成、结构及形态。 金黄色葡萄球菌 (革兰氏阳性细菌),铜绿假单胞菌 (革兰氏阴性细菌), 和 白色念珠菌 (真菌)以及化学刺激物(PMA、HOCl)在健康个体的人中性粒细胞中诱导的中性粒细胞胞外诱捕网(NETs)。代表性结果表明,在相似条件下,NETs的异质性取决于其诱导刺激物 体外 条件,通过DNA-DAPI染色、LL37免疫染色以及酶活性(NE、CG和MPO)定量进行表征。
访问受限。请登录或开始试用以查看此内容。
方案
血液样本来自临床健康志愿者在知情同意后的捐赠。所有实验均获得瓦哈卡自治大学生物化学科学学院人类研究伦理委员会许可后进行。
注意:研究的纳入标准为性别和年龄不明确,且根据参与者在采集血样前填写的问卷结果显示临床健康。通过血液学分析确定细胞计数,并排除感染或贫血;同时进行C反应蛋白检测,以排除供体存在炎症。
1. 外周血采集及红细胞与白细胞组分的获取
- 在获得知情同意后,使用含 1.8 mg/mL K2·EDTA 作为抗凝剂的试管,通过静脉穿刺采集 10 mL 外周血(参见材料表)。随后进行标准血液计数和 C-反应蛋白检测,以排除感染或炎症,确保样本质量。
- 将外周血样本在 82 x g 条件下离心 15 分钟,去除富血小板血浆,随后在 630 x g 条件下再次离心 5 分钟。弃去剩余血浆,获得红细胞和白细胞沉淀。
- 用 1x Dulbecco 磷酸盐缓冲液(DPBS)按 1:1(v/v)比例稀释。
2. 采用双密度梯度法纯化多形核中性粒细胞(PMN)
注意:采集血液后应立即进行中性粒细胞纯化,因为其存活时间有限 体外 约8小时的寿命。
- 按以下顺序将下列成分加入无菌的 10 mL 玻璃试管中(见材料表):1 mL 密度为 1.098 g/mL 的溶液、1 mL 密度为 1.079 g/mL 的溶液(见材料表),然后加入 4 mL 稀释后的红细胞和白细胞混合液。沿管壁缓慢加入,避免破坏各层之间的表面张力,以防止各层混合。
- 在 4 °C 条件下以 320 x g 离心 20 分钟,避免使用加速或减速功能,以防止离心机的高作用力破坏密度梯度。
- 用移液器吸取对应于粒细胞的相层(图 1A),转移至另一无菌的 10 mL 玻璃试管中。加入 4 mL 1x DPBS,在 4 °C 条件下以 300 x g 离心 10 分钟进行洗涤。
- 弃去上清液,并通过渗透休克处理去除残留的红细胞。加入 4 mL 0.2% 盐水溶液,在 4 °C 条件下作用 2 分钟,然后在 4 °C 条件下以 300 x g 离心 10 分钟。弃去上清液。随后加入 4 mL 等渗溶液(0.65% 盐水),在 4 °C 条件下作用 5 分钟以恢复细胞膜完整性,再在 4 °C 条件下以 300 x g 离心 10 分钟。
注意:0.2% 盐水溶液为低渗介质,其溶质浓度低于红细胞胞内介质。低渗环境使水分子扩散进入红细胞,导致细胞肿胀并发生溶血。通过显微镜观察已确认上清液中红细胞被有效去除。 - 弃去上清液。将细胞重悬于 4 mL 1x DPBS 中以去除细胞碎片,然后在 4 °C 条件下以 300 x g 离心 10 分钟。最后,将细胞沉淀重悬于 2 mL 冷的 Hank's 平衡盐溶液(HBSS)缓冲液中。
3. 中性粒细胞形态与活性(图1B)
- 台盼蓝排斥试验
- 将5 μL细胞悬液与20 μL的0.4%台盼蓝按1:5比例稀释。在Neubauer计数板中计数细胞,并通过排斥试验确定细胞活力。将未被染料渗透、细胞膜保持完整的细胞视为活细胞。
- 取5 μL细胞悬液滴于载玻片上,干燥后用Wright染色液染色15秒。立即用pH 6.4的磷酸盐缓冲液固定30秒。用足量蒸馏水冲洗,并在光学显微镜下(100倍)观察细胞形态。
- 7AAD染色与流式细胞术分析
- 将1 × 10⁵个细胞加入流式管中,加入1 μL 7AAD染色液及100 μL FACS缓冲液(1× DPBS、0.1%叠氮化钠和10%自体去补体血浆),于4 °C避光孵育15分钟。
- 用500 μL FACS缓冲液在300 × g条件下离心10分钟,洗涤细胞。用500 μL 2%多聚甲醛固定细胞,4 °C保存,待流式细胞仪分析。
- 作为死细胞对照,将1 × 10⁵个细胞用200 μL 4%多聚甲醛于4 °C固定30分钟,再用500 μL 1× PBS在300 × g条件下4 °C离心10分钟洗涤。吸除上清液并弃去。随后加入200 μL 0.1% Triton X-100,4 °C孵育1小时。用500 μL 1× PBS洗涤后,按步骤3.2.1方法进行7AAD染色。
- 使用流式细胞仪(见材料表),进行FSC与SSC分析以评估细胞纯度,SSC与7AAD染色分析以评估细胞活力。在多形核细胞检测条件下(FSC: 400–490,SSC: 300–320),以中等流速(1,000个细胞/秒)在100 μL上样体积中采集3 × 10⁴个事件。
- 使用流式细胞仪配套软件(见材料表)分析采集的数据,通过点图和直方图确定多形核细胞群中7AAD阳性细胞的比例及细胞纯度。
4. 微生物的CFSE染色
- 在1.5 mL离心管中加入1 × 10⁸个细菌或1 × 10⁶个真菌假菌丝,并加入200 µL用1×PBS溶解的5 µM羧基荧光素琥珀酰亚胺酯(CFSE)进行染色。混匀数秒,在37 °C避光孵育10分钟。
- 加入500 µL去补体血浆终止反应,假菌丝以620 × g离心10分钟,细菌以1,800 × g离心10分钟。
- 弃去上清液,用1 mL 1×PBS重悬沉淀,离心条件同步骤4.2。最后将微生物重悬于250 µL 1×PBS中。
- 在1.5 mL离心管中分装50 µL等份液,含2 × 10⁷个细菌(MOI: 100)或2 × 10⁵个假菌丝(MOI: 1),用于NET诱导。
5. NET 诱导
- 将10 mm × 10 mm无菌玻璃盖玻片放入24孔板中,每孔加入10 µL 0.001%多聚赖氨酸,室温孵育1 h。用100 μL 1× PBS洗涤两次,风干后紫外照射15 min。
- 将步骤2.5中中性粒细胞悬液的HBSS溶液替换为含10%自体血浆的RPMI 1640培养基。向24孔板(步骤5.1)中加入350 μL该细胞悬液,使最终浓度为2 × 10⁵ 个中性粒细胞/孔。
- 将细胞在37 °C、5% CO2条件下孵育20 min,使其贴附于孔底。
- 加入50 µL刺激物以诱导NET形成:微生物刺激物——革兰氏阳性菌 S. aureus(ATCC 25923)、革兰氏阴性菌 P. aeruginosa(ATCC 10145),感染复数(MOI)为100;C. albicans(ATCC 10231)假菌丝,MOI为1;生化刺激物——PMA(200 nM)和HOCl(4.5 mM);以及不加刺激物的对照组(50 µL HBSS)。
- 每孔最终体积为400 µL。在板式摇床上以140 rpm振荡混匀30 s,随后在37 °C、5% CO2条件下孵育4 h。
6. 荧光显微镜观察中性粒细胞胞外诱捕网(NETs)
- DNA 和 LL37 免疫染色
- 诱导 NET 后,用移液器小心吸去孔中的上清液,并加入 300 µL 的 4% 多聚甲醛固定细胞 30 分钟。
- 用 200 μL 的 1x PBS 洗涤细胞,不进行离心,然后加入 200 µL 封闭缓冲液(含 10% 去补体血浆的 1x PBS),室温孵育 30 分钟。
- 进行 LL-37 染色时,用 200 µL 含 0.2% Triton X-100 的 1x PBS 对细胞进行透化处理 10 分钟,以允许抗体进入细胞。用 1x PBS 小心洗涤两次,以去除多余的去垢剂。
- 将盖玻片置于载玻片上(每张载玻片放置四片盖玻片)。用 2 µL DAPI(见材料表)对 DNA 进行染色,封片后于 -20 °C 保存,直至通过共聚焦荧光显微镜进行分析。
- 荧光图像的采集与分析
- 拍摄 NET 图像以定量其组分,使用共聚焦荧光显微镜(见材料表)对应的滤光片,通过计算机软件采集图像。
注:请注意,DNA 使用 DAPI 染色(蓝色),激发波长为 360 nm,发射波长为 460 nm。微生物使用 CFSE 染色(绿色),激发波长为 492 nm,发射波长为 521 nm。LL37 肽使用抗 LL37 Alexa Fluor 594 抗体标记(红色),激发波长为 594 nm,发射波长为 614 nm。 - 校准显微镜。放置载玻片,打开普通光源,使用微分干涉差(DIC)调焦。选择Live 模式,将图像投射到显示器上。
- 关闭光源,选择对应荧光染料的通道。例如,DAPI 选择 365 nm/蓝色滤光片,Alexa 594 选择 43 HE DsRed,CFSE 选择 38 HE GFP。
- 使用 LL37 的同型对照抗体以及未染色的细胞作为 DAPI 和 CFSE 的阴性对照,调整成像参数。所有图像均需在相同的曝光时间、电压、对比度和物镜设置下采集。
注:本研究中,曝光时间、电压和对比度分别设置为 1.0 ms、4.0 V 和 0.0,使用 40x 物镜。这些参数可根据样本情况调整,以获得最佳成像效果。 - 点击Snap 按钮采集图像。每孔采集五张图像(四个角落和中心),并采集 DNA/LL37/CFSE 的共定位(合并)图像。
- 利用各颜色的独立图像定义三类像素的背景信号,并使用 Image J 软件分析每个区域的平均灰度信号值。
- 拍摄 NET 图像以定量其组分,使用共聚焦荧光显微镜(见材料表)对应的滤光片,通过计算机软件采集图像。
7. 酶活性定量
- 在96孔板中,加入90 μL含有1 × 10⁵个中性粒细胞的HBSS细胞悬液用于诱导NET形成,并在37 °C、5% CO2条件下孵育20分钟。
- 立即加入10 μL相应的刺激物(浓度同步骤5.4),并在37 °C、5% CO2条件下孵育4小时。
- 弃去上清液,用100 μL HBSS洗涤细胞。加入1 U/mL DNase,在37 °C处理10分钟以促进DNA-蛋白质结构的释放,随后在1,800 × g离心10分钟。
- 收集上清液,采用White等人先前描述的比色法检测上清液中的酶活性17。
- 在相同实验条件下,测定未添加任何刺激物诱导NET时中性粒细胞中NE、CG和MPO的最大酶活性。然后将细胞样本在-70 °C冷冻,再于37 °C水浴中解冻,通过温度冲击促进细胞裂解释放胞内蛋白。在1,800 × g离心10分钟,收集上清液。
- 向96孔板的每孔中加入50 μL上清液,然后按步骤7.7所述加入50 μL各底物。
- 加入0.5 M N-甲氧基琥珀酰-丙氨酰-丙氨酰-脯氨酰-缬氨酸-对硝基苯胺作为NE的底物,1 mM N-琥珀酰-丙氨酰-丙氨酰-脯氨酰-苯丙氨酸-对硝基苯胺作为CG的底物,在室温下孵育3小时。对于MPO,加入1.6 mM 3,3',5,5'-四甲基联苯胺(TMB),在室温下孵育30分钟。
- 孵育结束后,向MPO反应体系中加入50 μL终止液(0.5 M H2SO4),使用分光光度计在405 nm波长下测定NE和CG的吸光度,在450 nm波长下测定MPO的吸光度。
- 将测得数值与相应的标准曲线比较,以最大酶活性(100%)为基准,表示各实验条件下的相对酶活性。
8. 统计分析
- 对每次独立实验(n = 10)的测量数据进行三份重复分析,并通过方差分析(ANOVA)进行统计分析,组间比较采用95%置信水平。
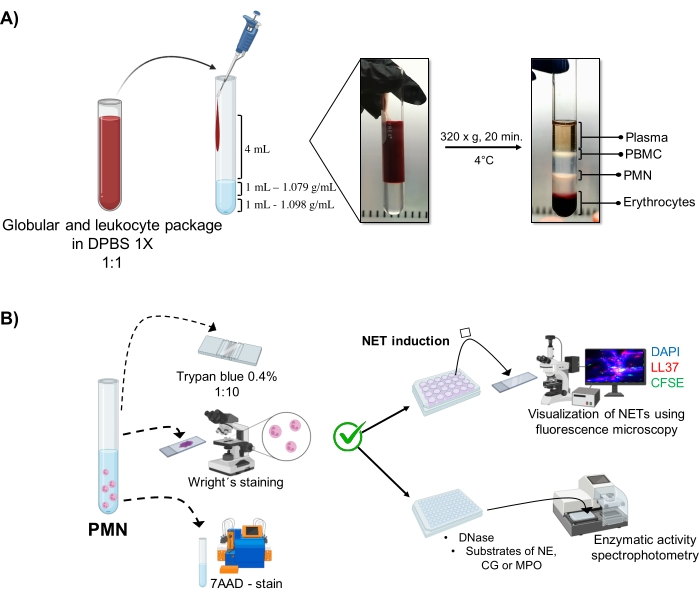
图1中性粒细胞纯化及NET诱导方案 (A) 从外周血中移除血浆以获得红细胞和白细胞层,按1:1 (v/v) 比例用1×DPBS稀释。然后沿管壁缓慢加入4 mL稀释后的样品至双密度梯度管中,于320 × g离心 g 20 分钟 4 °C,获得不同细胞层的分离,并回收对应于PMN的细胞层。B纯化的细胞进行计数,并通过瑞氏染色分析其形态。细胞活力通过台盼蓝排斥法及7AAD染色结合流式细胞术测定。在确认中性粒细胞纯度和活力达到最佳状态后,通过添加微生物诱导中性粒细胞胞外陷阱(NET)形成金黄色葡萄球菌、铜绿假单胞菌和白色念珠菌) 或化学物质(PMA、HOCl)于24孔板中,通过DAPI-DNA、抗LL37 Alexa Fluor 594及微生物-CFSE染色,用于荧光显微镜分析。为定量酶活性,于96孔板中诱导NETs形成3小时,随后加入DNase处理,并分别添加中性粒细胞弹性蛋白酶(NE)、组织蛋白酶G(CG)和髓过氧化物酶(MPO)的底物,通过分光光度法测定显色变化。DPBS = Dulbecco's磷酸盐缓冲液;PBMC = 外周血单个核细胞;PMN = 多形核中性粒细胞;NE = 中性粒细胞弹性蛋白酶;CG = 组织蛋白酶G;MPO = 髓过氧化物酶;PMA = 佛波酯(Phorbol myristate acetate);HOCl = 次氯酸。 请点击此处以查看此图的放大版本。
访问受限。请登录或开始试用以查看此内容。
结果
中性粒细胞的纯度与活力
通过双密度梯度纯化后,在离心管中可观察到不同的动态细胞层。其中,对应于粒细胞的层位于密度为1.079 g/mL的分层之上,可与外周血单个核细胞(PBMCs)及红细胞所在层区分开来(图1A)。通过Wright染色验证纯化细胞的形态,显微镜下可见具有由细丝状结构连接的分叶核的细胞,符合成熟中性粒细胞的特征(图2A)。由于中性粒细胞的半衰期较短,其活力对于后续的NET诱导实验至关重要。因此,采用台盼蓝排斥染色法检测细胞活力,通过评估染料无法穿透完整细胞膜的情况来判断细胞膜的完整性(图2B)。此外,7AAD可插入DNA的胞嘧啶和鸟嘌呤碱基对之间并发出荧光,从而便于识别并排除死细胞(图2C、D)。在10次独立实验中,上述方法获得的细胞纯度为98.9% ± 0.06%,细胞活力为95.5% ± 4.2%。
访问受限。请登录或开始试用以查看此内容。
讨论
必须获得高纯度的活中性粒细胞群体,以诱导NETs的释放,因为这些细胞的寿命有限 离体 平均寿命为8小时,在此期间必须完成所有实验。为此,理想的方法是采用双密度梯度法,以优化纯化时间,分离出对异源刺激更敏感的非活化细胞,相比之下,该方法优于Ficoll-Histopaque密度梯度法或右旋糖酐沉降法17双密度梯度法的另一优势在于其成本相对较低,相较于依赖细胞表面抗原(如CD16)的高纯度细胞富集技术,例如荧光激活细胞分选(FACS)和磁激活细胞分选(MACS),该方法更具经济性你好 中性粒细胞中。除了成本较高外,这些分选方法还可能在抗体-抗原相互作用过程中引起靶细胞的非预期活化,并增加 离体 中性粒细胞的作用时间,因为这两种技术通常在密度梯度纯化后使用。细胞形态和活力检测可排除纯化中性粒细胞的异常变化,并证实所观察到的变化是相对于未受刺激的静息中性粒细胞在相同实验条件下对所加刺激物的特异性反应图2)。这证实了该方案在不改变细胞活力和形态的情况下,作为一种无菌且可重复的中性粒细...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在利益冲突。
致谢
本工作由墨西哥国家科学技术委员会(CONACyT)基础科学基金(项目编号 #285480)以及瓦哈卡自治大学(Universidad Autónoma 'Benito Juárez' de Oaxaca)生物化学科学学院临床免疫学研究系资助。A.A.A、S.A.S.L 和 W.J.R.R. 分别获得 CONACyT 的博士研究生奖学金,编号分别为 #799779、#660793 和 #827788。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 用于细胞培养的24孔板 | Corning | 3526 | |
| 7-氨基放线菌素D(7-AAD) | BD Pharmingen | 51-668981E | |
| 用于细胞培养的96孔板 | Costar | 3596 | 平底 |
| 振荡器 | CRM Globe | CRM-OS1 | |
| LL37抗体 | Santa Cruz Biotechnology | sc-166770 | |
| 血液采集管 | BD VACUTAINER | 368171 | K2 EDTA 7.2 mg |
| 羧基荧光素琥珀酰亚胺酯(CFSE) | Sigma-Aldrich | 21878 | |
| 离心机 | Hettich | 1406-01 | |
| 盖玻片 | Madesa | M03-CUB-22X22 | 22 mm × 22 mm |
| Dulbecco´s 磷酸盐缓冲液(DPBS) | Caisson | 1201022 | |
| 50 mL Falcon管 | CORNING | 430829 | |
| 流式细胞术管 | Miltenyi Biotec | 5 mL - 无盖 | |
| FlowJo软件 | BD Biosciences | 分析流式细胞术数据 | |
| 荧光显微镜 | DM 2000 | LEICA | |
| 含DAPI的Fluoroshield封片剂 | Sigma-Aldrich | F6057 | |
| 培养箱 | NUAIRE | UN-4750 | |
| MACSQuant分析仪 | Miltenyi Biotec | 流式细胞仪 | |
| 微孔板读数仪(光度计) | Clarkson Laboratory - CL | ||
| 1.5 mL微量离心管 | Zhejiang Runlab Tech | 35200N | 带金属夹扣 |
| Minitab软件 | Minitab | 统计分析 | |
| 针头 | BD VACUTAINER | 301746 | 直径1.34 mm |
| 光学显微镜 | VELAB | VE-B50 | |
| Percoll | GE Healthcare | 17-0891-01 | 密度梯度溶液 |
| 磷酸盐缓冲液(10×) | Caisson | PBL07-500ML | |
| Pyrex培养管 | CORNING | CLS982025 | N°9820 |
| RPMI 1640 1× | Corning | 10-104-CV | 含Glutagro |
| 载玻片 | Madesa | PDI257550 | 22 mm × 75 mm |
| 0.4%台盼蓝溶液 | SIGMA | T8154-100ML |
参考文献
- De Buhr, N., Maren, K. B. How neutrophil extracellular traps become visible. Journal of Immunology Research. 2016, 4604713(2016).
- Karlsson, A., Nixon, J. B., McPhail, L. C. Phorbol myristate acetate induces neutrophil NADPH-oxidase activity by two separate signal transduction pathways: dependent or independent of phosphatidylinositol 3-kinase. Journal of Leukocyte Biology. 67 (3), 396-404 (2000).
- Takei, H., Araki, A., Watanabe, H., Ichinose, A., Sendo, F. Rapid killing of human neutrophils by the potent activator phorbol 12-myristate 13-acetate (PMA) accompanied by changes different from typical apoptosis or necrosis. Journal of Leukocyte Biology. 59 (2), 229-240 (1996).
- Brinkmann, V., et al. Neutrophil extracellular traps kill bacteria. Science. 303 (5663), 1532-1535 (2004).
- Kenny, E. F., et al. Diverse stimuli engage different neutrophil extracellular trap pathways. eLife. 6, 24437(2017).
- Schultz, B. M., Acevedo, O. A., Kalergis, A. M., Bueno, S. M. Role of extracellular trap release during bacterial and viral infection. Frontiers in Microbiology. 13, 798853(2022).
- Papayannopoulos, V. Neutrophil extracellular traps in immunity and disease. Nature Reviews Immunology. 18 (2), 134-147 (2018).
- Delgado-Rizo, V., et al. Neutrophil extracellular traps and its implications in inflammation: An overview. Frontiers in Immunology. 8, 81(2017).
- Petretto, A., et al. Neutrophil extracellular traps (NET) induced by different stimuli: A comparative proteomic analysis. PLoS One. 14 (7), 0218946(2019).
- Neumann, A., et al. Novel role of the antimicrobial peptide LL-37 in the protection of neutrophil extracellular traps against degradation by bacterial nucleases. Journal of Innate Immunity. 6 (6), 860-868 (2014).
- Hakkim, A., et al. Activation of the Raf-MEK-ERK pathway is required for neutrophil extracellular trap formation. Nature Chemical Biology. 7 (2), 75-77 (2011).
- Sabbatini, M., Magnelli, V., Renò, F. NETosis in wound healing: When enough Is enough. Cells. 10 (3), 494(2021).
- Metzler, K. D., Goosmann, C., Lubojemska, A., Zychlinsky, A., Papayannopoulos, V. A myeloperoxidase-containing complex regulates neutrophil elastase release and actin dynamics during NETosis. Cell Reports. 8 (3), 883-896 (2014).
- Clark, S. R., et al. Platelet TLR4 activates neutrophil extracellular traps to ensnare bacteria in septic blood. Nature Medicine. 13 (4), 463-469 (2007).
- Pilsczek, F. H., et al. A novel mechanism of rapid nuclear neutrophil extracellular trap formation in response to Staphylococcus aureus. Journal of Immunology. 185 (12), 7413-7425 (2010).
- Sosa, S. A., et al. Structural differences of neutrophil extracellular traps induced by biochemical and microbiologic stimuli under healthy and autoimmune milieus. Immunologic Research. 69 (3), 264-274 (2021).
- White, P. C., et al. Characterization, quantification, and visualization of neutrophil extracellular traps. Methods in Molecular Biology. 1537, 481-497 (2017).
- Boeltz, S., et al. To NET or not to NET: current opinions and state of the science regarding the formation of neutrophil extracellular traps. Cell Death and Differentiation. 26 (3), 395-408 (2019).
- Yousefi, S., Mihalache, C., Kozlowski, E., Schmid, I., Simon, H. U. Viable neutrophils release mitochondrial DNA to form neutrophil extracellular traps. Cell Death and Differentiation. 16 (11), 1438-1444 (2009).
- Brinkmann, V., Zychlinsky, A. Neutrophil extracellular traps: is immunity the second function of chromatin. The Journal of Cell Biology. 198 (5), 773-783 (2012).
访问受限。请登录或开始试用以查看此内容。
重印与许可
标签
