本文介绍了一种将标记的神经细胞移植并追踪其在人脑类器官中分布的实验方案。
本文内容
摘要
摘要
细胞移植技术的进步需要能够准确评估移植细胞功能活性的模型系统。对于中枢神经系统而言,尽管异种移植仍是当前最先进的技术,但这类模型在技术上具有挑战性,通量有限且成本高昂。此外,其环境信号与人类细胞的相互作用并不完全匹配。本文介绍了一种经济、便捷且适用于高通量操作的模型,可用于将人类神经细胞移植至人脑类器官并进行追踪。这些类器官可利用商业试剂盒由人诱导多能干细胞轻松制备,并包含大脑的关键细胞类型。
我们首先通过将表达EGFP标记的人iPSC来源的神经前体细胞(NPCs)注射到这些类器官中,来演示该移植方案。接下来,我们讨论利用活细胞荧光显微镜追踪这些细胞在类器官中生长时需考虑的因素,并展示在4个月期间对移植的EGFP标记NPCs在类器官内的追踪过程。最后,我们提供了一套针对移植细胞及其局部微环境进行切片、循环免疫荧光染色和成像的实验方案。本文所介绍的类器官移植模型,可通过一种成本低廉且操作简便的方案,实现对移植人源细胞在人类微环境中的长期(至少4个月)直接追踪。因此,该模型不仅对神经细胞治疗(移植)研究具有重要价值,也可能为更准确地模拟中枢神经系统(CNS)肿瘤提供有力工具。
引言
人脑是一个复杂的器官,由神经细胞系和胶质细胞系的多种细胞类型组成。这些细胞共同形成一个复杂的网络,从而产生认知功能。目前,将细胞移植到这一系统中作为治疗多种神经系统疾病(包括创伤性脑损伤(TBI))的方法,正受到广泛关注。1,2神经退行性疾病3,4,5,6,7,以及中风8然而,此类策略发展的一个主要局限在于可用于预测移植效果的临床前模型相对匮乏。目前最常用的模型是 体外 用于确定细胞潜能的培养方法及向小鼠进行异种移植。尽管细胞培养方法可评估分化潜能与自我更新能力9,这些操作是在最佳生长条件下进行的,而这些条件并不能模拟细胞在移植环境中所会遇到的微环境。此外,细胞的培养方式可能会影响其行为特性10.
小鼠大脑包含微环境中的所有细胞类型,因此是移植研究极为强大的模型系统11。然而,小鼠与人类大脑皮层之间存在重要差异12,13,且并非所有生长因子在物种间具有交叉反应性。灵长类动物模型是更接近人类系统的替代方案,能够更好地模拟人类生理,并已产生重要的临床前研究成果14。然而,即使是这些亲缘关系较近的物种,其细胞组成仍存在显著差异15。尽管上述两种模型系统均可为移植过程中细胞行为的研究提供有价值的信息,并包含未来治疗中所需的手术要素,但它们仍不完善。此外,这些模型成本高昂且技术难度较大(例如需对动物实施脑部手术),从而限制了实验通量。同时,将人类脑细胞移植至动物体内还涉及大量伦理问题16。脑切片培养技术可将单个大脑切割用于多种处理,从而在一定程度上克服动物移植的部分局限性;然而,此类切片寿命有限(数周),仍来源于动物,且由于仅为薄层结构,缺乏足够的体积和表面完整性,难以模拟细胞注射过程17。因此,在严格的细胞培养/潜在模型与in vivo移植之间,仍存在重要空白。
脑类器官是一种 体外 包含大脑主要神经细胞类型的模型,可通过人诱导性多能干细胞(iPSCs)大量生成18,19因此,这类类器官提供了细胞环境,可用于评估待测细胞在移植环境中的功能潜力。事实上,最近一项研究表明,移植到人脑类器官中的神经前体细胞(NPCs)能够存活、增殖并分化,其行为与移植到动物脑内的神经前体细胞相似 n非肥胖型糖尿病 s严重联合免疫缺陷 gNOD.Cg-Prkdcscid Il2rgtm1Wjl/SzJ(NSG)小鼠20因此,脑类器官代表了一种无残忍行为、长寿命的(>6个月)、经济高效的系统,可捕获人类大脑的细胞类型。因此,它们可作为神经细胞再生能力早期测试的理想移植受体。
本文介绍了一种将标记的人类神经前体细胞(NPCs)移植到人脑类器官中并进行后续追踪的实验方案。图1)。这始于将表达GFP标记的NPCs注射到成熟的(2至4个月大)脑类器官中18通过活细胞荧光显微镜对移植的细胞进行为期4个月的追踪。在此期间,我们不仅观察到细胞在注射部位的持续存在,还观察到其向类器官远端区域的迁移。在实验终点,我们展示了来源于这些类器官的组织学切片的抗原修复、染色及成像方法,包括一种基于前期研究的淬灭现有AlexaFluor标记荧光染料的方案,以实现多轮额外的染色与成像。21因此,该方案可用于评估细胞在移植环境中的分化能力、移植物的持久性以及细胞扩增情况 原位以及移植部位的细胞迁移。我们预计该技术在再生医学/细胞治疗应用中具有实用价值,同时也可用于将肿瘤细胞植入特定区域的类器官中以构建肿瘤模型。
方案
注意:有关本方案中使用的所有材料、试剂和设备的详细信息,请参见材料表。
1. 通过慢病毒转导对细胞进行荧光标记
- 将所选的溶解基底膜基质的一份样品在冰上解冻。
- 在分装样品解冻的同时,向24孔板的各孔间隙及所有外周孔中加入无菌水。
注意:中间留出八个孔供使用,可确保细胞处于高湿度环境中,从而最大限度地减少由蒸发引起的差异。 - 将溶解的基底膜基质用预冷的DMEM/F12培养基按1:100比例稀释(本实验所用批次获得的终浓度为0.089 mg/mL)。
- 向已准备好的24孔板中每个待感染的中间(开放)孔加入300 µL稀释后的可溶性基底膜基质。确保基质均匀覆盖整个孔底,必要时可添加更多基质以保证涂层均匀。
- 在37 °C孵育平板30分钟,使液体在孔底形成一层凝固层。孵育结束时,检查液体是否仍完全覆盖孔底,且中心无蒸发现象。若出现蒸发,表明湿度不足;若发生此情况,需重复包被步骤。
注意:平板可在前一晚包被,并在稀释的可溶性基底膜基质中过夜,无明显不良影响;然而,蒸发风险显著增加,因此使用前必须仔细检查。 - 从培养板中一个长满iPSC来源的NPC细胞的孔中移除培养基。
注意:本研究中使用的iPSC来源的神经前体细胞系采用商业试剂盒,按照生产商说明书在第3至第10代之间制备而成。 - 轻轻将1 mL PBS加入孔板侧壁,轻轻摇动板子以确保充分均匀洗涤。
- 移除 PBS,加入 300 µL 蛋白酶-胶原酶混合液,再次轻轻摇动培养板以确保充分覆盖孔底。在 37 °C 下孵育 5 分钟。通过光学显微镜观察,确认细胞已从培养板表面脱落。
- 使用 P1,000 移液器加入 700 µL DMEM/F12,通过将该混合液喷洒至培养板底部所有表面来解离细胞。反复吹打以确保细胞团块完全分散成均一的单细胞悬液。收集细胞悬液,并转移至含有 9 mL DMEM/F12 培养基的 15 mL 圆锥形离心管中。
- 300 × g 离心 g 5 分钟。
- 在此期间,准备足够的添加了10 µM Y-27632的培养基,每孔接种需要500 µL,并额外准备1 mL用于重悬。
注意:Y-27632 对于确保神经前体细胞在以单细胞传代后的高存活率是必需的。 - 吸除上清液,将细胞重悬于1 mL添加Y-27632的培养基中,轻轻吹打数次以分散细胞团块。
- 取出少量细胞,用台盼蓝稀释(1:5 至 1:10)。
- 在血细胞计数板上计数活细胞(拒染台盼蓝的细胞)。调整台盼蓝稀释比例,使血细胞计数板每个四分之一区域中至少含有50个活细胞,以确保计数的准确性。计算每孔含有100,000个细胞所需的细胞悬液体积。
- 用移液器轻轻吹打混匀细胞,吸取计算好的体积(每孔100,000个细胞)。将细胞悬液加入含Y-27632的培养基中(来自步骤1.11),使每孔终体积为500 µL。
- 移除先前包被孔中已稀释的可溶性基底膜基质(假设30分钟或更长时间的孵育已经完成)。
- 用移液器轻轻吹打混匀细胞,向每孔加入500 µL细胞悬液。
- 为使细胞均匀分布,应将培养板进行大幅度移动 "+" 在放入细胞培养箱之前,立即以轻柔的线性扫动方式(前后、停顿、来回)晃动。
- 37 °C、5% CO₂条件下孵育过夜(16–24 小时)2.
- 移除培养基,加入滴定好的慢病毒。若需要单个整合事件,应以每细胞0.3个感染单位的感染复数进行感染(最好在目标细胞上进行滴定),并用培养基补至500 µL(不含Y-27632)。
注意:感兴趣的慢病毒可购买预滴定产品,或如先前所述自行制备22此处使用实验室自制的携带嘌呤霉素抗性的GFP慢病毒,以生成并筛选表达EGFP的神经前体细胞(NPCs)。如果该慢病毒尚未在目标细胞上进行滴定,且拷贝数至关重要,则建议将不同体积的病毒加入数个孔中,并选择EGFP阳性细胞比例约为30%的孔+ 细胞在48-72小时后使用。如果拷贝数不是关键因素,可加入过量病毒,但需注意插入突变可能导致部分克隆出现异常表型。警告:慢病毒载体属于生物安全二级至三级危害物质(取决于其内容),操作时应遵循当地生物安全规定,对慢病毒进行处理,并对表面、塑料器皿及液体废物进行去污染。 - 将细胞放回培养箱,在37 °C、5% CO₂条件下培养24小时2.
- 从培养箱中取出细胞,弃去上清液。
注意:由于此时细胞上清液仍含有慢病毒颗粒,处理和处置时需继续遵循当地的生物安全规定。 - 用 500 µL PBS 轻轻沿孔壁加入,洗涤细胞,重复两次;每次加入后从孔的角落吸出液体,以去除残留的慢病毒。
警告:由于此时细胞上清液仍含有慢病毒颗粒,处理和处置时需继续遵守当地的生物安全规定。 - 更换为 500 µL 新鲜培养基(不含 Y-27632),继续在 37 °C 和 5% CO₂ 条件下培养2 过夜。
- 使用活细胞荧光显微镜检测表达EGFP的细胞比例,并选择合适的孔继续实验。
- 如果所选的慢病毒载体包含筛选盒(如嘌呤霉素抗性基因等抗生素抗性基因),则向培养基中加入已验证剂量的筛选试剂(此处为 1 µg/mL 嘌呤霉素),该剂量可杀死敏感细胞而保留抗性细胞。否则,采用荧光激活细胞分选法分离 EGFP+ 首次传代时的细胞
- 此后,每天监测细胞汇合度并进行完全换液。
- 当达到汇合度时,准备一个或多个新鲜的6孔包被板中的孔(每孔加入1 mL稀释的可溶性基底膜基质;参见步骤1.3-1.5),并按照步骤1.6-1.15所述收获细胞。
注意:若未添加筛选剂,此时需通过流式细胞术对细胞进行分选。确保分选过程中使用足够宽的喷嘴和较低压力,以尽量减少细胞应激,并在分选过程的每一步均加入10 µM Y-27632。 - 将细胞接种至终密度为 200,000 个细胞/cm²2.
- 每天进行日常监测,并完成培养基的每日全量更换。
注意:当细胞再次达到汇合状态时,即可用于实验。或者,可按照以下步骤将细胞冻存,以备将来使用。 - 按照步骤1.6-1.15所述,对细胞进行分离、收集和计数。
- 预先用相关信息(如传代次数、EGFP%、细胞系)标记一组冻存管。
- 以400,000个细胞/mL的浓度重悬于含10% DMSO的培养基中。
注意:DMSO 在未冷冻状态下对细胞具有毒性,因此在含有 DMSO 的情况下,应尽量减少室温下的操作时间。 - 加入1.33步骤中混合液1 mL(含400,000个细胞) 每支冻存管分装后,置于无细胞冻存容器中。
- 将容器转移至 −80 °C 超低温冰箱中过夜。
- 次日,将细胞转移至液氮中进行长期保存。
2. 将标记细胞注射到脑类器官中
注意:本研究中,脑类器官是根据生产商的说明使用商业试剂盒制备的。此步骤可替换为感兴趣的脑类器官。本实验方案部分所使用的材料必须预先冷却,以防止可溶性基底膜基质在高于 4 °C 时发生凝胶化。
- 将要与溶解的基底膜基质接触的胰岛素注射器、枪头和管子置于 −20 °C 下冷却。
- 根据需要进行的注射次数(约每注射 2 µL),在冰上解冻适当体积的溶解基底膜基质。此过程大约需要 30 分钟。
- 在解冻的同时,按照步骤 1.6–1.15 所述方法对细胞进行传代、收集和计数。
- 计算每次注射所需的体积。若需进行多次注射,将细胞总体积加入 1.5 mL 离心管中,并加入最多 1 mL 的 DMEM/F12。
注意:应使用略多于实际需要的体积,以补偿操作损失或移液误差。 - 在准备后续步骤时,将细胞置于冰上保存。
- 解冻后,用预冷的 DMEM/F12 将溶解的基底膜基质稀释至终浓度为 3 mg/mL。
- 从冰上取出单细胞悬液,在 4 °C 下以 300 × g 离心 5 分钟。
注意:若无冷藏离心机,室温离心通常也可耐受。 - 轻柔地完全去除上清液,避免扰动细胞沉淀。用移液枪轻轻吹打,将细胞沉淀重悬于已稀释的溶解基底膜基质(3 mg/mL)中,使终体积达到每注射 2 µL,立即放回冰上直至使用。
注意:重悬过程需缓慢进行,并使用预冷的枪头,以避免产生气泡或发生凝胶化。 - 将预冷的注射器从 −20 °C 冰箱转移至装有冰的冰桶中,保持在此状态直至使用。
- 从培养箱中取出含有脑类器官的培养板。使用宽口枪头将待注射的类器官转移至 35 mm 培养皿中。尽可能吸除所有培养基,但不得损伤类器官,以稳定其位置并便于注射。
注意:必须使用宽口枪头,以防破坏类器官。若无此类枪头,可用无菌剪刀剪去标准 P1,000 枪头的末端作为替代。 - 将含有类器官的 35 mm 培养皿置于解剖显微镜下,以辅助和引导注射操作。
注意:若无菌区域中无解剖显微镜,也可在无辅助设备下进行注射,但控制精度会有所降低。另一种替代方案是使用放大头戴镜或放大眼镜。 - 当类器官准备就绪后,用预冷的 P20 移液枪头轻柔重悬细胞,并将 2 µL 细胞悬液(含所需注射的细胞数量)转移至预冷的无菌载玻片上。
注意:对于多次注射,可在载玻片上不同位置添加多个 2 µL 液滴。保持载玻片在冰上,并注意防止蒸发。 - 从冰上取一支预冷的胰岛素注射器,针尖斜面朝下,缓慢吸取 2 µL 细胞悬液,确保所有细胞/培养基均被吸入。
注意:务必缓慢操作,避免吸入空气。 - 打开含有类器官的培养皿盖子,并在显微镜下对焦。一手持皿,针尖斜面朝上,另一手持注射器,缓慢将细胞注入类器官表面。
注意:注射过程应缓慢进行,以避免组织损伤。 - 注射完成后,盖上培养皿盖,让注射后的类器官静置 1–2 分钟。
注意:此步骤可使稀释的溶解基底膜基质形成凝胶,从而固定细胞位置。若过早加入培养基,可能会冲走表面的细胞。 - 轻柔加入 500 µL 类器官培养基,用宽口枪头将类器官转移至 24 孔板中的一个孔内。在 37 °C 和 5% CO2 条件下过夜培养。每隔两天进行一次完全换液。
注意:应设置阴性对照类器官(模拟注射),用于成像参数调整。具体操作为:按照前述方法,使用稀释的溶解基底膜基质(3 mg/mL)进行注射,终体积为 2 µL,但不包含细胞。
3. 通过活细胞荧光成像进行移植物追踪
注意:使用能够激发目标荧光染料并配备相应滤光片以检测其荧光的荧光显微镜。如前所述,本实验所用的神经前体细胞(NPCs)为 EGFP+,其激发峰为 488 nm,发射峰约为 510 nm。
- 加载阴性对照类器官(未注射或模拟注射),调节光照强度和曝光时间,使自发荧光最小化。对于本实验所用仪器,光照强度设置在1至2之间,曝光时间设置在80 ms至100 ms之间。
注意:由于许多激发波长(特别是较短波长)可能对细胞具有毒性,建议保持较低的光照强度,并避免长时间观察,以防止类器官受损。 - 加载阳性对照类器官,必要时提高曝光时间,以确保标记细胞清晰可见。使用宽口移液器吸头重新定位类器官,找到注射部位(EGFP+ 区域)。
- 完全移除阴性对照类器官中的培养基。加载阴性对照类器官,并使用选定的参数进行成像(对于本实验所用仪器,光照强度设置在1至2之间,曝光时间设置在80 ms至100 ms之间)。成像完成后,立即添加新鲜培养基,防止类器官干燥。
注意:完全移除培养基对于获得高质量图像至关重要,因为它可固定类器官的高度和方向;否则类器官会漂浮并持续移动,无法实现高质量成像。 - 对每个测试类器官重复进行培养基移除和成像操作。
- 将类器官恢复至正常的培养/换液流程(如步骤2.16所述),并在预定时间间隔重复成像。本实验中,分别在注射后第1周、第9周和第16周对类器官进行成像,以追踪并检测注射的EGFP+ 神经前体细胞(NPCs)的存活、增殖、分化和迁移情况。
4. 组织学与免疫荧光
- 实验终点时,将类器官转移至已标记类器官编号及其他必要标识的组织学包埋盒中。
- 向包埋盒中加入10%福尔马林溶液并关闭盒盖,在室温下固定24小时。
- 将装有类器官的封闭包埋盒转移至组织处理仪中,并设置以下程序:70%乙醇10分钟、80%乙醇20分钟、95%乙醇30分钟、100%乙醇30分钟、100%乙醇40分钟、100%乙醇50分钟、甲苯30分钟、甲苯40分钟、甲苯50分钟、59 °C下石蜡25分钟、59 °C下石蜡35分钟、59 °C下石蜡40分钟、59 °C下石蜡50分钟。
注意:除非另有说明,上述步骤均在室温下真空条件下进行。该程序通过梯度乙醇逐步取代组织中的水分直至100%乙醇。甲苯作为中间步骤,是乙醇与石蜡之间的过渡介质,因两者均可溶于甲苯。注意:甲苯和石蜡属于危险品,因其为高度易燃液体,吸入或接触皮肤、眼睛可能造成伤害。请确保将其密封存放于安全场所,操作时佩戴适当的个人防护装备,并按照当地化学品危险废物管理规定妥善处置废弃物。 - 将装有类器官的封闭包埋盒转移至包埋工作站的石蜡浴中。
- 从石蜡浴中取出包埋盒,打开后将类器官转移至钢制底模中。将模具置于石蜡分配器下方,完全覆盖石蜡。
- 将空的包埋盒置于钢制底模上方,并在包埋盒顶部继续添加更多石蜡。
- 将带有包埋盒的钢制底模转移至冰上,冷却5分钟。移除钢模,保留类器官包埋于石蜡块中的包埋盒。
- 将包埋盒转移至切片机进行切片,按需切割切片。
注意:本实验中在整个类器官上连续切取厚度为15 µm的切片。 - 将每张切片漂浮于设定为45 °C的水浴表面,随后用载玻片捞起。
- 将载玻片置于42 °C培养箱中过夜干燥。
注意:载玻片现可在室温下保存,直至染色时使用。 - 将载玻片放入盛有甲苯的Coplin染色缸中,浸泡2分钟,重复一次。
注意:甲苯属于危险品,因其为高度易燃液体,吸入或接触皮肤、眼睛可能造成伤害。请确保将其密封存放于安全场所,操作时佩戴适当的个人防护装备,并按照当地化学品危险废物管理规定妥善处置废弃物。 - 转移至盛有100%乙醇的玻璃Coplin染色缸中,浸泡2分钟,重复一次。
- 转移至盛有蒸馏水的玻璃Coplin染色缸中,浸泡2分钟,重复一次。
- 进行抗原修复时,配制柠檬酸盐缓冲液(10 mM柠檬酸,0.05% Tween 20,pH 6.0)。
注意:柠檬酸盐缓冲液可在室温下保存最长3个月,或于4 °C长期保存。 - 设置水浴温度在95 °C至100 °C之间。
注意:若操作不慎,该水浴可能导致烫伤。请采取一切必要预防措施,避免直接接触水浴或其组件。 - 在水浴中放置一个可容纳载玻片的塑料容器,确保塑料容器不接触水浴底部(假设为底部加热型水浴),以防熔化。向塑料容器中加入柠檬酸盐缓冲液,并使其升温至95–100 °C。
- 当缓冲液达到目标温度后,将载玻片放入缓冲液中,并用盖子松散覆盖容器。将载玻片在水浴中孵育30–40分钟。
- 从水浴中取出塑料容器,在室温下继续冷却20分钟。
- 用PBS洗涤载玻片,每次2分钟,共洗3次。用纸巾吸除PBS,注意不要触碰样本或过度干燥。
- 配制透化缓冲液(90 mL PBS + 0.1% Tween-20),并将玻璃染色缸中加满该缓冲液。将载玻片浸入透化缓冲液中,孵育10分钟。
- 用PBS洗涤载玻片,每次2分钟,共洗3次。
- 配制足够覆盖每个样本的染色混合液(约25 µL)。
注意:所用抗体及其终浓度详见表1。 - 每张类器官切片上加25 µL染色混合液覆盖样本,在室温下孵育1小时,或在4 °C避光孵育过夜。
注意:应确保样本处于高湿度环境中,以防止染色液蒸发。若无专用保湿容器,可将载玻片置于盒内,并在角落放置湿润纸巾以维持湿度。 - 用PBS洗涤载玻片,每次2分钟,共洗3次。
- 在玻璃染色缸中用蒸馏水冲洗一次,以去除盐分。
- 每个样本上加10 µL含4',6-二脒基-2-苯基吲哚(DAPI)的封片剂。
注意:若不再进行第二轮染色,可对载玻片进行封片。本实验中未加盖盖玻片,以便后续进行淬灭/重染,因为移除盖玻片可能损伤组织。 - 使用选定的荧光显微镜对载玻片进行成像。
注意:每种抗体均需设置阳性和阴性对照,以正确设定信号强度和曝光时间(本实验所用仪器的照明强度设定在5至6之间,曝光时间在2,000 ms至3,000 ms之间),但具体参数可能因抗体而异。此外,需确保显微镜具备各通道所需的足够检测器。请注意,由于样本未加盖盖玻片,成像时应将载玻片正面朝上放置。 - 成像后,新鲜配制2倍淬灭缓冲液(PBS中含9% H2O2 和50 mM NaOH)。
注意:淬灭液必须在使用前立即新鲜配制。该反应对H2O2的活性敏感,其活性会随时间下降。注意:H2O2具有刺激性,NaOH具有腐蚀性,操作时应使用适当的安全防护设备,避免皮肤接触,并按照当地化学品安全管理规定妥善处置。 - 向玻璃Coplin染色缸中加入半缸2倍淬灭缓冲液(45 mL),再加入45 mL PBS,放入载玻片,在4 °C孵育过夜。
- 通过荧光显微镜检查荧光染料是否已有效淬灭。
- 重复上述染色与成像步骤。
注意:可根据需要重复进行淬灭与重染,但每增加一轮操作,组织损伤的风险也随之增加。
5. 图像配准
- 打开 FIJI。
- 创建一个文件夹,存放第一轮和第二轮的 DAPI 图像。如有需要,重命名文件以明确区分。
- 创建一个空文件夹,用于保存图像配准的输出结果。
- 点击 Plugins | Registration | Register Virtual Stack Slices。
- 在 Source directory 下,选择包含每轮 DAPI 图像的文件夹。
- 在 Output directory 下,选择为配准输出创建的文件夹。
- 将 Feature extraction model 设置为 Rigid,并将 Registration model 下拉菜单设置为 Rigid - translate+rotate,以固定配准,仅允许图像进行平移和旋转对齐,而不发生形变。
注意:如果预期存在形变,可根据需要将 feature extraction model 和 registration model 调整为 Affine 或其他模型,但这可能导致不期望的变换。有时在不同轮次之间切片可能受损,从而导致配准失败。 - 勾选 Save transforms 选项,以保存变换参数,便于将其应用于其他通道。
- 点击 OK。
- 选择 保存变换文件的位置(默认为输入目录),然后点击 Open。
- 选择一个 DAPI 图像作为变换的参考图像。其他各轮的 DAPI 图像将与此图像对齐。
注意:完成后,配准后的图像将以堆栈形式显示(同时保存在输出文件夹中)。 - 使用底部的滑动条在图像之间来回切换,验证图像配准是否成功(至少在重叠区域,两幅图像中的细胞核位置应一致)。
- 确认每个输入图像轮次均已生成相应的 .xml 文件。
注意:这些文件包含该轮次图像所需的平移参数。 - 创建一个文件夹,包含所有待配准的图像(每轮的每个通道)。注意文件的顺序。
- 创建一个用于存放变换参数的文件夹,并为每个待配准通道的每轮图像复制一份对应的 .xml 文件。请仔细核对文件顺序(按名称),确保待配准图像与变换参数文件副本的顺序一致,因为下一步将按照变换参数文件的顺序依次对图像进行变换。
- 点击 Plugins | Transform | Transform Virtual Stack Slices。
- 在 Source directory 下,选择包含待配准图像的文件夹。
- 在 Output directory 下,选择为配准输出创建的文件夹。
- 在 Transforms directory 下,选择包含 .xml 文件的文件夹,每个待变换的图像文件对应一个 .xml 文件副本。再次确认文件顺序匹配(例如,每个第一轮通道对应一份第一轮的 .xml 文件,每个第二轮通道对应一份第二轮的 .xml 文件,依此类推)。
- 点击 OK。
注意:完成后,该轮次的配准图像将以堆栈形式显示(同时保存在输出文件夹中)。 - 使用底部的滑动条在各通道之间来回切换,验证所有通道是否以相同方式完成变换。若未一致,可能是 transforms directory 中的 .xml 文件有误;此时应修正文件并重新执行。
注意:显示的亮度范围基于某一通道,但这仅影响显示效果,不影响实际保存的图像数据。 - 观察确认配准后的图像在各轮次间均已成功对齐,可进行叠加或后续分析。
注意:对于大批量数据,存在更高效的程序化配准方法。此处介绍的方法仅是一种无需编程的简便方案。
结果
为验证脑类器官的身份特征,对成熟的(2个月大)脑类器官进行组织切片染色,检测PAX6(背侧神经前体细胞的标志物23)和SATB2(成熟、有丝分裂后上层神经元的标志物24)。如预期所示,PAX6+细胞位于类器官内部,而SATB2+细胞分布于上层区域(图2)。这些结果表明,所使用的脑类器官确实为分化试剂盒中指定的背侧前脑组织。为建立脑类器官移植系统的剂量依赖性,将不同数量的EGFP+诱导性多能干细胞(iPSC)来源的神经前体细胞(NPCs)注入2个月大的脑类器官中。GFP荧光信号随输入细胞数量呈现明显的剂量依赖关系,在输入细胞数达到10,000个及以上时,可稳定检测到EGFP+细胞团块(图3)。接下来通过长期追踪移植后的类器官,评估移植NPCs的存留与迁移能力。为此,将50,000个来自同一iPSC细胞系的EGFP+ iPSC来源NPCs移植至2–3个月大的脑类器官中。在随后的3–4个月内,于指定时间点对移植组及对照组类器官进行EGFP阳性成像观察。在此系列移植实验中,注射部位在整个为期4个月的追踪期间均保持可见(图4A)。移植后第9天起出现新的EGFP+细胞团块,并持续存在至实验终点(3–4个月,依类器官而定),表明移植细胞发生了迁移并在新位置实现整合(图4A)。在更高倍镜下观察,可见清晰的神经元形态,具有向类器官内部延伸的长突起(图4B),进一步证实了移植细胞的成功整合。
为了确定注射后晚期阶段注射细胞的分化状态,将追踪了4个月的类器官及其对照组固定,进行石蜡包埋,切成15 µm厚的切片,并贴附于载玻片上。随后对切片进行处理,采用单轮荧光染色(EGFP、TUJ1、NESTIN)或两轮连续染色以增加额外标记物(MAP2、GFAP)。初始的单轮染色证实了在注射部位存在EGFP+细胞,其中包括保持神经前体细胞(NPC)状态的细胞(NESTIN+TUJ1−)以及已向神经谱系分化的细胞(NESTIN−TUJ1+)(图5)。在对照组和注射组类器官中,仅观察到极少数NESTIN+的NPCs(其中大多数但并非全部为在注射部位的EGFP+移植NPCs),而绝大多数为TUJ1+的未成熟至成熟神经元(图5)。两轮染色提供了更详细的图像,显示在类器官外周大部分区域存在成熟神经元(NESTIN−TUJ1+MAP2+GFAP−),而中间区域则为未成熟神经元(NESTIN−TUJ1+MAP2−GFAP−)(图6A、B)。星形胶质细胞(NESTIN−TUJ1−MAP2−GFAP+)在注射组和对照组类器官中均存在,并分散分布于外缘区域(图6A、B)。对注射组类器官中进行两轮染色的切片显示,在远离注射部位处存在一小簇EGFP+细胞的卫星克隆,这些细胞呈现出成熟神经元的表型(图6B、C)。其中一些细胞似乎与星形胶质细胞位置邻近;然而,未发现EGFP+细胞与GFAP染色完全重叠,提示它们是相邻存在而非自身转化为星形胶质细胞(图6B、C)。

图1:标记细胞移植至脑类器官的模型示意图。 通过慢病毒转导生成标记细胞,将其移植到脑类器官中,并通过活细胞成像和免疫荧光进行追踪的流程示意图。缩写:GFP = green fluorescent protein。 请点击此处查看该图的放大版本。

图2:组织切片的免疫荧光染色显示早期和晚期类器官的结构特征。 一个2个月大的脑类器官经固定、石蜡包埋、切片后,使用PAX6、SATB2和DAPI进行染色。未染色切片用于设定曝光和积分时间,以避免自发荧光导致的假阳性信号。PAX6阳性细胞位于类器官内部,而SATB2阳性细胞则分布于表层区域。在整个15 µm厚的组织切片中,每隔4.2 µm采集一次Z轴图像序列。使用Gen5软件中的焦平面叠加功能(默认参数)将各光学切片合并。比例尺 = 100 µm。缩写:PAX6 = paired box 6蛋白;SATB2 = special AT-rich sequence-binding protein 2;DAPI = 4',6-diamidino-2-phenylindole。请点击此处查看该图的高清版本。

图3:神经前体细胞在脑类器官中移植的剂量依赖性。 将0(阴性对照)、1,000、5,000、10,000 或 50,000 个GFP+ 诱导性多能干细胞(iPSC)来源的神经前体细胞(NPCs)移植到类器官中。移植后1周,使用配备GFP滤光立方体的Cytation 5成像系统对类器官进行成像。采用阴性对照设定曝光时间和积分时间,以最小化自发荧光。颜色越深,表示相对于阴性对照的EGFP荧光信号越强。比例尺 = 100 µm。这些为类器官整体的4倍放大图像。成像后,在显示前采用像素半径为50的滚动球背景扣除法,以校正类器官间背景强度的差异。移植部位以红色箭头标示,该区域显示最高程度的细胞植入。缩写:NPCs = 神经前体细胞;GFP = 绿色荧光蛋白;EGFP = 增强型GFP;iPSC = 诱导性多能干细胞。 请点击此处查看该图的高清版本。
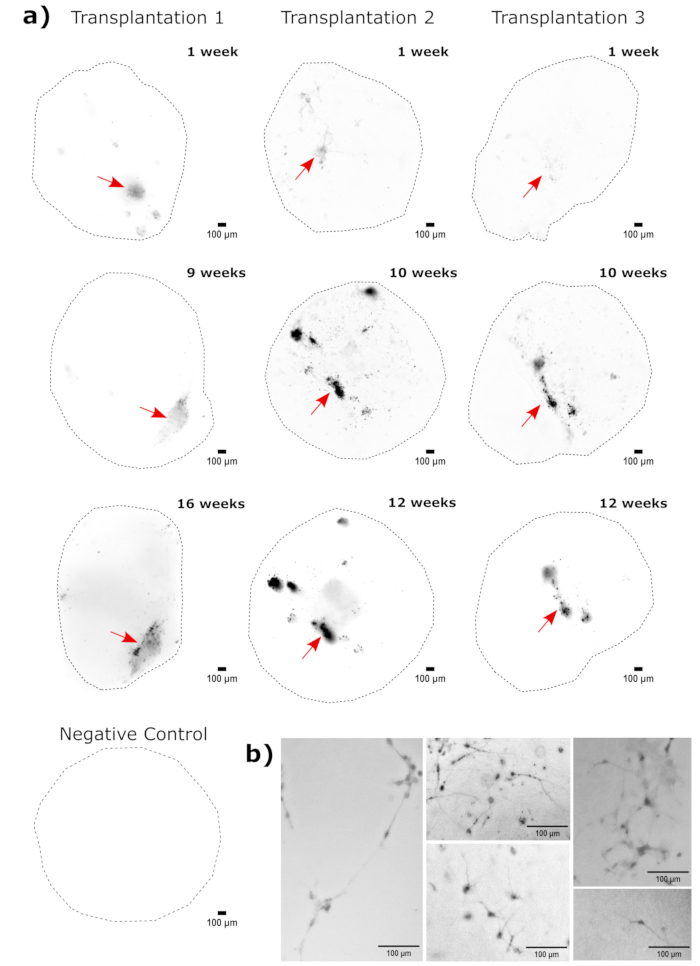
图 4:通过荧光活细胞成像追踪移植细胞的生长、迁移和存留情况。(A)对照组和移植组(50,000 个 GFP+ iPSC 来源的 NPCs)类器官在两个独立的移植实验中,通过荧光活细胞成像连续追踪 2–4 个月。使用阴性对照类器官设定曝光时间和积分时间,以在每个时间点最大限度地减少自发荧光。在移植后指定时间点,使用 Cytation 5 上的 GFP 滤光立方体采集 EGFP 图像。颜色越深,表示相对于该时间点的阴性对照,EGFP 荧光信号越强。在显示前采用半径为 50 像素的滚动球背景扣除法,以校正类器官间背景强度的差异。每次成像时类器官大致保持相同的方向,图像经过旋转以保证显示的一致性,并清晰展示移植细胞的生长情况。最早时间点中确定的最高移植区域即为注射位点,用红色箭头标示。图中底部展示了一个阴性对照类器官的示例。(B)显示了移植后第 1 周和第 15 周时成功移植类器官的 20 倍放大图像示例。在显示前使用 FIJI 软件增强局部对比度,以确保神经突的可见性。比例尺 = 100 µm。缩写:NPCs = 神经前体细胞;GFP = 绿色荧光蛋白;EGFP = 增强型 GFP;iPSC = 诱导性多能干细胞。请点击此处查看该图的高清版本。
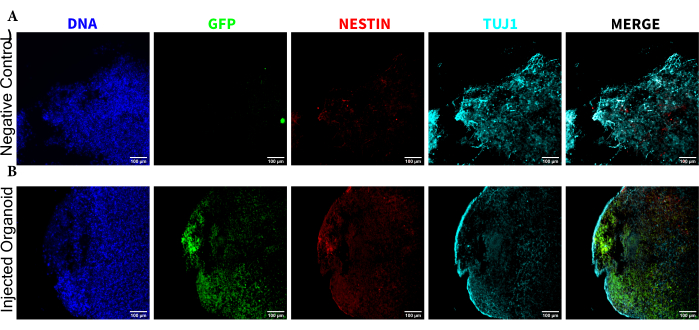
图 5:组织切片的免疫荧光染色显示移植的神经前体细胞在注射部位持续存在,并伴有迁移和神经分化。 来自(A)未注射和(B)移植类器官的单通道荧光图像。右侧的叠加图像显示了三个目标通道(NESTIN、TUJ1 和 EGFP),但未包含 DAPI。显示最小值设置为刚好排除阴性细胞的信号(EGFP 的阴性对照来自未注射组,其他通道则基于已知标记物组合确定);显示最大值基于该抗体在任何细胞中观察到的最高信号。为便于直接比较,未注射组与移植组类器官的显示范围保持一致。比例尺 = 100 µm。缩写:NPCs = 神经前体细胞;DAPI = 4',6-二脒基-2-苯基吲哚;TUJ1 = β-III 微管蛋白;EGFP = 增强型绿色荧光蛋白。 请点击此处查看该图的放大版本。

图6:通过组织切片的循环免疫荧光染色评估移植细胞的分化状态与定位。 显示了未注射对照(A)与移植类器官(B)在第一轮和第二轮染色中的单通道荧光图像。显示的最低值设定为刚好排除阴性细胞的信号(EGFP 的阴性对照来自未注射样本,其他通道则基于已知标志物组合确定);显示的最高值基于该抗体在任意细胞中观察到的最强信号。为便于直接比较,对照组与注射组类器官的显示范围(以及成像参数)保持一致。比例尺 = 100 µm。右侧显示了每个类器官每轮染色的叠加图像(不含 DAPI)。(B)对于进行了图像配准的注射类器官,所有图像均裁剪至两轮染色中均可见的区域。(B、C)对于注射类器官,EGFP+ 细胞区域以蓝色轮廓标出。(C)展示了如何利用 DAPI 匹配图像配准过程中的特征结构,随后为配准后图像的整体合并结果。缩写:DAPI = 4',6-二脒基-2-苯基吲哚;TUJ1 = β-III 微管蛋白;EGFP = 增强型绿色荧光蛋白;MAP2 = 微管相关蛋白 2;GFAP = 胶质纤维酸性蛋白。 请点击此处查看该图的高清版本。
| 克隆 | 荧光染料 | 浓度 | |
| 抗NESTIN | 10C2 | AlexaFluor 594 | 1:2,000 |
| 抗TUBB3 | TUJ1 | AlexaFluor 647 | 1:2,000 |
| 抗GFP | FM264G | AlexaFluor 488 | 1:200 |
| 抗GFAP | SMI 25 | AlexaFluor 594 | 1:500 |
| 抗MAP2 | SMI 52 | AlexaFluor 488 | 1:1,000 |
| 抗PAX6 | O18-1330 | AlexaFluor 647 | 1:100 |
| 抗SATB2 | EPNCIR130A | AlexaFluor 594 | 1:500 |
表1:染色所用抗体浓度。 缩写:TUBB3 = β-微管蛋白III;GFP = 绿色荧光蛋白;GFAP = 胶质纤维酸性蛋白;MAP2 = 微管相关蛋白2;PAX6 = 成对盒蛋白6;SATB2 = 富含AT序列结合蛋白2。
讨论
鉴于细胞治疗在中枢神经系统(CNS)损伤和神经退行性疾病治疗中受到广泛关注1,2,3,4,5,6,7,8,研究细胞在移植环境中的功能模型正变得日益重要。本文介绍了一种将标记的人类神经前体细胞(NPCs)移植至人脑类器官的方法,并通过组织学和免疫荧光染色对移植细胞进行活细胞追踪及终点评估。重要的是,我们发现移植的细胞能够在类器官环境中迁移、分化并长期(4个月)存活。这种长期存活能力显著优于脑切片培养系统的维持时间17。因此,该系统适用于评估潜在治疗场景中所需考察的多种细胞行为,如存活、增殖和分化。事实上,最近一项正交研究显示,移植的NPCs在脑类器官中的行为与移植到NSG小鼠脑中的NPCs相似20,从而证实了类器官作为移植受体的实用性。由于这是一个体外(in vitro)系统,可直接添加感兴趣的细胞因子或药物。这有助于更好地理解特定微环境(如炎症状态或免疫抑制剂)对移植细胞的影响,从而更真实地模拟其在治疗环境中的遭遇。我们所展示的循环免疫荧光染色方案(基于先前研究21)进一步增强了该方法的能力,可在单个切片中同时检测大量谱系特异性以及潜在的疾病特异性标志物,从而实现对移植细胞及其对组织影响的精确追踪。当然,根据分析目标的不同,也可采用其他终点评估方法。例如,若主要关注细胞形态,可采用组织透明化结合三维重建技术;若最终目标是定量特定细胞类型的数量,则可采用组织解离后流式细胞术分析。我们预计该方法可轻松扩展至其他细胞类型,如中枢神经系统肿瘤,从而可能在具有微环境相关性的背景下对其进行研究。类似地,作为受体使用的类器官也可替换为疾病模型类器官25,26,27,从而有望为这些疾病的移植治疗策略建立模型。
与所有模型一样,本文所介绍的模型也存在其自身的局限性。首先,由诱导多能干细胞(iPSC)衍生的类器官在发育上尚不成熟19,因此与许多神经退行性疾病发生的衰老大脑相比,存在重要差异。脑类器官在发育过程中也存在异质性19,因而无法始终如一地将其注射到完全相同的生理微环境中。此外,尽管这些类器官包含相关脑区的细胞类型18, 19,但缺乏内皮细胞、小胶质细胞以及免疫成分,而这些成分在in vivo环境中同样至关重要14。这限制了对宿主如何响应细胞移植的研究。目前已有新技术正在发展,用于向类器官中引入血管28和小胶质细胞29,并提高类器官的一致性和区域特异性18,从而增强类器官移植系统的建模能力。然而,这些技术仍需在本方案所描述内容之外进行进一步测试和优化。尽管本方案成本较低且无需特殊设备,但仍存在若干重要的技术考量因素——例如注射深度。这主要是因为类器官缺乏灌注,若生长过大,常出现坏死的核心19;同时,活细胞追踪时光线无法穿透类器官核心。因此,注射过深的细胞以及迁移到内部的细胞克隆可能被遗漏。虽然使用穿透性更强的长波长荧光染料可在一定程度上缓解该问题30,但根据类器官大小和检测设备的不同,这仍可能是一个需要考虑的因素。最后,由于脑类器官处于持续发育状态,移植时机是另一个关键考量因素,因为移植环境可能随类器官发育阶段的不同而有所差异。尽管可通过确保注射时类器官年龄一致在一定程度上控制该变量,但无疑这是必须加以考虑的一个因素。
该方案成本低廉、操作简便、无需使用动物,且不需要特殊设备,从而使移植建模可被更广泛的实验室所采用。随着神经细胞治疗和类器官模型系统研究的快速进展,我们预计本文所介绍的类器官移植方案将成为多种疾病及治疗策略研究的有用模型。
披露
作者无任何利益冲突需要披露。
致谢
本工作得到了马塞尔和让·库图基金会(Marcelle and Jean Coutu foundation)提供的IRIC慈善基金以及魁北克健康研究基金(Fonds de recherche du Québec - Santé,FRQS #295647)的资助。D.J.H.F.K. 获得了FRQS颁发的初级研究员一级奖学金(Chercheurs-boursiers Junior 1,#283502)提供的薪资支持。M.I.I.R. 获得了癌症免疫学与研究研究所(Institut of Research in Immunology and Cancer)颁发的IRIC博士奖、蒙特利尔大学硕士到博士加速过渡奖学金(Bourse de passage accélère de la maitrise au doctorat)以及高等学位优异奖学金(Bourse de Mérite aux cycles supérieurs)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Accutase | StemCell Technologies | 7920 | 蛋白水解-胶原水解酶混合物 |
| Alexa Fluor 488 抗-GFP 抗体 | BioLegend | 338008 | |
| Alexa Fluor 488 抗-MAP2(克隆 SMI 52) | BioLegend | 801804 | |
| Alexa Fluor 594 抗-GFAP 抗体(克隆 SMI 25) | BioLegend | 837510 | |
| Alexa Fluor 594 抗-Nestin(克隆 10C2) | BioLegend | 656804 | |
| Alexa Fluor 647 抗-Tubulin β 3 (TUBB3)(克隆 TUJ1) | BioLegend | 801209 | |
| 一水柠檬酸 | Fisher Chemical | A104-500 | |
| Cytation 5 细胞成像多功能读板仪 | Biotek | - | |
| 变性乙醇(无水) | ChapTec | - | |
| DMEM F12/Glutamax | Thermo | 10565018 | |
| 二甲基亚砜(DMSO),无菌 | BioShop | DMS666.100 | |
| FIJI 1.53c | - | - | |
| 中性缓冲福尔马林溶液,10% | Sigma | HT501128-4L | |
| Gen5 | - | - | |
| HistoCore Arcadia H | Leica Biosystems | - | |
| Matrigel 生长因子减少型(GFR) | Corning | 356231 | 无酚红,无LDEV |
| MX35 切片机刀片 | Epredia | 3053835 | |
| NaOH | Sigma | 655104 | |
| PBS(无钙无镁) | Sigma | D8537 | |
| 嘌呤霉素二盐酸盐 | Thermo | A1113803 | |
| ROCK 抑制剂 Y-27632 | Abcam | ab120129 | |
| Simport Scientific 不锈钢底模 | Fisher Scientific | 22-038-209 | |
| Simport Scientific UNISETTE 活检处理/包埋盒 | Fisher Scientific | 36-101-9255 | |
| STEMdiff 前脑神经元分化试剂盒 | StemCell Technologies | 8600 | |
| STEMdiff 神经前体细胞培养基 | StemCell Technologies | 5833 | |
| STEMdiff SMADi 神经诱导试剂盒 | StemCell Technologies | 8581 | |
| Thermo Scientific Shandon Finesse ME 切片机 | Thermo Scientific | - | |
| 组织处理液 | Fisher Scientific | T555 | |
| Tissue-Tek VIP 6 AI 组织处理仪 | Sakura Finetek | - | |
| 甲苯(组织学用) | ChapTec | - | |
| 台盼蓝;0.4%(重量/体积) | Thermo | 15250061 | |
| 吐温 20 | BioShop | TWN510.100 |
参考文献
- Spurlock, M. S., et al. Amelioration of penetrating ballistic-like brain injury induced cognitive deficits after neuronal differentiation of transplanted human neural stem cells. Journal of Neurotrauma. 34 (11), 1981(2017).
- Zhou, Y., Shao, A., Xu, W., Wu, H., Deng, Y. Advance of stem cell treatment for traumatic brain injury. Frontiers in Cellular Neuroscience. 13, 301(2019).
- Hayashi, Y., Lin, H. -T., Lee, C. -C., Tsai, K. -J. Effects of neural stem cell transplantation in Alzheimer's disease models. Journal of Biomedical Science. 27 (1), 29(2020).
- Kefalopoulou, Z., et al. Long-term clinical outcome of fetal cell transplantation for Parkinson disease: Two case reports. JAMA Neurology. 71 (1), 83-87 (2014).
- Li, W., et al. Extensive graft-derived dopaminergic innervation is maintained 24 years after transplantation in the degenerating parkinsonian brain. Proceedings of the National Academy of Sciences of the United States of America. 113 (23), 6544-6549 (2016).
- Parmar, M., Grealish, S., Henchcliffe, C. The future of stem cell therapies for Parkinson disease. Nature Reviews Neuroscience. 21 (2), 103-115 (2020).
- Takahashi, J. iPS cell-based therapy for Parkinson's disease: A Kyoto trial. Regenerative Therapy. 13, 18-22 (2020).
- Krause, M., Phan, T. G., Ma, H., Sobey, C. G., Lim, R. Cell-based therapies for stroke: Are we there yet. Frontiers in Neurology. 10, 656(2019).
- Coles-Takabe, B. L. K., et al. Don't look: Growing clonal versus nonclonal neural stem cell colonies. Stem Cells. 26 (11), 2938-2944 (2008).
- Duval, K., et al. Modeling physiological events in 2D vs. 3D cell culture. Physiology. 32 (4), 266-277 (2017).
- Jakel, R. J., Schneider, B. L., Svendsen, C. N. Using human neural stem cells to model neurological disease. Nature Reviews Genetics. 5 (2), 136-144 (2004).
- Hodge, R. D., et al. Conserved cell types with divergent features in human versus mouse cortex. Nature. 573 (7772), 61-68 (2019).
- Li, J., et al. Conservation and divergence of vulnerability and responses to stressors between human and mouse astrocytes. Nature Communications. 12 (1), 3958(2021).
- Morizane, A., et al. MHC matching improves engraftment of iPSC-derived neurons in non-human primates. Nature Communications. 8 (1), 385(2017).
- Khrameeva, E., et al. Single-cell-resolution transcriptome map of human, chimpanzee, bonobo, and macaque brains. Genome Research. 30 (5), 776-789 (2020).
- Powell, K. Hybrid brains: The ethics of transplanting human neurons into animals. Nature. 608 (7921), 22-25 (2022).
- Humpel, C. Organotypic brain slice cultures: A review. Neuroscience. 305, 86-98 (2015).
- Birey, F., et al. Assembly of functionally integrated human forebrain spheroids. Nature. 545 (7652), 54-59 (2017).
- Lancaster, M. A., et al. Cerebral organoids model human brain development and microcephaly. Nature. 501 (7467), 373-379 (2013).
- García-Delgado, A. B., et al. Brain organoids to evaluate cellular therapies. Animals. 12 (22), (2022).
- Lin, J. -R., Fallahi-Sichani, M., Sorger, P. K. Highly multiplexed imaging of single cells using a high-throughput cyclic immunofluorescence method. Nature Communications. 6 (1), 8390(2015).
- Knapp, D. J. H. F., et al. Single-cell analysis identifies a CD33+ subset of human cord blood cells with high regenerative potential. Nature Cell Biology. 20 (6), 710-720 (2018).
- Georgala, P. A., Carr, C. B., Price, D. J. The role of Pax6 in forebrain development. Developmental Neurobiology. 71 (8), 690-709 (2011).
- Britanova, O., et al. Satb2 is a postmitotic determinant for upper-layer neuron specification in the neocortex. Neuron. 57 (3), 378-392 (2008).
- Kim, H., et al. Modeling G2019S-LRRK2 sporadic Parkinson's disease in 3D midbrain organoids. Stem Cell Reports. 12 (3), 518-531 (2019).
- Smits, L. M., et al. Modeling Parkinson's disease in midbrain-like organoids. NPJ Parkinson's Disease. 5, 5(2019).
- Jin, M., et al. Type-I-interferon signaling drives microglial dysfunction and senescence in human iPSC models of Down syndrome and Alzheimer's disease. Cell Stem Cell. 29 (7), 1135.e8-1153.e8 (2022).
- Sun, X. -Y., et al. Generation of vascularized brain organoids to study neurovascular interactions. eLife. 11, e76707(2022).
- Popova, G., et al. Human microglia states are conserved across experimental models and regulate neural stem cell responses in chimeric organoids. Cell Stem Cell. 28 (12), 2153.e6-2166.e6 (2021).
- Wang, S., Li, B., Zhang, F. Molecular fluorophores for deep-tissue bioimaging. ACS Central Science. 6 (8), 1302-1316 (2020).
重印与许可
