本方案描述了微呼吸测定系统的建立与运行方法,该系统可用于研究珊瑚全共生体的生理特征。
本文内容
摘要
摘要
代谢活性被定义为涉及能量的生物体过程的总和,在理解地球生命的功能与演化方面具有至关重要的意义。因此,测量生物体的代谢速率是解释生物生理状态、生态角色以及环境变化对陆地和水生生态系统中物种影响的核心。在珊瑚礁生态系统中,代谢测量已被用于量化珊瑚与其专性藻类共生体(Symbiodiniaceae)之间的共生功能,并评估包括气候变化在内的环境胁迫因子将如何影响珊瑚健康。尽管其重要性显著,但由于珊瑚后代体型微小,目前仍缺乏针对其代谢速率测量的方法,相关数据也十分有限。为弥补这一空白,本研究旨在开发一种定制装置,用于测量小型(毫米尺度)海洋动物生态系统的呼吸作用。该装置成本低、操作简便,有望提升代谢速率的测量能力,这对于利用珊瑚有性繁殖进行珊瑚礁修复的应用生态学研究至关重要。
引言
呼吸作用是一项关键的生物学测量指标,能够反映生物体的整体代谢活性,但与其他关键性状(如生长)一样,对小型生物体而言难以测量1。呼吸作用可定义为通过利用氧气氧化有机分子的过程。该过程产生细胞功能(即代谢)所需的化学能,对生物体的生存至关重要。相反,无氧代谢会导致氧债2。呼吸速率可通过光学传感器(optodes)测定,该方法通过测量密闭腔室内氧气浓度随时间的消耗(即下降)来确定,这一技术通常称为呼吸测定法(respirometry)3。由于大多数生物体不储存氧气,代谢速率可通过呼吸作用与碳消耗之间的直接相关性进行推断。因此,呼吸速率可转换为每日碳消耗量,从而揭示与生长、繁殖以及在环境胁迫条件下维持代谢稳态能力等关键代谢功能相关的信息4,5,例如通常导致珊瑚应激或白化的热浪条件。
珊瑚礁正以不断加快的速度在全球范围内衰退。珊瑚动物体内共生着一系列伙伴生物(包括甲藻类共生虫黄藻科 Symbiodiniaceae、真菌、细菌和病毒), collectively referred to as the "全生物体"6随着海洋温度上升,珊瑚及其所形成的珊瑚礁面临日益严峻的生存压力,因为高温会导致甲藻类共生体Symbiodiniaceae(以下简称共生体)的流失,这一现象被称为白化。7许多营养物质在贫营养的热带水域中通常无法被珊瑚获取,包括无机氮和无机磷8为应对这一挑战,珊瑚与其甲藻类共生体(Symbiodiniaceae)形成一种必需的营养共生关系,这些共生藻类为珊瑚宿主提供其生存及沉积碳酸钙骨骼所需的大部分营养物质9功能性的共生关系可通过共生伙伴之间高水平的碳共享来表征10,11,共生关系的调控涉及一种动态的稳态平衡12.
在热胁迫条件下,这种动态调控和相互作用会被破坏,导致共生失衡和珊瑚白化(详见参考文献13)。因此,诸如光合作用和呼吸作用等代谢指标具有揭示珊瑚健康状态以及失调、失衡状态的潜力,而准确测量整个发育过程中这些过程对于理解生物体功能至关重要。这一点尤为重要,因为大规模白化事件的发生频率和强度正在增加,可能影响共生体向宿主转移营养物质的过程,已有研究发现随着温度升高,碳的转移量会减少14。这种现象可能是由于共生体主动截留营养物质所致,也可能是生理权衡的结果(例如提高耐热性但降低宿主存活率15,16,17)。共生关系的破坏可能源于共生体和宿主双方,但主要因素很可能是共生体的细胞功能障碍18。然而,海水温度升高所引起的胁迫会破坏这种共生关系,导致共生体向宿主的碳共享减少19,20,进而可能导致珊瑚饥饿。这可能表现为珊瑚体内脂质和碳水化合物储存量的下降,原因是宿主消耗增加("固定碳的分解代谢增强"),很可能与共生体分享减少有关11。除了共生体的光合作用和呼吸作用外,珊瑚动物自身的呼吸作用也是评估珊瑚健康状况、白化影响以及两者之间营养交换和全共生体生长的重要指标,后者是应对环境变化存活相关的重要表型特征8,21,22。最后,鉴于许多珊瑚具有共生特性,利用呼吸测定法同时表征光合作用和呼吸作用,对于分析光合速率与呼吸速率之比(P:R)以及判断共生关系是否稳定尤为有用(例如参考文献23)。
因此,环境变化会引起珊瑚及其共生体能量预算的改变,从而导致生长差异14。为应对这种变化,珊瑚宿主可能通过增加呼吸作用和脂质消耗来满足其代谢需求;热胁迫可使净生产力因呼吸增强而降低60%,这一数值通过溶解氧的变化测得14。Symbiodiniaceae 也可能增强氮的同化和碳的保留14,24,并利用这些储备将能量转向自身的修复和保护机制25,26。氮(N)和碳(C)的平衡对调控生长至关重要,尤其是磷(P)27,这可能表现为对共生体丰度的动态调控。事实上,从大范围珊瑚礁(>1,000 km)采集的证据表明,宿主具有通过调控磷来限制共生体生长的能力,但这种能力因珊瑚物种而异27。
综合来看,这些研究表明,随着环境变化,生物体的耐热性增强,但与此同时,营养物质的生成或转运能力(即共生倾向)有所下降。诸如量化氧气利用等强有力的单幼体研究方法 通过 因此,应采用微型呼吸测定法来理解与代谢相关的基本机制,然后将其应用于保护生物学问题的研究,例如探究耐热性的获得机制。本文介绍了一种用于生理学测量的微型呼吸测定工具,旨在探究珊瑚幼体与其藻类共生体之间的营养关系,但也适用于其他小型海洋生物。
可通过将生物体放入独立的、完全密封的呼吸室或“呼吸计”(下文简称呼吸室)中,利用氧探针3测量其氧气的消耗或产生。氧探针是一种利用光脉冲测量氧气浓度的传感器,通过记录随时间变化的数据,可计算出呼吸速率和/或光合作用速率。在实际操作中,珊瑚呼吸作用的测量方法与光合作用测量类似,唯一的区别是将珊瑚置于完全黑暗条件下孵育。将珊瑚及其共生体的每日总呼吸耗氧量从每日总光合作用产氧量中减去,即可得到氧气差值(氧气增量)2,3。通常情况下,生物体消耗的氧气多于其产生的氧气,因而呈现净耗氧状态。由于氧气与碳的消耗呈固定比例关系,该耗氧量可转换为碳当量2。所产生的碳盈余可用于珊瑚的生长、黏液合成、繁殖以及其他重要的代谢需求12。
本方案描述了一种微型呼吸测量方法(图1),该方法采用定制的1.5 mL玻璃反应室(带GL25螺纹、高20 mm、具凸缘/环状突起、平面磨口边缘,配带孔螺帽;见材料表),内装0.5 µm过滤的海水,用于测量单个珊瑚幼体的呼吸速率(R)。光纤氧探头(见材料表) 通过瓶盖侧面的孔插入每个反应室中。每个珊瑚个体被固定在一块硬质网筛上方,网筛位于磁力搅拌子上方的流动式搅拌板平台上,以确保反应室内水体充分混合。在本示例中,同时测量了两个对照组或"空白"(除无样本外其余条件完全相同的反应室)和三个重复样本反应室,因为我们同时运行了多个控制器。然而,图示装置示例(图2)仅显示使用了四个通道;通过使用多个控制器和多个流动式支架,可进一步增加通道数量。该系统还可通过将每个反应室浸入定制水浴中来控制温度,水浴设定不同的预设水温(本示例数据中对照组为27 °C,高温胁迫组为31 °C),并采用循环流动系统(连续、轻柔流动,流速设为75 L/h)。搅拌板平台及带齿轮的搅拌板可制成任意尺寸,大小可根据所需容纳的玻璃反应室数量灵活调整。在本示例中,平台和搅拌板尺寸约为34 cm × 26 cm × 3 cm(材料表)。每次实验前均使用两种标准溶液对氧探头进行校准,这两种溶液分别代表该实验条件下相应水温和盐度下的0%和100%氧饱和度。
方案
1. 呼吸室中仪器设备与珊瑚的设置
注意:2018年10月满月当天,在磁岛(南纬19°6.249′,东经146°51.728′)的珊瑚礁上采集了具有繁殖能力的珊瑚(即从细枝片段中可见呈粉红色色素的卵/精束的多孔鹿角珊瑚(Acropora tenuis)群体)(许可编号:G12/35236.1),随后将其带回实验室进行珊瑚产卵实验,并培育和养殖幼体珊瑚。
- 在测量当天,使用蓝色聚乙烯管和连接件将两个水浴板连接起来(参见材料表;图1 [5],图2A、B)。连接后,通过蓝色聚乙烯管与水浴加热/冷却循环仪相连,这两个水浴板将作为孵育装置使用。当呼吸室未安装时,应能通过透明的水浴板清晰看到电机板。
- 将两根软管连接至水浴加热/冷却循环仪(参见材料表)。打开水浴加热/冷却循环仪,然后设定所需的实验温度(27 °C 或 31 °C)。
- 使用磁力齿轮将水浴底座(步骤1.1)与电机底板连接(图1 [6, 7] 和 图3A),然后将该组件连接至电源(图3B)。打开电源以启动齿轮,从而驱动呼吸室内的搅拌子。
- 通过阀门连接旋钮(图3C)调节所需水流条件(例如,设定为75 L/h的连续、轻柔水流,并以30 rpm的低速搅拌)。
- 组装呼吸室时,先将磁力珠(图1 [1.5])放入玻璃室(图1 [1.6])中,然后将不透明的塑料流通式支架底座(图1 [1.4])插入玻璃室中(图4A)。呼吸室和磁力珠的尺寸取决于目标生物体和研究系统。
注:塑料底座上有孔,以便磁力珠在底部运动时实现水流和循环。 - 使用水族专用胶(参见材料表)将珊瑚固定在置于塑料底座中的黑色扎带(图4B-D)上。操作时,先将珊瑚幼体粘附在一小块黑色塑料片上,再将该塑料片粘附至塑料底座。待珊瑚牢固固定后(胶水固化几乎瞬间完成),将带有O型圈的盖子(图4A)旋紧到玻璃室上。上述操作需在另一个独立的水盆中水下完成,以确保呼吸室内无气泡残留。
注:通过将呼吸室完全浸入水中,测得其内部水体积(即有效体积 = 1.5 ml)。假设相对于水体积而言,微小珊瑚个体的质量/密度所导致的排水量可忽略不计。图中所示1.5 mL 微离心管用于比例参照(图4A)。 - 将呼吸室牢固地放入水浴中(图5A)。确保玻璃室与控温水体充分接触,以满足实验要求。
- 将O2光纤电缆(参见材料表)插入盖子侧面预先钻好的孔中,使其与氧传感器感应点(以下简称“感应点”;参见材料表)接触。这些微小感应点对氧气敏感,可检测呼吸室内部信号并通过光纤电缆传输。
- 使用生料带(白色薄型自密封胶带)缠绕光纤电缆,使其紧密贴合并牢固固定在水室内部。确保可在呼吸室内清晰观察到单个珊瑚个体(如图5B所示),其褐色触手朝上(图5B、视频1)。
注:表1中提供了装置各组件的成本估算。
- 使用生料带(白色薄型自密封胶带)缠绕光纤电缆,使其紧密贴合并牢固固定在水室内部。确保可在呼吸室内清晰观察到单个珊瑚个体(如图5B所示),其褐色触手朝上(图5B、视频1)。
2. 使用 O2 系统测定呼吸作用的标准操作程序
- 打开氧气测量软件(参见材料表)。
- 测量将要进行校准的房间温度。此数值在后续校准步骤中需要使用(步骤 2.8)。
- 组装光学传感器和帽盖。为此,将所有光纤连接到 O2 模块中对应的端口。确保帽盖 1 与传感器 1 配对,帽盖 2 与传感器 2 配对,依此类推。
- 为设置校准用腔室,首先用少量反渗透(RO)水润湿一块干净的海绵,并将其插入每个腔室中。
注意:海绵不应滴水,仅需保持湿润。若滴水可能污染光纤检测点。在进入下一步前,请确保检测点未被润湿。 - 将腔室倒置并放置在对应的光纤上(图6)。这样可以在不触碰光纤的情况下拧开腔室,并加入亚硫酸钠以完成 0% 校准。
- 在校准开始前检查每个传感器的信号。在软件界面中依次切换各个通道标签页,查看信号值(左上角)(图7A),确保各信号值无显著差异。请参考 O2 设备手册中针对实验设置的可接受信号范围(根据目标生物及实验条件而定)。在本实验设置中,室温为 25.3 °C 时,FTC(氧传感器检测点流通池正常范围)为 20.59,信号值为 179.5 属于可接受范围。
- 打开程序,并在软件中检查设置是否正确,具体如下。若程序启动后未立即弹出设置窗口,可点击软件界面左下角的设置按钮进行配置。
- 确认已启用外部温度传感器(图7B)。将设置更改为固定温度(图7C),然后输入室温值,并点击将设置复制到所有其他通道。
- 将设置更改为减少信号漂移(图7C),然后选择传感器设置并选择等级 2。否则,若使用小体积样品,信号漂移将过高,导致难以完成校准。
- 检查各通道的通用设置。若设置合适,则点击确定。点击将设置复制到所有通道,然后点击确定。
- 校准传感器。对于通道 1 的校准,切换至通道 1标签页,点击校准按钮,选择水中或湿润空气中的两点校准。
- 进行"空气"校准时,将一块泡沫浸入水中后放入腔室内,等待信号稳定(参见空气校准前后的图像)。信号稳定后,点击"设定空气"。点击空气 > 校准 > 设定空气。
- 设置 0% 和 100% 校准(图7D)。将腔室从帽盖上取下,并移至下一个帽盖上,以便在第一个传感器完成 0% 校准后,空气校准信号可立即准备就绪。使用移液枪向帽盖中加入 2% 亚硫酸钠溶液,等待信号稳定。
注意:信号稳定所需时间通常比空气校准更长。若出现“"数值超出典型范围"的警告信息,请确保亚硫酸钠溶液新鲜。对所有通道重复相同的校准过程。配制方法:将 2 g 亚硫酸钠溶于 100 mL 反渗透水中。 - 校准完成后,彻底冲洗呼吸腔室,并将腔室和帽盖干燥。确保光纤孔中无残留水分。
- 将实验生物(本示例中为单个珊瑚幼体)放入呼吸腔室中,并盖上盖子。盖盖时,确保腔室完全浸没在水中,且内部绝对无气泡。
- 将腔室牢固地放置在搅拌板上,并连接光纤。
- 打开电源,确保腔室内的水被充分混合。将恒温循环器的温度设定为实验所需的温度。
- 开启泵和加热器(步骤 1.2 和 1.4)。
- 在 O2 测量软件界面上点击记录以开始数据采集。
结果
数据处理与分析
尽管存在多种方法可用于处理呼吸测定实验的原始数据,但建议使用 R 软件包 respR28。为与上述协议保持一致,推动开放科学和可重复性研究,该软件包专为此目的而设计,可实现以易于复现的形式共享数据处理和分析过程。它是一个免费的开源平台,与平台和探针系统无关,可通过 CRAN 或 GitHub 轻松安装。respR 的完整代码和示例已持续维护,可在 https://github.com/januarharianto/respR 获取。
respR 软件包包含用于导入、可视化和对呼吸测量数据进行质量控制的函数,并可自动或根据手动选定区域计算呼吸速率。该软件包还可对背景呼吸进行校正,并将速率转换为常用输出单位。以下详细说明了处理微呼吸测量系统数据的步骤。本研究中以呼吸测量系统数据为例,但该软件包同样支持大多数 commercially available 氧探针系统以及通用的 R 数据对象作为输入。有关该软件包的更多详细信息,包括完整文档和教程,可在软件包网站 https://januarharianto.github.io/respR/index.html 查阅。
导入原始数据
导入原始输出文件(.txt)。respR 能识别该格式,并将其解析为通用的 R 数据框,以便在后续函数中使用。然而,需要注意的是,此步骤为可选操作;对于具备基础 R 语言知识的用户,也可使用下方提供的基础函数导入这些文件及几乎任何氧气时间序列数据。
#加载 respR
Library(respR)
#导入 ---
数据 <- 导入文件("file.txt")
#检测到 Firesting-Pryo 文件
检查和可视化数据
任何数据分析任务的关键步骤之一是绘制并检查数据,以查找明显的异常或模式,甚至仅仅是为了帮助理解数据。此处使用了 inspect 函数(图 8A),用于检测呼吸代谢数据中常见的问题,例如非数值或缺失值。
检查单个氧列
Insp <-inspect(data, time = 3, oxygen = 8, width = 0.2)
该功能还会绘制氧气时间序列,并计算滚动速率(下图面板),以帮助阐明该速率在实验过程中可能发生的变化。这些滚动速率图有助于判断应从速率曲线的哪些区域提取数据。对于标准或常规代谢率而言,目标区域是速率表现出稳定性的部分(例如,在时间点3,000之后;图8B)。
在此,氧气的下降趋势在完整的时间序列图中大约第200行之后才开始可被检测到。此类模式在呼吸代谢实验数据中非常常见;实验开始时,系统通常需要一段时间才能达到稳定状态,实验样本也需要适应实验条件,因此初始阶段常存在一段较长时间的不稳定期。建议仅从该初始不稳定期之后的时间序列中提取代谢速率,这也凸显了数据可视化的重要性。
提取速率
respR 提供了两个用于提取呼吸速率的函数。第一个是 calc_rate() 函数,该函数允许通过指定时间段、行数或氧气水平范围手动提取速率。这在呼吸代谢分析中非常常见,只要事先确定选择标准并一致应用,就是一种完全可接受的速率确定方法28。
更可靠且客观的方法是使用 auto_rate() 函数,该函数可识别数据中的线性区域。这些区域代表呼吸速率持续稳定的阶段,通过机器学习自动确定。该函数对于检测低信号也十分有效(例如本研究中所用样品,因其在此年龄段生物量较低)。该函数能够采用独立、客观且具有统计学稳健性的方法,识别出最线性的、最小值和最大值的速率28。此处示例识别出一个大约从时间点 3,000 到 5,000 的线性区域。需要注意的是,可能会识别出多个线性区域,但本节所示为排名最高、即线性度最佳的区域(图 8C)。
#确定最线性(即最稳定)的速率
rate <-auto_rate(insp)
背景校正
对照实验的背景速率可以采用与上述示例类似的方法确定,并可用于通过 adjust_rate() 函数校正样本速率(图 9A;注意此处仅展示校正步骤,完整分析未显示)。完整示例详见 respR 网站。
#根据背景调整速率
rate_adj <-adjust_rate(rate, by = bg) #已保存的 bg 对象
print(rate_adj)
速率换算
最后一步是利用原始数据的单位、呼吸室的有效体积以及其他实验数据(包括对空白测量值的归一化)将测得的速率转换为所需的输出单位(图9B)。输出结果可以是绝对呼吸速率,即整个样本的总呼吸速率,也可以是基于质量或表面积标准化的比呼吸速率。本文采用的是基于表面积标准化的比呼吸速率,具体为将绝对呼吸速率除以样本的表面积得到(图9C)。
如上所述,该系统旨在测量体积非常微小的样本,因此我们预期信号值较低,并可能与空白对照组的测量值存在重叠。空白对照组中出现一定程度的信号是可预期的,经检查,这些数值处于一般实验噪声的预期范围内,可能源于探针漂移、微小的温度变化或探针表面的气泡。由于本实验设计针对微小样本,有效使用体积较小,因此空白对照的使用在此尤为重要,尤其每次运行均需设置空白对照。此处提供代表性数值作为示例(图10由于样本量较小,我们建议每次运行时使用空白样本来标准化每轮的测量结果。
这些空白值随后用于标准化处理组的测量值。由于珊瑚在产生氧气的同时还会进行呼吸作用,其代谢率可能从负值到正值不等。此处提供了一个利用微型呼吸检测装置检测到的呼吸值范围的代表性结果示例,这些结果来自对单个珊瑚幼体成功开展的一次实验(图10)。总体而言,在本示例数据集中,由于样本尺寸极小,预期呼吸作用难以被检测到(实验设计如此),这凸显了该方法在捕捉低信号阈值方面的价值。这些代表性结果展示了在最小规格样本中黑暗条件下的呼吸作用,表明了该系统可达到的最低检测限。我们还在两种条件下进行了测量(对照组和高温胁迫组)。在对每次运行所测得的空白值进行标准化后,对照组的值接近于零,而胁迫处理组的中位值约为 ~-5e-5。如预期所示,呼吸速率较低。这些结果清晰地展示了空白组的代表性数值,以及针对这些极小样本的对照组与高温胁迫组之间的比较。
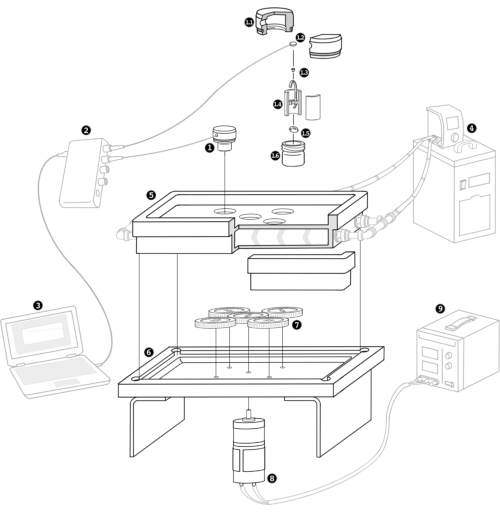
图 1:用于珊瑚全共生体(珊瑚动物 + 共生体)或任何小型生物(<1 mm)生理特征分析的新型微呼吸测定工具的示意图。 定制的呼吸测定室(编号 1;1.1–1.6)包括带有氧传感器斑点的盖子(1.1 和 1.2),将单个幼体(1.3)放置在流通式支架(1.4)上,该支架置于磁力搅拌器(1.5)之上,整个装置置于玻璃腔室(1.6)内。控制器(2)通过一根光纤电缆连接到传感器斑点,并插入盖子(1)中,再与计算机(3)相连。加热/制冷装置(4)连接至呼吸测定板(5),通过板内流通的水(由箭头指示流向)进行温度控制,该板放置在带有齿轮(7)的搅拌板(6)之上,由电机(8)和电源(9)驱动。请点击此处查看该图的放大版本。

图 2:微呼吸测定装置。 可选方案包括(A)单个呼吸测定板,或(B)连接多个板。 请点击此处查看此图的放大版本。
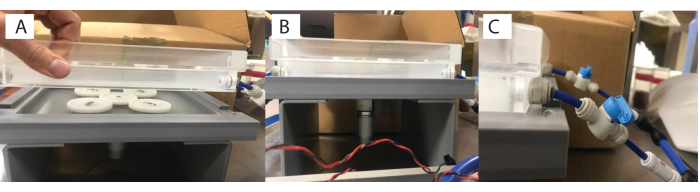
图3:置于呼吸测定板顶部的自制磁力搅拌器板。 每个腔室包含(A)下方的磁力搅拌齿轮,(B)由电机驱动,并通过管路将(C)呼吸测定板连接至加热/制冷装置。 请点击此处查看该图的放大版本。

图 4:定制呼吸室装置示意图。(A)组件(从左到右:盖子、玻璃小瓶、支架、1.5 ml 离心管用于比例参照,以及搅拌子)。(B)标本所放置的流通式支架。(C)流通式支架的俯视图。(D)支架置于玻璃小瓶内并拧紧盖子后的状态。请点击此处查看此图的放大版本。
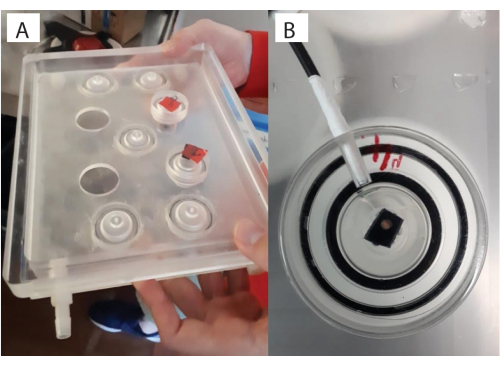
图5:置于搅拌板内的玻璃小瓶。(A)定制的搅拌板;(B)带盖玻璃小瓶的完整装置特写。此处可通过瓶盖看到幼体珊瑚(棕色斑点),位于扎带上方,光纤置于瓶盖开口中。请点击此处查看此图的放大版本。

图 6:倒置放置的腔室,准备进行校准。 请点击此处查看此图的放大版本。

图7:氧气测量软件中的关键步骤。(A)检查每个传感器的信号。本研究及所用传感器的理想信号显示在氧传感器位点 FTC(正常范围)。(B)检查信号漂移。(C)设置并检查处理温度。(D)设置并检查0%和100%校准。 请点击此处查看该图的放大版本。

图 8:respR 分析输出步骤 I。 (A)检查命令与输出结果。(B)验证速率稳定性。(C)确定最线性的速率。请点击此处查看该图的放大版本。

图9:respR 分析输出步骤II。(A)校正背景速率,(B)转换并(C)检查速率。请点击此处查看该图的放大版本。
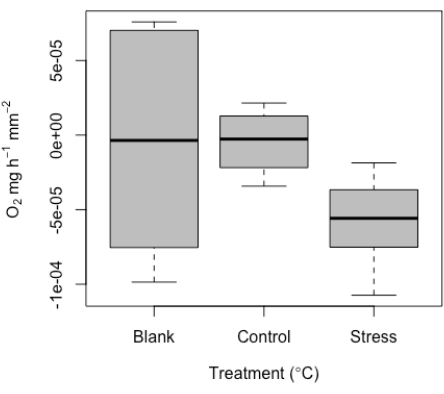
图10:微呼吸测定仪产生的代表性结果。 重复的单个珊瑚幼体的中位呼吸速率(O2 ± 标准误差),包括空白值以及在对照和高温胁迫条件下个体的呼吸速率。请点击此处查看该图的放大版本。
视频 1:测量过程中呼吸室顶部俯视图,显示室内幼体珊瑚。 请点击此处下载该视频。
表1:呼吸测量装置各组件的成本估算。 请点击此处下载该表格。
讨论
本研究概述了一种定制的微型呼吸测量装置的构建方法,可用于定量测定小型固着水生生物消耗和产生的氧气量。该实验方案的关键步骤包括反应室(含检测位点)的组装,以及利用 respR 软件包对低信号进行校准,其中低信号可定义为斜率较浅或噪声较大的速率特征。该定制反应室及其设置能够检测到极微弱的信号,而 R 软件包的使用有助于避免因斜率较浅或噪声干扰而导致的结果误判(例如假阳性结果)。
其他用户可能需要进行的调整包括在定制腔室中固定目标生物。本实验中,使用一根小型硬质扎带和水族胶将单个珊瑚幼体固定在塑料底座上,然后将底座粘接到扎带上。需要注意的是,本实验中的珊瑚幼体被安置在黑色塑料片上。这种塑料材料便于珊瑚幼体的无损移除,因为它们可以顺利地从塑料表面滑脱,从而避免在取下过程中造成物理损伤。珊瑚幼体会牢固附着于其定居的基质上,因此建议使用类似的塑料材料作为附着基质,并利用一种人工肽16促进其在胶合前的顺利分离。为了进一步减少操作带来的应激以及对呼吸响应的影响,建议将固定在扎带上的珊瑚在实验前适应1至2周,这在许多成体珊瑚应激实验中是常见做法。此外,可能还需要其他调整措施,以确保生物体被稳妥固定在顶盖开口的正上方位置,同时允许水流循环。另一个关键的故障排查步骤涉及信号检测,特别是确定氧气时间序列斜率以计算速率。最终,这需要结合合理判断,排除明显不稳定的数据,并利用 respR 软件中的功能,从用户指定的稳定区域或通过自动识别数据中的线性区段来提取呼吸速率。有关此操作的更多示例可在 respR 官方网站获取。
该方法旨在将呼吸作用下限的测量范围扩展至极微小的固着型海洋无脊椎动物。明显的局限性在于,与针对较大生物量设计的实验方案相比,本方案可能更容易出现假阳性结果。然而,鉴于本设计的目的正是为了测定这些下限值,该因素已在方案设计中予以考虑,因此该实验流程仍可被可靠使用。 respR 以更好防止假阳性结果。同样需要指出的是,还存在其他用于测量呼吸作用的系统30,以及对小型生物体的测量,包括对单个桡足类动物进行的呼吸代谢测定31 体积小于该范围(约0.5–1 mL)时使用,但此类设备往往价格昂贵或缺少特定组件(如搅拌功能)。然而,本系统为开源设计,相较于商用系统(如Core Microplate系统)成本较低。此外,本系统整合了其他系统可能不具备的关键方法学特性,例如搅拌功能。内置搅拌子对于模拟多种海洋生物(如桡足类)自然水体混合环境至关重要 通过 游泳),这通常难以实现,且可能导致数据基本无法使用。相比之下,其他可用的混合方法包括将整个呼吸仪置于大型摇床平台上,但这种方法需要额外设备,且混合效果有限,或采用混合 通过 振动可能对生物体造成干扰。因此,这是唯一能够对幼体珊瑚或其他非常微小的固着生物进行呼吸测定的系统。作为参考,本研究所涉及样本的大小范围为2.1至3.6个珊瑚虫(相当于仅几个月大),其平均面积最小至最大为1.3至4.5 mm2.
呼吸测定法是生态学研究中的基本测量手段,目前存在多种实现该目的的方法。然而,大多数现有方法针对的是高生物量样本,包括整条鱼类、珊瑚碎片或海草32,33,34。本方法首次应用于单个珊瑚幼体。此外,该方法具有广泛的应用潜力,因为它能够提供有关生物体功能的关键生理信息。这对于旨在表征基础健康状况的研究具有重要意义35,有助于理解急性或长期胁迫(如热胁迫)在珊瑚个体发育过程中的作用36,也可为管理者设定保护和改善珊瑚礁健康的阈值提供依据37。鉴于珊瑚是一个全共生体(holobiont),且其共生微生物群落在这一阶段及生命第一年内具有相对较高的可塑性38,将呼吸测定数据与随时间变化的微生物群落动态相结合,将有助于全面理解生物体整体的功能状态。重要的是,该方法促进了“开放科学”技术的发展,有助于建立可共享、可改进并公开标准化的自定义实验装置框架。
披露
作者无任何利益冲突需要披露。
致谢
作者感谢 Sam Noonan 提供的帮助和建议,Sven Uthicke 提供初始呼吸室设备,Ben Shelab 提供的工程图示,以及澳大利亚海洋科学研究所车间为呼吸室适配器和支架提供的定制加工服务。珊瑚样本的采集依据澳大利亚大堡礁海洋公园管理局颁发给澳大利亚海洋科学研究所(AIMS)的许可 G12/35236.1 进行。采集珊瑚无需伦理许可。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 成本 | |||
| (1.1 – 1.6) 定制呼吸室 | LabGlass Party Ldt. | 1.5 ml | $407.26 |
| 1.1 盖子 | AIMS 车间 | GL25 螺纹小瓶 | 约 $10 |
| 1.2 光纤探头(FireStingO2 II 光纤光学传感器) | PyroScience | 氧传感器斑点,125 µm PET 薄膜,Ø5 mm,带光学隔离,序列号:183801947 | 每个 41.25 澳元 |
| 1.3 个体生物 | 不适用 | 不适用 | 不适用 |
| 1.4 流通式支架 | AIMS 车间 | 定制 | 包含在第 5 和第 6 项价格中(该车间对盖子、带齿轮的支架、电机、恒温流通装置提供了整体估价) |
| 1.5 磁力搅拌器 | 任何制造商均可 | 不适用 | 约 $2? |
| 1.6 玻璃腔室(GL25 螺纹小瓶,高 20 mm,带凸缘/脊,平面研磨边缘,带孔螺帽,Labglass Pty Ltd,Stafford QLD) | Labglass Pty Ltd, Stafford QLD | GL25 螺纹小瓶,高 20 mm,带凸缘/脊,平面研磨边缘,带孔螺帽 | 50.9 澳元 |
| 2 FireSting 控制器(2) | PyroSciences | 不适用 | 4 个传感器为 4000 欧元。此处使用了 8 个传感器。 |
| 3 计算机 | 不适用 | 不适用 | 不适用 |
| 4 加热/制冷装置 | VWR International | 不适用 | 小型型号约 4000 澳元 |
| 5 呼吸测定板平台 | AIMS 车间 | 34 cm × 26 cm × 3 cm(尽管任何尺寸只要能容纳所需数量的腔室即可) | 1250 澳元 |
| 6 带齿轮的搅拌板(7) | AIMS 车间 | 34 cm × 26 cm × 3 cm | 1250 澳元 |
| 8 由电机驱动 | AIMS 车间 | 定制 | 700 澳元 |
| 9 电源 | 非特定 | 不适用 | 约 300 澳元 |
| 水族胶水 | Seachem 珊瑚胶 | 20 g | 14 美元 |
| 氧气记录软件 | PyroScience | 不适用 | 不适用 |
| 聚乙烯管及接头 | John Guest | 不适用 | 20 美元 |
| 亚硫酸钠 | Sigma | S0505-250G(CAS 编号 7757-83-7) | 54 美元 |
参考文献
- Quigley, K. M. A fast, precise, in-vivo method for micron-level 3D models of corals using dental scanners. Methods in Ecology and Evolution. 13 (10), 2159-2166 (2022).
- Svendsen, M. B. S., Bushnell, P. G., Steffensen, J. F. Design and setup of intermittent-flow respirometry system for aquatic organisms. Journal of Fish Biology. 88 (1), 26-50 (2016).
- Lighton, J. R. B. Measuring Metabolic Rates: a Manual for Scientists. , Oxford University Press. (2018).
- Carey, N., Harianto, J., Byrne, M. Sea urchins in a high-CO2 world: partitioned effects of body size, ocean warming and acidification on metabolic rate. The Journal of Experimental Biology. 219 (Pt 8), 1178-1186 (2016).
- Clark, T. D., Sandblom, E., Jutfelt, F. Aerobic scope measurements of fishes in an era of climate change: respirometry, relevance and recommendations. The Journal of Experimental Biology. 216 (Pt 15), 2771-2782 (2013).
- Voolstra, C. R., et al. Extending the natural adaptive capacity of coral holobionts. Nature Reviews Earth & Environment. 2 (11), 747-762 (2021).
- Hoegh-Guldberg, O. Climate change, coral bleaching and the future of the world's coral reefs. Marine and Freshwater Research. 50 (8), 839-866 (1999).
- Morris, L. A., Voolstra, C. R., Quigley, K. M., Bourne, D. G., Bay, L. K. Nutrient availability and metabolism affect the stability of coral-symbiodiniaceae symbioses. Trends in Microbiology. 27 (8), 678-689 (2019).
- Yellowlees, D., Rees, T. A. V., Leggat, W. Metabolic interactions between algal symbionts and invertebrate hosts. Plant, Cell & Environment. 31 (5), 679-694 (2008).
- Rädecker, N., et al. Using Aiptasia as a model to study metabolic interactions in cnidarian-Symbiodinium symbioses. Frontiers in Physiology. 9, 214(2018).
- Matthews, J. L., et al. Optimal nutrient exchange and immune responses operate in partner specificity in the cnidarian-dinoflagellate symbiosis. Proceedings of the National Academy of Sciences. 114 (50), 13194-13199 (2017).
- Davy, S. K., Allemand, D., Weis, V. M. Cell biology of cnidarian-dinoflagellate symbiosis. Microbiology and Molecular Biology Reviews. 76 (2), 229-261 (2012).
- Weis, V. M. Cellular mechanisms of Cnidarian bleaching: stress causes the collapse of symbiosis. The Journal of Experimental Biology. 211 (Pt 19), 3059-3066 (2008).
- Baker, D. M., Freeman, C. J., Wong, J. C. Y., Fogel, M. L., Knowlton, N. Climate change promotes parasitism in a coral symbiosis. The ISME Journal. 12 (3), 921-930 (2018).
- Chakravarti, L. J., van Oppen, M. J. H. Experimental evolution in coral photosymbionts as a tool to increase thermal tolerance. Frontiers in Marine Science. 5, 227(2018).
- Quigley, K. M., Alvarez Roa, C., Beltran, V. H., Leggat, B., Willis, B. L. Experimental evolution of the coral algal endosymbiont, Cladocopium goreaui: lessons learnt across a decade of stress experiments to enhance coral heat tolerance. Restoration Ecology. 29 (3), e13342(2021).
- Buerger, P., et al. Heat-evolved microalgal symbionts increase coral bleaching tolerance. Science Advances. 6 (20), eaba2498(2020).
- Bieri, T., Onishi, M., Xiang, T., Grossman, A. R., Pringle, J. R. Relative contributions of various cellular mechanisms to loss of algae during cnidarian bleaching. PLoS One. 11 (4), e0152693(2016).
- Tremblay, P., Gori, A., Maguer, J. F., Hoogenboom, M., Ferrier-Pagès, C. Heterotrophy promotes the re-establishment of photosynthate translocation in a symbiotic coral after heat stress. Scientific Reports. 6, 38112(2016).
- Tremblay, P., Grover, R., Maguer, J. F., Hoogenboom, M., Ferrier-Pagès, C. Carbon translocation from symbiont to host depends on irradiance and food availability in the tropical coral Stylophora pistillata. Coral Reefs. 33 (1), 1-13 (2014).
- Wooldridge, S. A. Is the coral-algae symbiosis really 'mutually beneficial' for the partners. Bioessays. 32 (7), 615-625 (2010).
- Wooldridge, S. A. Breakdown of the coral-algae symbiosis: towards formalising a linkage between warm-water bleaching thresholds and the growth rate of the intracellular zooxanthellae. Biogeosciences. 10 (3), 1647-1658 (2013).
- Coles, S. L., Jokiel, P. L. Effects of temperature on photosynthesis and respiration in hermatypic corals. Marine Biology. 43, 209-216 (1977).
- Marubini, F., Davies, P. S. Nitrate increases zooxanthellae population density and reduces skeletogenesis in corals. Marine Biology. 127, 319-328 (1996).
- Iglesias-Prieto, R., Matta, J. L., Robins, W. A., Trench, R. K. Photosynthetic response to elevated temperature in the symbiotic dinoflagellate Symbiodinium microadriaticum in culture. Proceedings of the National Academy of Sciences. 89 (21), 10302-10305 (1992).
- Karako-Lampert, S., Katcoff, D. J., Achituv, Y., Dubinsky, Z., Stambler, N. Responses of Symbiodinium microadriaticum clade B to different environmental conditions. Journal of Experimental Marine Biology and Ecology. 318 (1), 11-20 (2005).
- Blanckaert, A. C. A., Reef, R., Pandolfi, J. M., Lovelock, C. E. Variation in the elemental stoichiometry of the coral-zooxanthellae symbiosis. Coral Reefs. 39, 1071-1079 (2020).
- Harianto, J., Carey, N., Byrne, M. respR-An R package for the manipulation and analysis of respirometry data. Methods in Ecology and Evolution. 10 (6), 912-920 (2019).
- Gamble, S., Carton, A. G., Pirozzi, I. Open-top static respirometry is a reliable method to determine the routine metabolic rate of barramundi. Lates calcarifer. Marine and Freshwater Behaviour and Physiology. 47 (1), 19-28 (2014).
- Burford, B. P., et al. Rapid range expansion of a marine ectotherm reveals the demographic and ecological consequences of short-term variability in seawater temperature and dissolved oxygen. The American Naturalist. 199 (4), 523-550 (2022).
- Morozov, S., McCairns, R. J. S., Merilä, J. FishResp: R package and GUI application for analysis of aquatic respirometry data. Conservation Physiology. 7 (1), coz003(2019).
- Leclercq, N., Gattuso, J. -P., Jaubert, J. Primary production, respiration, and calcification of a coral reef mesocosm under increased CO2 partial pressure. Limnology and Oceanography. 47 (2), 558-564 (2002).
- Anthony, K. R. N., Hoegh-Guldberg, O. Variation in coral photosynthesis, respiration and growth characteristics in contrasting light microhabitats: an analogue to plants in forest gaps and understoreys. Functional Ecology. 17, 246-259 (2003).
- Moulin, L., et al. Long-term mesocosms study of the effects of ocean acidification on growth and physiology of the sea urchin Echinometra mathaei. Marine Environmental Research. 103, 103-114 (2015).
- Quigley, K. M., Bay, L. K., van Oppen, M. J. H. Genome-wide SNP analysis reveals an increase in adaptive genetic variation through selective breeding of coral. Molecular Ecology. 29 (12), 2176-2188 (2020).
- Brunner, C. A., Ricardo, G. F., Uthicke, S., Negri, A. P., Hoogenboom, M. O. Effects of climate change and light limitation on coral recruits. Marine Ecology Progress Series. 690, 65-82 (2022).
- Quigley, K. M., Alvarez Roa, C., Torda, G., Bourne, D., Willis, B. L. Co-dynamics of Symbiodiniaceae and bacterial populations during the first year of symbiosis with Acropora tenuis juveniles. MicrobiologyOpen. 9 (2), e959(2020).
- Quigley, K. M., Bay, L. K., Torda, G., Willis, B. L. Leveraging new knowledge of Symbiodinium community regulation in corals for conservation and reef restoration. Marine Ecology Progress Series, 600. , 245-253 (2018).
重印与许可
