本文介绍了针对模式生物Exaiptasia diaphana的组蛋白修饰标记 H3K4me3的染色质免疫沉淀(X-ChIP)实验方法。通过定量PCR和高通量测序验证了该方法的特异性和有效性。本实验方案有助于更深入地研究海葵E. diaphana中的蛋白质-DNA相互作用。
方法文章
刺胞动物模型系统 Exaiptasia diaphana 中的染色质免疫沉淀
* These authors contributed equally
本文内容
摘要
摘要
组蛋白翻译后修饰(PTMs)及其他表观遗传修饰可调控基因染色质对转录机器的可及性,从而影响生物体响应环境刺激的能力。染色质免疫沉淀联合高通量测序技术(ChIP-seq)已被广泛用于表观遗传学和基因调控领域中蛋白-DNA相互作用的鉴定与定位。然而,刺胞动物表观遗传学研究受限于适用实验方案的缺乏,部分原因在于模式生物具有独特特性,例如共生海葵Exaiptasia diaphana含有高比例水分和大量黏液,会阻碍分子生物学方法的实施。本文介绍了一种专门优化的ChIP实验流程,可促进对E. diaphana基因调控中蛋白-DNA相互作用的研究。本研究针对高效免疫沉淀的需求,优化了交联和染色质提取步骤,并利用针对组蛋白标记 H3K4me3的抗体进行ChIP实验以验证其有效性。随后,通过定量PCR检测H3K4me3在多个持续活化基因位点周围的相对占据情况,并结合下一代测序进行全基因组水平分析,进一步确认了该ChIP实验的特异性和有效性。这一为共生海葵E. diaphana优化的ChIP方案,有助于深入研究蛋白-DNA相互作用在生物体响应环境变化中的作用,尤其适用于珊瑚等共生刺胞动物的相关机制探索。
引言
政府间气候变化专门委员会(IPCC)2022年的报告指出,尽管公众认知和减缓措施正在增强,但日益频繁且强烈的海洋热浪仍使珊瑚礁在未来几十年内面临大规模白化和集体死亡的高风险1。为了指导珊瑚礁保护与修复工作,目前正从多个生物学层面研究环境变化对底栖刺胞动物的当前及预期影响,以阐明其响应机制与恢复力的内在机理2。
获得适用于底栖刺胞动物的研究工具对于应对这一挑战至关重要,而开发这些工具需要积极努力,将其他领域已建立的知识和技术转移到海洋生物研究中3。使用模式生物可在一定程度上克服许多珊瑚物种研究中的困难,例如海葵Exaiptasia diaphana(通常称为Aiptasia)4。这种生长迅速、兼性共生的海葵在实验室条件下相对容易培养,能够进行有性和无性繁殖,且不具有碳酸钙骨骼5。E. diaphana的开放获取参考基因组5为需要测序的表观遗传学方法提供了便利。然而,该生物个体含水量高、分泌黏液以及单个个体组织量少等特性,给可重复实验方案的建立带来了挑战,从而限制了对E. diaphana及其他具有类似特征的刺胞动物的表观遗传学研究。
表观遗传修饰可通过调控与染色质相关的过程,在不改变生物体基因组核苷酸序列的情况下改变其表型6。目前对刺胞动物表观遗传调控的研究主要集中在进化历史与发育过程7,8,9,10、共生关系的建立与维持11,12,13,以及对环境变化的响应14,15等方面。具体而言,DNA甲基化模式的变化——在大多数情况下涉及向胞嘧啶碱基添加甲基基团——已被观察到会响应诸如升温13和海洋酸化16等环境条件的变化而发生。研究还表明,DNA甲基化模式可在代际间遗传,凸显了表观遗传在珊瑚适应环境胁迫中的重要作用17。与DNA甲基化相比,关于其他重要表观遗传调控因子的研究相对较少,例如非编码RNA11,18,19、转录因子9,10,以及刺胞动物中的组蛋白翻译后修饰(PTMs)20。对DNA相关蛋白的研究尤其具有挑战性,因为现有方法需要研究对象的参考基因组,并且由于需要大量样本和高特异性抗体,成本较高3。组蛋白特定残基上可形成多种化学基团从而产生PTMs,因此,在刺胞动物中解析染色质修饰图谱,尤其是在面临迫近环境胁迫的背景下,仍是一项重大挑战。
本研究旨在通过提供一种针对珊瑚模型 E. diaphana 的优化染色质免疫沉淀(ChIP)方案(原始方案由 Bodega 等人21),推动对刺胞动物中组蛋白翻译后修饰(PTMs)、组蛋白变体及其他染色质相关蛋白的深入研究。ChIP 可与定量 PCR 结合使用,以表征特定位点的蛋白质-DNA 相互作用,也可与下一代测序(NGS)结合,以在整个基因组范围内绘制这些相互作用图谱。通常情况下,蛋白质与 DNA 通过可逆交联固定,从而使目标蛋白(POI)保持与其在体内(in vivo)结合的相同位点相连。尽管在哺乳动物模型系统中常用的交联方法通常在室温下维持 15 分钟或更短时间,但本方案对交联条件进行了优化,以使甲醛更有效地穿透 E. diaphana 产生的黏液。随后,组织在液氮中迅速冷冻,进行匀浆和裂解,以从细胞中提取细胞核。这些步骤通过仅使用一种裂解缓冲液并直接进入超声处理,避免了样品损失,超声将染色质打断为约 300 bp 的片段。这些片段与针对目标蛋白(POI)的特异性抗体(精确至 PTM 水平)进行孵育。利用可结合一抗的磁珠沉淀抗体-蛋白-DNA 免疫复合物,从而仅富集与目标蛋白相关的 DNA 片段。在解除交联并对沉淀物进行纯化后,所获得的 DNA 片段可用于 qPCR 分析,或构建 DNA 文库进行测序,进而将这些片段比对至参考基因组,确定目标蛋白所结合的基因组位点。有关各步骤的更多注意事项,详见 Jordán-Pla 和 Visa22。
方案
实验流程概览见图1。ChIP-Seq 数据已存入 NCBI 序列读取档案库(SRA),生物项目编号为 PRJNA931730(https://www.ncbi.nlm.nih.gov/bioproject/PRJNA931730)。
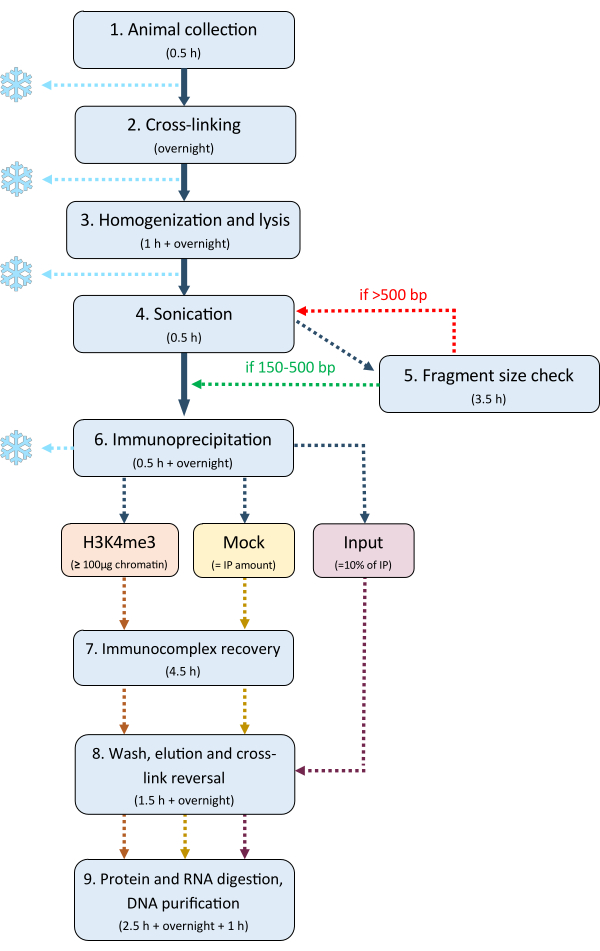
图1:ChIP实验流程图。ChIP实验流程的概览,包括各步骤的预计耗时以及可选的暂停节点。请点击此处查看该图的放大版本。
1. 动物采集
- 使用塑料刮铲,从水族箱壁上轻轻剥离约20只具有共生关系、足部直径约为5 mm或更大的E. diaphana(CC7品系),并用移液器将其转移至15 mL离心管中。
注意:建议根据海葵的大小以及计划进行的免疫沉淀反应数量,优化所用海葵的数量。海葵可在液氮(LN2)中快速冷冻,并于−80 °C保存至少1个月后再进行染色质免疫沉淀实验(ChIP)。否则,建议立即进行后续操作,以避免海葵附着在15 mL离心管管壁上。
2. 交联
- 配制 10 mL 的 0.5% 交联缓冲液(表 1)。
- 让海葵沉降到离心管底部,或在室温下以约 3,500 × g 的速度短暂离心,然后用真空泵吸除多余的海水。加入 1× DPBS 重悬洗涤,随后去除 DPBS。
- 用镊子或塑料刮刀将海葵转移至 0.5% 交联缓冲液中,避免带入过量缓冲液。在 4 °C、12 rpm 条件下于旋转仪上孵育 1 小时。
- 同时,配制 10 mL 的 1% 交联缓冲液(表 1)。
- 同步骤 2.2,去除 0.5% 缓冲液后,用 1% 交联缓冲液重新填充离心管。在 4 °C、12 rpm 条件下于旋转仪上孵育过夜。
注意:轻轻倒置离心管,确保所有海葵均处于悬浮状态且未相互粘连。 - 次日,使用 2 M 甘氨酸储备液配制 10 mL 淬灭缓冲液(表 1)。
- 同步骤 2.2 去除 1% 交联缓冲液,将海葵重悬于淬灭缓冲液中以终止交联反应。在 4 °C、12 rpm 条件下于旋转仪上孵育 20 分钟。
- 同步骤 2.2 去除淬灭缓冲液,并用 DPBS 洗涤海葵两次。若同时处理多个样品,可在逐个完成步骤 3.2–3.4 期间将海葵保持悬浮于 DPBS 中。
注意:此时可将样品速冻并在 −80 °C 保存最多 1 个月以暂停实验。冷冻和储存前,将离心管倒置在纸巾上以去除残留的 DPBS。
表1:ChIP 实验步骤中使用的溶液与缓冲液。 列出了本实验步骤中所用每种缓冲液的成分及其相应浓度。 请点击此处下载该表格。
3. 匀浆与裂解
- 在当天新鲜配制裂解缓冲液(表1)(每份样品2 mL),并加入100倍浓度的蛋白酶抑制剂混合物(PIC,见材料表),使其终浓度为1倍。用乙醇清洗瓷研钵和研杵,并开始用液氮(LN2)冷却所有工具。
- 倾去DPBS,将海葵样品倒在纸巾上以尽可能去除液体。向研钵中倒入一些液氮,并用镊子将海葵转移至研钵中。
- 使用研杵先小心地破碎组织,然后研磨至样品成为细粉。根据需要不断补充液氮,防止样品解冻。
- 在冰上将2 mL裂解缓冲液加入5 mL离心管中。用刮勺收集样品并转移至裂解缓冲液中,确保样品完全溶解于缓冲液中。将样品在冰上静置1分钟,然后轻轻颠倒混匀。对所有其他样品重复步骤3.2–3.4,每处理完一个样品后均需用乙醇彻底清洗所有器械。
注意:此步骤应尽可能减少样品损失。 - 用裂解缓冲液冲洗Dounce组织研磨器(见材料表),将样品转移至其中,并使用紧密适配的研杵研磨20–30次。
- 将样品重新转移回原离心管中,用乙醇和蒸馏水清洗组织研磨器,并对所有样品重复步骤3.5。
- 将样品置于旋转仪上,在约14 rpm、4 °C条件下孵育过夜。
- 使用台盼蓝染色法在显微镜下(20倍放大)检测裂解是否成功:将10 µL样品与台盼蓝按1:1比例混合。若染料进入细胞核,则表明裂解成功。
注意:实验可在此处暂停,将样品在−80 °C保存最多2个月。
4. 超声处理
- 将样品在离心机中短暂离心,约 2,000 x g,室温下 3-5 秒,以去除管盖和管壁上的液体。
- 使用 25 G 针头和 1 mL 注射器将裂解液反复推注 10 次,以破坏任何聚集物。
- 将样品置于冰浴中,确保在超声处理过程中尽可能保持低温。
- 用乙醇清洁超声针头。将样品放入超声仪(见材料表)中,针头置于管底上方 1 cm 处,且不接触管壁。
- 将占空比设为 50%,输出功率设为 0。启动超声仪,并确保样品中未产生泡沫(如有泡沫,应立即停止并重新调整针头位置)。缓慢将输出功率增加至 2,然后超声处理 2 分钟。
- 关闭超声仪,将输出功率调回 0,并让样品静置冷却 2 分钟。
- 重复步骤 4.5–4.6,每份样品共进行四轮超声处理和冷却。取出样品后置于冰上保存,然后对其他样品重复操作。每处理完一份样品及实验结束后,均需用乙醇清洁超声针头。
注意:超声强度和循环次数可能需要优化,以在获得 150–500 bp 大小片段的同时,使用尽可能低的超声强度。
5. DNA 提取与片段大小检测
注意:在进行免疫沉淀(IP)之前,需要检测片段的大小。如果片段过大(>500 bp),则必须增加超声破碎的循环次数和/或超声强度;如果片段过小(<150 bp),则必须减少超声时间和/或强度。
- 在对样品的一部分进行片段大小检测时,将样品保持在冰上。取100 µL样品转移至新的1.5 mL离心管中。
- 加入8 µL RNase混合液(参见材料表),在42 °C孵育30分钟,同时以700 rpm振荡。
- 加入2 µL蛋白酶K(参见材料表),在55 °C孵育1小时,同时以700 rpm振荡。
- 通过在95 °C孵育至少1小时(同时以700 rpm振荡)使样品逆转交联。
- 制备含1x TAE缓冲液和0.01%溴化乙锭(参见材料表)或替代凝胶染料的1%琼脂糖凝胶。
- 使用纯化试剂盒按照生产商说明书从样品中提取DNA(参见材料表)。
- 为检测提取DNA的片段大小,在琼脂糖凝胶上加样并使用DNA分子量标记。将4 µL 1 kbp DNA标记与1 µL 6x紫色上样染料混合,加入凝胶的一个加样孔中;将20 µL DNA与4 µL 6x紫色上样染料混合,使终浓度为1x,用移液器加入另一加样孔中。对所有样品重复此步骤。
- 以100 V电泳约30分钟,然后将凝胶放入成像托盘,置于凝胶成像系统中,按照相应系统软件的操作说明进行成像(参见材料表)。根据片段大小判断是否继续后续实验,片段大小平均应在150–500 bp之间(图2)。
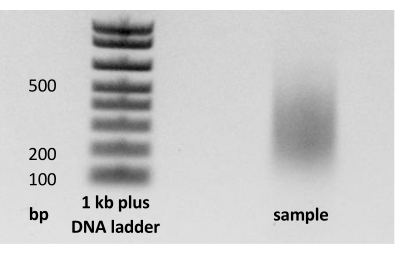
图2:片段大小检测。 超声处理后,取部分样品进行解交联、纯化,并在琼脂糖凝胶上电泳,以确认染色质已剪切为150–500 bp大小的片段。请点击此处查看该图的放大版本。
6. 免疫沉淀(IP)
- 使用移液器检查在DNA提取过程中置于冰上保存的主样品的体积,加入10% Triton X-100,使其终浓度为1%。
- 在4 °C条件下以20,000 × g 离心10分钟,然后使用移液器将上清液转移至洁净离心管中。
注意:可在本步骤暂停实验,将样品于−80 °C冷冻保存最多2个月。后续免疫沉淀(IP)步骤的具体操作需根据每个实验进行调整和优化,每轮IP所需的抗体用量也可能需要优化。 - 以裂解缓冲液作为空白对照,按照现有DNA浓度检测系统说明书测定染色质浓度(参见材料表)。
- 根据样品体积及计划进行的IP反应数量,通过添加10% Triton X-100和100×蛋白酶抑制剂混合液(PIC)(参见材料表),将样品总体积调整至终浓度分别为1%和1×。建议每1,000 µL总体积中使用100 µg染色质。
- 将用于每个IP反应的样品体积分别分装至独立的低吸附1.5 mL离心管中(参见材料表)。对于ChIP-qPCR实验,另取等体积样品放入一个1.5 mL离心管中作为模拟对照(mock control)。取IP反应体积的10%作为输入对照(input control),并储存于−20 °C。
- 向每个相应的IP反应中加入4 µg抗体(此处为H3K4me3抗体,参见材料表),模拟对照组不加抗体。将IP反应管和模拟对照管置于4 °C、12 rpm的旋转仪上孵育过夜。
7. 使用磁珠回收免疫复合物
注意:切勿让磁珠干燥;应始终用液体覆盖,或尽快补充溶液。每次操作应依次进行一个样品。
- 轻轻倒置磁珠(参见材料表)以混匀。
- 当天新鲜配制 10 mL 封闭液(表 1),并轻柔混匀。
- 剪去移液器吸头的尖端以增大直径,将 50 µL 磁珠分别转移至不同的离心管中(每项免疫沉淀实验各一管,另设一管对照)。
- 向每管中加入 1 mL 封闭液,并在 4 °C、12 rpm 条件下于旋转仪上孵育 30 分钟。
- 将含有磁珠的封闭液置于磁力架上,静置使其分离。同时,将免疫沉淀反应液在室温下以 2,000 ×g 离心 3–5 秒,以去除管壁上的残留液滴。
- 使用移液器吸除并弃去封闭液上清,然后用其中一个样品或对照样品将磁珠从管壁上冲洗下来。将混合液重新转移至相应的低吸附离心管中,随后进行下一个样品操作。
- 将所有离心管置于旋转仪上,在 4 °C、12 rpm 条件下孵育 3 小时。
8. 洗涤、洗脱及交联逆转
- 在免疫复合物回收孵育期间,配制洗涤缓冲液和TE盐缓冲液(表1)。
- 孵育结束后,将免疫沉淀样品(IP)和阴性对照样品(mock)置于磁力架上,静置约10–20秒,使磁珠被吸附分离。
- 弃去上清液,每管加入1 mL低盐洗涤缓冲液。对所有反应管重复此操作,然后将离心管从磁力架上取下,充分混匀,使磁珠重新悬浮。
- 在4 °C、12 rpm条件下于旋转仪上孵育5分钟。
- 将离心管放回磁力架,吸除低盐洗涤缓冲液,随后每管加入1 mL高盐洗涤缓冲液,并按照步骤8.4的条件进行孵育。
- 重复步骤8.3–8.5一次,总共进行四次洗涤,交替使用低盐和高盐洗涤缓冲液。
注意:高盐洗涤缓冲液作用较强,每次洗涤中仅可使用5分钟。 - 用移液器吸除并弃去上清液,加入1 mL TE盐缓冲液进行洗涤;重复洗涤一次。第二次洗涤后,冲洗管盖内壁,确保无磁珠残留。
- 在洗涤过程中配制洗脱缓冲液(表1)。弃去第二次TE盐缓冲液洗涤液后,向每个反应管中加入210 µL洗脱缓冲液。
- 充分悬浮磁珠,于65 °C、700 rpm条件下振荡洗脱15分钟。
- 将反应管置于磁力架上,收集洗脱液,并转移至新的1.5 mL离心管中。
- 再次加入210 µL洗脱缓冲液重复洗脱一次,将所得洗脱液合并至第一次收集的洗脱液中,最终每个IP和mock样品的洗脱总体积为420 µL。
- 从冰箱中取出input样品,加入洗脱缓冲液,补足总体积至420 µL。
- 将所有洗脱液及input样品在65 °C、700 rpm条件下孵育过夜,以逆转交联。
9. 蛋白质和RNA消化及DNA纯化
- 通过向洗脱液和输入样品中加入 420 µL TE 盐缓冲液,将 SDS(参见材料表)浓度稀释至 0.5%。
- 进行 RNA 消化时,加入 10 µL RNase 混合酶(参见材料表),在 42 °C、700 rpm 条件下孵育 30 分钟。
- 进行蛋白质消化时,向所有样品中加入 8 µL 蛋白酶 K(参见材料表),在 55 °C、700 rpm 条件下孵育 1 小时。
- 进行 DNA 纯化时,参照“Ren 实验室用于 MicroChIP 的 ENCODE 组织固定与超声处理方案”23,并进行部分调整:
- 通过在室温下以 20,000 x g 离心 1 分钟,使 Phase Lock 凝胶(参见材料表)沉降至离心管底部,完成预处理。
- 在通风橱内,向每根离心管中加入一份样品及等体积的苯酚:氯仿:异戊醇(25:24:1),剧烈振荡并短暂涡旋,直至形成乳白色泡沫层。
注意:该混合物具有毒性、腐蚀性,并对健康有害。 - 在 4 °C、20,000 x g 条件下离心 10 分钟,检查水相是否澄清。
- 使用移液器将水相转移至新的离心管中。根据样品体积,每份样品可能需要两个新离心管。若如此,需将第一管中的一半样品转移至第二管。
- 向每份样品中加入 1/10 体积的 3 M 醋酸钠(NaAc,例如 400 µL 样品加入 40 µL)和 10 µL 5 mg/mL 线性丙烯酰胺,轻轻颠倒混匀。
- 加入 2 倍样品体积的 100% 乙醇(例如 400 µL 样品加入 800 µL),剧烈振荡。切勿涡旋,以免损伤 DNA。
- 在 −20 °C 过夜孵育,或在 −80 °C 孵育 30 分钟。
- 将离心机预冷至 4 °C,随后以 15,000 x g 离心 30 分钟,使 DNA 沉淀。
- 小心弃去上清,再用 1 mL 70% 乙醇洗涤沉淀。在 4 °C 下以最大转速离心 5 分钟。
- 小心弃去乙醇,再次短暂离心,用移液器彻底去除残留乙醇。若仍有少量残留,可再次离心帮助去除。
- 将沉淀重悬于 30 µL 无核酸酶水(参见材料表)中。
注意:若每份样品有多个离心管,先将一个沉淀重悬于 30 µL 水中,转移至下一管,再用同一份 30 µL 水重悬下一个沉淀。
- 测定 DNA 浓度,随后将样品于 −20 °C 保存。
结果
按照上述方案,对与组蛋白3赖氨酸4三甲基化(H3K4me3)相关的DNA进行了免疫沉淀。该ChIP-seq级别抗体此前已在海葵Nematostella vectensis7中使用,并通过E. diaphana组织切片的免疫荧光染色在此验证(图3)。虽然DNA得率取决于投入材料的量,但通常约为100 ng/µL。所获得的DNA片段通过测序和qPCR进行分析(引物列表见补充文件1)。
4000万条测序读长的测序深度获得了约1760万条唯一比对的读长。经过质量检查后,原始读长被修剪,并使用Bowtie24比对到E. diaphana基因组(见材料表)。利用MACS对ChIP-Seq数据进行基于模型的分析(见材料表),共鉴定出19,107个峰25。与H3K4me3的预期一致,大多数峰位于转录起始位点(TSS)附近,峰计数频率在TSS两侧均急剧下降,尤其向基因体方向下降更为明显(图4)。
从测序数据中鉴定出三个在其转录起始位点(TSS)附近具有高信号峰的基因,并针对这些基因内多个高信号峰位点设计了qPCR引物。qPCR数据采用输入百分比法进行归一化处理(图5)。与输入样本和阴性对照相比,H3K4me3在这些区域显示出显著富集。输入百分比在2.7%至10.7%之间,不同基因之间以及同一基因内不同位点之间的富集程度存在差异。
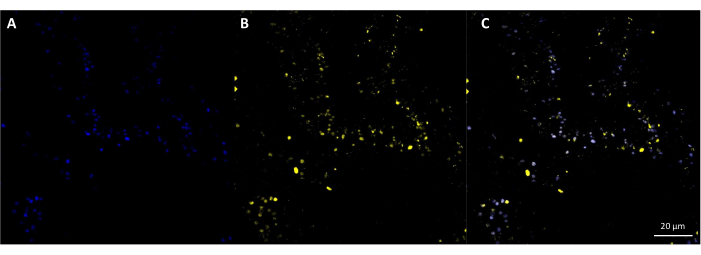
图3H3K4me3 的免疫荧光染色 一个 E. diaphana 组织切片用(A) 蓝色Hoechst核酸染料和(B) 针对H3K4me3一抗的黄色荧光标记二抗。C) 重叠部分 A 和 B 显示在细胞核中共定位。比例尺 = 20 µm. 请点击此处以查看此图的放大版本。
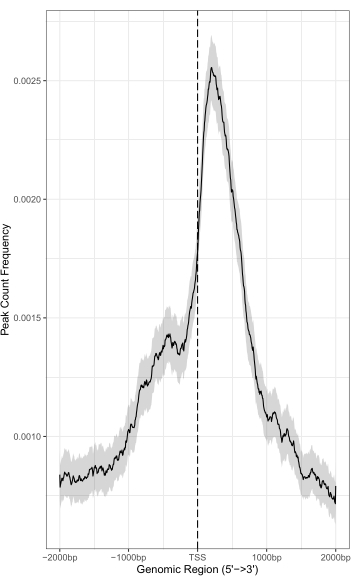
图 4:转录起始位点周围具有较高的峰值计数频率。 H3K4me3 修饰在转录起始位点(TSS)上下游(− 和 +)2,000 bp 范围内的峰值计数频率分布图。请点击此处查看该图的放大版本。
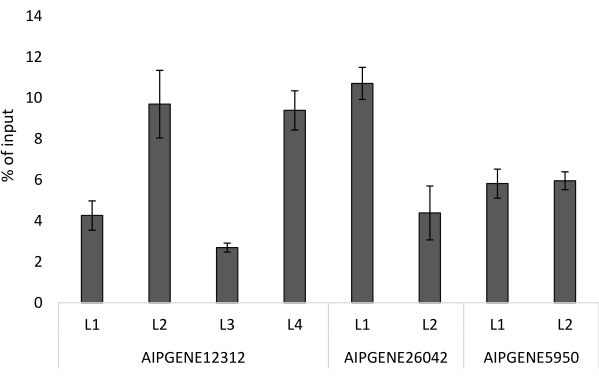
图 5:Exaiptasia diaphana 中的 H3K4me3 ChIP-qPCR。 结果以输入量的百分比(%)表示。选择各基因(AIPGENE12312、AIPGENE26042 和 AIPGENE5950)转录起始位点附近的位点进行 ChIP-qPCR 检测。误差条表示三次重复实验之间的标准差,n = 3。 请点击此处查看该图的放大版本。
补充文件1:qPCR所用引物列表。 请点击此处下载该文件。
讨论
按照上述方案,所获得的DNA已成功用于ChIP-qPCR和ChIP-Seq实验。本研究中获得了与以往在其他生物中报道的H3K4me3相似的总体峰型图谱26,27,28,ChIP-qPCR结果显示在转录起始位点(TSS)附近信号最强,并在预期位置出现显著富集。ChIP-Seq数据中多重比对读段数量相对较高,可能由PCR重复序列导致。通过优化DNA文库构建方案以减少PCR重复,可提高唯一比对读段的数量。ChIP-qPCR数据有多种标准化方法,本文采用的“输入百分比法”较为常用。该方法将免疫沉淀(IP)样本和阴性对照(mock)样本直接相对于输入样本进行标准化,但其缺点在于输入样本在ChIP过程中与IP和mock样本的处理方式不同,可能引入误差。另一种“倍数富集法”则使用相同的引物组,以mock样本信号为背景对IP信号进行标准化,从而得到信号与背景的比值。然而,mock样本的信号强度可能存在较大波动,进而对数据分析结果产生显著影响。有关ChIP-qPCR及其数据标准化方法的详细讨论可参见Haring等人的研究29。
与常见的ChIP实验方案相比,上述方法的主要调整在于交联时间显著延长,从组蛋白蛋白通常所需的约15分钟延长至过夜孵育。这一调整的主要目的是促进固定剂甲醛穿透E. diaphana的黏液层,深入组织内部,从而有效保存细胞核内的蛋白质-DNA相互作用。优化此步骤至关重要,需确保交联程度足以维持蛋白质-DNA结合,同时避免过度交联导致超声破碎染色质效率降低。添加SDS等去污剂也可提高超声效率29。此外,研究发现,长时间甲醛孵育有助于均质化步骤的进行,相较于在交联前即进行均质化的鲜活或冷冻海葵样品,所得样品研磨更细且更均匀。推荐的片段长度范围在100 bp至1,000 bp之间29,30,可能因靶蛋白不同而有所差异。每个实验人员必须优化超声条件,在尽可能低的超声功率下达到目标片段大小,因为过度超声可能导致蛋白质变性,从而影响免疫沉淀(IP)效果31。ChIP技术的另一局限性在于所需起始材料量较大,这对海葵等相对较小的生物尤为突出;本方案通过减少各步骤间的样品损失来解决此问题。在样品均质化后立即进行裂解,省略了多个常规的细胞核制备步骤。来自20只海葵的样品池通常可提供足够进行三次免疫沉淀实验以及空白对照和输入对照所需的染色质。起始材料量(即海葵数量)在未来还可进一步减少,尤其是在仅针对单一靶蛋白进行ChIP实验时。根据预期的下游分析方法,应对对照设置进行相应调整;对于ChIP-qPCR,建议增加额外的对照29,而对于ChIP-seq,则可省略空白对照,仅保留输入对照。
尽管抗体验证超出了本方案的范围,因此此处仅简要提及,但在进行ChIP实验之前,抗体验证是一个关键步骤。尤其是在无脊椎动物物种中使用商业抗体时,针对目标蛋白的特异性抗体的可获得性可能是一个限制因素。第一步,比较了E. diaphana与其他模式生物(包括斑马鱼和小鼠)的H3蛋白N端尾部序列,发现其高度保守12。随后通过免疫荧光实验检测抗体的特异性,结果显示核酸信号与抗体信号共定位。此外,测序数据中H3K4me3在转录起始位点(TSS)周围的峰形分布进一步证实了该抗体的特异性。
关于抗体特异性的另一个考虑因素是,抗体是否可能与E. diaphana以及其他许多珊瑚纲生物细胞内共生的甲藻发生相互作用。Lingulodinium属32和Symbiodinium属33甲藻的转录组分析发现,存在编码组蛋白的基因,包括核心组蛋白H3及若干H3变体,但其表达水平较低,且组蛋白密码功能保守性的程度尚不明确34。Marinov和Lynch34比较了甲藻物种内及物种间H3变体N端尾部的序列保守性,发现Symbiodiniaceae科物种在尾部序列中赖氨酸4(K4)附近表现出高度分化,尤其是在考虑邻近氨基酸与赖氨酸4的一致性作为因素时更为显著。该区域也显示出与拟南芥(Arabidopsis thaliana)、黑腹果蝇(Drosophila melanogaster)和酿酒酵母(Saccharomyces cerevisiae)等模式物种的差异,而后者的序列与E. diaphana一致12。因此,抗H3K4me3抗体与甲藻H3发生非预期结合的风险较低。此外,测序序列仅比对至E. diaphana基因组,且qPCR引物应特异性识别E. diaphana的序列,从而为任何非特异性沉淀的序列提供了额外的筛选层次。
本实验所提供的染色质免疫沉淀(ChIP)方案能够获得足量的DNA,可用于定量PCR以及新一代测序。尽管不同使用者可能需要进行个体化优化,但该方案为深入研究底栖刺胞动物中蛋白质与DNA的相互作用提供了一个起点,尤其可能适用于共生关系及环境变化背景下的相关研究。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 kb Plus DNA 标准分子量标记 | Invitrogen | 10787018 | |
| 100% 乙醇 | |||
| 15 mL 离心管 | |||
| 16% 甲醛溶液(w/v),无甲醇 | Thermo scientific | 28906 | |
| 5 mL 管 | |||
| 5PRIME Phase Lock 管 | Quantabio | 2302820 | Phase lock gel - 轻质 |
| AGANI 针头 25 G | Terumo | AN*2516R1 | |
| 琼脂糖 | |||
| 牛血清白蛋白 | Sigma-Aldrich | A7030 | |
| Bowtie | 开源软件,可从 https://bowtie-bio.sourceforge.net/index.shtml 获取 | ||
| Branson 超声破碎仪 250 | Branson | 超声仪 | |
| 离心机 | Eppendorf | 5430 R | 配备适用于 15 mL 和 1.5 mL 管的转子 |
| ChIP 级抗体(此处为多克隆 H3K4me3 抗体) | Diagenode | C15410003 | |
| 完全不含 EDTA 的蛋白酶抑制剂混合物 | Roche | 11873580001 | 每 1 mL 水溶解 2 片,配制成 100 倍储存液 |
| 盖玻片 | vwr | 48393 194 | |
| 一次性刮勺 | vwr | 80081-188 | |
| DNA 纯化试剂盒(此处为 QIAGEN QIAquick PCR 纯化试剂盒) | QIAGEN | 28104 | |
| Dounce 组织研磨器 | Wheaton | 紧密研杵 | |
| Dulbecco's 磷酸盐缓冲液(DPBS)1× | gibco | 14190-094 | |
| Dynabeads Protein G | Thermo Fisher Scientific | 10004D | |
| EDTA | Sigma-Aldrich | 3609 | |
| EGTA | Sigma-Aldrich | 324626 | |
| 电泳系统 | |||
| 溴化乙锭 | |||
| FASTQC v0.11.9 | 软件 | ||
| Gel Doc EZ 凝胶成像系统 | Bio-Rad | 1708270 | 凝胶成像系统 |
| 甘氨酸 | Sigma-Aldrich | 50046 | |
| Injekt-F 结核菌素注射器 1 mL | B. Braun | 9166017V | |
| 线性丙烯酰胺(5 mg/mL) | Invitrogen | AM9520 | |
| 低吸附 1.5 mL 管 | |||
| 磁力分离架 | 适用于 1.5 mL 管 | ||
| 显微镜 | |||
| 载玻片 | |||
| 基于模型的 ChIP-Seq 分析软件(MACS) | 开源软件 | ||
| 瓷制研钵和研杵 | |||
| NanoDrop 2000c 分光光度计 | Thermo scientific | ND-2000C | |
| N-月桂酰肌氨酸 | Sigma-Aldrich | 61739 | |
| 无核酸酶水 | |||
| 巴斯德吸管 | |||
| 苯酚:氯仿:异戊醇混合液(25:24:1) | Sigma-Aldrich | 77617 | |
| 蛋白酶 K(20 mg/mL) | Ambion | AM2546 | |
| 紫色上样染料 6× | New England BioLabs | B7024S | |
| Qubit 2.0 荧光计 | Invitrogen | ||
| RNase 鸡尾酶混合物 | Invitrogen | AM2286 | RNase A = 500 U/mL,RNase T1 = 20000 U/mL |
| 乙酸钠 | Sigma-Aldrich | S2889 | |
| 氯化钠 | Sigma-Aldrich | S9888 | |
| 脱氧胆酸钠 | Sigma-Aldrich | 30970 | |
| SYBR Safe DNA 凝胶染料 | Invitrogen | S33102 | |
| TAE 缓冲液 | |||
| 恒温混匀仪 | Eppendorf | 5384000012 | |
| Tris 碱 | Sigma-Aldrich | 10708976001 | |
| Triton X-100 溶液 | Sigma-Aldrich | 93443 | |
| 台盼蓝染料(0.4%) | Gibco | 15250-061 | 危险:可能致癌。怀疑对生育能力或胎儿造成损害 |
| 管式旋转混合器 SB3 | Stuart | ||
| UltraPure 十二烷基硫酸钠(SDS)溶液,10% | Invitrogen | 15553027 | |
| 真空泵 |
参考文献
- Pörtner, H. -O. 2022: Summary for Policymakers. Climate Change 2022: Impacts, Adaptation, and Vulnerability. Contribution of Working Group II to the Sixth Assessment Report of the Intergovernmental Panel on Climate Change. , Cambridge University Press. Cambridge, UK. (2022).
- Cziesielski, M. J., Schmidt-Roach, S., Aranda, M. The past, present, and future of coral heat stress studies. Ecology and Evolution. 9 (17), 10055-10066 (2019).
- Eirin-Lopez, J., Putnam, H. Marine environmental epigenetics. Annual Review of Marine Science. 11, 335-368 (2021).
- Rädecker, N. Using Aiptasia as a model to study metabolic interactions in cnidarian-Symbiodinium symbioses. Frontiers in Physiology. 9 (214), (2018).
- Baumgarten, S. The genome of Aiptasia, a sea anemone model for coral symbiosis. PNAS. 112 (38), 11893-11898 (2015).
- Strahl, B. D., Allis, C. D. The language of covalent histone modifications. Nature. 403 (6765), 41-45 (2000).
- Schwaiger, M. Evolutionary conservation of the eumetazoan gene regulatory landscape. Genome Research. 24 (4), 639-650 (2014).
- Zhang, X., Jacobs, D. A broad survey of gene body and repeat methylation in cnidaria reveals a complex evolutionary history. Genome Biology and Evolution. 14 (2), evab284(2022).
- Schwaiger, M. An ancestral Wnt-Brachyury feedback loop in axial patterning and recruitment of mesoderm-determining target genes. Nature Ecology & Evolution. 6 (12), 1921-1939 (2022).
- Ozment, E., et al. Cnidarian hair cell development illuminates an ancient role for the class IV POU transcription factor in defining mechanoreceptor identity. Elife. 10, e74336(2021).
- Baumgarten, S., et al. Evidence for miRNA-mediated modulation of the host transcriptome in cnidarian-dinoflagellate symbiosis. Molecular Ecology. 27 (2), 403-418 (2018).
- Li, Y. DNA methylation regulates transcriptional homeostasis of algal endosymbiosis in the coral model Aiptasia. Science Advances. 4 (8), eaat2142(2018).
- Rodriguez-Casariego, J. A., Cunning, R., Baker, A. C., Eirin-Lopez, J. M. Symbiont shuffling induces differential DNA methylation responses to thermal stress in the coral Montastraea cavernosa. Molecular Ecology. 31 (2), 588-602 (2021).
- Putnam, H. M., Davidson, J. M., Gates, R. D. Ocean acidification influences host DNA methylation and phenotypic plasticity in environmentally susceptible corals. Evolutionary Applications. 9 (9), 1165-1178 (2016).
- Weizman, E., Levy, O. The role of chromatin dynamics under global warming response in the symbiotic coral model Aiptasia. Communications Biology. 2, 282(2019).
- Liew, Y. J. Epigenome-associated phenotypic acclimatization to ocean acidification in a reef-building coral. Science Advances. 4 (6), eaar8028(2018).
- Liew, Y. J. Intergenerational epigenetic inheritance in reef-building corals. Nature Climate Change. 10 (3), 254-259 (2020).
- Liew, Y. J., et al. Identification of microRNAs in the coral Stylophora pistillata. PLoS One. 9 (3), e91101(2014).
- Huang, C., et al. Identification of long non-coding RNAs in two anthozoan species and their possible implications for coral bleaching. Scientific Reports. 7, 5333(2017).
- Rodriguez-Casariego, J. A., et al. Coral epigenetic responses to nutrient stress: Histone H2A.X phosphorylation dynamics and DNA methylation in the staghorn coral Acropora cervicornis. Ecology and Evolution. 8 (23), 12193-12207 (2018).
- Bodega, B., et al. A cytosolic Ezh1 isoform modulates a PRC2-Ezh1 epigenetic adaptive response in postmitotic cells. Nature Structural & Molecular Biology. 24 (5), 444-452 (2017).
- Jordán-Pla, A., Visa, N. Considerations on experimental design and data analysis of chromatin immunoprecipitation experiments. Chromatin Immunoprecipitation., edited by Visa, N., Jordán-Pla, A. Visa, N., Jordán-Pla, A. , Humana Press. Totowa, NJ. 9-28 (2017).
- ENCODE. Ren Lab ENCODE Tissue Fixation and Sonication Protocol for MicroChIP. , Stanford University. Available from: https://www.encodeproject.org/documents/ (2023).
- Langmead, B., Trapnell, C., Pop, M., Salzberg, S. L. Ultrafast and memory-efficient alignment of short DNA sequences to the human genome. Genome Biology. 10, R25(2009).
- Feng, J., Liu, T., Qin, B., Zhang, Y., Liu, X. S. Identifying ChIP-seq enrichment using MACS. Nature Protocols. 7, 1728-1740 (2012).
- Howe, F. S., Fischl, H., Murray, S. C., Mellor, J. Is H3K4me3 instructive for transcription activation. BioEssays. 39 (1), e201600095(2017).
- Zhang, Z., Shi, L., Dawany, N., Kelsen, J., Petri, M. A., Sullivan, K. E. H3K4 tri-methylation breadth at transcription start sites impacts the transcriptome of systemic lupus erythematosus. Clinical Epigenetics. 8, 14(2016).
- Li, X. High-resolution mapping of epigenetic modifications of the rice genome uncovers interplay between DNA methylation, histone methylation, and gene expression. The Plant Cell. 20, 2-276 (2008).
- Haring, M. Chromatin immunoprecipitation: optimization, quantitative analysis and data normalization. Plant Methods. 3, 11(2014).
- Landt, S. G. ChIP-seq guidelines and practices of the ENCODE and modENCODE consortia. Genome Research. 22 (9), 1813-1831 (2012).
- Raha, D., Hong, M., Snyder, M. ChIP-Seq: A method for global identification of regulatory elements in the genome. Current Protocols in Molecular Biology. Chapter 21, Unit 21.19.1-Unit 21.19.14 (2010).
- Roy, S., Morse, D. A full suite of histone and histone modifying genes are transcribed in the dinoflagellate Lingulodinium. PLoS One. 7 (4), e34340(2012).
- Bayer, T., et al. Symbiodinium transcriptomes: Genome insights into the dinoflagellate symbionts of reef-building corals. PLoS One. 7 (4), e35269(2012).
- Marinov, G. K., Lynch, M. Diversity and divergence of dinoflagellate histone proteins. G3 Genes, Genomes, Genetics. 6 (2), 397-422 (2016).
重印与许可
