目前用于分析极化单细胞内动态的方法通常依赖人工操作,且缺乏标准化。本文介绍了一种新颖的图像分析流程,可在用户友好的在线界面中自动提取单个极化细胞的中线,并对延时成像中的时空行为进行量化。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
细胞极性是一种由空间上聚集的分子和结构共同建立的宏观现象,最终在亚细胞水平上形成特化的功能区域。该现象与产生不对称形态结构相关,这些结构是细胞分裂、生长和迁移等关键生物学功能的基础。此外,细胞极性的破坏已被证实与多种组织相关疾病有关,例如癌症和胃部发育异常。
目前评估单个极化细胞中荧光报告分子时空动态的方法通常需要手动沿细胞长轴描绘中线,这一过程耗时且容易引入显著偏差。此外,尽管比率分析可通过两个荧光通道校正报告分子分布不均的问题,但背景扣除技术往往具有任意性,且缺乏统计学支持。
本文介绍了一种新颖的计算流程,用于通过细胞极性模型——花粉管/根毛生长及胞质离子动态——自动分析并量化单个细胞的时空行为。该流程开发了一种三步算法,用于处理比率成像图像,并提取细胞内动态与生长的定量表征。第一步通过像素强度空间中的阈值技术,将细胞与背景分离,生成二值化掩膜。第二步通过骨架化操作,沿细胞中线追踪一条路径。最后,第三步将处理后的数据以比率时间序列形式呈现,并生成比率显影图(即随时间变化的一维空间剖面图)。本方法利用来自生长中花粉管的基因编码荧光报告分子所获取的比率成像数据进行了验证。该流程可更快速、更少偏差且更准确地表征极化细胞中线上的时空动态,从而推进了研究细胞极性可用的定量工具集。AMEBaS Python 源代码位于: https://github.com/badain/amebas.git
引言
细胞极性是一种基本的生物学过程,其中一系列空间聚集的分子和结构协同作用,最终形成特化的形态学子细胞区域1。细胞分裂、生长和迁移均依赖于此类极性位点,而极性的丧失则与上皮组织相关疾病中的癌症发生有关2。
顶端生长的细胞是极性现象的一个显著例子,其细胞顶端的极性位点通常会对外部胞外信号重新定向3。这类细胞包括正在发育的神经突、真菌菌丝、根毛和花粉管,其中多种细胞过程从细胞顶端向主干方向表现出明显差异。特别是在花粉管中,肌动蛋白聚合、囊泡运输以及离子浓度均呈现显著的极性分布,形成以顶端为中心的梯度分布模式4。花粉管是开花植物的雄配子体,负责通过细胞顶端进行快速生长,将精子细胞递送至胚珠,其生长速率在单细胞中属于已知最快之列。钙离子5(Ca2+)和质子6(H+)等离子的顶端聚焦梯度在维持花粉管生长中起着关键作用,这对于实现其主要生物学功能——最终完成双受精过程——至关重要5,6。因此,定量分析顶端生长细胞中轴线上时空动态变化的方法,对于研究极性生长背后的细胞与分子机制至关重要7,8,9。研究人员常使用时空图(kymograph),即一种表示细胞中轴像素强度(如列为位置)随时间变化(如行为时间)的矩阵,从而通过斜线模式可视化细胞的生长与迁移过程(图1)。尽管该方法具有实用性,但时空图通常依赖手动追踪中轴线获得,容易引入主观偏差和人为误差,且操作繁琐耗时。因此,亟需一种自动化的中轴提取方法。本文介绍的 AMEBaS 流程正是以此为首要功能:Automatic Midline Extraction and Background Subtraction of ratiometric fluorescence time lapses of polarized single cells(极化单细胞比率荧光延时成像的自动中轴提取与背景扣除)。
在实验方法方面,利用基因编码的荧光探针可实现对单个细胞中目标离子/分子/物种的定量成像10。在日益增多的探针选择中,比率型探针因其在结合与未结合目标分子时可发射不同荧光波长而成为最准确的方法之一11。该特性允许通过计算两个通道的荧光强度比值(每个通道均扣除其特异性背景信号)来校正探针在细胞内分布的空间异质性。然而,由于阴影效应(图像边缘区域相对于中心区域存在亮度差异)导致的空间变化以及荧光团随时间衰减(光漂白)引起的时间变化,为每个通道和时间点估计背景阈值可能是一项复杂任务12。尽管存在多种可能的解决方法,本文提出采用Isodata算法获得的分割阈值自动确定背景强度13,并进一步通过多项式回归对帧间阈值进行平滑处理作为标准方法。此前研究中已去除与目标细胞无关的荧光异质性所导致的空间成分12,但本方法未考虑此类因素。自动阈值分割可通过多种方法实现,但经验表明Isodata算法效果最佳。因此,自动背景值扣除与比率计算构成了AMEBaS的第二个主要功能(图1),该功能整体接收双通道荧光显微图像序列作为输入,估算细胞中线位置及各通道特异性背景,经背景扣除、平滑处理和异常值剔除后,输出两个通道及其比值的明场图(主要输出#1),同时生成一组比率图像序列(主要输出#2)。
AMEBaS 在显微镜下对生长中的拟南芥花粉管进行荧光时间序列测试,花粉管中分别表达了花粉特异性启动子 LAT52 驱动的 Ca2+(CaMeleon)8 或 pH(pHluorin)6 比值型传感器。使用倒置显微镜,每 4 秒采集一次各通道图像,配备前照式相机(2560 像素 × 2160 像素,像素大小 6.45 μm)、荧光照明装置以及 63 倍水浸物镜(1.2 NA)。CaMeleon 使用的滤光片设置为:激发光 426–450 nm(CFP)和 505–515 nm(YFP),发射光 458–487 nm(CFP)和 520–550 nm(YFP);pHluorin 的滤光片设置为:激发光 318–390 nm(DAPI)和 428–475 nm(FITC),发射光 435–448 nm(DAPI)和 523–536 nm(FITC)。完整数据集已上传至 Zenodo 供测试使用(DOI: 10.5281/zenodo.7975350)14。
此外,该流程还使用根毛数据进行了测试,成像采用光片显微镜(SPIM)进行,实验方法如前所述15,16,其中拟南芥根毛在UBQ10启动子调控下表达遗传编码的Ca2+探针NES-YC3.6。17 自制的LabView软件控制相机采集、样品平移以及光片显微镜的快门,可同时观察cpVenus和CFP两个荧光通道,并实现实时比值成像。每个延时比值图像均为对样品每隔3 μm采集的15个层面图像中cpVenus与CFP荧光通道图像进行最大强度投影(MIP)所得。延时采集的MIP比值图像序列被保存后直接用于AMEBaS分析。
尽管该流程可用于多种生长和迁移的细胞类型,但它专门设计用于分析仅在顶端生长的细胞,例如花粉管、根毛和真菌菌丝,这些细胞在连续图像帧之间具有非生长胞质区域的对应关系。当这种对应关系不存在时,用户应在步骤 1.3.1.1 中选择 complete_skeletonization 选项(详见讨论部分)。
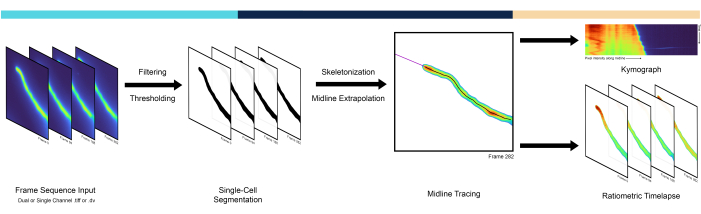
图 1:流程工作概述。 AMEBaS 流程对显微镜下的延时图像进行分析和处理,主要包括三个步骤:单细胞分割、中线追踪和显微图生成。请点击此处查看该图的放大版本。
访问受限。请登录或开始试用以查看此内容。
方案
1. 交互式笔记本实验方案
可直接在网页上使用 Google Colab 运行 Jupyter 笔记本,地址为 https://colab.research.google.com/github/badain/amebas/blob/main/AMEBAS_Colab.ipynb,下文所述操作说明即基于此平台。或者,也可从 https://github.com/badain/amebas 获取该 Jupyter 笔记本,下载后在本地 Jupyter 环境中运行(Anaconda 可提供简便且跨平台的安装方式)。完整的测试数据可在 Zenodo 上获取(https://doi.org/10.5281/zenodo.7975350),其中包含表达 pH 或 Ca2+ 报告分子的拟南芥花粉管的单通道和双通道数据14。分析流程已被划分为多个部分,每个步骤均可在设置用户特定选项后,通过点击播放按钮执行。本研究所需文件包含在 AMEBaS- main 压缩文件夹中(补充代码文件 1)。
- 打开 Jupyter 笔记本并读取延时成像文件。
- 访问上述 Google Colab 中交互式笔记本的主页,或下载并打开该笔记本 AMEBaS_Local.ipynb 从 GitHub 获取笔记本。
- 为输入和输出数据准备目录结构:
- 如果使用本地版本,将荧光延时图像以 TIFF 文件或 DV 文件格式放入名为 数据 必须位于程序的根目录中。一个名为 出 必须创建以接收生成的数据。然后运行 设置 代码块。
- 如果在 Google Colab 上使用笔记本,请运行以下代码 设置 自动生成代码块 数据 和 出 文件夹。
- 运行 文件输入 单击以读取延时数据的代码块 播放 按钮。如果使用的是笔记本的 Google Colab 版本,请点击 选择文件 按钮,以直接上传延时文件至 数据 文件夹
注意:通道数量将根据图像的维度自动检测。 - 通过将“verbose”参数设置为,选择是否生成每个步骤的额外输出 是 或 错误.
- 从背景中检测出主要细胞并进行分割(图2).
- 运行 单细胞分割 通过点击自动将目标细胞与背景分离的代码块 播放 按钮
注意:在通过IsoData阈值法将前景与背景分离并选取最大区域以去除不需要的伪影之前,将中值滤波和高斯滤波作为预处理步骤,用于消除不必要的噪声。- 通过调整“sigma”变量中高斯函数使用的sigma值,可微调分割掩膜的平滑程度。默认值为2.0。
- 设置变量 估计 至 错误 将从 Isodata 估计的阈值直接存储或 是 使用局部多项式回归(LOESS)在相邻帧之间进行平滑处理。通过调整其函数参数以优化性能 n_points 变量。默认值为 40。
- 运行 单细胞分割 通过点击自动将目标细胞与背景分离的代码块 播放 按钮
- 沿细胞突起描记中线图3).
- 运行 细胞 中线 示踪 单击代码块 播放 使用 Lee 法自动骨架化细胞的按钮18 并通过线性外推法延长最后一个骨架的末端。
- 选择仅在最后一帧或每帧中追踪中线,通过调整 完全骨骼化 论点
注意:当所有图像帧均已完成骨架化时,将跳过外推步骤。 - 通过调整外推过程中需插值的骨架点比例 插值分数 变量。默认值为 0.25。
- 通过更改变量来选择中线外推的长度 外推长度默认值为 -1,表示将骨架延伸至最近的边缘。
- 选择仅在最后一帧或每帧中追踪中线,通过调整 完全骨骼化 论点
- 运行 细胞 中线 示踪 单击代码块 播放 使用 Lee 法自动骨架化细胞的按钮18 并通过线性外推法延长最后一个骨架的末端。
- 为每个通道生成明场图像 图4).
- 运行第一次 数据可视化 单击代码块 播放 单击按钮可自动为两个通道生成明场显微图像。
- 通过调整变量来选择用于平滑处理的高斯核大小 kymograph_kernel.
注意:该参数对应于用于平均像素强度的邻域大小(以像素为单位)。默认值为 3 像素 × 3 像素。 - 非延展骨架生成的截断Kymograph必须使用自定义色阶来正确显示其强度。选择指定给背景色(黑色)的强度百分比分数,并进行调整 偏移分数 变量。默认值为 0.7。
- 通过调整变量来选择用于平滑处理的高斯核大小 kymograph_kernel.
- 运行第一次 数据可视化 单击代码块 播放 单击按钮可自动为两个通道生成明场显微图像。
- 计算通道间的比值(图5).
- 运行第二次 数据可视化 点击代码块 播放 按钮,可自动生成比率式显影图(ratiometric kymograph)和比率式时间序列图像(ratiometric timelapse)图6).
注意:此步骤仅在使用双通道时间序列时可用。步骤 1.2.1.2 中存储的背景强度阈值将从每个通道中减去。- 调节 转换比率 用于切换在比值计算过程中作为分子和分母的通道顺序的变量。默认值为 错误.
- 选择是否通过调整中值滤波器的参数对比率时间序列进行进一步平滑处理 平滑比 变量。默认值为 错误.
- 选择是否通过调整分母通道低信号产生的异常值来去除 outliers 剔除离群值 变量。默认为 是 将离群值定义为高于第三四分位数(即75%的数值所在位置)1.5倍四分位距的数值。
- 选择是否通过调整变量来导出比例输出中的背景 背景比值。默认值为 错误,用零替换它。
- 运行第二次 数据可视化 点击代码块 播放 按钮,可自动生成比率式显影图(ratiometric kymograph)和比率式时间序列图像(ratiometric timelapse)图6).
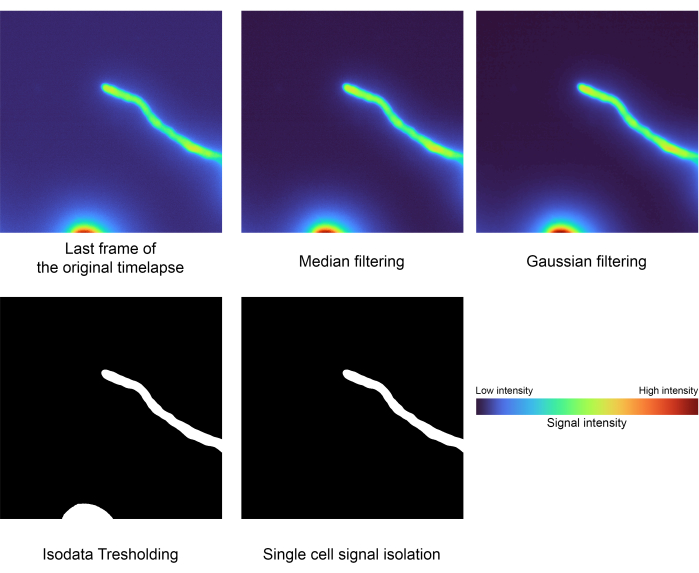
图 2:单细胞分割步骤。 使用滤波、阈值分割和区域标记等图像处理技术来分离目标信号(步骤 1.2)。该组数据的最低强度值为 2556,中位值为 3441,最高强度值为 32125。 请点击此处查看该图的放大版本。

图3:中轴线追踪概述——单个细胞的中轴线通过计算其骨架(白色)获得。细胞尖端(品红色)由骨架末端的最后几个点线性外推得出(步骤1.3)。在此图中,中轴线及其尖端均叠加在原始细胞图像之上。请点击此处查看该图的放大版本。

图 4:时间序列的波动图—在“complete_skeletonization”功能关闭时生成的各通道波动图比较(步骤 1.4)。纵轴表示时间进程,横轴表示单个细胞沿外推中线路径的平均强度。对于本组数据,颜色映射表示以下数值:通道 1 最低强度:2886,中位数:3167,最高强度:21021;通道 2 最低强度:3030,中位数:3400,最高强度:29688。请点击此处查看此图的放大版本。
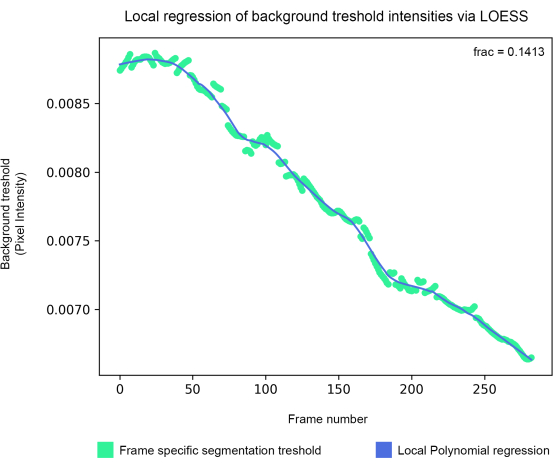
图5:背景阈值平滑处理— 背景分割阈值通过等量算法(isodata算法)估算,随后通过局部多项式回归进行平滑处理(步骤1.5)。请点击此处查看该图的放大版本。

图6:比率分析结果—(A)比率时间序列的最后一帧与原始第一通道分割图像的比较。(B)由比率时间序列生成的明场图(步骤1.5)。请点击此处查看该图的放大版本。
2. 批量模式操作流程
- 从 AMEBaS GitHub 仓库下载文件 pipeline.py,并将其放置在与数据相同的目录中。
- 在命令行中程序文件后输入文件路径。
- 如需显示流程的内部步骤,可包含位置参数 --v。
- 包含 --s 以选择高斯滤波预处理步骤中用于细胞分割的 sigma 值。默认值为 2。
- 包含 --a 以对时间序列的每一帧追踪中线。默认情况下,流程仅使用最后一帧。
- 包含 --f 以选择在插值过程中使用的骨架比例 [0,1]。默认值为 0.25。
- 包含 -e 以选择外推骨架的长度(像素)。默认值为 -1,表示将骨架延伸至最近的边缘。
- 包含 --sf 以选择在非外推的显迹图中被移至背景的颜色范围比例。默认值为 0.7。
- 包含 --k 以确定显迹图高斯滤波中所用核的大小。默认值为 3。
- 包含 --eb 以通过 LOESS 多项式回归对帧特异性背景阈值强度进行全局背景阈值强度估计。
- 通过修改参数 --n 自定义用于背景阈值平滑处理的 LOESS 点数。默认值为 40。
- 如果时间序列包含两个通道,可通过包含 -r 或 --switch_ratio 来切换比值计算中分子和分母所使用的通道。默认情况下,第二个通道为分子,第一个通道为分母。
- 通过 --sm 参数选择是否在比值时间序列生成过程中进一步使用中值滤波进行平滑处理。默认值为 False。
- 包含 -o 以在生成比值时间序列时排除具有异常强度的像素。
- 使用参数 --b 选择是否导出比值输出中的背景。默认值为 False,表示将其替换为零。
- 按 enter 运行。输出文件将生成在程序文件所在的同一目录中。
访问受限。请登录或开始试用以查看此内容。
结果
AMEBaS 流程可自动从荧光显微镜图像序列中提取极化单细胞的中线动态信息,从而减少耗时并降低人为误差。该方法通过在生长的单细胞中生成明暗图(kymographs)和比率图像序列(图1)来量化这些时间变化过程。该流程可调整用于迁移中的单细胞分析,但尚需进一步实验验证。AMEBaS 以 Python 编写,提供交互式 Jupyter Notebook 实现形式(详见交互式笔记本协议部分),便于无编程经验的用户使用;同时也提供命令行工具形式(见批量模式协议部分),可用于对多个图像序列使用相同参数集进行分析。尽管可使用一个或两个荧光通道,但建议采用具有两个发射通道的比率探针,因为探针未结合状态的荧光发射可减轻细胞质中蛋白质分布不均所引起的空间异质性。
该流程首先在最强通道上生成最大细胞的二值化掩膜,并导出为名为 Filename_binary_mask.tiff (图2...
访问受限。请登录或开始试用以查看此内容。
讨论
本文介绍的新方法是一种强大的工具,可用于简化和自动化极化细胞荧光显微镜图像堆栈的分析。目前文献中描述的方法(如ImageJ的Kymograph插件)需要手动追踪目标极化细胞的中线,这一过程不仅耗时,而且容易引入人为误差。本流程中,中线的定义由一种数值方法支持18,19,该方法执行骨架化处理,从而消除了主观判断,为该过程引入了定量标准。这对于拥有大量数据的研究人员尤为有用,且该流程可根据不同需求进行定制,包括为每一帧提取中线。此外,背景值的扣除通常是任意的,往往由人工为某一通道的所有帧选择单一背景值。本文采用等值区域(isodata)分割法,客观地确定每一帧的背景阈值,并可选地通过局部多项式回归对其进行平滑处理,以捕捉由荧光衰减(光漂白)引起的长期变化。尽管在背景选择中通过像素面积选取较大对象的方式忽略了可能的伪影和次要成分,但也可采用其他方法(如FRET-IBRA12)来消除阴影等效应。空间伪影(如阴影)可能影响通过阈值分割得到的细胞形态,这可能是AMEBaS标志所示比率成...
访问受限。请登录或开始试用以查看此内容。
披露
本文作者声明不存在竞争性财务利益或其他利益冲突。
致谢
作者感谢圣保罗研究基金会(FAPESP)提供的资助,项目编号为 2015/22308-2、2019/23343-7、2019/26129-6、2020/06744-5、2021/05363-0,以及巴西国家科学技术发展委员会(CNPq)、美国国立卫生研究院(NIH)R01 基金 GM131043 和美国国家科学基金会(NSF)基金 MCB1714993、MCB1930165 提供的经费支持。根毛数据在 Andrea Bassi 教授和 Alex Costa 教授的指导和基础设施支持下完成。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Github | Github | https://github.com/badain/amebas | |
| Google Colab | 谷歌 | https://colab.research.google.com/github/badain/amebas/blob/main/AMEBAS_Colab.ipynb |
参考文献
- Drubin, D. G., Nelson, W. J. Origins of cell polarity. Cell. 84 (3), 335-344 (1996).
- Wodarz, A., Näthke, I. Cell polarity in development and cancer. Nature Cell Biology. 9 (9), 1016-1024 (2007).
- Palanivelu, R., Preuss, D. Pollen tube targeting and axon guidance: parallels in tip growth mechanisms. Trends in Cell Biology. 10 (12), 517-524 (2000).
- Portes, M. T., et al. The Pollen Tube Oscillator: Integrating Biophysics and Biochemistry into Cellular Growth and Morphogenesis. Rhythms in Plants: Dynamic Responses in a Dynamic Environment. , Springer. Cham. (2015).
- Wudick, M. M., et al. CORNICHON sorting and regulation of GLR channels underlie pollen tube Ca2+ homeostasis. Science. 360 (6388), 533-536 (2018).
- Hoffmann, R. D., et al. Plasma membrane H+-ATPases sustain pollen tube growth and fertilization. Nature Communications. 11 (1), 1-15 (2020).
- Michard, E., et al. Glutamate receptor-like genes form Ca2+ channels in pollen tubes and are regulated by pistil D-serine. Science. 332 (6028), 434-437 (2011).
- Damineli, D. S., Portes, M. T., Feijó, J. A. Oscillatory signatures underlie growth regimes in Arabidopsis pollen tubes: computational methods to estimate tip location, periodicity, and synchronization in growing cells. Journal of Experimental Botany. 68 (12), 3267-3281 (2017).
- Li, K., et al. An optimized genetically encoded dual reporter for simultaneous ratio imaging of Ca2+ and H+ reveals new insights into ion signaling in plants. New Phytologist. 230 (6), 2292-2310 (2021).
- Sadoine, M., et al. Designs, applications, and limitations of genetically encoded fluorescent sensors to explore plant biology. Plant Physiology. 187 (2), 485-503 (2021).
- Grenzi, M., et al. Illuminating the hidden world of calcium ions in plants with a universe of indicators. Plant Physiology. 187 (2), 550-571 (2021).
- Munglani, G., Vogler, H., Grossniklaus, U. Fast and flexible processing of large FRET image stacks using the FRET-IBRA toolkit. PLoS Computational Biology. 18 (4), 1009242(2022).
- Ridler, T., Calvard, S. Picture thresholding using an iterative selection method. IEEE Transactions on Systems, Man, and Cybernetics. 8 (8), 630-632 (1978).
- Portes, M. T., Feijó, J. Growing Arabidopsis pollen tubes expressing genetically encoded reporters for calcium and pH. , (2023).
- Candeo, A., Doccula, F. G., Valentini, G., Bassi, A., Costa, A. Light sheet fluorescence microscopy quantifies calcium oscillations in root hairs of Arabidopsis thaliana. Plant & Cell Physiology. 58 (7), 1161-1172 (2017).
- Romano Armada, N., et al. In vivo light sheet fluorescence microscopy of calcium oscillations in Arabidopsis thaliana. Methods in Molecular Biology. 1925, 87-101 (2019).
- Krebs, M., et al. FRET-based genetically encoded sensors allow high-resolution live cell imaging of Ca2+ dynamics. The Plant Journal. 69 (1), 181-192 (2012).
- Lee, T. -C., Kashyap, R. L., Chu, C. -N. Building skeleton models via 3-D medial surface axis thinning algorithms. CVGIP: Graphical Models and Image Processing. 56 (6), 462-478 (1994).
- Nunez-Iglesias, J., Blanch, A. J., Looker, O., Dixon, M. W., Tilley, L. A new Python library to analyse skeleton images confirms malaria parasite remodelling of the red blood cell membrane skeleton. PeerJ. 6, 4312(2018).
访问受限。请登录或开始试用以查看此内容。
重印与许可
