鼻腔上皮是所有呼吸道病原体首先接触的主要屏障部位。本文概述了利用气液界面(ALI)培养的原代鼻腔上皮细胞,以在生理相关系统中表征人类冠状病毒与宿主相互作用的方法。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
三种高致病性人类冠状病毒(HCoVs)——SARS-CoV(2002年)、MERS-CoV(2012年)和SARS-CoV-2(2019年)——在过去20年中相继出现,并引发了重大的公共卫生危机。此外,还有四种HCoVs每年导致大量普通感冒病例(HCoV-NL63、-229E、-OC43和-HKU1),凸显了在生理相关系统中研究这些病毒的重要性。HCoVs通过呼吸道进入人体,并在鼻黏膜上皮建立感染,后者是所有呼吸道病原体入侵的首要部位。我们采用一种原代鼻上皮细胞培养系统,将来自患者的鼻腔样本在气液界面(ALI)条件下培养,以研究该关键哨兵部位上的宿主-病原体相互作用。这些培养物重现了鼻黏膜上皮的多种特征 体内 气道,包括 存在的细胞类型、纤毛功能以及黏液分泌。我们描述了在人类冠状病毒(HCoV)感染后,利用鼻腔气液界面(ALI)培养模型表征病毒复制、宿主细胞嗜性、病毒诱导的细胞毒性以及天然免疫反应的方法,并以近期对致死性和季节性HCoV的比较研究为例进行说明1对鼻腔内宿主与病原体相互作用的深入理解,有望为针对人冠状病毒及其他未来可能出现的呼吸道病毒的抗病毒治疗提供新的靶点。
引言
迄今为止已发现七种人类冠状病毒(HCoVs),可引起多种呼吸系统疾病2。常见或季节性人类冠状病毒(HCoV-NL63、-229E、-OC43 和 -HKU1)通常与上呼吸道疾病相关,每年估计导致10%–30%的普通感冒病例。尽管这是常见HCoVs典型的临床表型,但这些病毒在高风险人群中也可能引起更严重的下呼吸道疾病,包括儿童、老年人以及免疫功能低下者3,4。在过去20年中,已出现三种致病性HCoVs,并引发了重大的公共卫生紧急事件,分别为严重急性呼吸综合征冠状病毒(SARS-CoV)、中东呼吸综合征冠状病毒(MERS-CoV)和SARS-CoV-2。致死性HCoVs与更严重的呼吸道病理相关,MERS-CoV病例的病死率超过>34%(自2012年首次出现以来,已有2,500多例病例,其中894例死亡),这一数据清晰地说明了其严重性5,6。需要特别指出的是,这些致死性HCoVs同样可引起从无症状感染到致死性肺炎等一系列呼吸道疾病,正在持续的COVID-19大流行便是例证7。
与其他呼吸道病原体类似,人冠状病毒(HCoVs)进入呼吸道后,在鼻腔上皮建立有效的感染8。病毒扩散至下呼吸道通常被认为与口腔/鼻腔分泌物误吸入肺部有关,HCoVs 在肺部可引起更显著的下呼吸道病理改变9,10,11。因此,鼻腔作为病毒入侵的初始门户,凭借其强大的黏液纤毛清除机制以及独特的天然免疫机制,构成了抵御感染的主要屏障,旨在阻止病毒进一步扩散至下呼吸道12,13。例如,已有研究报道,鼻腔上皮细胞的基础抗病毒干扰素及干扰素刺激基因表达水平高于平均水平,表明鼻腔细胞可能已处于对呼吸道病毒作出早期应答的准备状态14,15,16。
我们先前利用患者来源的原代鼻上皮细胞,在气液界面(air-liquid interface, ALI)培养条件下建立模型,以研究鼻腔中人类冠状病毒(HCoV)与宿主之间的相互作用,因为HCoV感染通常始于鼻腔。鼻源性ALI培养体系对多种HCoV均具有易感性,包括致病性冠状病毒(如SARS-CoV-2和MERS-CoV)以及常见的人类冠状病毒(如HCoV-NL63和HCoV-229E),相较于传统的气道上皮细胞系(如A549,一种肺腺癌细胞系),该模型具有多种优势。16,17分化后,鼻腔气液界面培养物包含多种细胞类型,并表现出人体鼻腔上皮预期的多种功能 体内 鼻上皮,例如黏液纤毛清除系统18鼻腔细胞相较于下呼吸道培养系统(如人支气管上皮细胞,HBECs)也具有优势,因为鼻上皮细胞的获取 通过 细胞学刷取技术相较于支气管镜等获取人支气管上皮细胞(HBECs)的方法具有显著更低的侵入性19,20,21.
本文介绍了利用这种鼻腔气液界面(ALI)培养系统来表征人冠状病毒(HCoV)与宿主相互作用的方法。我们已在近期发表的研究中应用这些方法,比较了SARS-CoV-2、MERS-CoV、HCoV-NL63和HCoV-229E1,16,17。尽管这些方法和代表性结果重点强调了在该鼻腔细胞模型中对HCoVs的研究,但该系统也可高度适用于其他HCoVs以及其他呼吸道病原体。此外,这些方法还可更广泛地应用于其他ALI培养系统,以研究病毒感染后的病毒复制与细胞嗜性,以及细胞毒性与天然免疫应答的诱导。
访问受限。请登录或开始试用以查看此内容。
方案
使用鼻腔样本已获得宾夕法尼亚大学机构审查委员会(方案编号 # 800614)和费城退伍军人事务机构审查委员会(方案编号 # 00781)的批准。
1. 鼻腔气液界面培养物的感染
注意:临床样本的获取,以及鼻腔气液界面(ALI)培养物的生长与分化不在本文讨论范围之内。有关原代鼻上皮细胞培养的具体方法,可参考近期发表的使用此类培养体系的研究文献18,22,23。如下所述的实验方案也可根据需要应用于市售的鼻上皮细胞ALI培养模型。下述方案及体积适用于24孔板Transwell小室(直径6.5 mm,膜表面积0.33 cm2)。若使用在较大Transwell上生长的ALI培养物(例如12孔板,直径12 mm,表面积1.12 cm2),则应按比例调整试剂体积以适配Transwell尺寸。
- 感染前一天:
- 用磷酸盐缓冲液(PBS)从顶端冲洗 ALI 培养物 3 次(加入约200 μL 温PBS中,置于 37 °C 孵育5分钟,吸除PBS,重复一次。
- 更换基础培养基(500 μL).
- 让培养物在即将进行过夜感染的温度下平衡(例如,如果在 33 °C,将培养物置于 33 °C 孵育器中孵育(PBS洗涤后)。
注意:据报道,与普通感冒相关的HCoVs(如HCoV-229E和HCoV-NL63)在较低温度下复制效率更高 33 °C此外,温度的 体内 鼻腔上皮组织是 33 °C (这不同于肺部的温度,后者为 37 °C).
- 根据需要将病毒在无血清的杜氏改良伊格尔培养基(DMEM)中稀释,以在总体接种体积中达到所需的感染复数(MOI) 50 μL.
注意:感染通常在 MOI = 5(高 MOI)条件下进行;然而,MOI = 0.5(低 MOI)也已用于 SARS-CoV-2 和引起普通感冒的 HCoV,两种条件下可获得相当的病毒峰值滴度,但动力学存在差异(两种 MOI 均可接受)。 - 从顶端加入接种物,然后将培养物放回培养箱中孵育1小时。
- 每15分钟轻轻摇动培养板一次(用双手牢固握住培养板,前后及左右摇动,以确保病毒接种物均匀吸附)。
- 孵育1小时后,吸除病毒接种液,并用PBS洗涤每份感染的培养物3次,以确保彻底去除病毒接种液(每次洗涤时,加入 200 μL PBS,孵育5分钟,然后吸除或用移液器移去。
- 如有需要,收集第三次PBS洗涤液,以确认输入病毒已被充分去除。
- 每隔72小时,在感染期间更换感染的ALI的培养基为新鲜培养基。
2. 采集气道顶膜表面液体(ASL)及脱落病毒的滴度测定
- 在感染后的预定时间点,加入 200 μL 向每个感染的transwell上室加入PBS。
注意:相关时间点因所研究的HCoV不同而异,通常为感染后24小时至192小时(参见代表性结果部分中关于不同HCoV的病毒复制数据)。 - 用移液器将PBS上下吹打5次,以确保充分收集顶端脱落的病毒,并将全部液体转移至微量离心管中(此为ASL样本)。
注意:ASL 除包含来自 ALI 培养物顶端分泌的黏液和其他分泌物外,还含有脱落的病毒颗粒。 - 在ASL中定量感染性病毒 通过 标准病毒蚀斑实验(对含有病毒的样本进行系列稀释,以定量病毒颗粒的浓度)。
注意:蚀斑试验所用的细胞类型和孵育时间取决于所使用的病毒:SARS-CoV-2(VeroE6细胞);MERS-CoV(VeroCCL81细胞);HCoV-NL63(LLC-MK2细胞);HCoV-229E(Huh7细胞)。有关如何开展病毒蚀斑试验的具体操作细节不在本论文的讨论范围内,但此前已在《视觉化实验杂志》(Journal of Visualized Experiments, JoVE)的出版物中详细描述。24. - 必要时,可在感染后的不同时间点收集基底侧培养基,以确认无基础性病毒释放。人冠状病毒(HCoVs)通常从鼻上皮细胞的顶端释放,但需对此加以验证。 通过 未稀释基础培养基的噬斑测定
- 将 ASL 样本储存在 −80 °C 如果无法在样本采集当天进行噬斑试验定量。
3. 细胞内病毒的定量
- 收集ASL样本后,将每个transwell转移至预装有清洁24孔板的培养板中 500 μL 含2%胎牛血清(FBS)的DMEM基础培养基
注意:使用含 2% FBS 的 DMEM 可在后续冻融循环中稳定病毒。 - 用 PBS 从顶端对每个 transwell 洗涤 3 次,以确保完全去除顶端脱落的病毒。
- 吸除最后一次 PBS 洗涤液后,加入 100 μL 向顶端室加入含2% FBS的DMEM。
- 将含有转孔小室及顶端和基底侧培养基的培养板移至 −80 °C 冷冻机中冷冻,并完成三个连续的冻融循环以裂解细胞。
- 经过最后一次冻融循环后,收集顶极(apical)部分100 μL)和基础(500 μL将培养基转移至洁净离心管中。
- 500 × g 离心 g 10 min 4 °C 以沉淀任何细胞碎片。
- 收集上清液。此为用于滴定的细胞内病毒样品。 通过 标准蚀斑实验
注意:与ASL采集相比,采集过程中的稀释倍数为三倍;ASL样本采集于 200 μL PBS,而细胞内病毒样本则收集至总体积为 600 μL.
4. 跨上皮电阻(TEER)测量
注意:测量TEER时,应使用添加了钙和镁的磷酸盐缓冲液(PBS + Ca2+/Mg2+)。使用设置为以欧姆(ohms)读数的上皮细胞伏特/欧姆计(见材料表)。
- 根据制造商的说明清洁、平衡并校准EVOM仪器;使用未接种鼻腔细胞的“空白”Transwell进行空白校正。记录空白TEER测量值。
注意:若使用多种病毒,不同条件之间必须严格清洁EVOM仪器以避免交叉污染(用70%乙醇清洗后,再用去离子水冲洗即可)。 - 将每个感染后的Transwell转移至预先标记的洁净24孔板中,每孔底部加入500 μL含Ca2+/Mg2+的PBS,以洗去Transwell底部残留的培养基。
- 向每个Transwell的顶端室中加入200 μL含Ca2+/Mg2+的PBS。
- 向Endohm-6测量室中加入1 mL含Ca2+/Mg2+的PBS。
- 将每个Transwell放入Endohm-6测量室中,并盖上盖子,使顶端电极浸入顶端室的200 μL PBS中;底端电极已集成在Endohm-6测量室的底部。
- 等待EVOM读数稳定后,记录原始TEER测量值。
- 如需进行滴度测定,在完成TEER测量后按上述方法收集ASL样本(收集于为TEER测量而加入的200 μL含Ca2+/Mg2+的PBS中)。
注意:ASL样本的采集可能引起上皮屏障的微小撕裂,从而干扰TEER读数,因此ASL必须在TEER测量之后采集。此外,在TEER测量前不得立即更换底部培养基,否则也可能影响TEER数值。 - 将原始TEER读数转换为最终单位为Ohms/cm2的测量值时,需减去空白TEER值,并将结果乘以Transwell膜的表面积,计算公式如下(公式1):
TEER = [TEER读数 - 空白TEER值] × (Transwell膜表面积) (1) - 对于人冠状病毒(HCoVs),应在感染后每24小时或48小时评估一次TEER;不同病毒引起的TEER变化动力学常有差异,需在不同时间点进行优化和排查。
- 测量TEER时,应始终包括模拟感染的对照组,并在每个时间点进行评估(阴性对照)。
注意:对于模拟感染的培养物,TEER测量值应保持稳定,或在培养物分化完成后较基线略有升高。膜支持物的表面积因Transwell的尺寸和制造商而异;24孔Transwell的典型表面积为0.33 cm2。
5. 感染期间细胞毒性的测定 通过 乳酸脱氢酶(LDH)检测
注意:本研究中,使用市售的细胞毒性检测试剂盒对ASL样本中的乳酸脱氢酶(LDH)含量进行定量。基础培养基中的LDH信号通常低于检测限,且相较于HCoV感染培养物所获得的ASL样本中的LDH定量结果,其重复性通常较差。
- 准备乳酸脱氢酶(LDH)检测所需的额外对照。
- 背景对照:使用 PBS(如果 ASL 样本是以含钙和镁的 PBS 收集的,则使用含钙和镁的 PBS)。
- 阳性对照(上限值):在气液界面顶部加入Triton X-100进行处理。收集Triton对照孔(通常在每个时间点使用三个气液界面培养样本)。
- 添加 200 μL 将2% Triton X-100的PBS溶液直接加入transwell的顶室。
- 孵育10-15分钟,使细胞完全裂解。
- 收集全部体积作为Triton表面样品。
- 阴性对照(低对照/基础LDH释放):收集与感染组培养物同一供体来源的模拟感染ALI培养物的ASL。
- 按照上述ASL收集步骤收集阴性对照模拟ASL。
注意:同一Transwell可用于所有时间点的该阴性对照,而Triton对照则需要为每个时间点使用新的Transwell。
- 按照上述ASL收集步骤收集阴性对照模拟ASL。
- 为在测定每份ASL样本乳酸脱氢酶(LDH)水平的同时对脱落病毒进行定量,按如下方式加载光学透明平底黑色96孔板:
- 用 PBS 稀释所有样品,使用 45 μL 样品和 55 μL PBS 的100 μL 总体积)。
- 以相同方式处理Triton阳性对照和模拟背景对照样本。
注意:此稀释度可满足每个实验样本三份重复加样45 μL x 3)以及足量的残留ASL体积用于滴定 通过 噬斑测定 - 将LDH板设为三复孔:Triton对照孔、模拟背景对照孔、PBS对照孔以及实验样品孔。
- 按照制造商的说明配制反应混合液(染料溶液 + 催化剂)。
- 添加 100 μL 向每孔加入反应混合液,并在室温下避光孵育20分钟。
- 20分钟后,在492 nm处测定吸光度。
- 使用公式(基于Triton的上限值)计算相对细胞毒性百分比2).
细胞毒性(%)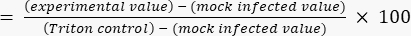 (2)
6. 用于免疫荧光(IF)成像的鼻腔气液界面培养物的制备
- 将transwell转移至新的24孔板中,从顶端用PBS洗涤3次(若需滴定病毒,收集第一次PBS洗涤液作为ASL;随后再进行两次PBS洗涤,以去除可能影响免疫荧光质量的过量脱落病毒)
- 最后一次PBS洗涤后,从顶端和基底端加入4%多聚甲醛(PFA)覆盖transwell。
- 在4% PFA中固定30分钟,随后去除固定液,并用PBS洗涤3次。
- 使用锋利的剃须刀片或剪刀切除含有细胞的transwell支撑膜。
- 为增加每个transwell可检测的免疫荧光靶标数量,可将每张膜切成两半,并用不同的抗体组合分别对每一半进行染色。
- 用含0.2% Triton X-100的PBS溶液透化处理10分钟。
- 在室温下用含10%正常驴血清和1% BSA的PBST(PBS + 0.2% Triton X-100)封闭60分钟。
注意:从本步骤开始,需避免样品暴露于光照下。 - 在4 °C下用一抗溶液孵育过夜。所有抗体均以1:1,000比例用封闭液稀释。
注意:以下列出了用于HCoV核衣壳染色以及上皮细胞类型标志物和细胞骨架染色的代表性抗体(详见材料表获取生产厂家信息和目录号)。- 针对HCoV抗原染色,使用靶向SARS-CoV-2核衣壳蛋白、MERS-CoV核衣壳蛋白和HCoV-NL63核衣壳蛋白的抗体。
- 为鉴定上皮细胞类型,使用靶向杯状细胞标志物MUC5AC和纤毛细胞标志物IV型β-微管蛋白的抗体。
- 对于细胞骨架标志物,使用靶向鬼笔环肽(结合F-actin)和上皮细胞黏附分子EpCAM(CD326)的抗体。
- 在室温下用二抗溶液孵育60分钟;二抗染料以1:1,000比例用封闭液稀释。
- 染色完成后,用刮勺将膜转移至载玻片上,使transwell的顶端面向载玻片,加入封片液。静置15–30分钟后,在边缘涂抹透明指甲油密封。
- 使用共聚焦显微镜采集图像(Z轴步进:0.5 μm;逐帧扫描)1,16,17。
注意:在4% PFA中固定并用PBS洗涤后,样品可在染色和制片前于4 °C保存数周至数月。膜染色并封片后,样品可在避光条件下于4 °C长期保存(>2年)。
7. 收集细胞内蛋白用于蛋白质印迹分析或收集 RNA 用于 RT-qPCR 分析
- 若需定量病毒滴度(方案第2节),请按上述方法收集ASL。
- 将Transwell小室转移至洁净的24孔板中,因为直接刮取膜可能导致插入物破裂。
- 进行蛋白质印迹分析时,在125 μL RIPA裂解缓冲液(50 mM Tris,pH 8,150 mM NaCl,0.5% 脱氧胆酸钠,0.1% SDS,1% NP40)中收集总蛋白裂解液,并加入蛋白酶抑制剂和磷酸酶抑制剂。
- 向顶端室加入125 μL RIPA缓冲液,孵育5–10分钟。
- 使用P200移液器吸头刮取膜表面,以去除任何残留的贴壁细胞,并收集全部液体(在整个膜表面用力刮擦,然后反复吹打数次以确保完全收集样品)。
- 将蛋白裂解样品置于冰上孵育10分钟,随后在4 °C下以最大速度(20,000 × g)离心10分钟。
- 根据制造商说明书,将上清液与含β-巯基乙醇(还原剂)的4× Laemmli上样缓冲液混合。
- 将蛋白样品在95 °C下煮沸5分钟,然后按照传统的蛋白质印迹实验流程进行电泳和后续操作1,16,17。
- 如需收集总RNA,请选用 commercially available RNA提取试剂盒。
注意:24孔Transwell小室的顶端室最大容积约为200 μL;因此,我们对每份培养物进行两次连续洗涤,以达到推荐的总体积。以下步骤对应于在350 μL总体积中收集RNA样品的操作。 - 向感染后的Transwell小室顶端室加入200 μL裂解缓冲液。
- 静置5–10分钟,用移液器吸头刮下膜上残留的细胞,并将全部液体转移至已标记的微量离心管中。
- 向Transwell小室的顶端室再加入150 μL裂解缓冲液,吹打数次后收集至同一微量离心管中。
- 按照试剂盒制造商提供的说明书提取RNA。
访问受限。请登录或开始试用以查看此内容。
结果
代表性图示部分改编自 Otter 等人论文中可获取的数据1。来自四至六名供体的鼻腔气液界面(ALI)培养物根据上述方案接种四种人冠状病毒之一(SARS-CoV-2、MERS-CoV、HCoV-NL63 和 HCoV-229E),每种病毒的平均顶端释放病毒滴度如图1A所示。尽管这四种人冠状病毒均能在鼻腔ALI培养物中有效复制,但SARS-CoV-2和HCoV-229E的复制效率最高。需注意,此处展示的是平均病毒滴度,各HCoV在个体供体中的病毒滴度数据已近期发表1。在按照方案第3节所述清洗鼻腔ALI培养物后,MERS-CoV在顶端表面液体(ASL)中的滴度与细胞内病毒滴度的比较见图1B。感染后48小时(hpi),MERS-CoV的细胞内病毒滴度与顶端释放的病毒滴度大致相同。
感染后鼻部气液界面(ALI)培养物的免疫荧光成像是一种强大的工具,可用于研究细胞嗜性及其他感染相关...
访问受限。请登录或开始试用以查看此内容。
讨论
本文详细描述了一种原代上皮细胞培养系统,该系统在气液界面条件下培养源自患者的鼻上皮细胞,并用于研究人冠状病毒(HCoV)与宿主之间的相互作用。分化完成后,这些鼻源性气液界面(ALI)培养物可重现人体鼻黏膜上皮的多种特征 体内 鼻腔上皮,包含纤毛细胞、杯状细胞和基底细胞在内的异质性细胞群体,以及具有强烈摆动的纤毛和黏液分泌功能的完整黏膜纤毛系统。这种异质性细胞群体相较于传统呼吸道上皮细胞系,是该培养系统的关键优势,可实现对病毒感染过程中宿主细胞趋向性的表征(如图所示) 图2传统的气道上皮细胞系也缺乏功能性黏膜纤毛清除机制,而该机制与干扰素产生等先天免疫通路共同在抵御呼吸道病毒的初级防御中发挥关键作用。
方案中的关键步骤包括初始感染程序;例如,培养物必须在感染前平衡至所需温度,并且应采用一致的方法启动每次感染。这些步骤对于标准化 方法并确保 后续研究结果的可重复性至关重要。
这些方法中最重要的部分可能是对顶端释放病毒的定量,因为了解每...
访问受限。请登录或开始试用以查看此内容。
披露
Susan Weiss 担任 Ocugen 的科学咨询委员会成员。Noam A. Cohen 为葛兰素史克(GSK)、阿斯利康(AstraZeneca)、诺华(Novartis)、赛诺菲/再生元(Sanofi/Regeneron)和牡蛎点制药公司(Oyster Point Pharmaceuticals)提供咨询,并拥有一项美国专利"呼吸道感染的治疗与诊断"(10,881,698 B2,WO20913112865),以及与 GeneOne 生命科学公司的一项许可协议。
致谢
本研究的资助来源如下:美国国立卫生研究院(NIH)R01AI 169537(S.R.W. 和 N.A.C.),NIH R01AI 140442(S.R.W.),退伍军人事务部杰出研究奖 CX001717(N.A.C.),退伍军人事务部杰出研究奖 BX005432(S.R.W. 和 N.A.C.), 宾夕法尼亚大学冠状病毒及其他新发病原体研究中心(S.R.W.),Laffey-McHugh 基金会(S.R.W. 和 N.A.C.),T32 AI055400(CJO),T32 AI007324(AF)。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Alexa Fluor 二抗(488、594、647) | Invitrogen | Various | |
| BSA(牛血清白蛋白) | Sigma-Aldrich | A7906 | |
| cOmplete mini EDTA-free 蛋白酶抑制剂 | Roche | 11836170001 | |
| 细胞毒性检测试剂盒 | Roche | 11644793001 | |
| DMEM(杜尔贝科改良伊格尔培养基) | Gibco | 11965-084 | |
| DPBS(杜尔贝科磷酸盐缓冲液) | Gibco | 14190136 | |
| DPBS + 钙 + 镁 | Gibco | 14040-117 | |
| Endohm-6G 测量室 | World Precision Instruments | ENDOHM-6G | |
| 上皮细胞黏附分子标记物(EpCAM;CD326) | eBiosciences | 14-9326-82 | |
| 上皮细胞伏特/欧姆(TEER)测量仪(EVOM) | World Precision Instruments | 300523 | |
| FBS(胎牛血清) | HyClone | SH30071.03 | |
| 成像用 FV10-ASW 软件 | Olympus | Version 4.02 | |
| HCoV-NL63(人冠状病毒 NL63) | BEI Resources | NR-470 | |
| HCoV-NL63 核衣壳抗体 | Sino Biological | 40641-V07E | |
| Hoescht 染色剂 | Thermo Fisher | H3570 | |
| Laemmli 样品缓冲液(4x) | BIO-RAD | 1610747 | |
| LLC-MK2 细胞 | ATCC | CCL-7 | 用于滴定 HCoV-NL63 |
| MERS-CoV(人冠状病毒,中东呼吸综合征冠状病毒(MERS-CoV),EMC/2012) | BEI Resources | NR-44260 | |
| MERS-CoV 核衣壳抗体 | Sino Biological | 40068-MM10 | |
| MUC5AC 抗体 | Sigma-Aldrich | AMAB91539 | |
| Olympus Fluoview 共聚焦显微镜 | Olympus | FV1000 | |
| Phalloidin-iFluor 647 染色剂 | Abcam | ab176759 | |
| PhosStop easy pack(磷酸酶抑制剂) | Roche | PHOSS-RO | |
| 酶标仪 | Perkin Elmer | HH34000000 | 任何酶标仪或 ELISA 读板仪均可;必须能够读取 492 nm 处的吸光度 |
| RIPA 裂解缓冲液(50 mM Tris pH 8;150 mM NaCl;0.5% 脱氧胆酸钠;0.1% SDS;1% NP40) | Thermo Fisher | 89990 | 可自行配制或购买 |
| RNeasy Plus 试剂盒 | Qiagen | 74134 | |
| SARS-CoV-2(SARS 相关冠状病毒 2,分离株 USA-WA1/2020) | BEI Resources | NR-52281 | |
| SARS-CoV-2 核衣壳抗体 | Genetex | GTX135357 | |
| Triton-X 100 | Fisher Scientific | BP151100 | |
| Type IV β-微管蛋白抗体 | Abcam | ab11315 | |
| VeroCCL81 细胞 | ATCC | CCL-81 | 用于滴定 MERS-CoV |
| VeroE6 细胞 | ATCC | CRL-1586 | 用于滴定 SARS-CoV-2 |
参考文献
- Otter, C. J., et al. Infection of primary nasal epithelial cells differentiates among lethal and seasonal human coronaviruses. Proceedings of the National Academy of Sciences of the United States of America. 120 (15), 2218083120(2023).
- Fehr, A., Perlman, S. Coronaviruses: An overview of their replication and pathogenesis. Methods in Molecular Biology. 1282, 1-23 (2015).
- Gaunt, E. R., Hardie, A., Claas, E. C. J., Simmonds, P., Templeton, K. E. Epidemiology and clinical presentations of the four human coronaviruses 229E, HKU1, NL63, and OC43 detected over 3 years using a novel multiplex real-time PCR method. Journal of Clinical Microbiology. 48 (8), 2940-2947 (2010).
- Kesheh, M. M., Hosseini, P., Soltani, S., Zandi, M. An overview on the seven pathogenic human coronaviruses. Reviews in Medical Virology. 32 (2), 2282(2022).
- MERS-CoV Worldwide Overview. European Centre for Disease Prevention and Control. , Available from: https://www.ecdc.europa.eu/en/middle-east-respiratory-syndrome-coronavirus-mers-cov-situation-update (2022).
- MERS Situation Update. World Health Organization Regional Office for the Eastern Mediterranean. , Available from: http://www.emro.who.int/health-topics/mers-cov/mers-outbreaks.html (2022).
- Cao, Y., Liu, X., Xiong, L., Cai, K. Imaging and clinical features of patients with 2019 novel coronavirus SARS-CoV-2: A systematic review and meta-analysis. Journal of Medical Virology. 92 (9), 1449-1459 (2020).
- Vareille, M., Kieninger, E., Edwards, M. R., Regamey, N. The airway epithelium: Soldier in the fight against respiratory viruses. Clinical Microbiology Reviews. 24 (1), 210-229 (2011).
- Farzal, Z., et al. Comparative study of simulated nebulized and spray particle deposition in chronic rhinosinusitis patients. International Forum of Allergy and Rhinology. 9 (7), 746-758 (2019).
- Gaeckle, N. T., Pragman, A. A., Pendleton, K. M., Baldomero, A. K., Criner, G. J. The oral-lung axis: The impact of oral health on lung health. Respiratory Care. 65 (8), 1211-1220 (2020).
- Hou, Y., et al. SARS-CoV-2 reverse genetics reveals a variable infection gradient in the respiratory tract. Cell. 182, 429-446 (2020).
- Hariri, B. M., Cohen, N. A. New insights into upper airway innate immunity. American Journal of Rhinology and Allergy. 30 (5), 319-323 (2016).
- Hiemstra, P. S., McCray, P. B., Bals, R. The innate immune function of airway epithelial cells in inflammatory lung disease. European Respiratory Journal. 45 (4), 1150-1162 (2015).
- Hatton, C. F., et al. Delayed induction of type I and III interferons mediates nasal epithelial cell permissiveness to SARS-CoV-2. Nature Communications. 12 (1), 7092(2021).
- Sungnak, W., et al. SARS-CoV-2 entry factors are highly expressed in nasal epithelial cells together with innate immune genes. Nature Medicine. 26 (5), 681-687 (2020).
- Li, Y., et al. SARS-CoV-2 induces double-stranded RNA-mediated innate immune responses in respiratory epithelial-derived cells and cardiomyocytes. Proceedings of the National Academy of Sciences of the United States of America. 118 (16), 2022643118(2021).
- Comar, C. E., et al. MERS-CoV endoribonuclease and accessory proteins jointly evade host innate immunity during infection of lung and nasal epithelial cells. Proceedings of the National Academy of Sciences of the United States of America. 119 (21), 2123208119(2022).
- Lee, R. J., et al. Bacterial D-amino acids suppress sinonasal innate immunity through sweet taste receptors in solitary chemosensory cells. Science Signaling. 10 (495), (2017).
- Brewington, J. J., et al. Brushed nasal epithelial cells are a surrogate for bronchial epithelial CFTR studies. JCI Insight. 3 (13), 99385(2018).
- Comer, D. M., Elborn, J. S., Ennis, M. Comparison of nasal and bronchial epithelial cells obtained from patients with COPD. PLoS One. 7 (3), e32924(2012).
- Vanders, R. L., Hsu, A., Gibson, P. G., Murphy, V. E., Wark, P. A. B. Nasal epithelial cells to assess in vitro immune responses to respiratory virus infection in pregnant women with asthma. Respiratory Research. 20 (1), 259(2019).
- Lee, R. J., et al. Fungal aflatoxins reduce respiratory mucosal ciliary function. Scientific Reports. 6, 33221(2016).
- Patel, N. N., et al. Fungal extracts stimulate solitary chemosensory cell expansion in noninvasive fungal rhinosinusitis. International Forum of Allergy and Rhinology. 9 (7), 730-737 (2019).
- Baer, A., Kehn-Hall, K. Viral concentration determination through plaque assays: Using traditional and novel overlay systems. Journal of Visualized Experiments. 93 (93), e52065(2014).
- Robinot, R., et al. SARS-CoV-2 infection induces the dedifferentiation of multiciliated cells and impairs mucociliary clearance. Nature Communications. 12 (1), 4354(2021).
- Whitsett, J. A. Airway epithelial differentiation and mucociliary clearance. Annals of the American Thoracic Society. 15, S143-S148 (2018).
- Gao, N., Raduka, A., Rezaee, F. Respiratory syncytial virus disrupts the airway epithelial barrier by decreasing cortactin and destabilizing F-actin. Journal of Cell Science. 135 (16), 259871(2022).
- Schmidt, H., et al. IL-13 impairs tight junctions in airway epithelia. International Journal of Molecular Sciences. 20 (13), 3222(2019).
- Huang, Z. Q., et al. Interleukin-13 alters tight junction proteins expression thereby compromising barrier function and dampens rhinovirus induced immune responses in nasal epithelium. Frontiers in Cell and Developmental Biology. 8, 572749(2020).
- Saatian, B., et al. Interleukin-4 and interleukin-13 cause barrier dysfunction in human airway epithelial cells. Tissue Barriers. 1 (2), e24333(2013).
- Coles, J. L., et al. A revised protocol for culture of airway epithelial cells as a diagnostic tool for primary ciliary dyskinesia. Journal of Clinical Medicine. 9 (11), 3753(2020).
- Baldassi, D., Gabold, B., Merkel, O. M. Air−liquid interface cultures of the healthy and diseased human respiratory tract: Promises, challenges, and future directions. Advanced NanoBiomed Research. 1 (6), 2000111(2021).
- Seibold, M. A. Interleukin-13 stimulation reveals the cellular and functional plasticity of the airway epithelium. Annals of the American Thoracic Society. 15, S98-S106 (2018).
- Morrison, C. B., et al. SARS-CoV-2 infection of airway cells causes intense viral and cell shedding, two spreading mechanisms affected by IL-13. Proceedings of the National Academy of Sciences of the United States of America. 119 (16), 2119680119(2022).
访问受限。请登录或开始试用以查看此内容。
重印与许可
