本实验方案描述了对感染了自然寄生虫Heligmosomoides polygyrus的小鼠离体肠道进行NAD(P)H荧光寿命成像的方法,该方法可实现对宿主和寄生虫组织中代谢过程的空间分辨研究。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
寄生虫通常对宿主的健康具有负面影响。由于寄生虫在全球范围内长期影响受感染人类或动物的健康,因此构成了巨大的健康负担,并进而影响农业及社会经济成果。然而,已有研究描述了寄生虫驱动的免疫调节效应,这些效应在自身免疫性疾病的治疗中可能具有潜在应用价值。尽管宿主与寄生虫的代谢过程均参与防御反应,并构成线虫在肠道内存活的基础,但由于缺乏适当的技术手段,该领域仍长期缺乏深入研究。我们开发并应用了NAD(P)H荧光寿命成像技术,对小鼠肠道组织在自然感染线虫Heligmosomoides polygyrus期间的代谢过程进行研究,实现了对宿主与寄生虫代谢活动的空间分辨分析。该方法利用辅酶烟酰胺腺嘌呤二核苷酸(NADH)和烟酰胺腺嘌呤二核苷酸磷酸(NADPH)——统称为NAD(P)H——的荧光寿命特性,这些辅酶在不同物种间高度保守,其荧光寿命依赖于它们与催化代谢反应的酶之间的结合状态及结合位点。通过聚焦于表达量最高的NAD(P)H依赖性酶类,我们区分了与无氧糖酵解、氧化磷酸化/有氧糖酵解以及以NOX介导的氧化爆发(一种主要防御机制)相关的代谢通路,并表征了感染过程中宿主与寄生虫之间的代谢交互作用。
引言
寄生虫感染对人类健康造成巨大负担1,2在工业国家中,已观察到自身免疫性疾病发病率上升与寄生虫感染率下降之间存在相关性。已知寄生虫可通过抑制宿主过度的免疫反应而产生有益作用。 H. polygyrus 是一种在啮齿类动物肠道中发现的天然寄生虫,该寄生虫可诱导免疫调节机制,从而降低宿主的抗寄生虫免疫反应 通过,以及其他机制,包括在感染宿主中诱导调节性T细胞(Treg)3,4,5,6,7,8,9,10,11这些调控机制在退行性自身免疫性疾病中尤其受到关注。
尽管代谢在宿主和寄生虫的防御、生存与功能中均发挥重要作用,宿主与肠道线虫之间的代谢互作分析仍长期被忽视。我们拟采用并应用双光子激发下的NADH和NADPH荧光寿命成像技术——该技术已在哺乳动物细胞和组织的多种生理及病理生理条件下得到广泛应用12——以对活体组织中宿主与线虫的代谢活动进行关联性研究。
NADH 和 NADPH 被统称为 NAD(P)H,是存在于所有细胞生命形式中的普遍分子,在多种代谢途径中发挥辅酶的作用。例如,它们参与能量生成、还原性生物合成以及由 NADPH 氧化酶介导的活性氧(ROS)生成,这些过程主要与细胞防御和细胞间通讯相关13,14,15,16,17,20。这两种辅酶在 750 nm 的双光子激发下均能在约 450 nm 处发射荧光,从而实现无需标记的细胞和组织代谢成像19,21。由于 NADH 和 NADPH 具有相似且较宽的双光子激发光谱,因此可以使用单一波长同时激发这两种分子21。
辅酶NAD(P)H的荧光寿命直接取决于其结合的酶18,21,22,23。由于其化学结构允许分子内能量转移,激发态的NADH或NADPH分子在弛豫并发射荧光光子之前,会通过内转换过程以依赖于其与酶(催化剂)结合特性的速率损失能量。该寿命可揭示NAD(P)H在酶上的结合位点,从而反映正在发生的优势生化反应19,21,22,23,24,25。游离NADH和NADPH分子的荧光寿命约为450 ps,而当其与酶结合后,荧光寿命显著延长(约2,000 ps),并取决于其在相应酶上的结合位点21。
有超过370种酶参与NAD(P)H相关的生化过程;然而,只有丰度最高的酶才能在显微镜的激发范围内对最终的NAD(P)H荧光寿命产生显著贡献。利用哺乳动物细胞的RNA测序(RNASeq)数据,我们鉴定了最丰富的NAD(P)H依赖性酶,并建立了荧光寿命参考标准,用于解读组织和细胞样本中获得的数据18。因此,本研究能够区分例如乳酸脱氢酶(LDH)的优先活性——该酶与无氧糖酵解代谢途径相关,以及异柠檬酸脱氢酶(IDH)和丙酮酸脱氢酶(PDH)的活性——它们主要参与有氧糖酵解/氧化磷酸化代谢途径16,20。此外,由于NADPH氧化酶在细胞中具有特征性的定位(膜结合),且NADPH与其结合后表现出特别长的荧光寿命(3,650 ps),因此可清晰分辨NADPH与NADPH氧化酶的结合状态18,24,29,30,32。来自H. polygyrus的RNASeq数据显示,为哺乳动物细胞建立的这一参考标准经适当调整后同样适用于该线虫27。
因此,在本研究中,通过对感染了H. polygyrus的小鼠新鲜离体十二指肠样本进行NAD(P)H荧光寿命成像(FLIM),获得了关于游离态与酶结合态NAD(P)H比例的信息,该比例反映了所有组织中的总体代谢活性,以及图像中每个像素点主要活跃的酶(即在特定位置NAD(P)H优先结合的酶)。这些实验的成功依赖于离体肠道样本的精确制备、亚细胞分辨率下NAD(P)H荧光寿命的可靠活体成像,以及标准化的数据分析,这些内容将在本方案中详细讨论。
访问受限。请登录或开始试用以查看此内容。
方案
所有实验均遵循国家动物保护指南,并经德国动物伦理委员会(批准号:G0176/16 和 G0207/19)批准。本方案描述了NAD(P)H荧光寿命成像的数据采集与数据分析方法,可用于评估宿主肠道及寄生虫在感染自然鼠类肠道线虫H. polygyrus后的一般代谢活性和特定代谢通路。为此,使用10至12周龄的雌性C57BL/6小鼠,每只感染200条三期幼虫(L3)。在感染后的不同时间点处死感染小鼠,取出十二指肠并按先前所述方法进行成像制备33。未感染的、年龄和性别相匹配的小鼠的十二指肠也以相同方式制备并成像,作为对照。为了维持组织适用于后续成像和分析所需的特性,样本在离体后必须立即处理,后续步骤(步骤1.1–1.7)需迅速完成(图1B)。
1. 样品制备
- 从最初切除的十二指肠中切取长约 ~1 cm 的组织片段。
- 使用快速固化组织胶将拉直的组织管粘附在小型培养皿中央(直径 47 mm,边缘高度 10 mm,参见 材料表)(图 1A2)。
- 用微刷在组织周围培养皿底部大面积涂布一层薄薄的额外胶水(图 1A2)。
- 使用钝头剪刀沿固定于培养皿底部的肠段全长进行切开(图 1A3)。
- 用钝头镊子将肠组织展开,使其浆膜面完全贴附于胶水表面,从而使肠段以黏膜面向上的方式被胶水固定(图 1A4)。
- 若为感染小鼠,需在体视显微镜下(放大倍数 10x)计数寄生虫数量,以确认感染成功(图 1A5)。
- 用琼脂糖密封肠组织,防止其干燥。本实验采用 0.5%–0.9% 琼脂糖,因其熔点较低(约 38 °C),可避免对敏感的肠组织造成热损伤。吸取 1 mL 琼脂糖溶液至移液器中,小心地将琼脂糖滴加至肠组织表面,使移液器尖端轻触组织,形成一层厚度约为 0.5 mm 的完整包被层(图 1A6)。
- 向已用琼脂糖密封的样品培养皿中加入室温 PBS(10%),盖上皿盖。样品可立即进行成像,或置于隔热箱内的冰上暂存待测。将最先准备好的样品放置于预热至 37 °C 的加热板上,并置于显微镜物镜下方(图 1A8)。
2. 成像
注意:用于对感染和健康十二指肠组织样本进行NAD(P)H-FLIM检测的显微镜系统由图2及材料表中列出并描述的设备组成。所有模块均使用ImSpector 208作为控制软件。
- 为初步定位感兴趣区域(ROI),将样品置于培养皿中,并将其放置在物镜下,通过手动沿x轴和y轴移动,利用宽场荧光显微成像模式进行目视观察,以找到合适的ROI。
- 在软件中切换成像系统至双光子激发模式,选择光电倍增管(PMT)检测或时间相关单光子计数(TCSPC)检测。需特别注意确保环境黑暗且无振动,用遮光帘将显微镜完全封闭,并尽可能使用气浮式隔振光学平台。
- 通过点击软件中的lens-system图标并滚动鼠标滚轮调节z轴位置,使用控制软件将物镜浸入含有样品的培养皿中。
- 将激光器调至765 nm,并在软件的波长设置面板中输入目标波长,将最大激光功率设为10%,对应物镜下输出功率为30 mW。根据需要调整激光功率。检测时增益应低于40%(约30 mW至100 mW),以避免组织光损伤及非预期的代谢变化。
- 在软件中将z轴步进尺寸设为2 µm,该值对应显微镜在765 nm波长下对组织成像时的轴向分辨率。
- 在振镜控制面板中将行扫描频率设为400 Hz,得到像素驻留时间为4.95 µs。
- 在软件的下拉菜单中选择图像平均次数为2至4次(即对ROI扫描2至4遍以获得更平滑的图像)。由此可将总像素驻留时间延长至9.9–19.8 µs,有利于在分析过程中提高信噪比(SNR)。
- 在软件的视场(FOV)设置面板中选择参数,将成像视场设为505像素 × 505像素(500 × 500 µm²)。
- 每次测量前,需提前校准模块时间,以确保TCSPC电子系统的最佳性能:在硬件菜单的TCSPC校准窗口中点击initialize按钮进行初始化。
- 使用快速示波器对外部快响应光电二极管进行调节,以检测钛蓝宝石(Ti:Sa)激光脉冲序列。
注:光电二极管信号用于相对于激发脉冲触发混合光电倍增管(hPMT)检测及TCSPC的光子计数。检测每12.5 ns重复一次(即两个连续激光脉冲之间的时间),对应Ti:Sa激光器的重复频率(80 MHz)。 - 首先将平均次数设为1,激光功率增益设为约10%,然后启动视频模式(点击video按钮),再次点击lens system图标,并通过鼠标滚轮逐步深入样品,同时逐步提高增益,以确定可获取信号的测量深度范围。
- 对于以FLIM模式测量的组织样品NAD(P)H-FLIM图像,将系统设置为765 nm,最大标称功率为100 mW。使用混合光电倍增管(hPMT)在97%增益下检测NAD(P)H的荧光信号(466/60 nm),该增益值在软件中设定。TCSPC模块在227个时间窗口(bin)内进行光子计数,每个窗口为55 ps。
- 在软件中测量过程中,右键点击displayed image,选择display > T-PROFILE,以可视化系统采集的衰减曲线。
- 记录衰减曲线中激光脉冲前的bin数量,供后续分析使用。
- 点击start measurement开始采集数据。
注:数据必须符合特定格式。每个在任意组织深度记录的切片间隔2 µm,面积为500 µm × 500 µm,切片以500 µm × 500 µm的堆栈形式采集,时间点为227 × 55 ps(图3A)。每个体素包含一个在x-y平面空间分辨的光子到达时间直方图,代表荧光衰减过程(图3B)。典型的测量体积应为超堆栈形式,尺寸约为500 µm × 500 µm × 100–300 µm,包含227个bin,其中z平面的每一层均包含上述时间依赖的强度数据。以一组典型测量数据为例,其数据量为(505 × 505 × 227) × 100像素(16位),约占用4 GB存储空间。
3. 数据分析
注意:对于 NAD(P)H-FLIM 图像的相量分析,计算寿命的程序是用 Python 编写的自定义代码33。
- 在 Spyder 集成开发环境(IDE)中使用 Anaconda 及其 Python 3.7 版本(参见 材料表)。该代码使用 Python 的标准库。
- 将代码加载到集成开发环境(IDE)中并执行,此时会打开一个文件路径对话框。
- 选择包含待分析原始数据的文件夹。该代码通过 Tkinter 用户输入对话框(包含复选框、下拉菜单和文本字段)在分析前设置三个参数。
- 在输入对话框中选择一个偏移量。将偏移量确定为时间序列中未被分析的前若干切片的数量。
注意:该参数用于截取激发脉冲之前的时间点。根据系统校准和触发二极管的情况,此值应约为五个切片,或如步骤2.14所述,在激光激发前的无效数据箱数。 - 在输入对话框的下拉菜单中选择相量图的表示方式。在此处,从下拉菜单中选择数据点的显示形式(云状或地形图状),以及半圆时间轴的坐标刻度(酶作用或时间 [ps])。
- 点击 好的.
- 检查代码是否从NAD(P)H-FLIM z层扫描数据中计算出两种类型的信息。
- 首先,通过将227个时间分辨光子计数直方图的TCSPC数据堆栈坍缩,测量每个体积切片的空间信息,从而投影得到单个切片,称为强度投影图像(intensity projection image)图3G),以及基于指数衰减曲线的傅里叶分析(如Leben等18所述),并从每个体层切片中每个像素的归一化实部和虚部(图3C).
- 从实部图像和虚部图像中获取相位图(phasor plots)图3D)以及平均荧光寿命(t)图像(以颜色编码,表示每个体素的空间分辨平均衰减常数)(图3E).
注意:如引言所述,当NAD(P)H与酶结合时,其荧光寿命由辅酶与相应酶的结合位点决定。 - 通过生成每个像素的相位矢量与游离NAD(P)H相位矢量之间的矢量,并将其投影到phasor图的半圆上,确定各酶对代谢活性的贡献。该半圆代表纯化合物中荧光寿命所有可能的单指数衰减。
- 利用先前生成的与最丰富的NAD(P)H依赖性酶结合的NAD(P)H荧光寿命参考值18,33 (补充图1),并计算这些酶被激活的概率。
注意:每个像素被赋予最主导酶(即计算出的激活概率最高的酶)的颜色编码,从而生成一张酶图谱图3F).
- 根据游离(未结合)NAD(P)H与酶结合NAD(P)H的比值,特别是从相量图中游离NAD(P)H在450 ps处与酶结合态之间的矢量比值,计算总体代谢活性,以0%(仅游离NAD(P)H)至100%(仅酶结合NAD(P)H)的百分比表示。通过为每个像素赋予一个代谢活性值(0%–100%),生成一幅(伪彩)活性图图3F).
- 将所得图谱与强度图像叠加,以获取额外的形态学信息。此处使用 ImageJ 宏(参见 材料表将酶或活性图的色调和饱和度与强度图像的亮度进行叠加。
- 确保该宏对整个图像栈进行迭代。对于图像栈中的每一层(深度),必须将强度图像和选定的图谱分别拆分为色调(HUE)、饱和度(SATURATION)和亮度(BRIGHTNESS)图像 > 类型 > HSB 叠层).
- 分离HSB堆栈的主通道(图像 > 堆叠 > 图像堆叠).
- 关闭强度图像栈的色相(HUE)和饱和度(SATURATION),以及图谱图像栈的亮度(BRIGHTNESS)(close(slicename_HUE),close(slicename_BRIGHTNESS),...)。
- 将剩余的通道重新组合,形成一个新的 HSB 图像栈,其中色相(HUE)和饱和度(SATURATION)来自目标图谱的切片,亮度(BRIGHTNESS)来自强度图像图像 > 堆叠 > 图像堆叠).
- 将图像类型更改为 RGB 以获得更好的视觉效果(图像 > 类型 > RGB 颜色).
4. 组织分割
注意:分别使用预训练的基于 U-Net 的网络(ILASTIK,参见材料表)对宿主肠道和线虫组织进行分割,并进一步分割宿主中的上皮层和固有层,以及线虫中高 NAD(P)H 荧光信号区域和低 NAD(P)H 荧光信号区域。
- 打开 ILASTIK,选择新建项目并进行像素分类。
- 通过点击 添加新项 > 添加独立图像,加载步骤 3.7.1 中已计算出的强度投影图像。将多个测量结果中的随机切片加载到容器中。
- 点击 特征选择 > 选择特征。添加一个 σ 值为 50(无单位权重),并勾选所有特征以激活它们。
注意:σ 值决定特征的权重,而特征本身则决定分类类别以及网络识别边缘、形状、纹理或颜色的能力。 - 点击 训练,通过点击标签并根据待分割的组织类型命名标签(例如 Epithelium、Background 等)。选择一个标签,并对图像中对应于该标签的所有像素进行着色。
- 对其他标签重复此操作。
- 对加载数据集中约一半的图像重复上述操作。
- 点击 实时更新,让模型对剩余未标记图像进行标签预测。
- 通过重新标记仅由模型预测且存在错误估计的分割区域,修正约一半的预测图像,然后再次执行 实时更新。
- 重复此步骤,直到网络能够正确识别目标组织;确保网络在左侧靠近标签名称处显示的置信度在 95% 至 98% 之间。
- 按照步骤 3.11 所述方法加载新的数据集,此次加载单次测量的所有切片,然后点击 预测导出。
- 在“源下拉”菜单中选择 简单分割;在“格式”中选择输出为 tiff 格式;在“选择导出图像设置”中,选择输出的 保存路径。点击 导出。
- 这将为目标组织类型生成二值掩膜。由于这些掩膜由切片组成,其中目标组织的像素值为 1,其余区域像素值为 0(图 3H),因此只需将二值掩膜与步骤 1.1 及步骤 1.4–1.7 中生成的数据相乘即可得到掩膜化数据(图 3 I, J, M)。此步骤可使用 ImageJ 完成(Process > Image calculator > multiply)。
- 对每个体积切片,基于掩膜化强度图像计算信噪比(SNR)。为此可使用 ImageJ 宏。编写程序,使其从已分割并掩膜化的图像中计算信噪比(SNR)。
- 使用步骤 3.21 中分割出的背景作为背景(BG),使用目标组织作为信号(SIG),通过双层嵌套 for 循环遍历每个切片中所有像素值大于 0 的像素。使用以下公式33计算 SNR:
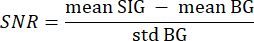
其中 mean SIG 表示信号直方图的均值,mean BG 表示背景直方图的均值,std BG 表示背景直方图的标准差。 - 将 SNR 值低于 5 的体积切片从后续分析中剔除。
- 使用步骤 3.21 中分割出的背景作为背景(BG),使用目标组织作为信号(SIG),通过双层嵌套 for 循环遍历每个切片中所有像素值大于 0 的像素。使用以下公式33计算 SNR:
- 使用 Python 脚本18,33,通过对每种组织类型的酶图按切片求和并取平均值,再将其归一化至 100 µm³ 组织体积,生成酶频率图(图 3K, N)。
- 编写脚本以加载掩膜化的酶图。
- 遍历每个像素,计算相同酶的像素总和,然后除以分析的体积(所有像素的总和)。
- 将计算出的酶丰度按其代谢状态分组,并通过除以每组中酶的数量进行平均。编写代码,将围绕 LDH 的酶活性归为类似无氧糖酵解通路,将围绕 PDH/IDH/GAPDH 的酶活性归为类似有氧糖酵解/氧化磷酸化通路,将 NADPH 氧化酶活性(NOX 活性)归为用于防御的氧化爆发/氧化应激(图 3L, O)。
- 使用 Python 的 matplotlib 库通过箱线图可视化数据。
- 基于掩膜化的活性图(图 3F),使用 ImageJ 宏运行 Analyze > Measure,计算组织活性:对每个体积切片中所有像素值大于 0 的像素取其平均值。
- 使用 ImageJ/FIJI 将所有生成的图像并排可视化。
访问受限。请登录或开始试用以查看此内容。
结果
采用现有的NAD(P)H-FLIM方法28,29,33,并结合所述的相位图分析方法,对小鼠感染肠道线虫H. polygyrus后第6天、第10天、第12天和第14天的健康及感染十二指肠组织中的代谢活性与代谢通路进行了测量。
离体十二指肠中通过NAD(P)H-FLIM揭示的肠道组织活性保存
为了研究组织活性 离体 并确定离体组织样本与活体内的组织相比,其代谢活性可维持多长时间,对健康小鼠的离体十二指肠组织进行了NAD(P)H-FLIM检测,组织样本分为两种情况:(i) 刚切除的新鲜组织,或 (ii) 切除后置于冰上保存3小时的组织,并将结果与已发表的在麻醉小鼠肠道内获取的NAD(P)H-FLIM数据进行比较32切除的十二指肠制备及成像实验按照样本制备方案(步骤1)所述进行。<...
访问受限。请登录或开始试用以查看此内容。
讨论
实验方案中的关键步骤在于样本制备和感兴趣区域(ROI)的选取。部分消化的食物纤维对成像构成挑战,主要原因是纤维自身的内源性发光会与NAD(P)H荧光信号重叠,同时也因其产生谐波生成信号。因此,寻找不含粪便成分的ROI至关重要。我们力求避免在含有粪便的区域进行测量。未进行冲洗操作,因其可能破坏脆弱绒毛的完整性,并影响黏液的黏稠度。此外,整个制备过程建议每份样本控制在5–10分钟内完成,以防止组织退化和干燥。同时,所用低浓度琼脂糖可模拟肠道黏液的黏滞特性34因此,可确保在测量过程中绒毛不会塌陷,同时蠕虫能够自由移动。测量时间不得超过45分钟(图1A,B 和 图1A,B,C) 以保持细胞代谢成像的最佳条件。因此,感兴趣区域(ROI)的搜索不应超过15分钟。然而,为确保置于冰上的组织在加热板上充分升温至所需的37 °C,应在放置约10分钟后开始成像。成像通常持续45分钟(参见时间...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明不存在竞争性财务利益。
致谢
感谢 Robert Günther 提供出色的技术支持。衷心感谢德国研究基金会(DFG)提供的经费支持,包括项目号 SPP2332 HA2542/12-1(S.H.)、NI1167/7-1(R.A.N.)、HA5354/11-1(A.E.H.)和 RA2544/1-1(S.R.);SFB1444 项目 P14(R.A.N.、A.E.H.);HA5354/8-2(A.E.H.);GRK2046 项目 B4 和 B5(S.H.、S.R.)以及 HA2542/8-1(S.H.)。W.L. 获得了柏林应用技术大学应用科学学院(柏林)医学物理/物理工程专业的博士奖学金。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂糖 | Thermo fisher | J32802.22 | 超纯 |
| 钝头剪刀 | FST fine science tools | 14108-09 | 钝-钝 14 cm |
| Bodipy c12 | thermo fisher | D3822 | 1 mg 固体 |
| 控制单元,二极管,TCSPC | LaVision Biontech | 定制 | TrimScope II |
| DMSO | Thermo fisher | D12345 | 3 mL |
| 滤光片 | Chroma | 755 | 466 ± 20, 525 ± 25, 593 ± 20, 655 ± 20 nm |
| 手术铺巾 | Hartmann | 277500 | |
| 手套 | Sigma-Aldrich | Z423262 | 腈类 |
| 卤素光源 | Leica | 该产品已停产,不再供应 | KL 1500 LCD |
| hPMT | Hamamatsu, Germany | H7422 | GaAsP |
| Ilastik | Netlify | 免费软件 | Java 后端 |
| ImageJ | 美国国立卫生研究院 | 免费软件 | FIJI - 标准插件 |
| Imspector | LaVision Biontech | - | 版本 208 |
| 活体成像载物台 | LaVision Biontech | 定制 | TrimScope II |
| 20倍物镜系统 | Zeiss | 定制 | W-plan-apochom 20x 水浸 NA 1.05 |
| 汞蒸气光源 | LaVision Biontech | 定制 | |
| 微型刷 | Fisher scientific | 22-020-002 | 85 mm |
| 显微镜 | LaVision Biontech | 定制 | TrimScope II |
| 示波器 | Rhode & Schwarz | 1326.2000.22 | |
| PBS | Sigma-Aldrich | AM9624 | 0.5 L |
| 培养皿 | Sigma aldrich | P5606 | 40 x 15 mm |
| 移液器 | thermo fisher | 4651280N | 单通道移液器 |
| 移液器吸头 | thermo fisher | 94056980 | 带滤芯吸头 |
| PMT | Hamamatsu, Japan | H7422 | GaAsP |
| Python | Python Software foundation | 免费软件 | Anaconda 3.7 Spyder IDE,含 KYTE 的标准库 |
| 体视显微镜 | Leica | 该产品已停产,不再供应 | M26,6.3x 变焦 |
| Ti:Sa 激光器 CHAMELION ULTRA II | Coherent, APE | - | 690-1080 nm 可调,80MHz |
| 组织胶 | 3M | 51115053603 | 3 mL |
| 镊子 | FST fine science tools | 11049-10 | 钝头,格拉夫式,弯角 |
| 镊子 | FST fine science tools | 91197-00 | Dumont,弯曲 |
参考文献
- Hotez, P. J., Fenwick, A., Savioli, L., Molyneux, D. H. Rescuing the bottom billion through control of neglected tropical diseases. Lancet. 373 (9674), 1570-1575 (2009).
- Sartorius, B., et al. Prevalence and intensity of soil-transmitted helminth infections of children in sub-Saharan Africa, 2000-18: A geospatial analysis. The Lancet Global Health. 9 (1), e52-e60 (2021).
- Affinass, N., et al. Manipulation of the balance between Th2 and Th2/1 hybrid cells affects parasite nematode fitness in mice. European Journal of Immunology. 48 (12), 1958-1964 (2018).
- Hartmann, S., et al. Gastrointestinal nematode infection interferes with experimental allergic airway inflammation but not atopic dermatitis. Clinical & Experimental Allergy. 39 (10), 1585-1596 (2009).
- Hepworth, M. R., et al. Mast cells orchestrate type 2 immunity to helminths through regulation of tissue-derived cytokines. Proceedings of the National Academy of Sciences of the United States of America. 109 (17), 6644-6649 (2012).
- Rausch, S., et al. Establishment of nematode infection despite increased Th2 responses and immunopathology after selective depletion of Foxp3+ cells. European Journal of Immunology. 39 (11), 3066-3077 (2009).
- Rausch, S., et al. Parasitic nematodes exert antimicrobial activity and benefit from microbiota-driven support for host immune regulation. Frontiers in Immunology. 9, 2282(2018).
- Steinfelder, S., Rausch, S., Michael, D., Kuhl, A. A., Hartmann, S. Intestinal helminth infection induces highly functional resident memory CD4(+) T cells in mice. European Journal of Immunology. 47 (2), 353-363 (2017).
- Whelan, R. A., et al. A transgenic probiotic secreting a parasite immunomodulator for site-directed treatment of gut inflammation. Molecular Therapy. 22 (10), 1730-1740 (2014).
- Ziegler, T., et al. A novel regulatory macrophage induced by a helminth molecule instructs IL-10 in CD4+ T cells and protects against mucosal inflammation. The Journal of Immunology. 194 (4), 1555-1564 (2015).
- Grantham, B. D., Barrett, J. Amino acid catabolism in the nematodes Heligmosomoides polygyrus and Panagrellus redivivus. 2. Metabolism of the carbon skeleton. Parasitology. 93 (Pt 3), 495-504 (1986).
- Dmitriev, R. I., Intes, X., Barroso, M. M. Luminescence lifetime imaging of three-dimensional biological objects. Journal of Cell Science. 134 (9), 1-17 (2021).
- Mossakowski, A., et al. Tracking CNS and systemic sources of oxidative stress during the course of chronic neuroinflammation. Acta Neuropathologica. 130 (6), 799-814 (2015).
- Qian, T., et al. Label-free imaging for quality control of cardiomyocyte differentiation. Nature Communications. 12, 4580(2021).
- Bayerl, S., et al. Time lapse in vivo microscopy reveals distinct dynamics of microglia-tumor environment interactions-a new role for the tumor perivascular space as highway for trafficking microglia. Glia. 64 (7), 1210-1226 (2016).
- Skala, M. C., et al. In vivo multiphoton microscopy of NADH and FAD redox states, fluorescence lifetimes, and cellular morphology in precancerous epithelia. Proceedings of the National Academy of Sciences of the United States of America. 104 (49), 19494-19499 (2007).
- Skala, M. C., et al. Multiphoton microscopy of endogenous fluorescence differentiates normal, precancerous, and cancerous squamous epithelial tissues. Cancer Research. 65 (4), 1180-1186 (2005).
- Leben, R., Kohler, M., Radbruch, H., Hauser, A. E., Niesner, R. A. Systematic enzyme mapping of cellular metabolism by phasor-analyzed label-free NAD(P)H fluorescence lifetime imaging. International Journal of Molecular Sciences. 20 (22), 5565(2019).
- Chacko, J. V., Eliceiri, K. W. Autofluorescence lifetime imaging of cellular metabolism: Sensitivity toward cell density, pH, intracellular, and intercellular heterogeneity. Cytometry. 95 (1), 56-69 (2019).
- Stringari, C., et al. Phasor approach to fluorescence lifetime microscopy distinguishes different metabolic states of germ cells in a live tissue. Proceedings of the National Academy of Sciences of the United States of America. 108 (33), 13582-13587 (2011).
- Lakowicz, J. R., Szmacinski, H., Nowaczyk, K., Johnson, M. L. Fluorescence lifetime imaging of free and protein-bound NADH. Proceedings of the National Academy of Sciences of the United States of America. 89 (4), 1271-1275 (1992).
- Blacker, T. S., et al. Separating NADH and NADPH fluorescence in live cells and tissues using FLIM. Nature Communications. 5 (1), 3936(2014).
- Blacker, T. S., Duchen, M. R. NAD(P)H binding configurations revealed by time-resolved fluorescence and two-photon absorption. Biophys. J. 122 (7), 1240-1253 (2023).
- Niesner, R., et al. Selective detection of NADPH oxidase in polymorphonuclear cells by means of NAD(P)H-based fluorescence lifetime imaging. Journal of Biophysics. 2008, 602639(2008).
- Vishwasrao, H. D., Heikal, A. A., Kasischke, K. A., Webb, W. W. Conformational dependence of intracellular NADH on metabolic state revealed by associated fluorescence anisotropy. Journal of Biology and Chemistry. 280 (26), 25119-25126 (2005).
- Babior, B. M. NADPH oxidase: An update. Blood. 93 (5), 1464-1476 (1999).
- Hewitson, J. P., et al. Proteomic analysis of secretory products from the model gastrointestinal nematode Heligmosomoides polygyrus reveals dominance of venom allergen-like (VAL) proteins. Journal of Proteomics. 74 (9), 1573-1594 (2011).
- Rakhymzhan, A., et al. Synergistic strategy for multicolor two-photon microscopy: Application to the analysis of germinal center reactions in vivo. Scientific Reports. 7, 7101(2017).
- Bremer, D., et al. Method to detect the cellular source of over-activated NADPH oxidases using NAD(P)H fluorescence lifetime imaging. Current Protocols in Cytometry. 80, 9.52.1-9.52.14 (2017).
- Leben, R., et al. Phasor-based endogenous NAD(P)H fluorescence lifetime imaging unravels specific enzymatic activity of neutrophil granulocytes preceding NETosis. International Journal of Molecular Sciences. 19 (4), 1018(2018).
- Digman, M. A., Caiolfa, V. R., Zamai, M., Gratton, E. The phasor approach to fluorescence lifetime imaging analysis. Biophysics Journal. 94 (2), L14-L16 (2008).
- Lindquist, R. L., Bayat-Sarmadi, J., Leben, R., Niesner, R., Hauser, A. E. NAD(P)H oxidase activity in the small intestine is predominantly found in enterocytes, not professional phagocytes. International Journal of Molecular Sciences. 19 (5), 1365(2018).
- Liublin, W., et al. NAD(P)H fluorescence lifetime imaging of live intestinal nematodes reveals metabolic crosstalk between parasite and host. Scientific Reports. 12, 7264(2022).
- Nhu, N. T. Q., et al. Alkaline pH increases swimming speed and facilitates mucus penetration for Vibrio cholerae. Journal of Bacteriology. 203 (7), e00607(2021).
访问受限。请登录或开始试用以查看此内容。
重印与许可
本文已发表
视频即将推出