本文介绍了一种高通量瞬时转染大量玉米原生质体的实验方案,可用于在玉米叶肉细胞中筛选大规模质粒文库。
本文内容
摘要
摘要
玉米叶肉细胞的转染通常涉及消化植物细胞壁以制备原生质体,然后导入DNA 通过 电穿孔或聚乙二醇(PEG)。先前的方法旨在一次性产生数万个转染的原生质体。此处, 我们描述了一种简单的方法,用于分离并转染数百万玉米叶片叶肉原生质体(Zea mays)玉米(Zea mays) L.)。该简化流程省去了某些常见的原生质体分离步骤,例如W5溶液洗涤。此外,离心、聚乙二醇介导的转染和孵育等步骤也经过优化,可适用于更大量的原生质体。该体系能够表达大规模的质粒文库,从而支持基因组尺度的实验,例如在玉米中进行的大规模并行报告基因检测。
引言
瞬时基因表达是植物生物学中一种强大的工具。然而,由于植物细胞外被细胞壁包围,因此很难进行转染。这种阻碍DNA进入的屏障在其他常见的研究细胞类型(如哺乳动物或昆虫细胞)中并不存在。以往的研究通过使用原生质体来应对这一挑战:即通过消化并去除细胞壁所获得的植物细胞。与未经处理的叶片组织相比,植物原生质体易于在悬浮液中操作,并适用于电穿孔或聚乙二醇(PEG)介导的转染技术1。即使在去除细胞壁后,植物细胞仍保留了大部分功能。因此,原生质体已被广泛应用于多种植物中,用于研究基因和蛋白质功能2,3、解析信号转导机制4,以及鉴定植物育种的潜在靶点5。此外,原生质体也是在小麦和马铃薯等多种作物中筛选基因组编辑载体的便捷系统6,7。总之,原生质体中的瞬时表达实验在农业生物技术中具有不可替代的作用。
玉米(Zea mays L.)是全球产量最高的谷类作物,因此成为基础和应用植物科学研究的主要对象8。然而,与模式植物如Nicotiana tabacum9 不同,玉米完整叶片中的瞬时转基因表达尚未实现常规化。已有研究通过原生质体技术分离并转染玉米叶肉细胞10,11。先前的方法采用电穿孔法,转染效率最高可达75%,并可获得数以万计的转染原生质体10,15。
本方案详细介绍了如何制备数百万玉米叶肉细胞原生质体,并以与以往方法相当的效率对其进行转染。主要步骤包括培养去黄化玉米幼苗、收获叶片组织、消化植物细胞壁,以及利用聚乙二醇(PEG)将质粒DNA导入细胞。本方案的关键贡献在于能够在保持细胞活力以满足功能检测要求的同时,实现原生质体转染的规模化。这使得研究人员能够开展基因组尺度的实验,例如大规模并行报告基因检测,从而评估玉米基因组中数十万区域的功能。该方法最近已被用于研究大规模的文库 顺式包括增强子和启动子在内的调控性DNA元件12,13,14.
方案
1. 植物材料的培养
- 用自来水将玉米籽粒冲洗两次,然后在室温下用自来水浸泡过夜。
- 次日,将湿润的蛭石与泥炭藓按1:1比例混合后填入72孔育苗盘中。将籽粒冲洗一次,每孔播种一粒,种尖朝下插入基质。
- 在长日照条件下(16小时光照,8小时黑暗),于25 °C培养3天。
- 转入25 °C恒定黑暗条件下继续培养9–11天。
2. 质粒提取
- 根据制造商说明书,将感兴趣的质粒转化至市售的化学感受态 E. coli 中。
- 在 37 °C、振荡条件下,将转化后的 E. coli 在 50 mL 含适当抗生素的液体 LB 培养基中过夜培养。
- 在室温下以 3,000 x g 离心 10 分钟,收集 E. coli 菌体沉淀。使用市售的中量质粒 DNA 提取试剂盒提取质粒。
- 使用微量分光光度计测定质粒 DNA 浓度。
注意:适用于转染的材料浓度应 ≥800 ng/µL,且 A260/A280 比值应 ≥1.8。
3. 原生质体分离
- 准备 20 mL 酶溶液。
- 将 2.18 g 甘露醇、0.30 g 纤维素酶 R-10 和 0.06 g 离析酶 R-10 加入一个 50 mL 离心管中。颠倒混匀粉末。加入去离子 H2O 至 15 mL。加入 200 µL 1 M MES(pH 5.7)。涡旋混匀。
- 将溶液在 55 °C 下加热 10 分钟。室温冷却 10 分钟。
- 加入 20 µL 1 M CaCl2、0.02 g 牛血清白蛋白和 100 µL 1 M β-巯基乙醇。
- 用去离子 H2O 定容至 20 mL。倒入用铝箔包裹的 250 mL 烧杯中。
- 将玉米幼苗从暗处取出。使用新的剃须刀片在土壤上方几厘米处切断幼苗。将切口端放入水中。不使用时保持在室温避光条件下。
- 选择每株幼苗的第二和第三片叶,注意排除有褐色或受损区域的叶片。选取 12–16 片叶片。每片叶切去约 1 cm 的叶尖并弃去。然后从每片叶上截取一段 10 cm 的叶段。
注意:如果需要更多组织,可在另一个 250 mL 烧杯中使用额外 20 mL 酶溶液。在固定体积的酶溶液中加入过多叶片材料会降低原生质体活性。 - 将叶段基部对齐叠放在一起。用文件夹夹子在基部夹紧叶片束。将叶片束放置在一张白纸上。
- 握住叶片远端约 1 cm 处。使用新的剃须刀片,从远端开始垂直于叶脉将叶片切成薄片(0.5–1 mm),避免直接向下切,而应通过组织进行短而向前的切片。
- 当纸面上开始出现可见残留物时,立即更换刀片。可见残留物表明组织被压碎,原因可能是刀片变钝或操作技术不佳。
- 切下约 2 cm 长的叶片束后,立即将切片转移至盛有酶溶液的烧杯中。切勿让材料干燥,否则会减少获得的原生质体数量。轻轻摇动酶溶液以润湿材料。
- 用铝箔盖住烧杯以避光。重复切片和转移过程,直至整个叶片束被切至接近夹子处。
- 将盛有酶溶液的烧杯转移至真空干燥器中。在室温下,相对于环境压力在 −50.8 kPa 至 −67.7 kPa 范围内抽真空浸润 3 分钟。
- 将烧杯转移至台式摇床上。在室温下以 40 RPM 振荡 2.5 小时。用手轻轻摇动烧杯。完全消化后,酶溶液会呈现轻微乳白色。如果溶液仍透明,继续以 40 RPM 振荡最多额外 1 小时。总时间不得超过 3.5 小时。
- 在消化过程中,配制甘露醇 + MES + MgCl2(MMG)溶液、聚乙二醇(PEG)溶液和孵育溶液。
- MMG 溶液:将 5.47 g 甘露醇、200 µL 1 M MES(pH 5.7)和 750 µL 1 M MgCl2 加入一个 50 mL 离心管中。用蒸馏 H2O 定容至 50 mL。涡旋溶解。置于冰上。
- 孵育溶液:将 5.47 g 甘露醇、200 µL pH 5.7 的 1 M MES 和 200 µL 1 M KCl 加入一个 50 mL 离心管中。用蒸馏 H2O 定容至 50 mL。涡旋溶解。置于冰上。
- PEG 溶液:将 0.44 g 甘露醇、1.0 g PEG 和 400 µL 1 M CaCl2 加入一个 15 mL 离心管中。用蒸馏 H2O 定容至 4 mL。涡旋混匀。在 37 °C 下振荡孵育 30 分钟,直至完全溶解。保持在室温。
- 在室温下以 80 RPM 振荡酶溶液 10 分钟。
- 将盛有酶溶液的烧杯置于冰上。不要移除铝箔覆盖物。向酶溶液中加入 20 mL 冰冷的 MMG 溶液。通过 40 µm 细胞筛过滤至一个 50 mL 离心管中。
注意:在加入 PEG 之前的后续步骤中,所有溶液均需保持在冰上。用铝箔覆盖原生质体以尽量减少光照暴露。 - 将滤液均分为每份 10 mL。将每份倒入一个圆底玻璃离心管中,在室温下以 100 x g 离心 4 分钟。
- 弃去上清液,向每管中加入 1 mL 冰冷的 MMG 溶液。通过轻轻摇动和轻敲管壁重悬沉淀。将所有样品合并至一个圆底玻璃离心管中。加入 MMG 至总体积为 5 mL。在室温下以 100 x g 离心 3 分钟。
- 用 5 mL MMG 洗涤一次,在室温下以 100 x g 离心 3 分钟。
- 再次用 5 mL MMG 洗涤一次,在室温下以 100 x g 离心 3 分钟。第二次洗涤离心后,观察上清液是否澄清。如果仍浑浊,需进行第三次洗涤。
- 用 1 mL MMG 重悬原生质体。用铝箔松散覆盖,并置于冰上保存。
- 测定原生质体产量并检测其活性。
- 在 1.5 mL 微量离心管中,加入 4 µL 原生质体和 72 µL MMG。
- 在另一个 1.5 mL 微量离心管中,将 1 µL 0.5% 荧光素二乙酸酯(FDA)储备液加入 49 µL MMG 中,配制成 20 倍工作液。取 4 µL FDA 工作液加入稀释后的原生质体管中。室温避光孵育 5 分钟。
- 取 11 µL 原生质体混合液滴加到血细胞计数板上。置于明场光学显微镜下观察。目视确认细胞无细胞壁。然后计数原生质体数量,用于估算获得的原生质体总数。接着,在紫外光下观察经 FDA 染色后发出绿色荧光的原生质体数量。成功的原生质体分离应获得 70%–90% 的活性。
4. PEG介导的转染
- 从步骤 3.17 估算的原生质体浓度开始,调整至约 10,000 个原生质体/µL。如果浓度过低,以 100 × g 离心 3 分钟 g,用MMG重悬至原生质体浓度约为10,000个/µL。
- 将约 1,000,000 个原生质体与 15 µg DNA 在 1.5 mL 微离心管中混合,用 MMG 补充至 114.4 µL,冰上孵育 30 分钟。
- 轻敲管壁重悬原生质体。向原生质体中加入105.6 µL 25% PEG溶液,使PEG终浓度为12%(重量/体积)。轻轻颠倒混匀5–10次。PEG溶液中的原生质体较为脆弱,切勿振荡试管。室温避光孵育10分钟。
注意:转染体系可按照4.2和4.3步骤中所述体积的整数倍进行放大。例如,可将1,000万个原生质体和150 µg DNA悬浮于1,444 µL MMG溶液中,并加入1,056 µL PEG溶液,于50 mL离心管中处理。 - 用孵育液稀释至5倍体积,轻柔颠倒混匀。室温下以100 × g离心4分钟。
注意:若需扩大实验规模,应将原生质体分装至多个圆底玻璃试管中,每管不超过10 mL,以确保充分沉淀。洗涤所用的孵育液体积应按比例相应增加。 - 用移液器吸除上清液。加入1-5 mL孵育液洗涤,然后以100 × g离心3分钟。 g 在室温下
- 将原生质体重悬于孵育溶液中,调整浓度至500-1,000个细胞/µL。
- 将原生质体在室温下避光孵育过夜(约16小时)。
5. 原生质体恢复与表达验证
- 在室温下以 100 × g 离心 4 分钟,沉淀原生质体。注意:若进行放大实验,需将原生质体分装至多个圆底玻璃管中,每管体积不超过 10 mL。
- 用 1–5 mL 孵育液洗涤,并在室温下以 100 × g 离心 3 分钟。
- 重悬后合并至 1–5 mL 孵育液中。
- 若原生质体已转染荧光报告基因(例如 GFP),可取部分样品检测转染效率。使用血细胞计数板,首先在明场光学显微镜下计数原生质体总数,然后在紫外光下计数荧光原生质体所占比例。
- 在室温下以 100 × g 离心 3 分钟。
注意:此时原生质体已可用于后续实验操作,例如使用苯酚和异硫氰酸胍进行 RNA 提取。
结果
最适合原生质体分离的组织是10-11天龄幼苗的第二片和第三片叶子(图1)。在本实验中,我们从16段长度各为10 cm的叶片中获得了约1000万个原生质体。所分离的原生质体数量取决于叶组织的质量以及在酶解液中消化的叶切片宽度。
在明场光学显微镜下,未受损的原生质体大致呈球形,质体散布于表面(图2A)。在进行转染前,可通过用荧光素二乙酸盐(FDA)染色少量原生质体来检测其活力。在紫外光下发出荧光的FDA染色原生质体被视为具有活力(图2B、C)。并非所有外观完好的原生质体都仍具活力,部分有活力的原生质体可能正处于液泡排出导致死亡的过程中(图2C)。在这些细胞中,液泡正在膨胀,并最终将从细胞膜排出。
图3 显示了用 pJT01 转化的原生质体,pJT01 是一种源自 CD3-911(ABRC)的 4.3 kb 玉米表达质粒15。转染后表达带有 c-Myc 来源的 C 末端核定位信号标记的 sGFP(图3A)。通过多次实验使用血细胞计数板测定表达 sGFP 的原生质体比例。该方法在过夜培养后的中位转染效率为 40%(n = 9,图4,表1),与先前报道的方法相当15。根据具体的实验应用,如果质粒或质粒文库缺乏荧光报告基因,建议加入阳性对照以确认转染成功。
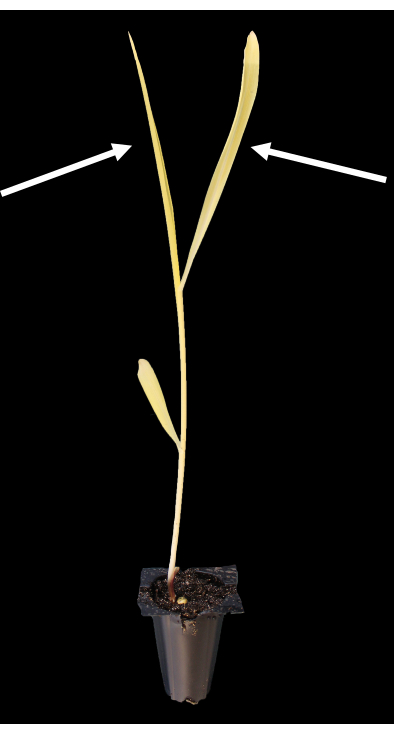
图1:代表性的玉米幼苗在萌发后于黑暗中生长10天的黄化苗。箭头指示的是第二片和第三片叶子,最适合用于原生质体制备。请点击此处查看此图的放大版本。

图 2:原生质体分离后活力的荧光显微镜观察。 (A)分离后立即拍摄的原生质体明场图像。(B)FDA 染色原生质体的荧光信号。(C)明场与荧光图像的叠加,显示存活的原生质体。箭头指示一个正在发生液泡排出的原生质体。 请点击此处查看该图的放大版本。

图3:转染sGFP原生质体的荧光显微镜观察。 (A)转染后原生质体的明场图像。(B)转染原生质体在GFP通道中的荧光信号。(C)明场与荧光图像的叠加,显示转化后的原生质体。请点击此处查看该图的放大版本。

图4:孵育16小时后显示GFP荧光的原生质体百分比。不同独立实验之间的转染效率存在差异,最低效率约为20%,最高接近50%。请点击此处查看该图的放大版本。
| 试验 | 计数的GFP阳性细胞 | 总计数细胞 | GFP阳性百分比 |
| 1 | 104 | 261 | 39.8 |
| 2 | 148 | 298 | 49.5 |
| 3 | 84 | 258 | 32.6 |
| 4 | 137 | 271 | 50.6 |
| 5 | 127 | 299 | 42.5 |
| 6 | 107 | 235 | 45.5 |
| 7 | 83 | 360 | 23.1 |
| 8 | 134 | 549 | 24.4 |
| 9 | 61 | 201 | 30.3 |
| 平均值 | 109 | 304 | 36 |
| 标准差 | 29 | 102 | 10 |
表1:原生质体转染效率的代表性数据。 来自作者实验室最近进行的九次原生质体制备实验的数据。
补充文件 1:包含 pJT01 序列的 GenBank 格式文本文件。 一个 4.3 kb 的 sGFP 表达质粒,用作转染玉米原生质体中的阳性对照。请点击此处下载该文件。
讨论
如先前报道,用于原生质体分离的植物材料质量对于获得高质量的原生质体至关重要16,17,18。必须选择健康且无损伤的叶片。本研究使用了常用的玉米自交系B73。我们尚未测试其他品种。本实验方案所用的玉米幼苗在黑暗条件下培养,因为黄化叶片在转染后16小时产生的原生质体活力高于绿色叶片来源的原生质体。对于不需要过夜培养的应用,使用绿色或正在转绿的叶片材料也是可行的。
一个关键步骤是在酶解之前将叶片材料正确地切成薄片。此过程增加了叶肉细胞与酶溶液接触的表面积,从而提高原生质体的回收数量。叶片远端的尖端部分应弃去,使用新的剃须刀片切割成薄片(≤1 mm),并在刀片开始变钝时立即更换。对于给定量的组织,在采用正确技术以尽量减少叶片压碎的前提下,切得越薄,获得的原生质体越多。
正确洗涤原生质体也非常重要,因为它们在去除细胞壁后非常脆弱。消化完成后,所有溶液均需保持在冰上,且避光培养的原生质体需避免光照。洗涤过程使用MMG溶液,以维持渗透压和pH的稳定。为了将原生质体与密度较低的细胞碎片分离,需在100 × g 条件下进行离心。在200 × g 条件下离心的原生质体在分离后 viability 相似,但次日 viability 明显降低,且转化效率大约仅为前者的一半。我们建议在分离后立即使用FDA(荧光素二乙酸酯)染色检测原生质体的 viability;正常 viability 范围为70%–90%。若分离后的原生质体 viability 低于40%,则转化子数量将显著减少。
当处理大量原生质体时,离心和洗涤操作更为简便,因为转染后可获得肉眼清晰可见的沉淀。因此,转染应使用100万个或更多的原生质体。当扩大实验规模时,应选择合适尺寸的容器进行孵育步骤(如1.5 mL、15 mL或50 mL离心管),并相应调整洗涤步骤中溶液的体积。无论如何,建议每次离心体积不超过10 mL,以确保原生质体不会残留在上清液中。本实验方案的一项改进是省略了其他方案中所列的在W5溶液中孵育1小时并进行洗涤的步骤14,19,我们在实验中发现该步骤并无必要。
与其他研究中观察到的一样,DNA的含量和质量对于成功转染均至关重要19。对于大小在4-6 kb范围内的质粒,每100万个原生质体使用15 µg DNA。低质量的DNA制备物可能导致转染后细胞活力下降,因此我们建议在从细菌中分离质粒时使用商业化的DNA提取试剂盒。将原生质体在室温避光条件下过夜孵育,以促进质粒或质粒文库的转录,同时尽量减少细胞应激。过夜孵育后,大约可回收最初转染原生质体数量的一半。原生质体应稀释至500-1,000个细胞/µL的浓度进行过夜孵育。若原生质体孵育浓度高于1,000个细胞/µL,则回收率和存活率均会降低。在较高浓度下,受损或死亡原生质体产生的碎片可能引起邻近原生质体的死亡。在过夜孵育后对原生质体进行洗涤,既可去除这些碎片,也可清除多余的质粒。
此类方案存在一定的局限性,即并非所有植物物种或组织类型都适用于原生质体制备。此外,原生质体制备过程本身可能引发基因表达差异。
综上所述,我们详细介绍了一种简单且可扩展的方案,用于从主要农作物玉米(Z. mays)中分离并转染数百万个有活力的原生质体。该方法利用聚乙二醇(PEG)可转染更多的原生质体,其转化效率接近基于电穿孔的方法15。更高的转化子总数使得在大规模实验(如高通量并行报告基因检测)中测试数百乃至数千个构建体成为可能12,13。未来在玉米中开展的基因组规模实验将有助于科学家更深入地理解玉米的基因表达与基因调控机制。
披露
作者声明无竞争利益。
致谢
本研究得到了美国国家人类基因组研究所基因组科学跨学科培训项目(T32 培训资助号 HG000035,授予 J.T.)、美国国立卫生研究院(NIGMS 1R35GM139532,授予 C.Q.)以及美国国家科学基金会(RESEARCH-PGR IOS-1748843 和 PlantSynBio 2240888,授予 CQ)的支持。我们感谢罗格斯大学的 Andrea Gallovatti 惠赠玉米种子。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 带刻度微量离心管 | VWR | 490004-444 | |
| 15 mL Falcon 锥形离心管 | Corning | 05-527-90 | |
| 250 mL Pyrex 玻璃烧杯 | Fisher | 50-121-5005 | |
| 40 µm 尼龙网细胞筛 | Fisher | 22363547 | |
| 50 mL Falcon 管 | Corning | 14-432-22 | |
| 72 孔细胞扩繁托盘 | T.O. Plastics | 725607C | |
| 铝箔 | VWR | 89107-732 | |
| 钟形罩 | Bel-Art | F42022-0000 | |
| 台式离心机 | Eppendorf | 5424-R | |
| β-巯基乙醇 | Sigma-Aldrich | M6250-250ML | 溶于超纯 H2O 配制成 1 M 储存液。室温保存。 |
| 牛血清白蛋白 | Sigma-Aldrich | A2153 | |
| 二水氯化钙(CaCl2·2H2O) | PhytoTech Labs | C135 | 溶于超纯 H2O 配制成 1 M 储存液。室温保存。 |
| 纤维素酶 Onozuka R-10 | Duchefa Biochemie | C8001.0010 | |
| D-甘露醇 | PhytoTech Labs | M562 | |
| 解剖显微镜 | Reichert | Microstar IV | |
| 荧光素二乙酸酯(FDA) | Thermofischer Scientific | F1303 | 溶于丙酮配制成 0.5%(w/v)的 1000 倍储存液。避光,-20 °C 保存。 |
| 荧光照明系统 | Prior | Lumen200 | |
| 荧光显微镜 | Leica | MDG36 | |
| 大容量离心机 | Eppendorf | 5810 R | |
| 离析酶(Macerozyme) | Duchefa Biochemie | M8002.0005 | |
| 氯化镁(MgCl2) | Sigma-Aldrich | M292-1KG | 溶于超纯 H2O 配制成 1 M 储存液。室温保存。 |
| 玉米种子 | B73 | USDA-ARS | https://npgsweb.ars-grin.gov/gringlobal/accessiondetail?accid=PI+550473 |
| 中型长尾夹 | Uline | S-24649 | |
| MES | Sigma-Aldrich | M5287-250G | 溶于超纯 H2O 配制成 1 M 储存液。用 KOH 调节 pH 至 5.7。避光,室温保存。 |
| 微量移液器 20–200 µL | Gilson | F123601G | |
| Nanodrop 微量分光光度计 | Thermofischer Scientific | ND-1000 | |
| NEB 5-alpha 感受态大肠杆菌 | New England BioLabs | C2987H | |
| Neubauer 血细胞计数板 | Daigger Scientific | EF16034F | |
| 9 号单刃剃须刀片 | Excel | 20009 | |
| 旋转摇床 | VWR | 89032-104 | |
| 聚乙二醇 4,000 | Sigma-Aldrich | 81240-1KG | |
| 氯化钾(KCl) | Sigma-Aldrich | P9541-1KG | 溶于超纯 H2O 配制成 1 M 储存液。室温保存。 |
| 专业级蛭石 | NK Lawn & Garden | G208 | |
| 30 mL 圆底玻璃离心管 | Kimble Chase | 45500-30 | |
| Corex 离心管用橡胶接头 | Corning | CLS8445AO | |
| 泥炭藓 | Premier Horticulture | 0128P | |
| TRIzol 试剂 | Thermofischer Scientific | 15596018 | |
| Tygon 真空管 | VWR | 76336-844 | |
| 真空压力表 | Wika | 4269978 |
参考文献
- Jiang, F., Zhu, J., Liu, H. -L. Protoplasts: A useful research system for plant cell biology, especially dedifferentiation. Protoplasma. 250 (6), 1231-1238 (2013).
- Wang, S., Tiwari, S. B., Hagen, G., Guilfoyle, T. J. AUXIN RESPONSE FACTOR7 restores the expression of auxin-responsive genes in mutant Arabidopsis leaf mesophyll protoplasts. The Plant Cell. 17 (7), 1979-1993 (2005).
- Hirner, A., et al. Arabidopsis LHT1 is a high-affinity transporter for cellular amino acid uptake in both root epidermis and leaf mesophyll. The Plant Cell. 18 (8), 1931-1946 (2006).
- Hwang, I., Sheen, J. Two-component circuitry in Arabidopsis cytokinin signal transduction. Nature. 413 (6854), 383-389 (2001).
- Tan, M. -L. M. C., Rietveld, E. M., van Marrewijk, G. A. M., Kool, A. J. Regeneration of leaf mesophyll protoplasts of tomato cultivars (L. esculentum): Factors important for efficient protoplast culture and plant regeneration. Plant Cell Reports. 6 (3), 172-175 (1987).
- Brandt, K. M., Gunn, H., Moretti, N., Zemetra, R. S. A streamlined protocol for wheat (Triticum aestivum) protoplast isolation and transformation with CRISPR-Cas ribonucleoprotein complexes. Frontiers in Plant Science. 11, 769(2020).
- Nadakuduti, S. S., et al. Evaluation of methods to assess in vivo activity of engineered genome-editing nucleases in protoplasts. Frontiers in Plant Science. 10, 110(2019).
- OECD, Food and Agriculture Organization of the United Nations. OECD-FAO Agricultural Outlook 2021-2030. OECD, Food and Agriculture Organization of the United Nations. , Paris, France. (2021).
- Gallois, P., Marinho, P. Leaf disk transformation using Agrobacterium tumefaciens-expression of heterologous genes in tobacco. Plant Gene Transfer and Expression Protocols. 49, 39-48 (1995).
- Schäffner, A. R., Sheen, J. Maize rbcS promoter activity depends on sequence elements not found in dicot rbcS promoters. The Plant Cell. 3 (9), 997-1012 (1991).
- Sheen, J. Molecular mechanisms underlying the differential expression of maize pyruvate, orthophosphate dikinase genes. The Plant Cell. 3 (3), 225-245 (1991).
- Jores, T., et al. Identification of plant enhancers and their constituent elements by STARR-seq in tobacco leaves. The Plant Cell. 32 (7), 2120-2131 (2020).
- Jores, T., et al. Synthetic promoter designs enabled by a comprehensive analysis of plant core promoters. Nature Plants. 7 (6), 842-855 (2021).
- Ricci, W. A., et al. Widespread long-range cis-regulatory elements in the maize genome. Nature Plants. 5 (12), 1237-1249 (2019).
- Sheen, J. Signal transduction in maize and Arabidopsis mesophyll protoplasts. Plant Physiology. 127 (4), 1466-1475 (2001).
- Jeon, J. M., et al. Efficient transient expression and transformation of PEG-mediated gene uptake into mesophyll protoplasts of pepper (Capsicum annuum L.). Plant Cell, Tissue and Organ Culture. 88 (2), 225-232 (2007).
- Pindel, A. Optimization of isolation conditions of Cymbidium protoplasts. Folia Horticulturae. 19, 79-88 (2007).
- Ren, R., et al. Highly efficient leaf base protoplast isolation and transient expression systems for orchids and other important monocot crops. Frontiers in Plant Science. 12, 626015(2021).
- Yoo, S. -D., Cho, Y. -H., Sheen, J. Arabidopsis mesophyll protoplasts: A versatile cell system for transient gene expression analysis. Nature Protocols. 2 (7), 1565-1572 (2007).
重印与许可
