本研究提出了一种基于免疫染色和图像分析的小鼠脑组织线粒体形态分析方法 原位它还描述了如何利用该方法检测帕金森病模型中由蛋白质聚集诱导的线粒体形态变化。
本文内容
摘要
摘要
线粒体在细胞能量代谢中发挥核心作用,其功能对能量需求较高的神经元尤为重要。因此,线粒体功能障碍是包括帕金森病在内的多种神经系统疾病的病理特征。线粒体网络的形态和结构具有高度可塑性,使细胞能够响应环境信号和自身需求,而线粒体的结构也与其健康状态密切相关。本文介绍一种研究线粒体形态的实验方案 原位 基于线粒体蛋白VDAC1的免疫染色及后续图像分析。该工具在神经退行性疾病的研究所中可能具有重要价值,因其能够检测由α-突触核蛋白(一种在帕金森病病理过程中起关键作用的易聚集蛋白)聚集体所诱导的线粒体数量和形态的细微变化。该方法可用于报告:在预制纤维颅内注射帕金森病模型中,含有pS129病变的黑质致密部多巴胺能神经元相较于邻近健康神经元表现出线粒体碎片化(表现为其长宽比降低,AR减小)。
引言
中枢神经系统对ATP有很高的需求:神经元利用ATP维持离子梯度、神经递质合成、突触囊泡的动员、释放与回收,以及实现局部蛋白质的翻译和降解。大脑所使用的ATP中,超过95%由线粒体产生1。因此,线粒体功能障碍对神经元特别有害也就不足为奇了。事实上,线粒体功能受损在多种神经系统疾病中起着重要作用,包括帕金森病(PD)和阿尔茨海默病(AD)等神经退行性疾病2,3。
多个基因明确与帕金森病相关,其编码的蛋白质参与线粒体功能与稳态调节,例如 Parkin4,5,6,PTEN诱导的激酶1(PINK1)7,8 和 DJ-19进一步证明线粒体功能障碍在帕金森病(PD)中起作用的证据是,使用线粒体电子传递链复合物I抑制剂(如Rotenone和MPTP)进行处理可重现PD的多个特征 体外 和 体内10然而,需要强调的是,除线粒体功能障碍外,多种病理过程也可能共同导致帕金森病(PD)中的神经元丢失:氧化应激、钙稳态失衡、泛素-蛋白酶体系统和自噬-溶酶体系统功能障碍,以及蛋白质聚集等是目前研究最为广泛的因素(详见综述于11,12,13 以及。
线粒体在形态上具有异质性:除了单个单位外,它们通常以延伸的网状和管状网络形式存在。线粒体的结构及其在细胞内的定位对其功能至关重要14事实上,线粒体网络具有极强的动态性,会频繁发生分裂、融合和线粒体自噬,以满足细胞需求并响应环境信号15,16此外,线粒体的形态与其健康状况密切相关。例如,在人类视神经萎缩中,导致线粒体活性降低的基因突变会引起线粒体出现异常、纤细且过度融合的形态。17另一方面,多种人类疾病表现出异常的线粒体形态,包括线粒体断裂或过度融合,这些变化会对线粒体功能产生有害影响(详见综述于18). 在帕金森病(PD)的背景下,我们及其他研究者此前已证明,线粒体形态异常与α-突触核蛋白聚集体引起的线粒体功能障碍相关19尽管线粒体形态已被广泛研究 体外 在帕金森病及其他疾病背景下20,21,22,用于评估线粒体形态的方案 体内 部分缺失。这使得 体内 帕金森病等疾病中线粒体的研究高度依赖于转基因动物23 或无法提供细胞分辨率的中脑提取物的评估。
本文介绍了一种研究线粒体形态的实验方案 原位 作为其功能状态和健康状况的指标,基于线粒体蛋白VDAC1的免疫染色24 随后对石蜡包埋的组织切片进行图像分析。我们还展示了该方案的结果在 体外 和 体内 PD模型:过表达的神经母细胞瘤细胞 SNCA (α-突触核蛋白)以及经颅内注射α-突触核蛋白预制纤维(PFFs)的小鼠脑组织。通过使用针对α-突触核蛋白(在细胞中)或磷酸化Ser129-α-突触核蛋白(pS129,在小鼠脑组织中)的抗体进行共免疫染色,我们能够在样本中识别出具有蛋白聚集病理特征的细胞(分别为过表达的α-突触核蛋白和α-突触核蛋白纤维),而无染色信号的细胞则在同一样本中作为非病理状态的对照。通过本分析及此处描述的数据,观察到长宽比降低,提示在过表达α-突触核蛋白的细胞中线粒体发生断裂 SNCA 或呈现 pS129 病变。
方案
本节所述所有操作均依据巴斯克大学参考编号M20/2022/212、巴斯克自治区政府、西班牙政府以及欧洲联盟提供的伦理框架进行。
1. 在过表达SNCA的SH-SY5Y细胞中进行线粒体形态学分析
注意:此处简要描述生成 体外 用于本研究的材料,将作为对照比较 原位 所提供的结果,建议在启动此类分析之前进行。 体内 线粒体形态学实验,因为它将确保所有必要的成像和分析设置均已到位。
- 为增强细胞贴壁并促进细胞在平底光学96孔板上的黏附,使用移液器在每孔中加入25 µL以DMEM/F12稀释至1:1000的包被基质(参见材料表)。将培养板在37 °C、5% CO2条件下孵育1小时。
- 使用血球计数板对SH-SY5Y细胞进行计数。通过移液去除包被基质,并在包被后的96孔板中每孔接种10,000个细胞,接种体积为50 µL/孔,培养基为含10%胎牛血清(FBS)、2 mM谷氨酰胺及青霉素/链霉素的DMEM/F-12(参见材料表)。
- 将细胞在37 °C、5% CO2条件下孵育24小时。
- 为每孔配制转染混合液:包含250 ng携带人野生型SNCA的pcDNA3.1质粒、0.250 µL转染试剂、0.250 µL转染辅助剂,并用转染培养基补足至50 µL(参见材料表)。根据实验总孔数配制主溶液。
- 通过手动移液去除培养基,每孔加入50 µL步骤1.4中配制的溶液。于37 °C、5% CO2条件下孵育。
- 转染后h,通过移液去除转染培养基,每孔加入25 µL含4%多聚甲醛(PFA)的PBS。
警告:多聚甲醛为有毒固定剂,请使用适当的个人防护装备(PPE)。 - 室温(R.T.)孵育5分钟。通过移液去除固定液,并每孔加入50 µL PBS洗涤一次,随后移除PBS。
- 每孔加入25 µL含0.05% Tween的TBS缓冲液(TBS-T)及10%正常驴血清(NDS,参见材料表),室温孵育1小时,以封闭非特异性信号。
- 根据待分析孔数,在TBS-T中配制兔抗α-突触核蛋白抗体MJFR1(1:1000)与小鼠抗TOMM20抗体(1:100)的混合溶液(参见材料表)。
- 通过移液去除步骤1.8中的封闭液,每孔加入25 µL步骤1.9中配制的一抗混合液,4 °C过夜孵育。
- 去除一抗溶液,通过移液每孔加入并移除50 µL TBS-T,洗涤三次。
- 根据待分析孔数,在TBS-T中配制绿色抗小鼠二抗(1:1000)与红色抗兔二抗(1:1000)的混合溶液(参见材料表)。
- 在完成步骤1.11所述最后一次洗涤并吸除PBS后,使用移液器每孔加入25 µL二抗混合液,室温孵育1小时。
- 通过移液去除二抗溶液,每孔加入25 µL含2 g/mL DAPI的TBS-T。室温孵育5分钟。
- 使用移液器去除DAPI溶液,并通过移液每孔加入并移除50 µL TBS-T,洗涤三次。
- 每孔加入80 µL含0.02%叠氮化钠的PBS,将培养板置于4 °C保存。
警告:叠氮化钠具有毒性,请使用适当的个人防护装备(PPE)。 - 使用配备60倍物镜的高内涵自动荧光显微镜或等效共聚焦成像系统采集图像(参见材料表)。
- 使用Fiji软件按照步骤3.15–3.21分析单个细胞的TOMM20信号。排除处于凋亡、坏死或有丝分裂阶段的细胞。
注:为此,我们将在显微镜下可观察到的具有凋亡、坏死或有丝分裂形态学特征的细胞从分析中剔除,这些特征包括细胞皱缩、膜出泡、细胞脱落、核浓缩、DNA断裂以及浓缩的染色质形成粗大条索并排列于单一平面。
2. 小鼠PFFs的制备及颅内注射
注意:此处展示了注射材料的制备及颅内注射过程。本方案改编自 Luk 等人25。
- 为了获得PFFs,将含有0.5 mL α-Syn(5 mg/mL;Peptide,参见 材料表在37 °C、250 r.p.m.条件下于摇床中孵育7天,以诱导α-synuclein聚集。
- 将聚集的α-synuclein在20%振幅和0.25周期占空比下进行超声处理,直至通过透射电子显微镜负染观察确认达到最佳片段化程度。
- 为准备3月龄雄性和雌性野生型C57Bl/6小鼠进行纹状体PFF注射,皮下注射美洛昔康/Metacam(5 mg/kg)生理盐水溶液。同时给予1 mL无菌生理盐水溶液 通过 每只动物皮下注射0.5 mL,共两次。这些处理可预防脱水、炎症和疼痛。
- 使用4%异氟烷和0.7 L/min氧气诱导麻醉2 在诱导室中进行麻醉。通过脚趾反射消失来确认麻醉深度。
- 剃除小鼠头部上部的毛发,并将其轻轻插入立体定位仪框架中,置于加热垫上。
- 通过动物吸入麻醉(0.7 L/min 氧气中含 1%–2% 异氟烷)维持麻醉水平2通过面罩在整个注射过程中给药。
- 将动物置于立体定位仪上。使用氯己定擦拭液和70%乙醇交替进行三次消毒。局部皮下浸润注射0.25%的Marcaine/Bupivacaine(约100 µL)。
- 在颅骨上进行0.5 cm的皮肤切口以暴露颅骨,随后在颅骨上钻一个直径1 mm的孔以暴露脑表面,钻孔位置相对于前囟的坐标为:前后向-0.5 mm,内外侧±2.5 mm。
- 使用32-G Hamilton注射器,以100 nl/min的流速,将步骤2.2中获得的1.5 L PFFs通过立体定位注射至步骤2.8中确定的Bregma坐标及背腹向-2.7 mm(自脑表面起算)处。注射完成后5分钟撤出注射器。
- 缝合线(规格:4-0,45 cm,参见 材料表根据需要,用三到五针缝合伤口,每针均用两个双结加一个单结固定。停止麻醉吸入,将小鼠从固定架上取出。
- 将小鼠置于合适的恢复笼中恢复,然后再放回其原饲养笼。
- 在接下来的一周内,每天进行术后检查。若动物出现疼痛、痛苦或不适,应按照步骤2.3的指示,每24小时给予一次美洛昔康(Meloxicam/Metacam)。
- 三个月后,向生理盐水中注射 300 µL 浓度为 200 mg/mL 的戊巴比妥钠 通过 腹腔注射。待痛觉反射消失后,在胸部做一2-3 cm的切口,抬起肋骨以暴露心脏。
- 使用连接23 G蝶形针头的50 mL注射器,以5 mL/min的流速依次进行经心灌注,先灌注10 mL PBS,再灌注35 mL含4%多聚甲醛的PBS。
- 取出脑组织,在4 °C条件下用4% PFA继续固定24小时。经PFA处理后,置于4 °C的70%乙醇中保存。
- 将脑组织放入合适的塑料包埋盒中(参见 材料表)在室温下于95%乙醇中孵育1小时。更换新鲜的95%乙醇重复该步骤,再次孵育1小时。
- 将脑组织转移至100%乙醇中,室温下孵育1小时。更换新鲜的100%乙醇,重复步骤,再次孵育1小时。
- 将脑组织转移至二甲苯或二甲苯替代品中,室温下孵育1 h。更换新鲜溶液后重复一次,再次孵育1 h。
- 除去二甲苯或二甲苯替代品,将样本在温热石蜡中孵育1小时。更换石蜡并继续孵育1小时。
- 将脑组织用温热的石蜡固定在包埋盒上,并过夜干燥。使用切片机制备5 µm切片(参见 材料表) 并将它们固定在玻璃载片上。
3. 通过免疫组织化学法分析PFF注射小鼠石蜡包埋脑切片中的线粒体形态
- 将切片浸入二甲苯替代液中10次以脱蜡。在二甲苯替代液中孵育切片2分钟,再重复浸入二甲苯替代液10次。
注意:此步骤对于去除石蜡并实现样本再水化至关重要。 - 再水化:按以下顺序重复步骤3.1的操作,所用溶液依次为:100%乙醇、95%乙醇、70%乙醇,以及去离子水(ddH2O)两次。
- 按以下步骤进行抗原修复和免疫染色。
- 首先将样本转移至含有去离子水(ddH2O)的可微波容器中。
- 将储存于4 °C的100倍浓缩柠檬酸盐缓冲液(pH 6)(见材料表)预热(可能因储存析出的去污剂),并配制350 mL新鲜的1倍稀释柠檬酸盐缓冲液。然后将缓冲液倒入一个带盖的合适塑料容器中。
- 将切片放入柠檬酸盐缓冲液容器中(关键:确保切片完全浸没于缓冲液液面以下),盖上盖子。
注意:盖子切勿完全密封,否则微波加热时容器可能爆裂。 - 以700 W微波加热:4分钟,静置5分钟;再加热1.5分钟,静置5分钟。补充柠檬酸盐缓冲液后,再次微波加热1.5分钟,静置5分钟;重复此过程三次(每次1.5分钟加热,5分钟静置)。
- 将样本在冰上冷却20分钟,随后用去离子水(ddH2O)洗涤。
注意:抗原修复条件可能因特定抗体要求而异。
- 用纸巾轻轻吸干样本切片上的液体,避免接触组织。使用Pap笔(见材料表)在组织周围画出矩形圈。
- 将所有切片转移至免疫组化染色盒中,用含0.05%吐温的TBS缓冲液(TBS-T)轻柔洗涤数次。检查TBS-T液滴是否保留在Pap笔画出的矩形区域内。
- 轻拍纸巾去除样本上的TBS-T。每张切片的每个矩形区域加入50 µL封闭液(含10% NDS的TBS-T),避免接触组织,室温孵育1小时。
注意:加样体积可根据组织大小调整;应确保:(1)各样本的Pap笔标记区域大小相近;(2)所选缓冲液体积能完全覆盖该区域。 - 轻拍纸巾去除封闭液。用移液器小心加入50 µL/矩形区域的一抗混合液(溶于TBS-T):抗酪氨酸羟化酶抗体(1:250)、抗VDAC1抗体(1:100)和抗pSer129 α-突触核蛋白EP1536Y抗体(1:2000)(见材料表)。
- 4 °C孵育过夜。
- 用移液器加入TBS-T洗涤切片,轻拍纸巾去除液体,重复三次。
- 用移液器加入50 µL/矩形区域的二抗混合液:绿色荧光抗鸡IgG、红色荧光抗小鼠IgG和远红荧光抗兔IgG(1:1000,溶于TBS-T)(见材料表)。37 °C避光孵育1小时。
- 按步骤3.13所述方法,用TBS-T洗涤三次。
- 加入含2 µg/mL DAPI的TBS-T溶液,孵育1分钟。轻拍纸巾去除DAPI溶液,再按步骤3.13所述方法用TBS-T洗涤三次。
- 每张切片滴加两滴封片剂(见材料表),盖上盖玻片。轻压盖玻片以排除气泡,室温避光干燥1小时。之后于4 °C避光保存。
- 使用配备60倍油镜或共聚焦技术的结构化照明显微成像系统,在不同视野中至少成像50个细胞。
- 按以下步骤使用Fiji软件对单个细胞的VDAC1信号进行分析。
- 首先,围绕阳性或阴性细胞(视情况而定)绘制轮廓,选择并分离感兴趣区域(ROI),并使用"裁剪"功能。为避免ROI选择偏差,应基于与分析无关的荧光标记(即非线粒体标记)来确定ROI。
- 可选:若图像像素化严重,可使用"平滑"功能以提高边缘清晰度。
注意:若对某图像应用了平滑功能,则后续所有图像均应统一应用。 - 可选:使用"卷积"功能(在处理 > 滤镜中选择核模式)以降低背景。
注意:此步骤为可选,通常在使用5 µm切片时因切片较薄而无需进行。 - 在"设置测量"功能中激活形状描述符和限定至阈值选项(确保通过分析功能激活这些选项)。
- 在"调整"菜单中选择阈值功能并调整阈值水平。同一份样本中所有细胞的阈值设置必须保持一致。
- 应确保线粒体网络的可视化效果良好(如本文代表性图像所示),同时排除背景像素。
- 使用“分析”选项卡中的分析粒子工具,设置合适的大小以捕获线粒体。本示例中,大小设为25-无穷大,激活像素单位,并选择显示:掩膜命令以可视化结果。Fiji将计算并显示计数、长宽比(AR)及其他形状参数于新面板中。
- 根据需要对数据进行统计学分析。本实验中,在使用D'Agostino和Pearson正态性检验确认数据正态分布后,采用t检验分析实验组间由Fiji计算得出的平均长宽比(AR)和计数的差异。
结果
为了确保适当的成像和分析条件已到位 原位 组织中线粒体形态的评估,一种 体外 建议探索线粒体形态对已知线粒体形态调节因子的响应(第1节)。例如,如先前所述,在SH-SY5Y细胞中通过基因过表达SNCA以诱导线粒体形态的变化26其他可用作对照以恶化线粒体形态的处理包括饥饿或使用线粒体活性抑制剂(如 MPP+)。细胞经转染并用 α-突触核蛋白(AS)染色以进行区分 SNCA+(AS+)和 SNCA- (AS-)细胞。它们还用 TOMM20 进行了染色27 以可视化细胞的线粒体网络。为使该分析尽可能与……的分析相似 5 µm 组织切片中,分析的是单个共聚焦层面,而非多个层面的最大投影。对TOMM20单个共聚焦层面的形态学分析显示,过表达SNCA可导致线粒体总数及其长宽比(AR,反映细胞器的伸长程度)均下降。图1).
对经PFF注射的小鼠脑组织5 µm石蜡切片进行线粒体蛋白VDAC1的免疫染色,具体操作如上文方案部分所述。通过与抗酪氨酸羟化酶(TH)抗体共染色显示帕金森病(PD)中发生退行性变的黑质致密部(SNc)多巴胺能神经元,并将其与腹侧被盖区及黑质侧部在区域上区分开来。另一方面,抗磷酸化Ser129-α-突触核蛋白(pS129)染色可使我们区分含有pS129病变的细胞与健康细胞(pS129+ 与 pS129-)。采集了三只不同动物的SNc图像,随后对TH阳性神经元中VDAC1染色的图像分析显示,携带pS129病变的神经元与不携带这些病变的神经元相比,线粒体数量和长宽比均有所降低(图2)。这些结果表明,含有pS129病变的神经元其线粒体形态相较于缺乏pS129病变的细胞存在损伤。
尽管本实验显示纵横比(AR)降低,从而表明线粒体伸长程度减弱,同时总体数量减少,提示线粒体形态恶化,但数据的解读应根据具体实验而定。例如,AR和数量的同时减少可能提示线粒体总体含量减少以及线粒体发生断裂;而AR降低但总体数量增加,则更倾向于提示线粒体呈现断裂表型。因此,结合这两项指标进行综合分析至关重要。
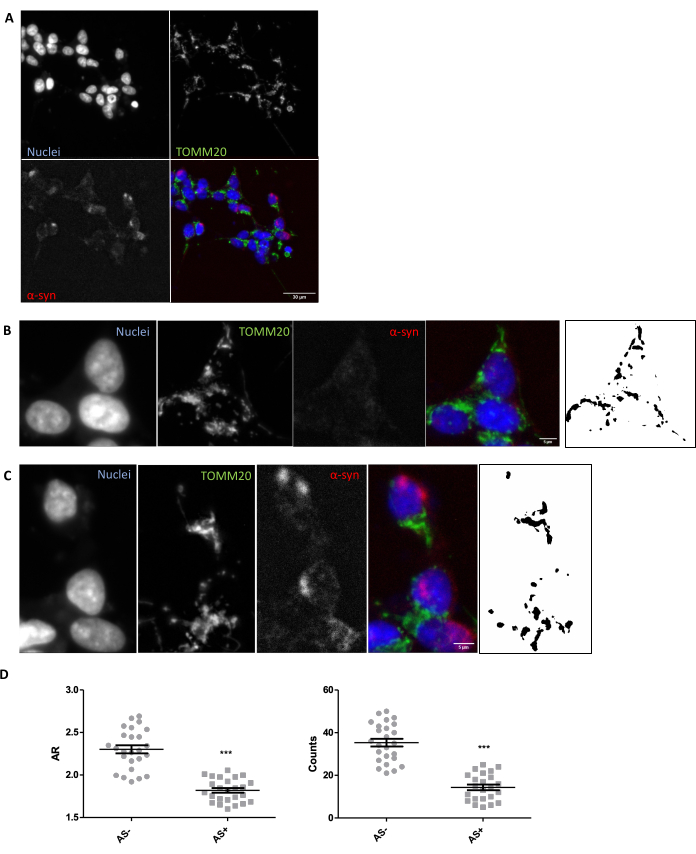
图1:线粒体形态在一种 SNCA过表达 体外 模型 在过表达和非过表达SNCA的细胞(分别为AS+和AS-)上进行TOMM20(绿色)、α-突触核蛋白(AS,红色)和DAPI(蓝色)的共免疫染色A). AS- 细胞(B)和 AS+ 细胞的细节(C). 图中各组(B)和(C)表示应用方案部分所述 Fiji 功能后 TOMM20 信号的掩膜图像。该掩膜可用于对所得结构的形态进行定量分析。对 AS- 和 AS+ 细胞(每种条件 N = 25 个细胞)的线粒体数量和长宽比(Aspect Ratio, AR)值进行定量,并以单个数值及平均值 ± 标准误(SEM)表示;**p值 < 0.05 t检验D)。正态性通过 D'Agostino 和 Pearson 正态性检验进行评估。比例尺: A, 30 µm; B,C, 5 µm. 请点击此处以查看此图的放大版本。
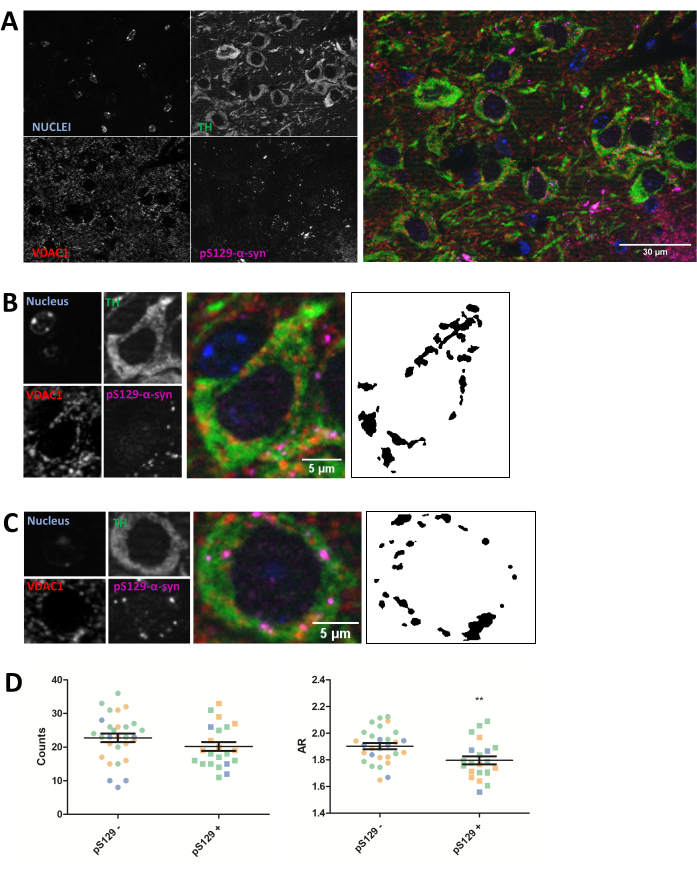
图 2:携带 pS129 病变的神经元中线粒体形态受到影响。 对 PFF 注射小鼠黑质致密部(SNc)进行 TH(绿色)、VDAC1(红色)、磷酸化 S129-α-突触核蛋白(pS129-α-syn,品红色)和 DAPI(蓝色)的共免疫染色(A)。磷酸化 S129-α-突触核蛋白阴性(pS129-)多巴胺能神经元(B)与阳性(pS129+)多巴胺能神经元(C)的细节图像。图(B)和(C)中的黑白图像表示在应用方案部分所述 Fiji 功能后 TOMM20 信号的掩膜图像。该掩膜可用于对所得结构的形态进行定量分析。阴性和阳性细胞的计数来自三个不同动物的样本,图中不同颜色代表不同动物的数据点(蓝色、绿色和橙色)。pS129-(N = 29)与 pS129+(N = 22)多巴胺能神经元的线粒体数量及长宽比(AR)定量结果以平均值 ± 标准误(SEM)以及单个细胞数值表示;**p 值 < 0.05,t 检验(D)。正态性通过 D'Agostino 和 Pearson 正态性检验进行评估。比例尺:A,30 µm;B,C,5 µm。 请点击此处查看该图的放大版本。
讨论
总体而言,本研究表明,免疫染色结合图像分析是一种用于分析线粒体形态的可靠方法。该方法实际上能够在细胞培养和组织样本中定量线粒体数量以及诸如长宽比(aspect ratio, AR)等形态学参数。线粒体数量直接反映了样品中裂变与融合机制的功能状态,而AR值则依赖于细胞器的伸长程度。该方法可能特别适用于帕金森病(PD)模型中线粒体异常的快速评估,因为在这些模型中,线粒体形态、动态变化及功能异常是已知的重要病理机制28,29。α-突触核蛋白(α-synuclein)在PD中也发挥着重要作用:事实上,α-突触核蛋白是路易小体(Lewy Bodies)的主要成分之一,而路易小体是胞浆内的纤维样聚集物,常用于PD患者的尸检诊断30。此外,在家族性和散发性PD患者中均发现了SNCA基因的突变(详见综述31)。大量研究表明,α-突触核蛋白在Ser129位点的磷酸化可标记由PFF刺激后出现的类似路易小体的病理变化,并引发多种毒性效应32,26。
利用此处介绍的工具,我们能够检测到在线粒体数量和AR值方面,过表达α-突触核蛋白(α-synuclein)和聚集性α-突触核蛋白(分别指α-突触核蛋白染色阳性细胞和含有磷酸化Ser129位点α-突触核蛋白病灶的神经元)存在的情况下均出现减少,相较于缺乏此类病灶的细胞(即α-突触核蛋白阴性及phosphoS129α-突触核蛋白阴性细胞)。这些结果与先前报道一致,表明α-突触核蛋白与线粒体的直接相互作用会对帕金森病(PD)中的线粒体功能和稳态产生毒性效应26,3334。事实上,已有研究报道携带α-突触核蛋白突变的小鼠表现出线粒体DNA损伤增加35以及线粒体自噬增强36,37。此外,在过表达α-突触核蛋白的细胞系和小鼠模型中,α-突触核蛋白水平升高被证实可促进线粒体分裂/碎片化,诱导线粒体内产生活性氧,并扰乱线粒体蛋白的表达26,38,39。
需要强调的是,该工具高度依赖于研究中所使用的抗体;必须对所用抗体染色进行仔细的形态学评估,以识别正确的亚细胞结构。由于该技术基于5 µm切片,因此需要使用单个焦平面来分析线粒体结构,若未观察到表型,并不能排除表型的存在,因为线粒体形态的细微差异可能无法通过该方法检测到。
尽管本研究及其他先前研究已采用类似方法来评估线粒体形态 体内40,有必要为研究界提供一份详细的评估操作流程。本研究的意义在于,该方法可应用于多种 体内 用于评估线粒体形态异常并识别潜在病理改变的疾病模型,这可能最终有助于筛选治疗此类疾病的先导化合物。尽管目前该分析仅限于石蜡包埋组织,但该方法的优势在于可在终末期组织采集后应用于任何疾病模型,因此是一种非常通用的工具。
披露
我们声明不存在利益冲突。
致谢
我们希望感谢本研究的资助方,特别是伊克巴斯克基金会、西班牙科学与创新部、迈克尔·J·福克斯基金会、国际脑研究组织(IBRO)以及阿丘卡罗巴斯克神经科学中心。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 32 G Hamilton 注射器 | Hamilton | 7632-01 | |
| 4',6-二脒基-2-苯基吲哚二盐酸盐(DAPI) | Invitrogen | D1306 | |
| 4/0 USP 45 cm 缝合线 | SSa90 pga | 32345n-36u | |
| Alexa Fluor 488/594-驴抗小鼠 | Invitrogen | A21202; A21203 | 绿色/红色染料-驴抗小鼠 |
| Alexa Fluor 594/647-驴抗兔 | Invitrogen | A21207 A31573 | 红色/远红染料-驴抗兔 |
| AlexaFluor 488-驴抗鸡 | Jackson ImmunoResearch | 703-545-155 | 绿色染料-驴抗鸡 |
| Anti-PSer129 α-突触核蛋白 EP1536Y(兔)抗体 | Abcam | ab51253 | |
| Anti-TOM 20(小鼠)抗体 | Santa Cruz | sc-17764 | |
| Anti-酪氨酸羟化酶(鸡)抗体 | Abcam | ab76442 | |
| Anti-VDAC1(小鼠)抗体 | Santa Cruz | sc-390996 | |
| Anti-α-突触核蛋白抗体 MJFR1(兔) | Abcam | ab138501 | |
| 柠檬酸盐缓冲液 100X 储存液:120 mM 柠檬酸盐缓冲液,含 5% Tween 的水溶液(pH 6) | 自制 | ||
| 组织包埋用一次性底模 | Fisher | 22-363-553 | 塑料包埋盒 |
| D-MEM F12 | Gibco | A321331020 | |
| EVOS M7000 成像系统 | ThermoFisher Scientific | 高内涵全自动荧光显微镜 | |
| 胎牛血清 | Gibco | 10270106 | |
| 平底光学96孔板 | Greiner | 675090 | |
| FluorSave 封片试剂 | Millipore | 345789-20ML | 封片试剂 |
| 谷氨酰胺 200 mM | Gibco | 25030-024 | |
| ImmEdge 疏水屏障笔 | Vector Laboratories | H-4000 | PAP笔 |
| Lipofectamine 和 Plus 试剂 | Invitrogen | 11668-019; 11514-015 | 转染试剂和转染辅助剂 |
| Matrigel | Corning | 354230 | 包被基质 |
| 切片机 | ThermoFisher Scientific | ||
| 正常驴血清 | Gibco | PCN5000 | |
| Opti-MEM | Gibco | 31985070 | 转染培养基 |
| PCDNA4 质粒(骨架) | Addgene | 41036 | |
| 青霉素/链霉素溶液 | Gibco | 15140-122 | |
| SH-SY5Y 细胞/孔 | ATCC | HTB-11 | |
| 二甲苯替代液 | Labbox | 22L36504 | |
| Zeiss Axio Imager Apotome 2 | Carl Zeiss | 结构化照明荧光成像系统 | |
| α-突触核蛋白肽段 | rpeptide | S-1010-2 |
参考文献
- Yang, Y., Lu, B. Mitochondrial morphogenesis, distribution, and parkinson disease. Journal of Neuropathology and Experimental Neurology. 68 (9), 953-963 (2009).
- Schapira, A. H. Mitochondria in the aetiology and pathogenesis of Parkinson's disease. The Lancet Neurology. 7 (1), 97-109 (2008).
- Swerdlow, R. H. Mitochondria and mitochondrial cascades in alzheimer's disease. Journal of Alzheimer's Disease. 62 (3), 1403-1416 (2018).
- Hedrich, K., et al. type, and origin of Parkin mutations: Review and case studies. Movement Disorders. 19 (10), 1146-1157 (2004).
- Kahle, P. J., Haass, C. How does parkin ligate ubiquitin to Parkinson's disease. EMBO reports. 5 (7), 681-685 (2004).
- Dawson, T. M., Dawson, V. L. The role of parkin in familial and sporadic Parkinson's disease. Movement Disorders. 25, S32-S39 (2010).
- Pickrell, A. M., Youle, R. J. The Roles of PINK1, Parkin, and Mitochondrial Fidelity in Parkinson's Disease. Neuron. 85 (2), 257-273 (2015).
- Zhi, L., et al. Loss of PINK1 causes age-dependent decrease of dopamine release and mitochondrial dysfunction. Neurobiology of Aging. 75, 1-10 (2019).
- Bonifati, V., et al. DJ-1(PARK7), a novel gene for autosomal recessive, early onset parkinsonism. Neurological Sciences. 24 (3), 159-160 (2003).
- Chia, S. J., Tan, E. -K., Chao, Y. -X. Historical Perspective: Models of Parkinson's Disease. International Journal of Molecular Sciences. 21 (7), 2464(2020).
- Wilson, D. M., Cookson, M. R., Den Bosch, L. V. an, Zetterberg, H., Holtzman, D. M., Dewachter, I. Hallmarks of neurodegenerative diseases. Cell. 186 (4), 693-714 (2023).
- Moore, D. J., West, A. B., Dawson, V. L., Dawson, T. M. Molecular pathophysiology of Parkinson's disease. Annual Review of Neuroscience. 28 (1), 57-87 (2005).
- Olanow, C. W., Tatton, W. G. Etiology and pathogenesis of Parkinson's disease. Annual Review of Neuroscience. 22 (1), 123-144 (1999).
- Nunnari, J., Suomalainen, A. Mitochondria: In sickness and in health. Cell. 148 (6), 1145-1159 (2012).
- Okamoto, K., Shaw, J. M. Mitochondrial Morphology and Dynamics in Yeast and Multicellular Eukaryotes. Annual Review of Genetics. 39 (1), 503-536 (2005).
- Malpartida, A. B., Williamson, M., Narendra, D. P., Wade-Martins, R., Ryan, B. J. Mitochondrial Dysfunction and Mitophagy in Parkinson's Disease: From Mechanism to Therapy. Trends in Biochemical Sciences. 46 (4), 329-343 (2021).
- Zou, W., et al. Nanoscopic quantification of sub-mitochondrial morphology, mitophagy and mitochondrial dynamics in living cells derived from patients with mitochondrial diseases. Journal of Nanobiotechnology. 19 (1), 136(2021).
- Navaratnarajah, T., Anand, R., Reichert, A. S., Distelmaier, F. The relevance of mitochondrial morphology for human disease. The International Journal of Biochemistry & Cell Biology. 134, 105951(2021).
- Zambon, F., et al. Cellular α-synuclein pathology is associated with bioenergetic dysfunction in Parkinson's iPSC-derived dopamine neurons. Human Molecular Genetics. 28 (12), 2001-2013 (2019).
- Cherubini, M., Lopez-Molina, L., Gines, S. Mitochondrial fission in Huntington's disease mouse striatum disrupts ER-mitochondria contacts leading to disturbances in Ca2+ efflux and Reactive Oxygen Species (ROS) homeostasis. Neurobiology of Disease. 136, 104741(2020).
- Parihar, M. S., Parihar, A., Fujita, M., Hashimoto, M., Ghafourifar, P. Alpha-synuclein overexpression and aggregation exacerbates impairment of mitochondrial functions by augmenting oxidative stress in human neuroblastoma cells. The International Journal of Biochemistry & Cell Biology. 41 (10), 2015-2024 (2009).
- Wiemerslage, L., Lee, D. Quantification of mitochondrial morphology in neurites of dopaminergic neurons using multiple parameters. Journal of Neuroscience Methods. 262, 56-65 (2016).
- Liu, Y. -T., et al. Mt-Keima detects PINK1-PRKN mitophagy in vivo with greater sensitivity than mito-QC. Autophagy. 17 (11), 3753-3762 (2021).
- Shoshan-Barmatz, V., Shteinfer-Kuzmine, A., Verma, A. VDAC1 at the intersection of cell metabolism, apoptosis, and diseases. Biomolecules. 10 (11), 1485(2020).
- Luk, K. C., et al. Pathological α-Synuclein transmission initiates parkinson-like neurodegeneration in nontransgenic mice. Science. 338 (6109), 949-953 (2012).
- Ryan, B. J., et al. REST protects dopaminergic neurons from mitochondrial and α-synuclein oligomer pathology in an alpha synuclein overexpressing BAC-transgenic mouse model. The Journal of Neuroscience. 41 (16), 3731-3746 (2021).
- Yamamoto, H., et al. Dual role of the receptor Tom20 in specificity and efficiency of protein import into mitochondria. Proceedings of the National Academy of Sciences. 108 (1), 91-96 (2011).
- Exner, N., Lutz, A. K., Haass, C., Winklhofer, K. F. Mitochondrial dysfunction in Parkinson's disease: molecular mechanisms and pathophysiological consequences. The EMBO Journal. 31 (14), 3038-3062 (2012).
- Grünewald, A., Kumar, K. R., Sue, C. M. New insights into the complex role of mitochondria in Parkinson's disease. Progress in Neurobiology. 177, 73-93 (2019).
- Baba, M., et al. Aggregation of alpha-synuclein in Lewy bodies of sporadic Parkinson's disease and dementia with Lewy bodies. The American journal of pathology. 152 (4), 879-884 (1998).
- Vázquez-Vélez, G. E., Zoghbi, H. Y. Parkinson's disease genetics and pathophysiology. Annual Review of Neuroscience. 44 (1), 87-108 (2021).
- Mahul-Mellier, A. -L., et al. The process of Lewy body formation, rather than simply α-synuclein fibrillization, is one of the major drivers of neurodegeneration. Proceedings of the National Academy of Sciences. 117 (9), 4971-4982 (2020).
- Ganguly, U., et al. Interaction of α-synuclein and Parkin in iron toxicity on SH-SY5Y cells: implications in the pathogenesis of Parkinson's disease. Biochemical Journal. 477 (6), 1109-1122 (2020).
- Ganjam, G. K., et al. Mitochondrial damage by α-synuclein causes cell death in human dopaminergic neurons. Cell Death & Disease. 10 (11), 865(2019).
- Martin, L. J., et al. Parkinson's Disease α-synuclein transgenic mice develop neuronal mitochondrial degeneration and cell death. The Journal of Neuroscience. 26 (1), 41-50 (2006).
- Choubey, V., et al. Mutant A53T α-Synuclein induces neuronal death by increasing mitochondrial autophagy. Journal of Biological Chemistry. 286 (12), 10814-10824 (2011).
- Chen, L., Xie, Z., Turkson, S., Zhuang, X. A53T Human α-synuclein overexpression in transgenic mice induces pervasive mitochondria macroautophagy defects preceding dopamine neuron degeneration. The Journal of Neuroscience. 35 (3), 890-905 (2015).
- Kamp, F., et al. Inhibition of mitochondrial fusion by α-synuclein is rescued by PINK1, Parkin and DJ-1. The EMBO Journal. 29 (20), 3571-3589 (2010).
- Nakamura, K., et al. Direct membrane association drives mitochondrial fission by the parkinson disease-associated protein α-synuclein. Journal of Biological Chemistry. 286 (23), 20710-20726 (2011).
- Park, J., et al. Abnormal mitochondria in a non-human primate model of MPTP-induced Parkinson's disease: Drp1 and CDK5/p25 signaling. Experimental Neurobiology. 28 (3), 414-424 (2019).
重印与许可
