本方案涉及转染cAMP传感器和一种光遗传学蛋白bPAC-nLuc,以精确追踪其在细胞内的分布及对光刺激的响应。利用点扫描系统构建cAMP响应图谱的创新方法,有望推动光遗传学蛋白在不同研究领域的应用进展。
本文内容
摘要
摘要
我们的目标是准确追踪一种光遗传学蛋白的细胞分布,并评估其在特定细胞质区域内的功能活性。为此,我们将表达核靶向cAMP传感器的细胞与实验室自主研发的光遗传学蛋白——细菌光激活腺苷酸环化酶-纳米荧光素酶(bPAC-nLuc)共同转染。当受到445 nm光照或荧光素酶底物刺激时,bPAC-nLuc可生成腺苷3',5'-环一磷酸(cAMP)。我们采用连接点扫描系统的固态激光照明装置,可在HC-1细胞的细胞质内创建由多个微小照明点(约1 µm2)组成的网格/矩阵图案。通过该方法,我们能够有效追踪核靶向bPAC-nLuc的分布情况,并生成全面的cAMP响应图谱。该图谱精确反映了bPAC-nLuc在细胞内的分布,且其对光刺激的响应强度随照明点内蛋白含量的不同而变化。这一创新方法丰富了当前研究细胞光遗传学蛋白的技术工具箱。实现对其分布与响应的高精度绘图,具有深远的应用潜力,有望推动多个研究领域的发展。
引言
光遗传学最初作为一种彻底改变神经科学的工具而诞生,如今已发展成为一个不断壮大的研究领域,并成为全球众多实验室在生物学多个研究方向中常规使用的一项新兴技术。我们通过将来自贝氏菌(Beggiatoa sp.)的光敏腺苷酸环化酶(adenylyl cyclase;AC)(即细菌光激活腺苷酸环化酶,bPAC)与纳米荧光素酶(nanoluciferase;nLuc)融合,开发出一种多功能光遗传学蛋白bPAC-nLuc1,2,3当受到蓝光刺激时,bPAC 会产生第二信使 3',5'-环磷酸腺苷(cAMP)。nLuc 是一种近期开发的小型荧光素酶,在存在其底物之一的情况下可产生生物发光并激活 cAMP 的生成。4因此,该光遗传学蛋白可通过短暂的光脉冲或持续存在的呋喃唑酮(Furimazine)或其他荧光素酶底物实现瞬时或持续激活,从而模拟不同的cAMP信号模式,并评估细胞反应(如转录因子激活、基因表达、细胞增殖、迁移等)。近年来在2nd 信使信号传导已强调了在细胞质特定受限区域发生的事件的重要性(例如,内体中的cAMP生成用于cAMP反应元件结合蛋白(CREB)的磷酸化或Ca2+ 活化T细胞核因子(NFAT)向细胞核转位的微区5,6因此,开发出一致且系统的策略,用于在活细胞中评估、模拟和阻断这些区室的信号传导具有重要意义。为了验证bPAC-nLuc可在不同细胞区室中被特异性激活的能力,我们将核定位的bPAC-nLuc与Förster共振能量转移(FRET)cAMP传感器H208共转染至一种肝癌来源的细胞系(HC-1)中(NLS-bPAC-nLuc;NLS-H208)。HC-1细胞源自HTC细胞系,本身无可检测的腺苷酸环化酶(AC)活性,因此其基础cAMP水平极低,非常适合用于检测潜在的cAMP生成,同时能够充分利用FRET传感器的完整动态范围7,8. 使用连接至点扫描系统(UGA-42 Geo,Rapp OptoElectronic)的固态激光器(445 nm,LDI-7,89 North),我们描述了一种系统性刺激极小圆形区域或光点(约1 µm)的实验方案2) 在单个细胞内。点扫描系统连接至双层显微镜的一个后端口,使我们能够通过独立的光路同时对细胞进行刺激并进行FRET测量。本方案中介绍了一种方法,利用Rapp OptoElectronic公司刺激系统配套提供的SysCon Geo软件,对细胞的胞质进行全面扫描。该方法通过设置一系列按网格模式照射细胞的光照程序,生成cAMP反应图谱(图1).
方案
1. HC-1 细胞培养及成像前准备
- 将HC-1细胞培养于添加了10%胎牛血清(FBS)、青霉素(100 IU/L)、链霉素(100 mg/L)和L-谷氨酰胺的DMEM培养基中,置于10 cm培养皿内,于37 °C、5% CO2、95%湿度的空气中孵育。
- 当细胞融合度达到约90%时,每2–4天传代一次,传代比例为1:5或1:10。
- 在实验前2天,将细胞接种于玻璃盖玻片上以进行转染。
- 在超净台内无菌操作,使用预热的培养基和PBS,吸除接近融合的细胞培养皿中的培养基,并用5 mL PBS轻轻洗涤一次。
- 吸除PBS,加入1 mL胰蛋白酶溶液,于37 °C孵育3–5分钟,直至细胞脱落。
- 用4 mL培养基重悬细胞,并将细胞悬液转移至15 mL锥形管中。
- 使用血细胞计数板对细胞进行计数,并计算细胞密度。
- 将细胞稀释至密度为1.5 × 10⁴ 个细胞/mL。
- 取2 mL细胞悬液滴加至6孔板中预先涂有聚-D-赖氨酸的25 mm玻璃盖玻片上。
- 将细胞在培养箱中孵育约24小时,直至达到70%融合度。
- 按照转染试剂盒说明书进行细胞转染,每3 µL转染试剂和2 µL P3000试剂(溶于不含酚红的Opti-MEM培养基)对应使用0.25 µg NLS-bPAC-nLuc DNA与0.75 µg NLS-H208 DNA。
- 将细胞继续在培养箱中孵育约48小时,以确保bPAC-nLuc蛋白充分表达,这对于产生可检测水平的cAMP至关重要。
注意:所需bPAC-nLuc表达的最低水平将根据刺激系统的效能及刺激参数的不同而有所变化。 - 准备用于成像的盖玻片细胞。
- 吸除一个孔中的培养基,并用2 mL PBS洗涤两次。
- 用镊子小心取出盖玻片,放入成像腔室中。
- 向成像腔室中加入1 mL不含酚红的Opti-MEM培养基。细胞也可在HBSS或其他生理性的荧光兼容溶液中进行成像。
2. 光照模拟与活细胞成像
- 在黑暗环境中进行表达 NLS-bPAC-nLuc 的细胞培养与操作。为避免暴露于波长 <500 nm 的光线下,使用配备 13 W 琥珀色紧凑型荧光灯泡的红色安全灯(材料表)(材料表)。
- 在配备 6 线多 LED 光源(材料表)、发射滤光轮(材料表)、XY 载物台(材料表)、ORCA-Fusion 数字 CMOS 相机(材料表)和 100x/1.4 NA 油镜(∞/0.17/FN26.5)的电动双层显微镜(材料表)中进行实验。使用数字显微成像软件(材料表)采集图像。该装置可通过配备 ZT458rdc 二向色滤光片(材料表)的独立光路,同时实现细胞光遗传刺激与 FRET 测量。
注意:只要能够实现光遗传刺激与兼容传感器的 FRET/强度成像同步采集,任何成像系统均可使用。 - 打开 UGA - 42 Geosystem。开启显微镜,并根据 H208 FRET 传感器设置适当的参数进行采集。采集配置将取决于 FRET 传感器的表达水平。典型参数为 YFP/mScarletI 的刺激时间为 40 ms,LED 功率为 15%,频率为 0.5 Hz。
- 打开 SysCon 软件以及控制显微镜的成像软件。
- 在 Camera 窗口中,选择 Calibration Tab,并选择与光遗传蛋白兼容的激光波长。为刺激 bPAC-nLuc,使用 445 nm 波长。
- 每次使用前校准系统。这一点非常重要,因为装置中的微小变化,甚至室温(RT)的波动,都可能影响刺激的精确性。
- 在相机窗口中,选择 Camera 选项卡,然后点击 <Start Acquisition>,从成像软件启动图像采集。
- 在 Image Viewer 窗口中,查看来自成像软件的细胞荧光实时或先前采集的图像,以指导 刺激对象 的定位。
- 使用 Click and Fire 模式,在实验开始前快速评估单个细胞的响应性。
- 在 Sequence-Manager 窗口中,选择 <add> 创建新序列。
注意:为验证系统校准是否正确,在 Image Viewer 窗口中绘制各种形状和大小的图案。这些图案应与投射到细胞上的刺激模式精确对应,以确保与预期设计准确对齐。 - 在 Image Viewer 窗口中,选择左侧工具栏中的 Round 图标,绘制圆形 刺激对象。
- 创建多个大小相同的小圆,并均匀分布,以确保待刺激细胞的整个胞质区域被均匀覆盖。
- 右键单击每个圆形以检查圆形 刺激对象 的均匀性。将弹出一个窗口,可用于检查其半径、位置等参数。
- 根据所用物镜和细胞大小,将半径设置在 1 至 5 之间。
- 为帮助圆形均匀排列和对齐,使用 <Snap to Grid> 按钮(位于 View 子窗口中)。此外,可通过 <Set Grid> 按钮设置网格属性。
- 确保由等间距圆形 刺激对象 构成的网格或矩阵完全覆盖细胞,其大小(例如 6 × 6 或 10 × 10)由细胞大小决定。作为不引发任何细胞事件的零刺激对照,可在细胞外部设置一些圆形。
- 在 Image Viewer 窗口中创建的每个对象都将在 Timeline 窗口中显示。
- 在 Object Timing 子窗口中,配置每个 刺激对象 的时间属性(起始时间、持续时间、延迟)。
- 在 Lightsource 子窗口中,配置每个对象的波长和强度。在本方案中,确保每个对象使用相同的波长,且持续时间和强度一致。每个对象的起始时间不同,其间延迟可根据预期结果进行调整,以避免不同刺激效应的叠加。
- 在 Timeline 窗口中,根据需要调整各刺激对象的激活顺序。根据具体实验要求,可将刺激设置为规则模式(如从左到右、从上到下)或随机模式。
- 将序列上传至系统,并配置系统将执行的序列循环次数(运行次数)。
- 在成像软件中将感兴趣区域(ROIs)放置于所需位置。
- 启动显微镜进行荧光图像采集,并在 UGA-42 窗口 中按下 <Play>。
3. 数据分析
- 尽管刺激系统提供的软件允许保存序列以供后续使用,但它不会记录实际的实验信息。因此,必须详细记录实验过程中所使用的刺激位点和序列的全部细节,包括位置、强度、持续时间、运行次数等参数,并记录其他相关的实验条件,如药理学试剂或特定溶液。
- 在实验过程中,应在成像软件中设定指定的感兴趣区域(ROI),以捕获整个细胞或细胞内特定位置的荧光强度变化。
- 需特别注意感兴趣区域(ROI)相对于刺激位点的位置。应在刺激区域内部或远离刺激区域的位置测量荧光强度的变化。实验结束后可调整ROI的位置,并利用成像软件保存实验过程中获取的图像,而不仅仅是ROI的荧光强度数值。
结果
如图1所示,只有针对细胞核的刺激才能产生可测量的cAMP升高。这证实了NLS-bPAC-nLuc仅在HC-1细胞的细胞核区室中表达。利用该网格/矩阵模式可精确刺激光遗传蛋白,以绘制其细胞内分布图。此外,细胞核中心区域cAMP升高更为显著,反映出中心位点所激发的bPAC-nLuc质量高于位于核周区域的位点(图1)。
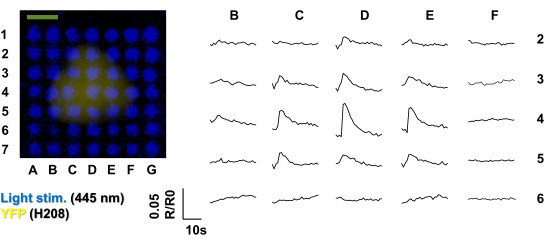
图 1:网格刺激方案与 cAMP 响应图谱。 对转染了 NLS-H208(cAMP 传感器)和 NLS-bPAC-nLuc 的 HC-1 细胞施加连续蓝光刺激(445 nm;脉冲间间隔 30 s;脉冲序列:50 ms,总持续时间 500 ms,10 Hz,激光功率 7%)。左侧面板显示来自 H208 的黄色荧光蛋白(YFP)荧光信号,与 sCMOS 相机捕获的实际光脉冲叠加,呈现在单幅图像中。右侧曲线显示在每个刺激位点由 NLS-bPAC-nLuc 激活引发的瞬态 cAMP 升高。通过一个覆盖整个细胞核的单一感兴趣区域(ROI)测量背景扣除后的 NLS-H208 荧光信号,并计算归一化比值(R/R0)。外周区域(第 1 和 7 行,A 和 G 列)的响应为阴性,未予展示。比例尺 = 3 µm。 请点击此处查看该图的放大版本。
讨论
本研究的目的是精确监测光遗传蛋白在细胞内的分布情况,并评估其在特定细胞质区域中的功能表现。我们还展示了点扫描系统对表达光遗传蛋白的细胞进行精确刺激的能力。为实现这一目标,我们采用了具有高表达水平但分布范围极为局限、仅存在于细胞核内的核靶向bPAC-nLuc。结果显示,即使相距仅约1 µm的刺激位点,是否引发cAMP生成也取决于光遗传蛋白在细胞内的分布位置;只有针对细胞核的刺激才能提高cAMP水平。本实验方案的目的并非产生局部化的cAMP升高,而是证明短暂的光刺激足以精确激活细胞内非常局限区域中的光遗传蛋白,而不会激活周围区域的蛋白。然而,该方法对于研究其他具有广泛分布特性的光遗传蛋白,或实现局部cAMP升高的研究而言,是一项必要的对照措施。这可通过调节光遗传蛋白的表达水平、刺激强度与频率等参数来实现。为了准确测量这些局部信号,必须仔细考虑成像采集参数和传感器特性,包括选择合适的感兴趣区域(ROI)位置与大小、确定采集频率,以及选用具有最佳亲和力、荧光强度、动态范围和解离常数的FRET/强度型传感器。
在最近发表的一篇文章中,我们采用类似策略,功能性地证明了靶向细胞核的 bPAC-nLuc 的分布特性,以及一种修饰的磷酸二酯酶(PDE;ΔRI-PDE8)在甲状腺来源的细胞系中消除 cAMP 升高的能力9。在该研究中,我们沿直线而非网格对细胞进行刺激,且光照位点相对于细胞结构特征(如细胞核中心、核边缘等)进行定位,而非采用系统性排列。值得注意的是,即使针对核边缘的刺激也未能引发可检测的 cAMP 反应。我们推测,这可能是由于被激活的 NLS-bPAC-nLuc 分子数量不足所致9。然而,在本实验方案中,某些位于核边缘附近的刺激却引发了可检测的 cAMP 升高。这种差异可能源于多种因素,包括 bPAC-nLuc 的表达水平、刺激参数的特性、细胞核形态、内源性 PDEs 的存在以及缓冲蛋白等。
尽管其他靶向或非靶向的光遗传学蛋白可能表现出更弥散的分布,但通过精心设计实验并分析数据,这种系统性方法有助于得出有意义的结论。此外,该方法能够靶向特定的细胞结构(例如片状伪足、树突、初级纤毛等),从而促进对这些结构远端与近端区域之间以及/或者细胞体之间的反应进行比较。
该策略还可用于评估 cAMP 通路中下游元件的激活情况,例如蛋白激酶 A(PKA)或环磷酸腺苷直接激活的交换蛋白(EPAC1)。此外,由于 bPAC-nLuc 不受内源性腺苷酸环化酶(ACs)所受的相同调节因子影响(后者可能受到与蛋白质或其他因素局部相互作用的影响),因此可以认为在表达水平相同的情况下,bPAC-nLuc 能够持续生成相同数量的 cAMP。通过检测 cAMP 升高后的降低幅度或 cAMP 水平在短暂上升后的下降情况,该方法可用于评估 cAMP 的降解、扩散过程,或内源性及转染的磷酸二酯酶(PDEs)的功能性与分布情况。该策略在评估光遗传学蛋白在细胞不同位置的行为时尤为有用,有助于避免在细胞质内任意设定刺激位点所带来的偏差。
需要注意的是,刺激光斑的大小及其能量最终取决于所用设备的具体特性(光路、物镜、扫描系统等)。为了确保结果准确,在每种特定系统中进行实验时,应考虑光遗传蛋白的相对表达水平、细胞对所用波长的敏感性以及其他相关参数。此外,必须指出的是,我们尚未研究该系统在实现更小刺激光斑和/或更密集网格(即刺激光斑间距更小)方面的极限能力,以更精确地系统性评估更微小的细胞结构。同时,本策略仅在UGA-42 Geo点扫描系统上进行了测试。尽管如此,只要其他系统能够可重复地生成间距均匀的局部光斑,该方法也可能适用于其他系统。每种系统均需进行优化,以获得类似的结果。
最后,应仔细评估刺激系统对FRET传感器的潜在激发作用。例如,本实验方案中使用的445 nm激光必然会对青色荧光蛋白(CFP)产生激发,甚至导致其漂白。使用更高功率的激光(或更高透光率的中性密度(ND)滤光片)将增加激发荧光传感器的可能性,从而向实验引入假信号,和/或导致数据分析出现问题。FRET/强度型传感器正常的光漂白现象也应被仔细评估。此外,由于bPAC可能对环境光敏感,即使在黑暗条件下也能生成cAMP(bPAC的暗活性已被测定为33 ± 5 pmol/min/mg蛋白3),因此在转染bPAC-nLUC后应谨慎操作细胞,避免光照污染(例如在培养箱中、实验前和/或实验过程中等)。可选地,可使用磷酸二酯酶(PDE)抑制剂(例如3-异丁基-1-甲基黄嘌呤;IBMX10)处理细胞,以测定bPAC-nLuc的基线活性,并确认所用光照条件确实足够黑暗。
披露
作者声明无竞争利益。
致谢
本研究由美国国立卫生研究院(NIH)资助,项目编号为R01 GM099775和GM130612,授予D.L.A.。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 13 W 琥珀色紧凑型荧光灯泡 - 低蓝光 | Photonic Developments | ||
| 3-异丁基-1-甲基黄嘌呤(IBMX) | Sigma | I7018 | |
| 6通道多LED Lumencor Spectra X | Lumencor | 6通道多LED光源引擎 | |
| Corning - DMEM | Thermo Fischer | MT10013CMEA | |
| Corning - 普通胎牛血清 | Thermo Fischer | MT35011CV | |
| 盖玻片:圆形 | Thermo Fischer | 12545102P | |
| GBX-2 深红色安全灯滤光片 5.5" | Kodak | 1416827 | 红色安全灯 |
| Hanks' 平衡盐溶液(HBSS)10x | Thermo Fischer | 14185052 | 稀释至1x,调节pH |
| LDI-7 | 89 North | ||
| L-谷氨酰胺 | Thermo Fischer | BW17605E | |
| Lipofectamine 3000 | Thermo Fischer | L3000001 | 转染试剂盒 |
| Olympus IX83 电动双层显微镜 | Olympus | 电动双层显微镜 | |
| Opti-MEM,无酚红 | Thermo Fischer | 11058021 | |
| ORCA-fusion 数字CMOS相机 | Hamamatsu | C14440-20UP | |
| 青霉素-链霉素(10,000 U/mL) | Thermo Fischer | 15140122 | |
| 磷酸盐缓冲液(1x) | Lonza | 17516F | |
| Prior 发射滤光轮及滤光片组 | Prior Scientific, Inc. | 发射滤光轮 | |
| Prior Proscan XY 载物台 | Prior Scientific, Inc. | XY 载物台 | |
| Slidebook 6 | Intelligent Imaging Innovations | 数字显微成像软件 | |
| SysCon 软件 | SysCon Software | 刺激系统配套软件 | |
| UGA-42 Geo | Rapp OptoElectronic | ||
| UPlanSApo 100x | Olympus | 100x/1.4 数值孔径油镜(∞/0.17/FN26.5) | |
| ZT458rdc 二向色镜 | Chroma Technology Corp | 分束镜,中心波长(CWL): 498 nm |
参考文献
- Naim, N., et al. Luminescence-activated nucleotide cyclase regulates spatial and temporal cAMP synthesis. The Journal of Biological Chemistry. 294 (4), 1095-1103 (2019).
- Naim, N., Reece, J. M., Zhang, X., Altschuler, D. L. Dual activation of cAMP production through photostimulation or chemical stimulation. Methods in Molecular Biology (Clifton, N.J). 2173, 201-216 (2020).
- Stierl, M., et al. Light modulation of cellular cAMP by a small bacterial photoactivated adenylyl cyclase, bPAC, of the soil bacterium Beggiatoa. The Journal of Biological Chemistry. 286 (2), 1181-1188 (2011).
- Hall, M. P., et al. Engineered luciferase reporter from a deep sea shrimp utilizing a novel imidazopyrazinone substrate. ACS Chemical Biology. 7 (11), 1848-1857 (2012).
- Liccardo, F., Luini, A., Di Martino, R. Endomembrane-based signaling by GPCRs and G-proteins. Cells. 11 (3), 528(2022).
- Groschner, K., Graier, W. F., Romanin, C. Store-operated ca(2)+ entry (SOCE) pathways. , Springer, Vienna. (2017).
- Ross, E. M., Howlett, A. C., Ferguson, K. M., Gilman, A. G. Reconstitution of hormone-sensitive adenylate cyclase activity with resolved components of the enzyme. The Journal of Biological Chemistry. 253 (18), 6401-6412 (1978).
- Insel, P. A., Maguire, M. E., Gilman, A. G., Bourne, H. R., Coffino, P., Melmon, K. L. Beta adrenergic receptors and adenylate cyclase: products of separate genes. Molecular Pharmacology. 12, 1062-1069 (1976).
- Pizzoni, A., Zhang, X., Naim, N., Altschuler, D. L. Soluble cyclase-mediated nuclear cAMP synthesis is sufficient for cell proliferation. Proceedings of the National Academy of Sciences of the United States of America. 120 (4), e2208749120(2023).
- Keravis, T., Lugnier, C. Cyclic nucleotide phosphodiesterase (PDE) isozymes as targets of the intracellular signalling network: benefits of PDE inhibitors in various diseases and perspectives for future therapeutic developments. British Journal of Pharmacology. 165 (5), 1288-1305 (2012).
重印与许可
