利什曼原虫翻译提取物(LTE)是一种源自单细胞寄生虫Leishmania tarentolae的真核无细胞蛋白表达系统。该优化方案使LTE的制备过程简便且成本低廉,适用于多种研究复杂真核蛋白及其相互作用的多平行表达与分析应用。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
本方案概述了源自单细胞鞭毛虫Leishmania tarentolae的真核无细胞蛋白表达系统(CFPS)的制备与优化过程,该系统被称为利什曼虫翻译提取物(Leishmania Translational Extract,简称LTE)。尽管该生物最初是壁虎的寄生虫,但其可在摇瓶或生物反应器中轻松且低成本地培养。与Leishmania major不同,它对人类无致病性,无需特殊的实验室防护措施。使用利什曼虫进行无细胞蛋白表达的另一优势在于:只需向CFPS中添加一条靶向所有蛋白编码RNA 5'端保守剪接前导序列的反义寡核苷酸,即可抑制内源性蛋白的表达。我们提供了细胞裂解和裂解液处理的操作流程,相较于先前版本已进一步简化并优化,且整个流程从简单的摇瓶培养开始。此外,我们还阐述了如何使用含有物种非依赖性翻译起始位点(SITS)的载体引入遗传信息,以及如何开展简便的批次优化和质量控制,以确保蛋白表达质量的一致性。
引言
20世纪60年代,无细胞蛋白表达系统在破译遗传密码的过程中发挥了关键作用1。然而,目前基于原核生物(主要是大肠杆菌 E. coli)的无细胞蛋白表达系统在实验室和商业应用中仍占主导地位。尽管基于 E. coli 的系统具有成本低、可扩展性强和表达产量高等优势,但在产生活性形式的多结构域蛋白以及促进蛋白复合物组装方面仍面临挑战2,3。目前常用的真核无细胞蛋白合成(CFPS)系统主要包括小麦胚芽提取物(WGE)、兔网织红细胞裂解液(RRL)和昆虫细胞裂解液(ICL)4,5,6。本研究介绍了一种替代性的真核无细胞表达系统,该系统基于单细胞鞭毛虫寄生虫 Leishmania tarentolae,具有操作简便且可扩展的特点。
Leishmania tarentolae 可在烧瓶中使用低成本培养基轻松培养,并可在生物反应器中扩大培养以获得更高的细胞密度。通过使用靶向利什曼原虫mRNA剪接前导序列保守区的反义寡核苷酸,可中和细胞裂解液中内源性mRNA,从而避免其与外源引入的mRNA发生竞争7。与可引起人类疾病的近缘种Leishmania major不同,L. tarentolae感染摩尔壁虎(Tarentolae mauritanica),因此可在PC2级实验室环境中培养,无需采取特殊防护措施。该生物此前已被用作转基因宿主,用于体内蛋白表达8。
为了促进无细胞系统中的模板引物结合,已基于增强翻译起始的聚合RNA结构设计了通用序列9。这些物种无关的翻译序列(SITS)适用于原核和真核无细胞系统,并可用于向LTE系统中引入遗传信息。尽管本实验方案未详细说明用于LTE无细胞蛋白表达的载体构建方法,但优化和质量控制需要合适的载体,这些载体应在SITS位点下游包含目标蛋白的荧光蛋白融合序列。为此,合适的LTE载体已存入Addgene基因库,例如pCellFree_G03载体,该载体利用Gateway克隆位点编码目标蛋白N端的eGFP融合蛋白。
LTE 已在需要蛋白质表达的多种应用中证明了其价值,包括蛋白质自组装分析10,16、人源整合膜蛋白的生产17、抗病毒药物候选物的研究18、具有生物技术应用价值的酶的开发19、蛋白质生物传感器的原型设计20,21,以及钩虫来源生物制剂的研究22。LTE 还在病毒学和细胞结构领域中用于绘制蛋白质-蛋白质相互作用网络,发挥了重要作用21,32。在表达全长、单一分散且非聚集状态的蛋白质方面,LTE 的性能已与其他真核无细胞系统相当33,同时在生产成本和可扩展性方面更具优势。
本方案提供了培养和裂解宿主生物体、制备裂解液以及配制用于偶联转录/翻译蛋白表达的喂养溶液(FS)的技术。此外,还包括优化生产批次的方案。在利什曼原虫无细胞系统的初始版本中,蛋白表达水平、全长蛋白比例以及蛋白聚集体的存在表现出不期望的批间差异,导致部分批次被弃用34。后续对方案进行了改进以解决该问题25。当前方案在此基础上进一步优化,使各个批次均可实现蛋白表达量和蛋白大小的峰值表现。该目标通过严格控制细胞破碎仪的加样量(以600 nm处的光密度,即OD600nm衡量),并利用280 nm处的吸光度(Abs280nm)对所得裂解液进行标准化来实现。此外,本方案还引入了一种在生产过程中部分补充rNTP和镁离子的方法,并在测试表达期间进一步优化这些喂养溶液组分。尽管该优化步骤在方案中被列为可选步骤,但作者强烈推荐使用。
访问受限。请登录或开始试用以查看此内容。
方案
本方案包含详细的培养基配方以及涉及细胞培养、离心、使用多功能酶标仪测量GFP荧光、测量培养物OD600nm和测定裂解液Abs280nm的操作步骤。同时涵盖了SDS-PAGE蛋白凝胶的制备与成像。本方案所需或建议使用的材料列于“材料”电子表格中。需要注意的是,常见的实验室资源,如培养基组分、离心机、离心管、分光光度计和凝胶电泳装置,除非另有说明,通常可互换使用。图1概述了LTE的制造流程。
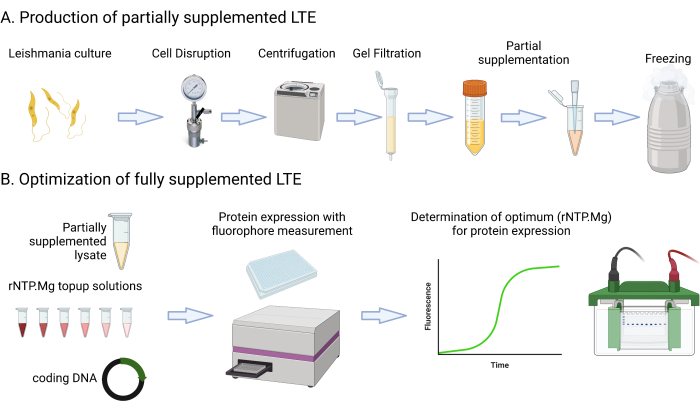
图 1:LTE 制备流程概览。 本示意图简要总结了 LTE 的制备流程。请点击此处查看该图的放大版本。
1. 利什曼原虫(Leishmania tarentolae)培养物的培养
- 准备至少 3 L 的 TBGG 培养基(每升含 Bactotryptone 12 g、酵母提取物 24 g、甘油 8 mL、葡萄糖 1 g、KH2PO4 2.3 g/L,K2HPO4 2.5 g/L,参见 材料清单)。使用高压灭菌器对培养基进行灭菌 0.22 µm 在真空或类似装置下过滤。
- 将培养基置于室温(RT)保存,并在接种前加入终浓度的血红素和抗生素 L. tarentolae0.25% (v/v) 氯化血红素(溶于50% 三乙醇胺)以0.2% (v/v) 添加,青霉素(10,000 单位/mL)联合链霉素(10,000 µg/mL) 按 0.5% v/v 的比例混合。
注意:本实验方案的起始点为培养的 2 x 10 mL 野生型菌液 L. tarentolae. 维持培养物在 27 °C 在标准的50 mL组织培养瓶中以低速摇动(75 rpm)培养。此类10 mL培养物可每2-3天用无菌TBGG培养基(含血红素、青霉素、链霉素)以约1/20比例传代,长期维持培养。建议在二级生物安全实验室的生物安全柜中操作;然而,由于添加了抗生素,通常可防止细菌污染,而真菌污染一般会被快速增殖的培养物所抑制。 L. tarentolae. - 两天内,扩增 L. tarentolae 将维持培养物分别加至 200 mL(第 1 天)和 2 L(第 2 天) 通过 每天用体积递增的TBGG + 血红素/抗生素进行1:10稀释。两种稀释均在经高压灭菌的带挡板5 L玻璃烧瓶中进行(最大装液量为1 L)。第二次稀释必须在下午3至6点之间完成,以便于次日上午8至11点开始进行裂解物的制备。
注意:本方案使用 LTE 生产的最小起始体积(2 × 1 L 培养物)。也可通过增加一次扩增步骤,将培养规模扩大至 10 L 用于 LTE 生产(例如,第 1 天:100 mL;第 2 天:1 L;第 3 天:10 L)。尽管本方案使用带挡板的摇瓶(参见 材料清单) 以进行培养 L. tarentolae可选地,可使用专为细菌培养设计并配备鲁什顿搅拌器的传统生物反应器,但搅拌速率应保持在100 rpm以下。生物反应器中更优的通气和pH控制通常可延长对数生长期 L. tarentolae 培养物,从而实现更高的收获光密度600 nm 用于步骤1.4的10份 - 记录 OD600 nm 三份平行培养 通过 在分光光度计比色皿中用TBGG直接进行1:10稀释。制备裂解液的合适起始范围为OD600 nm = 4.0-8.0.
- 如果 OD 值未达到预期,可适当延长孵育时间。600nm < 4.0. OD值为600nm > 8 可用,可获得更大体积的无细胞表达裂解液,但由于进入对数后期生长阶段,质量较低。将培养瓶置于冰上,等待后续操作。
注意:准确测量最终培养物的 OD600 nm 至关重要,因为它用于在细胞裂解前计算浓缩细胞的最终体积。该计算方法取代了早期LTE制备过程中采用的细胞沉淀物称重法,以校准裂解前的细胞浓度。34,以简化实验步骤。确保在TBGG中稀释以测定OD600 nm 测量时需避免渗透压休克,否则会改变细胞形态,导致测量误差。用移液器混匀1:10稀释液以测定OD600nm 在进行分光光度读数前几秒(直接在比色皿中)进行测量,如 L. tarentolae 细胞会迅速沉淀,呈现明显的浑浊外观。如果表达培养物的终体积仅为估算值,建议在收获时对锥形瓶称重(使用相应的空瓶皮重),以获得更准确的体积估算值(按 1 g = 1 mL 换算)。最大 OD600 nm 可能的来源 L. tarentolae 带挡板锥形瓶中的生长量为15-20,但由于会进入稳定期,因此不适合用于裂解液的制备。
2. L. tarentolae 培养物的浓缩
- 在裂解前,必须将 Leishmania 细胞洗涤并浓缩约 60 倍。根据 OD600nm = 300 计算最终浓缩液的目标体积。计算公式为 V = 收获体积 (mL) × (收获 OD600nm / 300)。例如,使用 2 L 培养液且收获时 OD600 = 5,则目标体积为 33 mL。
注意:OD600nm = 300 的目标值可进行调整;以往的 LTE 制备中曾使用 150–350 范围内的数值。细胞浓度越高,裂解后无细胞表达反应的蛋白产量通常越高,但易感蛋白发生聚集的倾向也相应增加。OD600nm = 300 是 LTE 制备的适宜默认目标。 - 将收获的培养物转移至合适的离心管中,在 4 °C 条件下以 2500 × g 离心 10 分钟。小心将上清液倾入培养废液容器中。
注意:应尽量减少细胞随弃去的上清液流失,因为这会影响裂解加样量的计算。在以往的 LTE 制备方案中,L. tarentolae 细胞用于裂解前的浓度标定是通过将浓缩细胞在测试微量离心管中离心后,测定沉淀重量与总重量之比来完成的34。本简化方案则基于测得的收获 OD600nm,采用理论上的浓缩目标 OD600nm,并假设在细胞浓缩和洗涤过程中细胞损失较少。 - 用 SEB 缓冲液(45 mM HEPES-KOH pH 7.6,250 mM 蔗糖,100 mM KOAc,3 mM Mg(OAc)2,冰上保存)将细胞沉淀洗涤三次,每次在 4 °C 条件下以 2500 × g 离心 10 分钟。第一次洗涤时,每 1 L 沉淀培养物用 100 mL SEB 缓冲液重悬,然后合并至同一离心瓶中。第二次洗涤时,每 1 L 原始培养物也使用 100 mL SEB 缓冲液。
注意:在最后一次沉淀重悬时,加入 SEB 缓冲液至最终目标重悬体积的 50%(步骤 2.1)。这使得合并后的浓缩液可在步骤 2.4 中精确补加至最终目标体积。每次重悬操作均应尽可能轻柔,以避免 L. tarentolae 提前裂解,例如通过轻轻摇动使加入的 SEB 缓冲液润湿倾去上清后的沉淀,或用移液器将 SEB 缓冲液滴加至附着在离心管壁上的沉淀处。最后一步可能更方便将上清液转移至较小的离心管中进行处理。 - 将重悬后的浓缩液倒入合适的洁净玻璃量筒中,用额外的冷 SEB 缓冲液补足至目标体积(步骤 2.1),并轻轻混匀。
3. 裂解 L. tarentolae 浓缩物
- 将细胞浓缩物转移至氮气破胞装置中(参见 材料表) 预冷至 4 °C,用氮气加压至70巴,在冰上孵育45分钟。
注意:尽管氮气破菌仪并非常见的实验室设备,但推荐用于LTE的制备。研究人员已尝试其他替代方法,如细胞冻融法和法兰式压碎器;然而,这些方法的蛋白表达活性较低。 <与使用氮气空化法相比,效率提高了50%。氮气空化装置在使用前以及每次运行之间必须彻底清洗,所有后续会接触细胞裂解液的可重复使用的容器(如接收瓶)均需如此。合适的清洗程序包括使用实验室洗涤剂清洗,随后用去离子水充分冲洗。 - 打开氮气减压裂解装置的排气阀,将裂解液排入一个足够坚固的容器中,例如置于冰上的真空接收瓶。倾斜接收瓶,确保所有裂解液完全沉降,以便用移液器转移至新的离心管或其他类似容器中。
警告:氮气破胞仪依赖于将细胞浓缩液从70巴的氮气压力突然降至环境压力,此过程通过液体先流出、随后氮气快速通过装置出口阀实现。排气操作必须在化学安全通风橱中进行,并佩戴适当的个人防护装备(PPE)。存在目标容器破裂和裂解液损失的风险,因此我们使用坚固的真空接收瓶而非普通锥形瓶。如果装置的出口阀为管状结构,应避免将管子直接插入接收瓶内,以防止排气点压力过度积聚。
4. 细胞裂解液的离心
- 将裂解液转移至适合承受相应 g 力的离心管中,在 4 °C 条件下以 10,000 × g 离心 15 分钟。将上清液转移至新的、相同的离心管中。
- 在 4 °C 条件下以 30,000 × g 将裂解液离心 15 分钟,然后将最终的上清液转移至预冷的离心管或其他类似的容器中,并置于冰上。估算总体积。
5. 细胞裂解液的凝胶过滤
注意:采用凝胶过滤法去除SEB缓冲液中的蔗糖。尽管蔗糖在细胞破碎过程中有助于稳定细胞内 machinery,但若在蛋白表达反应中残留,则会降低产量。
- 设置足够数量的PD-10重力驱动凝胶过滤柱(参见材料表),将其置于支架中,使柱子可将液体滴入下方的收集盘或类似容器中,确保每根柱子可处理2.5 mL的裂解液体积。在使用前,先让10 mL的4 °C EB缓冲液(45 mM HEPES-KOH pH 7.6,100 mM KOAc,3 mM Mg(OAc)2)流过柱子,以进行预平衡。
注意:从这一步开始的所有操作最好在4 °C冷室中进行。然而,也可将所有裂解液和试剂置于台面上的冰盒中保存。凝胶过滤步骤是一个例外,作者在此步骤中将一排柱子置于4 °C冰箱内进行缓冲液置换。在本方案的早期版本中,新的凝胶过滤柱需先用缓冲液处理裂解液并弃去初次流出液,以“封闭”柱子。尽管目前认为这并非必要,但柱子必须用EB缓冲液冲洗,并在不同批次裂解液处理之间于4 °C保存。由于新柱子可能对裂解液组分存在一定的背景滞留,初次流出的裂解液蛋白表达活性可能低于后续流出液。 - 向每根柱子中加入2.5 mL裂解液,待其完全进入柱体。再加入额外0.5 mL EB缓冲液,使裂解液完全沉入柱中,同时弃去流出液。
- 通过向每根柱子中再加入2.5 mL EB缓冲液,洗脱经凝胶过滤的裂解液,并在柱子下方放置新的洁净托盘或其它容器以收集流出液。
6. 细胞裂解液的补充
- 使用纳米滴度分光光度计(见材料表)测定经凝胶过滤的裂解液在280 nm处的吸光度(Abs280nm)。若其值超过60,则用额外的4 °C EB缓冲液稀释至Abs280nm = 60。
注意:尽管通过OD600nm控制用于裂解的细胞密度可大致确定裂解液的浓度,但在裂解和处理后对Abs280nm进行归一化处理,可进一步提高裂解液批次间性能的一致性。裂解液的Abs280nm可根据需要上调或下调,这将影响蛋白表达产量和聚集倾向(参见讨论部分)。若未经补充的裂解液显示Abs280nm < 60,则可能需要在裂解步骤中加入更多的利什曼原虫生物量,即在步骤2.1中将细胞破碎仪的加载量提高至OD600nm > 300。 - 按2:5的比例向裂解液中加入5倍浓缩喂养溶液(5x FS,表1),并充分涡旋混匀。分装至合适的容器中(例如1.5 mL微量离心管),并在液氮中快速冷冻。若后续将执行下方的可选步骤7.1–7.3以优化LTE表达,则应使用表1中提供的降低rNTP和Mg浓度的5x FS,而非默认的5x FS。同时预留5份各100 µL的分装样品用于冷冻,以备优化实验使用。
注意:以2:5比例加入默认5x FS并冷冻,可制备出可直接用于表达的补充型LTE裂解液,使用时按每10 µL表达体系加入7 µL(因此5x FS在最终反应中稀释为1x FS)。然而,作者推荐采用进一步优化的可选方案,即在5x FS中提供默认量0.6倍的rNTP和镁离子。随后通过优化步骤,向测试反应体系中添加等摩尔混合的rNTP和Mg(称为rNTP.Mg),使其达到优化浓度。该部分配制的5x FS还包含一条可抑制内源mRNA表达的寡核苷酸(参见引言部分)。该寡核苷酸的序列为CAATAAAGTACAGAAACTGATACTTATATAGCGTT。
7. 最终补充型 LTE 的质量控制与优化
注意:确定在降低的 rNTP 和镁补充裂解液中适当“补加”rNTP·Mg 所需的最少必要步骤,包括表达无融合伴侣的 eGFP 或类似荧光蛋白(例如 sfGFP)。通过向反应体系中添加递增浓度的 rNTP·Mg,确定表达水平(以 eGFP 荧光相对单位,RFU 表示)达到稳定的临界点 通过 多功能酶标仪)进行优化。当rNTP-Mg浓度过高时,eGFP的过早终止产物(无荧光)将导致eGFP相对荧光单位(RFU)下降,从而可被检测到。然而,液相转录-翻译偶联系统(LTE)在表达较大蛋白质时更易频繁出现短产物故障。>50 kDa)。因此,可以使用比 eGFP 更大的模板进行此优化,特别是当该模板已存在于合适的表达载体中时,可实现特定应用或研究所需的荧光蛋白融合体在 LTE 系统中的表达(参见代表性结果部分)。
- 解冻100 µL分装液,并设置六组10 µL的表达反应,每组反应包含6.2步骤中部分补充的7 µL裂解液、按表2添加的1 µL补充液,以及含有足量DNA对照模板的2 µL超纯水,使反应中DNA终浓度达到50 ng/µL。
- 在25 °C下孵育反应体系2小时,并使用多功能酶标仪监测GFP荧光强度的增加。
注意:GFP检测的合适参数设置为激发波长485 nm(带宽5 nm),发射波长516 nm(带宽5 nm),每1分钟读数一次,持续2小时。 - 根据最终表达量对结果进行排序,以确定对应最高eGFP相对荧光单位(RFU)的rNTP.Mg浓度。若有动力学数据,表达期间2小时内eGFP RFU呈双相上升趋势也提示rNTP.Mg过量(参见代表性结果部分)。
- 确定优化后的rNTP.Mg补充浓度后,在后续使用前述步骤中部分补充的LTE批次进行的所有蛋白表达反应中均加入该浓度的补充液。
注意:若在6.2步骤中分装时精确控制体积,则可在不反复冻融的情况下回补补充液,例如将分装管置于干冰上直接添加。此后这些分装液即为完全补充状态,因为每次使用时解冻并混匀即可使正确的rNTP.Mg补充液均匀分布于各反应体系中。
访问受限。请登录或开始试用以查看此内容。
结果
无细胞蛋白表达的目的是在折叠且具有活性的形式下,合成适用于多种应用的全长蛋白质。Leishmania tarentolae 提取物(LTE)此前已被与其他原核和真核无细胞表达系统进行比较,结果表明,在操作条件优化时,LTE 在避免蛋白截短和聚集方面具有显著优势,尤其相较于基于 E. coli 的无细胞表达系统33。然而,此前该系统存在批次间输出质量差异显著的问题。本方法通过在将 LTE 分装后、初始冷冻前对必要的补料溶液进行部分预补充,进一步改进了工艺,以确保输出质量的一致性。随后,通过优化转录所需的 rNTP·Mg 添加量,将其配制成可补充溶液,用于每个后续反应,或直接用于补充分装的冻存样品。值得注意的是,优化反应本身也代表了 LTE 在实际蛋白表达中的典型使用方式,即在 25 °C 下反应 2 小时。
通过优化无细胞反应中 rNTP·Mg 浓度所获得的数据提供了一个代表性数据集。随着转录输入(rNTP·Mg)的增加,表达水平通常上升,表明表达成功。然而,当达到某一阈值后,系统倾向于产生无功能的截...
访问受限。请登录或开始试用以查看此内容。
讨论
过去十年中已发表多种构建LTE的方案7,并经历了周期性的更新25,34。然而,初学者在采用该技术时常面临陡峭的学习曲线,导致难以快速实现高质量、高产量的蛋白质表达。其他从事LTE研究的课题组也报告了类似的挑战35,尤其是批次间存在显著差异的问题。基于视频的方案形式可能提供额外的、不易察觉的实验设置细节,有助于潜在用户更好地掌握技术要点34。本文对原有方案进行了多项改进,旨在提高实验成功率、简化操作流程、缩短耗时,并减少因操作复杂性导致的错误。
在细胞破碎过程中,精确控制将细胞加载到氮气空化细胞破碎仪中的操作至关重要34。由于细胞浓缩和洗涤后细胞密度较高,实现这一控制可能具有挑战性。在原始方案中,曾采用多种方法,例如离心少量最终浓缩的培养物并测定细胞沉淀所占比例。然而,在本方案中...
访问受限。请登录或开始试用以查看此内容。
披露
不存在相互竞争的经济利益。
致谢
作者希望感谢过去10年来为LTE系统开发做出贡献的Alexandrov实验室众多成员,特别是Sergey Mureev,他开创了该系统并开发了SITS核糖体进入位点。图1由Biorender.com创建,并经许可复制。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| PD-10 SuperDex 25 层析柱 | Cytiva | 17085101 | 凝胶过滤层析柱 |
| 氮气破碎细胞仪 | Parr Industries | 4635 或 4639 | 细胞破碎仪 |
| 牛源血红素 | Sigma-Aldrich | H5533 | 培养添加剂 |
| 青霉素/链霉素 10000U/ml | Thermo-Fisher | 15140122 | 抗生素混合液 |
| Optiplate 384 | Perkin-Elmer | 6007290 | 适用于 10 µl 表达反应的多孔板 |
| 寡核苷酸 | IDT 合成 | 序列 CAATAAAGTACAGAAACTGATAC TTATATAGCGTT 的寡核苷酸 | |
| 磷酸肌酸激酶 | Sigma-Aldrich | 9001-15-4 | 酶 |
| Tecan Spark | Tecan | 或类似多功能酶标仪 | |
| Chemidoc MP 成像系统 | Biorad | 或类似的 SDS-PAGE 凝胶成像系统 | |
| 4-12% Bis-Tris 凝胶 | Invitrogen | NW04125 | SDS-PAGE 凝胶 |
| Biophotometer | Eppendorf | 或类似的比色皿分光光度计 | |
| Nanodrop One | Thermofisher | Nanodrop 分光光度计 | |
| Avanti JXN-26 离心机 | Beckman Coulter | 或类似的离心机,配备可耐受 10,000 ×g 和 50,000 ×g 的转子和离心管 | |
| 5424R 微型离心机 | Eppendorf | 或类似的微型离心机,配备 1.5 ml 微量离心管 | |
| Flask Incubator Inova S44i | Eppendorf | 或类似的适用于 5 L 三角瓶的培养摇床 | |
| 5 L 玻璃培养瓶 | 带挡板的玻璃培养瓶,用于培养扩增 | ||
| 胰蛋白胨 | BD | 211705 | 生长培养基组分 |
| 酵母提取物 | Merck | VM930053 | 生长培养基组分 |
| 甘油 | 任意分析纯级别 | ||
| 葡萄糖 | 任意分析纯级别 | ||
| KH2PO4 | 任意分析纯级别 | ||
| K2HPO4 | 任意分析纯级别 | ||
| UltraPure 水 | Invitrogen | 10977-015 | 或任意 MilliQ 类型纯水系统的出水 |
参考文献
- Nirenberg, M. W., Matthaei, J. H. The dependence of cell-free protein synthesis in E.coli upon naturally occurring or synthetic polyribonucleotides. Proc Natl Acad Sci USA. 47 (10), 1588-1602 (1961).
- Caschera, F., Noireaux, V. Synthesis of 2.3 mg/ml of protein with an all Escherichia coli cell-free transcription-translation system. Biochimie. 99, 162-168 (2014).
- Kelwick, R., Webb, A. J., MacDonald, J. T., Freemont, P. S. Development of a Bacillus subtilis cell-free transcription-translation system for prototyping regulatory elements. Metab Eng. 38, 370-381 (2016).
- Ezure, T., et al. Cell-free protein synthesis system prepared from insect cells by freeze-thawing. Biotechnol Prog. 22 (6), 1570-1577 (2006).
- Harbers, M. Wheat germ systems for cell-free protein expression. FEBS Letters. 588 (17), 2762-2773 (2014).
- Kobs, G. Selecting the cell-free protein expression system that meets your experimental goals. Promega Corporation. 21, 6-9 (2008).
- Kovtun, O., et al. Leishmania cell-free protein expression system. Methods. 55 (1), 58-64 (2011).
- Basile, G., Peticca, M. Recombinant protein expression in Leishmania tarentolae. Mol Biotechnol. 43 (3), 273-278 (2009).
- Mureev, S., Kovtun, O., Nguyen, U. T., Alexandrov, K. Species-independent translational leaders facilitate cell-free expression. Nat Biotechnol. 27 (8), 747-752 (2009).
- Gambin, Y., et al. Single-molecule fluorescence reveals the oligomerization and folding steps driving the prion-like behavior of ASC. J Mol Biol. 430 (4), 491-508 (2018).
- Sierecki, E., et al. Rapid mapping of interactions between human SNX-BAR proteins measured in vitro by AlphaScreen and single-molecule spectroscopy. Mol Cell Proteomics. 13 (9), 2233-2245 (2014).
- Sierecki, E., et al. Nanomolar oligomerization and selective co-aggregation of alpha-synuclein pathogenic mutants revealed by single-molecule fluorescence. Sci Rep. 6, 37630(2016).
- Leitao, A., Bhumkar, A., Hunter, D. J. B., Gambin, Y., Sierecki, E. Unveiling a selective mechanism for the inhibition of alpha-synuclein aggregation by beta-synuclein. Int J Mol Sci. 19 (2), 334(2018).
- Gambin, Y., et al. Single-molecule analysis reveals self assembly and nanoscale segregation of two distinct cavin subcomplexes on caveolae. Elife. 3, e01434(2013).
- Ve, T., et al. Structural basis of TIR-domain-assembly formation in MAL- and MyD88-dependent TLR4 signaling. Nat Struct Mol Biol. 24 (9), 743-751 (2017).
- Guo, Z., et al. Subunit organisation of in vitro reconstituted HOPS and CORVET multisubunit membrane tethering complexes. PLoS One. 8 (12), e81534(2013).
- Ruehrer, S., Michel, H. Exploiting Leishmania tarentolae cell-free extracts for the synthesis of human solute carriers. Mol Membr Biol. 30 (4), 288-302 (2013).
- Varasteh Moradi, S., et al. Mapping Interactions among cell-free expressed Zika virus proteins. J Proteome Res. 19 (4), 1522-1532 (2020).
- Gagoski, D., et al. Cell-free pipeline for discovery of thermotolerant xylanases and endo-1,4-beta-glucanases. J Biotechnol. 259, 191-198 (2017).
- Ergun Ayva, C., et al. Exploring performance parameters of artificial allosteric protein switches. J Mol Biol. 434 (17), 167678(2022).
- Lau, D., et al. Fluorescence biosensor for real-time interaction dynamics of host proteins with HIV-1 capsid tubes. ACS Appl Mater Interfaces. 11 (38), 34586-34594 (2019).
- Ryan, S. M., et al. Novel antiinflammatory biologics shaped by parasite-host coevolution. Proc Natl Acad Sci USA. 119 (36), e2202795119(2022).
- McMahon, K. A., et al. Identification of intracellular cavin target proteins reveals cavin-PP1alpha interactions regulate apoptosis. Nat Commun. 10 (1), 3279(2019).
- Sierecki, E., et al. A cell-free approach to accelerate the study of protein-protein interactions in vitro. Interface Focus. 3 (5), 20230018(2013).
- Johnston, W. A., Moradi, S. V., Alexandrov, K. Adaption of the Leishmania cell-free expression system to high-throughput analysis of protein interactions. Methods Mol Biol. 2025, 403-421 (2019).
- Jung, W., et al. Cell-free formation and interactome analysis of caveolae. J Cell Biol. 217 (6), 2141-2165 (2018).
- Fontaine, F. R., et al. Functional domain analysis of SOX18 transcription factor using a single-chain variable fragment-based approach. MAbs. 10 (4), 596-606 (2018).
- Overman, J., et al. Pharmacological targeting of the transcription factor SOX18 delays breast cancer in mice. Elife. 6, e21221(2017).
- Kubala, M. H., et al. Mammalian farnesyltransferase alpha subunit regulates vacuolar protein sorting-associated protein 4A (Vps4A)--dependent intracellular trafficking through recycling endosomes. Biochem Biophys Res Commun. 468 (4), 580-586 (2015).
- Han, S. P., et al. Cortactin scaffolds Arp2/3 and WAVE2 at the epithelial zonula adherens. J Biol Chem. 289 (11), 7764-7775 (2014).
- Das Gupta, K., et al. Class IIa histone deacetylases drive toll-like receptor-inducible glycolysis and macrophage inflammatory responses via pyruvate kinase M2. Cell Rep. 30 (8), 2712-2728.e8 (2020).
- Leitão, A. D. G., et al. Selectivity of protein interactions along the aggregation pathway of α-synuclein. BioRxiv. , (2021).
- Gagoski, D., et al. Performance benchmarking of four cell-free protein expression systems. Biotechnol Bioeng. 113 (2), 292-300 (2016).
- Johnston, W. A., Alexandrov, K. Production of eukaryotic cell-free lysate from Leishmania tarentolae. Methods Mol Biol. 1118, 1-15 (2014).
- Hunter, D. J. B., Bhumkar, A., Giles, N., Sierecki, E., Gambin, Y. Unexpected instabilities explain batch-to-batch variability in cell-free protein expression systems. Biotechnol Bioeng. 115 (8), 1904-1914 (2018).
访问受限。请登录或开始试用以查看此内容。
重印与许可
