热等离子体穿孔法结合了共聚焦显微镜、光镊技术和金纳米颗粒,用于研究细胞和巨大单层囊泡中细胞质膜修复过程中的蛋白质响应。该技术可实现快速且局部的膜穿孔,有助于鉴定关键蛋白质及其在复杂的细胞质膜修复机制中的功能作用。
本文内容
摘要
摘要
细胞膜对细胞存活至关重要,由于细胞在其整个生命周期中会经历各种损伤,因此维持其完整性十分关键。为了防止膜结构受损,细胞已进化出高效的质膜修复机制。通过结合共聚焦显微镜与纳米级热等离子体技术,可研究这些 修复机制,从而鉴定并探究关键蛋白(如膜联蛋白)在活细胞及膜模型系统表面修复过程中的作用。
穿孔方法利用激光在纳米颗粒受辐照时诱导高度局部化的加热。使用近红外光可最大限度地减少生物样品中的光毒性,而大部分吸收发生在近红外共振的等离激元纳米颗粒中。这种热等离激元方法已被应用于潜在的光热和生物物理研究,以通过囊泡和细胞融合研究加深对细胞内机制及细胞响应的理解。该方法已被证明可与现有的膜破坏方法(如机械、化学或光学诱导的损伤)相互补充,并通过造成极局部的损伤提供高水平的控制。损伤范围仅限于球形纳米颗粒附近,且与使用不同波长的脉冲激光不同,在光束路径上不会产生有害损伤。尽管存在某些局限性(如纳米气泡的形成),热等离激元方法仍为在几乎天然的环境中研究细胞质膜修复中的细胞响应提供了一种独特工具,同时不损害细胞活力。
当与共聚焦显微镜结合使用时,穿孔法可提供对模型膜系统中膜动力学的机制性理解,以及关于蛋白质对膜损伤响应的定量信息,包括蛋白质的招募及其生物物理功能。总体而言,将该方法应用于简化的模型系统,有助于加深我们对活细胞中复杂的质膜修复机制的理解。
引言
细胞膜既作为物理屏障,又作为信号传导平台,对细胞存活至关重要1。在整个细胞周期中,质膜(PM)会遭受多种损伤,例如由机械2,3,4,5和化学6应激诱导的损伤。为了维持膜的完整性并确保细胞存活,细胞已进化出强大的质膜修复(PMR)机制。这些机制依赖于多种策略,如细胞骨架重组、膜融合以及膜替换策略7,8,9,10,11,而这些过程均依赖于特定蛋白质的募集。值得注意的是,膜联蛋白(annexin)家族成员已被确认为与PMR过程相关的关键蛋白1,9,12,13,14,15,16。质膜损伤后,细胞内会迅速流入钙离子(Ca2+),这对细胞存活构成直接威胁17。作为PMR机制的一部分,主要位于细胞质中的膜联蛋白会在Ca2+流入的刺激下,结合至受损质膜的内层脂质层18。膜联蛋白A2(ANXA2)是最早被发现与肌营养不良蛋白(dysferlin)缺乏型肌营养不良症中PMR相关的膜联蛋白家族成员之一,被认为可通过介导细胞内囊泡与损伤部位附近质膜的融合来促进修复5,19,20,21。此后,多种功能被归于膜联蛋白家族22,其在PMR中的作用在过去20年中受到越来越多的关注。然而,膜联蛋白在PMR中的确切作用仍尚未完全阐明15,18,21,22。
本文提出了一种在受控且高度局部化的条件下研究蛋白质-膜相互作用及膜动力学的方法,该方法结合了共聚焦显微镜、光镊技术和金纳米颗粒(AuNPs)。此方法可实现对膜损伤和Ca2+内流条件下蛋白质、脂质及小分子相互作用的定量研究。尽管膜修复过程涉及多种复杂组分,研究者已采用模拟质膜的简化膜系统,以更深入地理解膜动力学以及膜破裂后膜联蛋白(annexin)的响应机制16。本研究选用具有特定脂质组成的巨大单层脂质囊泡(GUVs)作为模型膜系统。GUVs通过凝胶辅助水合法制备,具体为聚乙烯醇凝胶水合法,该方法由Weinberger等人23描述,可高效地将膜联蛋白封装入GUVs中。
在金属纳米颗粒(NPs)上施加近红外(NIR)激光照射会显著加热纳米颗粒,从而成为生物医学应用中建立局部热源的有效方法24。该方法最初用于在二维和三维仿生体系中直接测量单个金纳米颗粒(AuNP)周围的温度。在这些实验体系中25,26,等离激元纳米颗粒在支撑脂双层上被照射,或在局部加热诱导大单层囊泡(GUVs)发生局部热相变时被光镊捕获,从而实现对颗粒周围精确温度分布的量化与控制。该参考温度分布已被用于生物样本的研究与操控。该方法的进一步发展推动了在膜上诱导纳米级孔洞的实现27,进而实现囊泡与细胞融合28,29。其他研究通过构建新型杂化囊泡,探究了外周膜蛋白在GUVs中的行为29以及跨膜蛋白的特性30,同时也有研究探索了细胞特异性药物递送,以调控和研究细胞反应或基因表达28,29,31,32,33。最近,该方法还被用于研究蛋白质对膜损伤的响应32,34,35。
存在多种用于破坏细胞质膜以研究细胞反应和膜修复的方法。这些方法包括微针穿刺、微珠震荡和细胞刮擦,均可通过机械方式破坏细胞膜14,36,37。化学诱导损伤可通过添加去垢剂5,38或细菌毒素39,40实现,这些物质可破坏脂双层稳定性,并在质膜上形成膜孔。此外,连续波激光和脉冲激光诱导的光学损伤也被用于研究质膜修复(PMR)相关组分,例如膜联蛋白(annexin)蛋白5,14,21,41,常结合等离子体纳米颗粒进行42,43,44,45。尽管高功率脉冲激光效率较高,但其可能沿光束路径对细胞内部结构造成显著损伤。此外,脉冲激光照射下生物物质发生的详细变化,以及是否能形成明确界定的孔洞,仍有待进一步研究。本文介绍一种替代方法,利用热等离子体效应以可控方式在质膜(PM)上诱导纳米级孔洞34,35,且不会对细胞内部结构造成显著损害。该方法通过将等离子体纳米颗粒暴露于高度聚焦的近红外(NIR)激光下实现,导致温度极度局部升高,可轻易超过 200 °C,从而引发微小的纳米级爆炸25,46,47。该过程可通过调节激光强度以及纳米颗粒的尺寸、形状和组成加以控制48。利用该技术,研究人员可在活细胞中探究蛋白质在质膜修复中的作用,有助于解答关于膜联蛋白在膜修复中功能的一些尚未明确的问题,同时不损害细胞活力。
等离子体纳米颗粒的光镊捕获已被先前的研究充分证实25,49,50,51,52;然而,关于纳米颗粒的热等离激元特性还有待进一步研究53,54,55 可在补充材料中获得(补充文件 1)。热等离子方法可用于在质膜(PM)上制造纳米级孔洞,以研究细胞的响应及修复机制。更准确地说,如图1A和B所示,可通过光学加热靠近细胞膜的金纳米颗粒(AuNPs),实现膜的穿孔。这种局部穿孔可实现钙离子(Ca2+ 通过钙离子传感器验证了钙离子内流,从而激活了质膜修复(PMR)机制。在活细胞实验中,将直径为200 nm的AuNPs固定在细胞下方表面,通过共聚焦显微镜监测ANXA2在PMR中的作用。使用近红外(NIR)激光(图1A,B),波长为1064 nm,照射AuNP,利用其等离激元特性(图1C),导致显著的局部加热(图 1D生物透明窗口49 同时对细胞本身造成最小损伤。如图所示,在距离等于纳米颗粒(NP)半径的位置,金纳米颗粒(AuNP)周围高温区域迅速下降30-40%。 图1E,可在三个维度上实现极为局限的损伤。
补充文件 1。 请点击此处下载该文件。
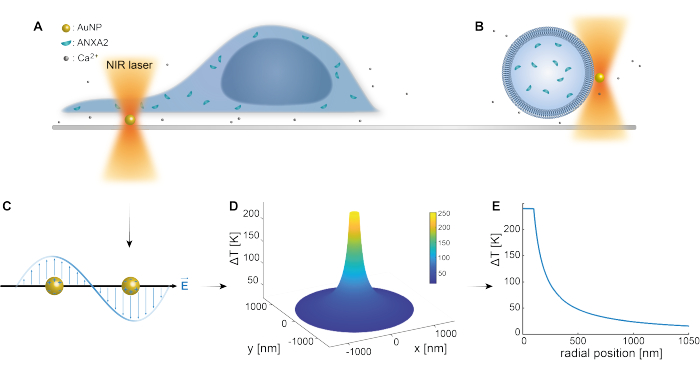
图 1:实验方法的示意图。(A)转染了ANXA的细胞位于固定在表面的金纳米颗粒(AuNPs)上方,或(B)包载有ANXA的巨大单层囊泡(GUVs)悬浮在含有AuNPs的介质中。(C)单个AuNP被近红外光镊照射,入射电磁场与传导电子之间的相互作用导致纳米颗粒内电子发生集体振荡。(D)该过程在纳米颗粒表面附近产生高度局域但显著的温度升高。为估算纳米颗粒表面的温度,采用Mie理论,并(E)计算了直径为200 nm、激光强度I = 6.36 × 10⁸ W/cm2的AuNP的温度分布。 请点击此处查看该图的放大版本。
为尽量减少对细胞膜的热效应,金纳米颗粒(AuNPs)仅被照射约1秒。这会引起短暂且局部的发热爆发,从而减少通常需要较长时间才会发生变性的蛋白质所受的损伤。在细胞膜穿孔后,膜联蛋白会在不到一秒的时间内被募集,并在数秒内于损伤部位周围形成环状的膜联蛋白支架结构(图2)。该方法还已被用于研究ANXA5在活细胞和模型膜中的作用16,以期阐明整个修复过程的完整机制。尽管目前的研究主要集中在不同膜联蛋白的募集相关性上,但修复机制的生物物理特性仍有待阐明。
要完全实施本方案,需要三个关键组件:共聚焦显微镜、光镊和金属纳米颗粒。光镊用于捕获金纳米颗粒(AuNPs),其构建可依据Neuman等人49提出的方法进行。然而,如果光镊的搭建过于困难,也可使用 tightly focused 近红外(NIR)激光照射固定在细胞下方的AuNPs。尽管本实验方案选用的是球形AuNPs,但也可采用多种具有可调吸收光谱的等离激元颗粒,以在近红外区域实现高度局域化的温度梯度48。
荧光成像对于观察荧光标记蛋白的作用至关重要,因此全内反射显微镜(TIRF)56 可作为共聚焦成像的一种替代方法。然而,该技术仅适用于表面成像,无法与模型膜囊泡实验兼容。因此,光镊和共聚焦显微镜对于纳米颗粒的精确定位以及细胞损伤周围局部区域的详细研究均不可或缺。为了用衍射极限的激光焦点有效辐照纳米颗粒,必须对纳米颗粒进行可视化。这可通过反射显微镜最优实现,而反射显微镜是徕卡共聚焦显微镜的标准成像功能。然而,如果无法进行反射或散射成像,则可考虑采用其他方法,例如效率较低的荧光标记金纳米颗粒(AuNP)标记法。
总之,本研究中提出的高度可控且具有局部化特性的热等离激元方法,有望成为研究活细胞中参与细胞应答及质膜修复机制相关分子组分的优秀平台。除了可用于研究质膜损伤后的蛋白质响应外,该方法还可用于局部穿孔囊泡,从而实现对蛋白质在蛋白质-蛋白质及蛋白质-膜动态相互作用中的响应进行探究。此外,该方法能够在膜结构被破坏时,对蛋白质、脂质与小分子之间的相互作用进行定量分析。总体而言,这些进展有望为揭示质膜修复机制中一些尚未解决的复杂而精细的问题提供新的见解。
方案
1. 细胞膜穿孔制备
- 细胞接种(第1天)
- 将人胚胎肾(HEK293T)细胞在培养基中于37 °C、5% CO2 恒温培养箱中培养,直至细胞融合度达到70%。
- 用500 µL胰蛋白酶将细胞从培养皿表面消化下来,计数200,000个HEK293T细胞,接种于培养皿中,加入总体积为3 mL的培养基。将细胞在37 °C、5% CO2 恒温培养箱中孵育24小时。
注意:为防止细胞在培养皿中央聚集,应将细胞均匀铺展,并避免晃动培养皿,否则可能降低转染效率。
- 细胞转染(第2天)
注意:转染后的细胞可在转染后48小时内使用。- 使用前将目的质粒和转染试剂用移液器吹打5秒。
- 在无菌的2 mL离心管中,按以下顺序依次加入:500 μL低血清培养基、5 μL转染试剂(为质粒体积的4倍)和1.25 μL质粒(1 μg/μL)。
注意:若需研究膜破裂后钙离子内流情况,请采用相同操作流程,但使用膜定位钙离子荧光探针GCaMP6-CAAX(1 μg/μL)。 - 轻轻而充分地吹打转染混合液,室温(RT)孵育30分钟,随后逐滴加入细胞中。
- 加入转染混合液前,吸除培养皿中的培养基,用2 mL磷酸盐缓冲液轻柔洗涤细胞一次,然后向培养皿中加入2000 μL低血清培养基。
- 将细胞与转染混合液在37 °C、5% CO2 恒温培养箱中共同孵育2小时45分钟,随后更换为3 mL完全培养基。
- 金纳米颗粒(AuNP)溶液的制备(第2天)
- 将200 nm AuNP储备液在10档转速下涡旋震荡10秒(仪器具体参数见材料表),随后超声处理5分钟(最大振幅),再涡旋震荡10秒。
- 取150 μL AuNP溶液与850 μL去离子水混合,总体积为1 mL。
注意:稀释后的AuNP溶液可置于冰箱中保存,并在1个月内重复使用。
- 实验培养皿的制备(第2天)
- 向微孔培养皿中加入150 μL 0.01%-0.1%细胞贴壁溶液,室温孵育15分钟。
- 用500 μL去离子水清洗玻璃表面两次,静置晾干约10分钟。
- 将80 μL AuNP溶液逐滴加至干燥表面。
注意:在将稀释后的AuNP溶液加入包被的玻璃表面之前,需先涡旋震荡(10秒)、超声处理(5分钟)并再次涡旋震荡(10秒),以减少AuNP聚集体的形成。 - 静置约10分钟后,加入1.5 mL培养基。将培养皿在37 °C下过夜孵育。
- 实验腔室的准备(第3天)
注意:实验腔室可在第3天或第4天制备;但请确保以下操作步骤在实验当天完成。- 吸除培养皿中细胞的培养基,并用2 mL磷酸盐缓冲液洗涤细胞一次。
注意:此步骤至关重要,可去除可能干扰后续操作的残留培养基和碎片。 - 向孔中加入500 μL酶解型细胞消化液,孵育1-3分钟,直至细胞从培养皿表面脱落。
- 加入1.5 mL新鲜培养基,用移液器反复吹打细胞悬液,使其均匀,以最大限度减少细胞团块的形成。
- 小心吸除实验微孔中AuNP上的培养基。
- 将细胞悬液(2 mL)加入微孔中,至少孵育5小时后再进行实验。
注意:为获得最佳实验条件,应避免晃动腔室,否则可能导致细胞在腔室中央聚集。
- 吸除培养皿中细胞的培养基,并用2 mL磷酸盐缓冲液洗涤细胞一次。
2. 细胞膜穿孔实验
- 实验的光学设置
- 使用共聚焦扫描显微镜结合1064 nm捕获激光进行实验57。
- 利用数值孔径(NA)为1.2的63倍水浸物镜,在焦平面上实施光捕获。
- 假设焦点尺寸等于艾里斑大小,且照射激光的焦斑半径约为540 nm。
- 通过计算单位面积上的激光功率(W/cm2),将激光功率(P)转换为相应的激光强度(I)。
- 使用声光束分器(AOBS)实现多荧光信号的可视化,这些信号由光电倍增管检测,同时通过散射信号同步检测金属纳米颗粒。
注:并非所有共聚焦系统都配备AOBS,而AOBS可实现金属纳米颗粒的反射成像。在此情况下,必须采用其他检测方式,或尝试在细胞下方区域顺序扫描近红外激光。 - 实验过程中,将含有细胞、分子荧光探针和金纳米颗粒的玻璃底开放腔室安装在显微镜上。
- 通过移动安装在压电平台上的样品,相对于细胞移动光阱,实现纳米级精度的横向位移16。
注:光阱保持静止。
- 细胞膜穿孔的实验设置
- 将转染了与荧光蛋白偶联的annexin质粒的HEK293T细胞置于固定在玻璃表面的孤立金纳米颗粒(AuNP)上方(图1A)。
- 使用488 nm氩离子激光观察GFP荧光信号,使用633 nm氦氖激光在共聚焦扫描显微镜中观察AuNP的反射信号。
- 采用工作波长为1064 nm的近红外激光光镊,对单个AuNP照射约1秒,引发局部显著升温,从而破坏质膜。
- 对聚焦的颗粒施加200–295 mW的照射功率,导致温度显著升高。
注:光学系统中存在显著的功率损耗,焦点处的实际激光功率约为标称毫瓦值的20%,具体取决于系统配置。实际强度(以W/cm2计)取决于系统的精确对准情况,特别是焦斑尺寸。此外,玻璃的热导率高于细胞和水,因此传递至质膜的热量略有减少48,58。 - 通过精确校准近红外激光焦点位置,实现有效且局部的质膜损伤及随后的蛋白修复反应。该过程通过捕获悬浮在相同成像介质中的单个AuNP完成,并确保在照射前选定的AuNP处于焦点位置。
注:在共聚焦显微镜下观察时,当纳米颗粒的散射信号最清晰,即边缘清晰且无光环时,认为其处于焦点(图2C (ii))。
- 细胞与AuNP密度条件
- 选择单个细胞而非细胞簇,以避免质膜重叠。
注:细胞应贴附于表面并呈现扁平形态(补充图1),以便穿刺细胞周边区域,同时避免对核膜造成损伤(补充图2)。 - 按照实验方案孵育细胞,直至其沉降并展平,以防止AuNP被细胞摄取。避免过长的孵育时间,并使用聚乙二醇化AuNP以降低内吞的可能性。
- 确保固定的AuNP以单颗粒形式存在,彼此之间保持足够间距,防止形成聚集体。聚集体可能导致热梯度显著增加,引起温度升高,从而破坏细胞的较大区域。
- 每隔1–2小时更换一次样品,以维持细胞健康。
注:长时间暴露会导致细胞健康状况恶化,影响其对膜损伤的准确修复响应。细胞健康下降通常表现为形态变化,细胞变得更呈球形且更僵硬,最终导致细胞死亡。
- 选择单个细胞而非细胞簇,以避免质膜重叠。
补充信息。 请点击此处下载该文件。
3. 巨大单层囊泡(GUV)的制备
- 脂质混合物的制备
- 通过将1,2-二油酰基-sn-甘油-3-磷脂酰胆碱(DOPC)和1,2-二油酰基-sn-甘油-3-磷脂酰-L-丝氨酸(DOPS)以4:1的摩尔比混合,制备GUV脂质组成(见表1)。根据实验需求,将脂质储备液分装至1.5 mL玻璃小瓶中,并在-20 °C下保存。
注意:为延长脂质保存时间并防止不饱和脂质氧化,应在分装后的小瓶中用氩气替换空气。 - 在混合脂质前,使用氯仿彻底清洗50 μL和500 μL的玻璃或金属注射器五次,确保其无污染物,适用于溶解于氯仿的脂质。
警告:由于氯仿具有毒性,操作时应在通风橱中进行。- 将计算好的氯仿体积转移至洁净的棕色玻璃小瓶中,随后加入指定量的每种脂质(见表1)。
注意:为避免不同脂质储备液之间的交叉污染,确保注射器用氯仿清洗干净。 - 最后加入膜染料,并通过移液充分混合脂质。将制备好的脂质混合物在-20 °C下保存以备后续使用;该混合物在2-3周内保持稳定,无明显脂质损伤。
注意:混合操作应使用金属或玻璃注射器。脂质从冰箱取出后应始终置于冰上。
- 将计算好的氯仿体积转移至洁净的棕色玻璃小瓶中,随后加入指定量的每种脂质(见表1)。
- 通过将1,2-二油酰基-sn-甘油-3-磷脂酰胆碱(DOPC)和1,2-二油酰基-sn-甘油-3-磷脂酰-L-丝氨酸(DOPS)以4:1的摩尔比混合,制备GUV脂质组成(见表1)。根据实验需求,将脂质储备液分装至1.5 mL玻璃小瓶中,并在-20 °C下保存。
- 聚乙烯醇(PVA)凝胶的制备
- 采用Weinberger等人23 描述的凝胶辅助水合法制备GUVs,并进行少量修改。
- 通过将5 g PVA溶解于100 mL含有50 mM蔗糖、25 mM NaCl和25 mM Tris(pH 7.4)的缓冲液中,制备PVA凝胶。
- 将PVA溶液加热至85 °C并搅拌至透明。冷却至室温后,置于冰箱中以备后续使用。
注意:PVA在缓冲液中无法充分溶解,因此必须加热至85 °C。
- 采用Weinberger等人23 描述的凝胶辅助水合法制备GUVs,并进行少量修改。
- 玻璃载玻片的制备
- 用乙醇清洗玻璃载玻片,并使其自然晾干。随后使用空气等离子清洗机处理载玻片,以去除玻璃表面的任何残留污染物。
- PVA包被玻璃载玻片的制备
- 将PVA凝胶(5%)在60 °C下加热30分钟以提高其流动性。取90 μL温热的PVA滴加到玻璃载玻片上,均匀铺展,并在50 °C的加热柜中干燥50分钟。
- 当PVA包被的玻璃载玻片准备就绪后,使用玻璃或金属注射器加入30 μL已制备的脂质混合物,并用针头边缘将其铺展成一层薄膜。
- 在温和的氮气压力下蒸发氯仿,使脂质混合物干燥。进一步将载玻片在真空条件下干燥1.5-2小时。
- 在腔室中生长GUVs
- 使用已制备的玻璃载玻片组装自制腔室,其设计类似于先前发表的报告59。
- 在另一个2 mL离心管中,将目标重组蛋白(本实验中为ANXA5或ANXA4)用生长缓冲液(GB,含80 mM蔗糖、70 mM NaCl和25 mM Tris-HCl,pH 7.4)稀释至终浓度为500 nM。
- 向腔室中加入400 μL稀释后的重组蛋白溶液。在室温下孵育1小时,使GUVs从沉积的脂质膜上生长。使用不含蛋白的相同缓冲液作为空白对照。
注意:用聚烯烃薄膜包裹腔室,以防止缓冲液蒸发。 - 通过将400 μL腔室内容物转移至2 mL离心管中收集GUVs。
- 向收集的溶液中加入1 mL观察缓冲液(OB,含55 mM葡萄糖、70 mM NaCl和50 mM Tris-HCl,pH 7.4),以去除GUVs外部未包封的蛋白。然后在13 °C下以600 x g 离心10分钟。
- 离心后,将1 mL上清液替换为等体积的观察缓冲液。通过轻柔移液重悬GUVs,并将其储存在冰箱中,直至用于GUV实验。
4. GUV 穿孔实验
- 腔室准备
- 实验使用35 mm玻璃底培养皿。为防止GUVs粘附表面并破裂,用β-酪蛋白(5 mg/mL)溶液孵育表面15–30分钟。
- 配制β-酪蛋白溶液:将0.1 g蛋白溶解于20 mL含20 mM Tris(pH 7.5)和100 mM NaCl的缓冲液中。过滤蛋白溶液,分装至小管中,冷冻保存以备后续使用。
- 用观察缓冲液洗涤腔室两次,以去除表面残留的游离β-酪蛋白,然后在室温下晾干。
- 在另一个2 mL离心管中,将收集的GUVs与OB混合。向混合液中加入CaCl2,使其达到目标终浓度(本实验为200 μM)。
- 按1:100的比例向混合液中加入150 nm金纳米壳(AuNSs)。最终混合液包含250 μL GUVs、225 μL OB、20 μL CaCl2 (5 mM)和5 μL指定的AuNSs。
- 实验使用35 mm玻璃底培养皿。为防止GUVs粘附表面并破裂,用β-酪蛋白(5 mg/mL)溶液孵育表面15–30分钟。
- 实验装置
- 将混合液转移至腔室,并将其安装在显微镜载物台上。根据腔室大小,加入全部或部分混合液。
注意:时间控制至关重要,因为钙离子可穿过膜并介导膜内层上的膜联蛋白结合。 - 采用与细胞穿孔实验相同的光学装置。
- 使用光镊,以约125 mW的激光功率捕获单个AuNS,并将其固定在GUV附近或表面。
- 随后将激光功率提高至约300 mW。这将产生高度局部化的温度升高,从而在目标位点破坏并穿孔膜。
注意:与实心金纳米颗粒(AuNPs)相比,AuNSs因尺寸更小且能产生更高的瞬时温升,因此更适用于GUV实验。
- 将混合液转移至腔室,并将其安装在显微镜载物台上。根据腔室大小,加入全部或部分混合液。
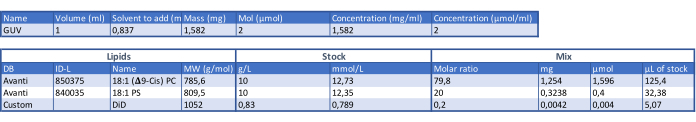
表 1:用于确定 GUV 组成的表格。 请点击此处下载该表格。
5. 细胞穿孔实验中ANXA反应的测量与数据分析
- 使用 MATLAB 分析图像,并基于米氏方程60,61计算并绘制 AuNP 的温度分布图(图 1D、E)。
- 此外,使用 FIJI ImageJ 发行版62,63处理所有共聚焦图像。
- ANXA 环半径的计算
- 在进行膜损伤分析前,从原始数据中裁剪出包含穿孔区域的感兴趣区域。
- 使用实验室内部开发的 MATLAB 工作流程处理每幅图像,通过手动标记 ANXA 环的中心及其外周边界。
- 利用这些标记设定感兴趣区域的处理范围。
注:随后在设定范围内进行径向处理,特定距中心距离处的荧光强度为具有相同中心距离的完整圆周上的平均值。该数值在每个半径步长处均被存储。 - 使用该工作流程将整个扫描范围内的平均强度拟合为一维高斯曲线,以确定对应于 Rext 和 Rint 的峰值(Rp)和半高全宽(FWHM),如 图 3A 所示。
- 利用这些标记设定感兴趣区域的处理范围。
- 最后,根据 MATLAB 工作流程生成的图中环中心到 Rext 的距离,确定 ANXA 环的半径。
- 三维 ANXA 环半径的计算
- 使用与步骤 5.1 相同的 MATLAB 分析工作流程,追踪 ANXA 环半径在 z 方向上的变化。将该工作流程应用于跨越膜伤口的多个共聚焦 z 切片,如 图 3C、E 所示。
- 基于 z 切片中半径的变化,计算每个伤口的斜率,如 图 3F 所示。
- ANXA 环半径的时间演化
- 类似地,使用步骤 5.1 中的 MATLAB 分析工作流程,追踪热等离子体膜穿孔后 ANXA 环的演化过程。分析连续的时间点以监测随时间的变化,如 图 3D、G、H 所示。
结果
本研究中,采用热等离激元方法研究膜联蛋白对质膜破裂的响应;然而,只要相应蛋白被荧光标记,任何在膜损伤后可能被募集的蛋白均可通过该检测方法进行研究。通过共聚焦成像,在人胚胎肾(HEK293T)细胞和巨型单层囊泡(GUVs)中同时监测蛋白的募集与功能。具体而言,图2展示了实验条件:使用聚焦的1064 nm近红外激光束照射单个金纳米颗粒(AuNP)(图2A),导致膜损伤并引发Ca2+内流进入细胞,从而激活质膜修复(PMR)机制。随后,膜联蛋白迅速被募集至损伤部位,结合伤口边缘的带负电荷磷脂,在数秒内形成环状结构(图2B, i-iv)。利用GUVs进行的模型膜实验表明,在无ANXA存在时,膜穿孔可迅速重新封闭,如图2C所示。然而,在ANXA存在的情况下,膜穿孔后可观察到ANXA在损伤部位快速聚集(图2D)。值得注意的是,ANXA持续卷曲暴露的边缘,最终导致GUV破裂。这种卷曲机制被认为源于ANXA诱导脂质膜弯曲和产生曲率的能力20。
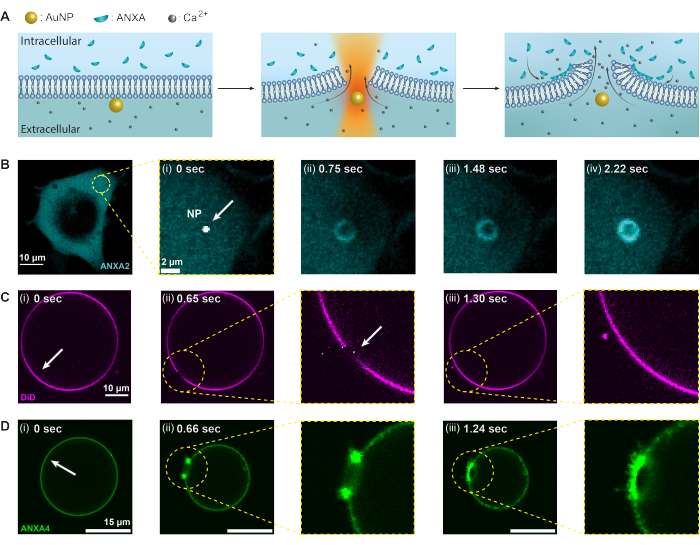
图2:膜联蛋白(ANXAs)对热等离子体诱导的膜损伤的响应。 最初,(A细胞膜作为高钙浓度细胞外环境与细胞内环境之间的屏障2+ 离子及含有包封ANXAs的细胞内环境。在近红外(NIR)激光照射下,AuNP产生大量热量,导致膜破裂,从而引起Ca²⁺内流2+ 离子。因此,细胞膜修复(PMR)机制被激活,该过程涉及将ANXAs募集至损伤部位,使其结合带负电荷的磷脂。B-D共聚焦显微镜图像展示了含有ANXA2的细胞和含有ANXA4的GUV的这一过程。(i)照射前,图像显示完整的细胞或GUV,照射位点以白色箭头标示。(ii)对纳米颗粒进行照射后,BANXA 会迅速募集到损伤部位,在细胞膜伤口周围形成环状结构(B [ii-iv])。图示(C) 显示一个经膜染色但不含ANXA的GUV,穿孔后迅速重新封闭,未观察到膜结构重塑。另一方面,图中面板(D) 显示一个含有重组 ANXA4 的 GUV,由于 Ca²⁺ 的存在,该蛋白在 (i) 照射前已结合于膜上。2+ 膜的泄漏。(ii) 穿刺后,ANXA4结合到游离边缘,导致GUV因膜从边缘卷曲而塌陷。比例尺长度为 10 μm 对于图 (B), 2 μm 对于 B (i), 10 μm 对于(C),以及 15 μm 用于 (D)。该图改编自 Moreno-Pescador 等人16 经英国皇家化学学会许可。 请点击此处以查看此图的放大版本。
对完整的ANXA环状结构(图2B 和 补充图1)的分析可为伤口大小和形态提供有价值的见解。ANXA环结构的半径可在时间和空间上进行测定,具体方法见第5节。Moreno等16分析了活细胞中超过135个质膜损伤位点,其中ANXA5环状结构的分析结果如图3所示。环结构的半径通过测量从环中心到强度投影曲线外侧边缘的距离来确定,该距离基于坍缩强度曲线的半高全宽(full-width-half-maximum)计算(图3A)。研究结果表明,ANXA5环的尺寸呈异质性分布(图3B),且在时间上(图3D、G、H)和空间上(图3C、E、F)保持恒定。这些结果提示ANXA5在损伤部位周围发生聚集,表明在活细胞中存在一种由ANXA5介导的质膜修复(PMR)替代策略,不同于此前假设的受损膜通过漏斗状向内出芽进行修复的机制5。
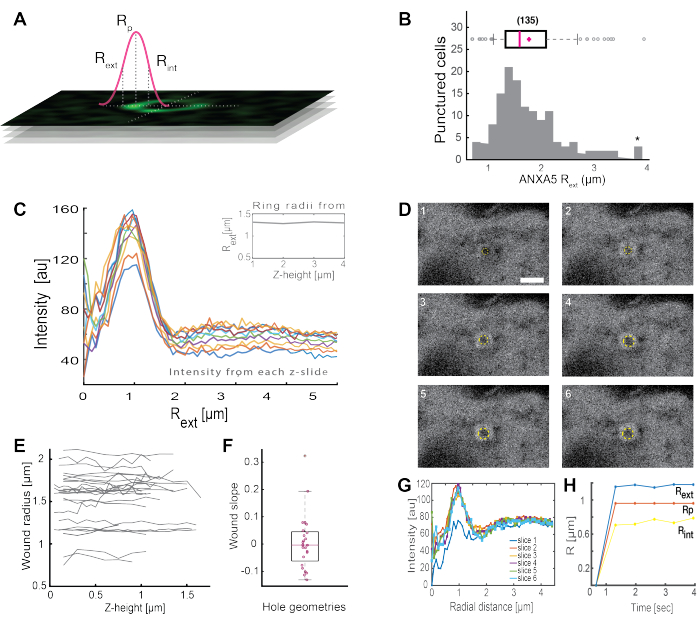
图3:活细胞中损伤部位周围ANXA5环状结构的分析。 (A)示意图展示了分析方法,该方法基于ANXA5荧光强度线分布的半高全宽(full-width-half maximum)。(B)直方图展示了135个测量得到的ANXA5环半径。(C)沿z轴堆栈各层截面穿过ANXA5-GFP环的荧光强度线分布。(D)共聚焦图像展示了伤口随时间的动态变化过程:损伤后ANXA5-GFP立即在伤口边缘聚集,随后伤口趋于稳定。标注的时间帧1–6以每帧0.66秒的时间间隔采集。比例尺为2 μm。(E)根据A图所示方法,基于伤口深度确定其半径。(F)基于E图提取的数据,通过ANXA5环半径随z轴高度的变化分析伤口的斜率。(G)测量了D图中ANXA5-GFP环的荧光强度线分布,其中每个时间点1–6分别对应切片1–6。(H)最后,根据G图数据计算得到ANXA5-GFP环半径随时间变化的动力学过程。本图经英国皇家化学学会许可,改编自Moreno-Pescador等16。 请点击此处查看此图的放大版本。
与仅破坏质膜(PM)所形成的环状结构相比(补充图1),靠近细胞核的损伤(补充图2A)可能会影响伤口的演化过程和几何形态。有时仅能观察到部分ANXA环结构(补充图2B,C),此类情况仍可使用实验室自建的MATLAB分析流程进行分析(见第5节),但可能会丢失额外的数据。通常,在非贴壁细胞中观察到的ANXA环结构(补充图2C)位于细胞核和细胞边缘附近。因此,所形成的环状结构往往更为拉长,不利于本文所述的数据分析。此外,非贴壁细胞在质膜损伤后似乎更容易发生细胞死亡。进一步地,在考虑由金纳米颗粒(AuNP)聚集体辐照引发的损伤时,需注意此类损伤可能更为严重且更难控制。这是由于等离子体加热效应显著增强,可能导致细胞大面积受损。因此,此类损伤未被纳入ANXA5环结构的分析中。
此外,初步研究结果表明,利用热等离激元技术破坏细胞膜会导致细胞内 Ca²⁺ 水平升高2+ 水平。即使在单个金纳米颗粒(AuNPs)的低强度照射下也观察到这一现象,表明质膜发生通透化35,如图所示 图4. Ca2+ 在表达膜结合型钙探针GCaMP6s-CAAX的细胞中观察到内流现象,该探针在Ca²⁺存在时会发生构象改变2+ 内流增加,因此可观察到其强度上升64钙离子强度随时间在整个细胞足迹范围内进行了定量分析。为消除背景噪声,对背景Ca2+ 在膜破裂前和膜修复后减去背景水平。通过归一化平均 Ca 强度来确定最大强度2+ 细胞内的强度,从而产生一条显示快速初始 Ca2+ 强度先增加,随后缓慢下降,如图所示 图4B.
细胞在约 6.6 s 时达到最大钙离子强度,这与 Klenow 等人的研究结果一致。64,提出钙离子强度峰值出现的时间(t = tc)对应于伤口闭合所需的时间。然而,尽管仍需进一步研究以阐明膜修复与伤口愈合的潜在机制,初步研究结果表明,这种 Ca2+ 该过程仅在受损细胞中观察到,而在作为阳性对照的未受损细胞中未观察到。这证实了细胞经历了 Ca2+ 热等离子体膜破裂后钙离子内流,质膜修复成功后,细胞内过量的钙离子被主动泵出,此时细胞内钙水平不再与Ca竞争2+ 内流,最终实现细胞稳态64.
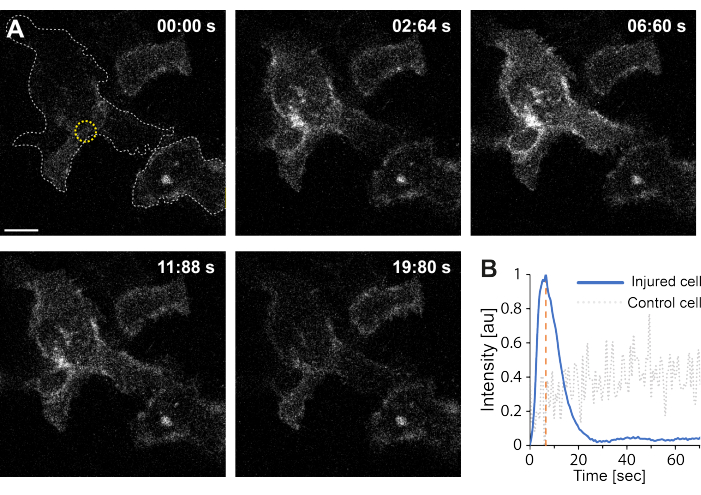
图4钙离子内流发生在热等离激元导致HEK293T细胞质膜破裂时。 一系列共聚焦图像显示了两个细胞(目标细胞和作为阳性对照的未损伤细胞),它们表达膜结合的钙探针GCaMP6s-CAAX。比例尺表示 10 μm. (A) 照射前,在 00:00 s 时,两个细胞的轮廓由灰色虚线标示,照射位点由黄色圆圈标出。激光照射后,细胞内迅速出现 Ca2+ 观察到信号增强,在约 6.6 s 时达到最大强度,以橙色虚线表示,该时间点被认为对应于伤口闭合的时刻64. (B) 通过GCaMP6s-CAAX探针在受损细胞中获得的钙离子强度曲线(蓝线)与Ca2+ 邻近未损伤细胞中的强度(灰色虚线),显示出明显的 Ca2+ 仅在质膜破裂时发生内流。 请点击此处以查看此图的放大版本。
讨论
该研究强调了热等离激元方法作为一种有前景的技术,可用于探索活细胞和模型膜在膜破裂后蛋白质的响应。该方法不仅能够提供有关蛋白质募集的广泛信息,还能揭示参与蛋白质-膜动态过程的蛋白质的生物物理功能。因此,该方法有助于鉴定负责膜表面修复的分子组分,并推动对质膜修复这一复杂但至关重要的分子机制的理解。尽管已有多种方法可用于诱导膜破裂,例如机械、化学和光学技术,但这些方法存在局限性,例如对细胞缺乏特异性、在细胞膜上产生多个损伤,或在使用高功率脉冲激光时对膜造成严重损伤,并沿激光路径消融细胞内物质。虽然共聚焦显微镜与光镊技术的结合可提供最全面的信息,但也可采用其他成像方式。例如,由于等离激元纳米颗粒的成像可通过反射显微镜实现——这是徕卡共聚焦显微镜内置的成像模式——因此也可采用暗场显微镜65,66、其他散射方法如iSCAT67,68,或对纳米颗粒进行荧光标记等技术来实现金纳米颗粒(AuNP)的可视化,尽管这些替代方法可能会限制该技术的适用性。
该方法还能够在线性膜模型中诱导产生纳米级孔洞,从而实现对不同膜联蛋白之间协同效应的研究。这是通过分别包封带有不同标记的重组膜联蛋白(例如RFP和GFP),随后进行热等离子体穿孔实现的。该模型系统有助于揭示膜联蛋白在自由边缘附近与膜相互作用的方式,如图2D所示。然而,与细胞不同的是,GUV上的孔洞会持续扩大,最终导致囊泡失稳。由于孔径迅速扩张,使用共聚焦显微镜对孔洞演化过程进行成像 具有挑战性,但可通过随时间连续采集多个z轴层扫图像来实现。另一种方法是采用转盘共聚焦显微镜以实现更快的成像速度。此外,当该热等离子体方法应用于单个细胞或GUV实验时,通常每小时仅能获得有限数量的优质结果,一般为两到三个,实验样品温度控制在20 °C至30 °C之间。为了最准确地观察蛋白质-膜动态过程,建议将细胞置于含HEPES的缓冲液中,并每小时更换一次样品。或者,也可通过在细胞培养孵育室中进行实验(即在37 °C恒温并含5% CO2的条件下)来延长实验时间窗口。此外,将该方法与其他成像技术结合,例如随机光学重建显微镜(STORM),有望在单分子水平上更深入地理解参与膜修复的关键蛋白质的生物物理功能及其相互作用。这将提供有关损伤部位的详细信息,包括伤口几何形态、膜联蛋白的定位,并可鉴定出参与膜表面修复的其他关键分子。
为了在诱导膜损伤时达到最佳效果和精确性,每次实验前必须验证激光焦点的位置,并确保激光焦点的轴向位置与共聚焦焦点重合。这种对准可优化金纳米颗粒(AuNP)成像期间的激光强度,从而在较低激光功率下实现最大的局部温度升高,进而导致更有效的膜损伤。该过程为手动操作,因此 膜破裂效率可能存在变异性,因为焦点需手动调节至与颗粒位置重合。在缺乏反射模式的显微镜中(如某些商用系统),激光焦点与颗粒的共定位可能具有挑战性。在此类情况下,可采用其他成像模式(例如明场),并在预期颗粒位置周围进行缓慢的光栅扫描。需要注意的是,低激光功率可能仅引起膜通透性增加,而高激光功率则可能在纳米颗粒周围产生超过水沸点的温度,即使玻璃表面具有冷却效应。据估计,纳米气泡在纳米颗粒周围形成的温度范围为 200 °C 至 300 °C25,48,此时剧烈的热量可能导致颗粒从激光焦点位移或发生碎裂。此外,加热过程中纳米或微米气泡的形成对该方法构成挑战。由于气液界面会使膜脱水并可能导致蛋白质失稳,这在研究膜修复时是不希望出现的,因此必须限制加热程度。值得注意的是,金纳米壳耐受高温的能力较差,在上述条件下会发生降解,这一点已通过高分辨率显微镜观察得到证实58。
本文提供了一种利用热等离激元效应在膜上实现高度局部化穿孔的详细实验方案,该方法适用于细胞膜和模型膜。为进一步减小加热范围,可采用对近红外光具有共振效应的更小纳米颗粒,从而实现对内体、内质网以及核膜等细胞器的细胞内穿孔。此类纳米颗粒包括纳米棒和纳米俄罗斯套娃结构48,可用于研究核膜修复过程,其机制是靶向那些在细胞表面易于被内吞、并被运输至细胞核的金纳米颗粒69。总体而言,该技术能够识别并分析质膜修复(PMR)过程中关键的分子组分,阐明其生物物理功能与作用,同时保持细胞的存活能力。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢Jesper Nylandsted向我们提供了重组annexin蛋白以及编码annexin的质粒。本工作获得了丹麦独立研究理事会自然科学项目(DFF-4181-00196)、诺和诺德基金会2018年跨学科协同项目(NNF18OC0034936)、丹麦癌症协会科学委员会(R90-A5847-14-S2)、伦贝克基金会(R218-2016-534)以及 伦贝克基金会卓越中心(生物膜在纳米医学中的应用)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1064 nm 捕获激光器 | Spectra Physics | N/A | Spectra Physics J201-BL-106C,Nd:YVO4 近红外激光器 |
| 160 nm 金纳米壳 | NanoComposix | NCXGSIR150 | |
| 200 nm 金纳米颗粒 | BBI Solutions | EM.GC200/7 | |
| 35 mm 玻璃表面 MatTek 微孔板 | MATTEK | P35G-1.5-14-C | |
| 琥珀色玻璃小瓶 | Supelco Sigma Aldrich | 243438 | |
| Annexin A2 质粒 | N/A | N/A | 由中国台湾合作方丹麦癌症研究中心提供 |
| Annexin A4 重组蛋白 | N/A | N/A | 由中国台湾合作方丹麦癌症研究中心提供的 N 端 GFP 标记 ANXA4 |
| Annexin A5 重组蛋白 | N/A | N/A | 由中国台湾合作方丹麦癌症研究中心提供的 N 端 GFP 标记 ANXA5 |
| β-酪蛋白 | Sigma Life Science | C6905-1G | |
| CaCl2 | Supelco (Sigma Aldrich) | 10035-04-8 | |
| Centrifuge 5702 离心机 | Eppendorf | 5702 | |
| 氯仿 | VWR Chemicals | 67-66-3 | |
| 培养皿(Nunclon Delta 表面) | Thermo Scientific | 150460 | |
| DID 细胞标记溶液 | Invitrogen | 7757 | |
| 蒸馏水 | Gibco | 15230-089 | |
| DOPC | Avanti Polar Lipids | 850375C | 溶于氯仿 |
| DOPS | Avanti Polar Lipids | 840035C | 溶于氯仿 |
| 杜尔贝科改良伊格尔培养基(Dulbecco's Modified Eagle's Medium) | Thermo Fisher Scientific | 11995065 | |
| FIJI ImageJ 分发版 | ImageJ2 | N/A | |
| GCaMP6s-CAAX | N/A | 由中国台湾合作方丹麦癌症研究中心提供 | |
| Gibco 胎牛血清 | Fisher Scientific | 11573397 | 占培养基的 10% |
| 葡萄糖 | PROLABO | 24 374.297 | |
| Hamilton 注射器 | Hamilton Company | N/A | 50 和 500 微升 |
| Harrick 等离子清洗机 PDG-002 | Harrick Plasma | N/A | |
| HEK293T 细胞 | N/A | 由中国台湾合作方丹麦癌症研究中心提供 | |
| Leica 声光分束器(AOBS) | Leica | N/A | |
| Leica PL APO 63x 水浸物镜,NA = 1.2 | Leica | N/A | |
| Leica SP5 共聚焦扫描显微镜 | Leica | N/A | |
| Lipofectamine 转染试剂 | Fisher Scientific | 15338030 | |
| MatLab | The Mathworks, Inc., Natick, Massachusetts, 美国 | N/A | |
| NaCl | VWR Chemicals | 7647-14-5 | |
| Opti-MEM 低血清培养基 | Thermo Fisher Scientific | 11058021 | |
| Parafilm 封口膜 | Bemis | PM-992 | |
| 青霉素-链霉素 | Thermo Fisher Scientific | 15140122 | 占培养基的 1% |
| 磷酸盐缓冲液(PBS) | Thermo Fisher Scientific | 10010023 | |
| 压电位移台(PI 731.20) | Physik Instrumente(德国) | N/A | |
| 聚-L-赖氨酸 | Sigma-Aldrich | P8920-100ML | 用于包被,浓度 0.01–0.1% |
| 聚乙烯醇 | Sigma-Aldrich | 363065-25G | |
| 直径 25 mm 圆形玻璃载片 Ø | VWR | 631-1584 | |
| 超声波破碎仪 Brandson 2800 | Brandson | N/A | |
| 蔗糖 | Sigma Life Science | 57-50-1 | |
| T25 组织培养瓶 | Falcon | 353108 | 蓝色透气盖 |
| Tris-HCl | Invitrogen | 15567-027 | |
| TrypLE | Thermo Fisher Scientific | A1285901 | |
| 胰蛋白酶-EDTA | Fisher Scientific | 11590626 | |
| VWR Mini Vortex 230V EU 混匀仪 | VWR | 12620-84 | ECN: 444-2790, SN: 150713022 |
参考文献
- Bendix, P. M., et al. Interdisciplinary synergy to reveal mechanisms of annexin-mediated plasma membrane shaping and repair. Cells. 9 (4), 1029(2020).
- Gajic, O., Lee, J., Doerr, C. H., Berrios, J. C., Myers, J. L., Hubmayr, R. D. Ventilator-induced Cell Wounding and Repair in the Intact Lung. American Journal of Respiratory and Critical Care Medicine. 167, 1057-1063 (2003).
- McNeil, P. L., Khakee, R. Disruptions of muscle fiber plasma membranes. Role in exercise-induced damage. The American Journal of Pathology. 140 (5), 1097-1109 (1992).
- Yu, Q. C., McNeil, P. L. Transient disruptions of aortic endothelial cell plasma membranes. The American Journal of Pathology. 141 (6), 1349-1360 (1992).
- Boye, T. L., et al. Annexin A4 and A6 induce membrane curvature and constriction during cell membrane repair. Nature Communications. 8, 1623(2017).
- Bischofberger, M., Gonzalez, M. R., van der Goot, F. G. Membrane injury by pore-forming proteins. Current Opinion in Cell Biology. 21, 589-595 (2009).
- Tang, S. K. Y., Marshall, W. F. Self-repairing cells. Science (New York, N.Y.). 356, 1022-1025 (2017).
- Abreu-Blanco, M. T., Verboon, J. M., Parkhurst, S. M. Single cell wound repair: Dealing with life's little traumas. Bioarchitecture. 1, 114-121 (2011).
- Sønder, S. L., et al. Annexin A7 is required for ESCRT III-mediated plasma membrane repair. Scientific Reports. 9, 6726(2019).
- Andrews, N. W., Almeida, P. E., Corrotte, M. Damage control: cellular mechanisms of plasma membrane repair. Trends in Cell Biology. 24 (12), 734-742 (2014).
- Idone, V., Tam, C., Goss, J. W., Toomre, D., Pypaert, M., Andrews, N. W. Repair of injured plasma membrane by rapid Ca2+-dependent endocytosis. The Journal of Cell Biology. 180 (5), 905-914 (2008).
- Lauritzen, S. P., Boye, T. L., Nylandsted, J. Annexins are instrumental for efficient plasma membrane repair in cancer cells. Seminars in Cell & Developmental Biology. 45, 32-38 (2015).
- Häger, S. C., Nylandsted, J. Annexins: players of single cell wound healing and regeneration. Communicative & Integrative Biology. 12 (1), 162-165 (2019).
- Jaiswal, J. K., et al. S100A11 is required for efficient plasma membrane repair and survival of invasive cancer cells. Nature Communications. 5, 3795(2014).
- Draeger, A., Monastyrskaya, K., Babiychuk, E. B. Plasma membrane repair and cellular damage control: The annexin survival kit. Biochemical Pharmacology. 81 (6), 703-712 (2011).
- Moreno-Pescador, G. S., et al. Thermoplasmonic nano-rupture of cells reveals annexin V function in plasma membrane repair. Nanoscale. 14 (21), 7778-7787 (2022).
- Zhivotovsky, B., Orrenius, S. Calcium and cell death mechanisms: A perspective from the cell death community. Cell Calcium. 50 (3), 211-221 (2011).
- Gerke, V., Moss, S. E. Annexins: From structure to function. Physiological Reviews. 82 (2), 331-371 (2002).
- Idone, V., Tam, C., Andrews, N. W. Two-way traffic on the road to plasma membrane repair. Trends in Cell Biology. 18 (11), 552-559 (2008).
- Boye, T. L., et al. Annexins induce curvature on free-edge membranes displaying distinct morphologies. Scientific Reports. 8, 10309(2018).
- Bouter, A., et al. Annexin-A5 assembled into two-dimensional arrays promotes cell membrane repair. Nature Communications. 2, 270(2011).
- Boye, T. L., Nylandsted, J. Annexins in plasma membrane repair. Biological Chemistry. 397 (10), 961-969 (2016).
- Weinberger, A., et al. Gel-assisted formation of giant unilamellar vesicles. Biophysical Journal. 105 (1), 154-164 (2013).
- Numata, T., Tatsuta, H., Morita, Y., Otani, Y., Umeda, N. Localized thermal processing with a laser-trapped and heated metal nanoparticle. IEEJ Transactions on Electrical and Electronic Engineering. 2, 398-401 (2007).
- Bendix, P. M., Reihani, S. N. S., Oddershede, L. B. Direct measurements of heating by electromagnetically trapped gold nanoparticles on supported lipid bilayers. ACS Nano. 4 (4), 2256-2262 (2010).
- Kyrsting, A., Bendix, P. M., Stamou, D. G., Oddershede, L. B. Heat profiling of three-dimensionally optically trapped gold nanoparticles using vesicle cargo release. Nano Letters. 11 (2), 888-892 (2011).
- Andersen, T., Kyrsting, A., Bendix, P. M. Local and transient permeation events are associated with local melting of giant liposomes. Soft Matter. 10 (24), 4268-4274 (2014).
- Bahadori, A., Oddershede, L. B., Bendix, P. M. Hot-nanoparticle-mediated fusion of selected cells. Nano Research. 10, 2034-2045 (2017).
- Rørvig-Lund, A., Bahadori, A., Semsey, S., Bendix, P. M., Oddershede, L. B. Vesicle fusion triggered by optically heated gold nanoparticles. Nano Letters. 15 (6), 4183-4188 (2015).
- Moreno-Pescador, G., Arastoo, M. R., Ruhoff, V. T., Chiantia, S., Daniels, R., Bendix, P. M. Thermoplasmonic vesicle fusion reveals membrane phase segregation of influenza spike proteins. Nano Letters. 23 (8), 3377-3384 (2023).
- Bahadori, A., Lund, A. R., Semsey, S., Oddershede, L. B., Bendix, P. M. Controlled cellular fusion using optically trapped plasmonic nano-heaters. SPIE Proceedings. SPIE 9922, Optical Trapping and Optical Micromanipulation XIII. 992211, (2016).
- Bahadori, A., Moreno-Pescador, G., Oddershede, L. B., Bendix, P. M. Remotely controlled fusion of selected vesicles and living cells: a key issue review. Reports on Progress in Physics. 81 (3), 32602(2018).
- Moreno-Pescador, G., Arastoo, M. R., Chiantia, S., Daniels, R., Bendix, P. M. Thermoplasmonic induced vesicle fusion for investigating membrane protein phase affinity. bioRxiv. , (2022).
- Pescador, G. S. M., et al. Investigating plasma-membrane repair employing thermoplasmonics. Biophysical Journal. 120 (3), 45A(2021).
- Moreno-Pescador, G. S., Qoqaj, I., Thusgaard Ruhoff, V., Iversen, J., Nylandsted, J., Bendix, P. M. Effect of local thermoplasmonic heating on biological membranes. SPIE 11083, Optical Trapping and Optical Micromanipulation XVI. 110830M, (2019).
- Bement, W. M., Mandato, C. A., Kirsch, M. N. Wound-induced assembly and closure of an actomyosin purse string in Xenopus oocytes. Current Biology. 9 (11), 579-587 (1999).
- Weisleder, N., et al. Recombinant MG53 protein modulates therapeutic cell membrane repair in treatment of muscular dystrophy. Science Translational Medicine. 4 (139), 139ra85(2012).
- Sudji, I. R., Subburaj, Y., Frenkel, N., García-Sáez, A. J., Wink, M. Membrane disintegration caused by the steroid saponin digitonin is related to the presence of cholesterol. Molecules. 20 (11), 20146-20160 (2015).
- Babiychuk, E. B., Monastyrskaya, K., Potez, S., Draeger, A. Intracellular Ca2+ operates a switch between repair and lysis of streptolysin O-perforated cells. Cell Death & Differentiation. 16, 1126-1134 (2009).
- Nygård Skalman, L., Holst, M. R., Larsson, E., Lundmark, R. Plasma membrane damage caused by listeriolysin O is not repaired through endocytosis of the membrane pore. Biology Open. 7 (10), bio035287(2018).
- Swaggart, K. A., et al. Annexin A6 modifies muscular dystrophy by mediating sarcolemmal repair. Proceedings of the National Academy of Sciences of the United States of America. 111, 6004-6009 (2014).
- Yeheskely-Hayon, D., Minai, L., Golan, L., Dann, E. J., Yelin, D. Optically induced cell fusion using bispecific nanoparticles. Small. 9 (22), 3771-3777 (2013).
- Minai, L., Yeheskely-Hayon, D., Golan, L., Bisker, G., Dann, E. J., Yelin, D. Optical nanomanipulations of malignant cells: Controlled cell damage and fusion. Small. 8 (11), 1732-1739 (2012).
- Lukianova-Hleb, E., et al. Plasmonic nanobubbles as transient vapor nanobubbles generated around plasmonic nanoparticles. ACS Nano. 4 (4), 2109-2123 (2010).
- Vogel, A., Noack, J., Hüttman, G., Paltauf, G. Mechanisms of femtosecond laser nanosurgery of cells and tissues. Applied Physics B. 81, 1015-1047 (2005).
- Baffou, G., Polleux, J., Rigneault, H., Monneret, S. Super-heating and micro-bubble generation around plasmonic nanoparticles under cw illumination. Journal of Physical Chemistry C. 118 (9), 4890-4898 (2014).
- Sasikumar, K., Liang, Z., Cahill, D. G., Keblinski, P. Curvature induced phase stability of an intensely heated liquid. Journal of Chemical Physics. 140 (23), 234506(2014).
- Jauffred, L., Samadi, A., Klingberg, H., Bendix, P. M., Oddershede, L. B. Plasmonic heating of nanostructures. Chemical Reviews. 119 (13), 8087-8130 (2019).
- Neuman, K. C., Nagy, A. Single-molecule force spectroscopy: optical tweezers, magnetic tweezers and atomic force microscopy. Nature Methods. 5 (6), 491-505 (2008).
- Bendix, P. M., Jauffred, L., Norregaard, K., Oddershede, L. B. Optical trapping of nanoparticles and quantum dots. IEEE Journal of Selected Topics in Quantum Electronics. 20, 15-26 (2014).
- Samadi, A., Bendix, P. M., Oddershede, L. B. Optical manipulation of individual strongly absorbing platinum nanoparticles. Nanoscale. 46, 18449-18455 (2017).
- Jørgensen, J. T., Norregaard, K., Tian, P., Bendix, P. M., Kjaer, A., Oddershede, L. B. Single particle and PET-based platform for identifying optimal plasmonic nano-heaters for photothermal cancer therapy. Scientific Reports. 6, 30076(2016).
- Goldenberg, H., Tranter, C. J. Heat flow in an infinite medium heated by a sphere. British Journal of Applied Physics. 3 (9), 296-298 (1952).
- Eustis, S., El-Sayed, M. A. Why gold nanoparticles are more precious than pretty gold: Noble metal surface plasmon resonance and its enhancement of the radiative and nonradiative properties of nanocrystals of different shapes. Chemical Society Reviews. 35, 209-217 (2006).
- Landau, L. D., Lifshitz, E. M. Fluid Mechanics: Landau and Lifshitz: Course of Theoretical Physics. 6, Elsevier. (2013).
- Niederauer, C., Seynen, M., Zomerdijk, J., Kamp, M., Ganzinger, K. A. The K2: Open-source simultaneous triple-color TIRF microscope for live-cell and single-molecule imaging. HardwareX. 13, e00404(2023).
- Richardson, A. C., Reihani, N., Oddershede, L. B. Combining confocal microscopy with precise force-scope optical tweezers. SPIE Proceedings:SPIE 6326, Optical Trapping and Optical Micromanipulation III. 632628, (2006).
- Samadi, A., Klingberg, H., Jauffred, L., Kjær, A., Bendix, P. M., Oddershede, L. B. Platinum nanoparticles: a non-toxic, effective and thermally stable alternative plasmonic material for cancer therapy and bioengineering. Nanoscale. 10 (19), 9097-9107 (2018).
- ThermoFisher Scientific Attofluor Cell Chamber for microscopy. , https://www.thermofisher.com/order/catalog/product/A7816 (2023).
- Kreibig, U., Vollmer, M. Theoretical considerations. In: Optical Properties of Metal Clusters. 25, Springer, Berlin, Heidelberg. (1995).
- Mie, G. Beiträge zur Optik trüber Medien, speziell kolloidaler Metallösungen. Annalen der Physik. 330 (3), 377-445 (1908).
- Rueden, C. T., et al. ImageJ2: ImageJ for the next generation of scientific image data. BMC Bioinformatics. 18 (1), 529(2017).
- Schindelin, J., et al. Fiji: An open-source platform for biological-image analysis. Nature Methods. 9, 676-682 (2012).
- Klenow, M. B., Heitmann, A. S. B., Nylandsted, J., Simonsen, A. C. Timescale of hole closure during plasma membrane repair estimated by calcium imaging and numerical modeling. Scientific Reports. 11, 4226(2021).
- Li, T., Wu, X., Liu, F., Li, N. Analytical methods based on the light-scattering of plasmonic nanoparticles at the single particle level with dark-field microscopy imaging. Analyst. 142 (2), 248-256 (2017).
- Gibbs-Flournoy, E. A., Bromberg, P. A., Hofer, T. P. J., Samet, J. M., Zucker, R. M. Darkfield-Confocal Microscopy detection of nanoscale particle internalization by human lung cells. Particle and Fibre Toxicology. 8 (1), 2(2011).
- Taylor, R. W., Sandoghdar, V. Interferometric scattering microscopy: Seeing single nanoparticles and molecules via Rayleigh scattering. Nano Letters. 19 (8), 4827-4835 (2019).
- Wu, Y., Ali, M. R. K., Chen, K., Fang, N., El-Sayed, M. A. Gold nanoparticles in biological optical imaging. Nano Today. 24, 120-140 (2019).
- Klingberg, H., Oddershede, L. B., Loeschner, K., Larsen, E. H., Loft, S., Møller, P. Uptake of gold nanoparticles in primary human endothelial cells. Toxicology Research. 4 (3), 566-666 (2015).
重印与许可
