近年来,对肿瘤中Tropomodulin 3(TMOD3)的研究逐渐增多。本研究首次报道TMOD3在卵巢癌中高表达,并且与铂类耐药性和免疫细胞浸润密切相关。这些结果有助于改善卵巢癌的治疗效果。
方法文章
Tropomodulin 3 过表达作为卵巢癌铂类耐药性与免疫浸润的标志物
* These authors contributed equally
本文内容
摘要
摘要
细胞骨架在卵巢癌的铂类耐药中发挥重要作用。Tropomodulin 3(TMOD3)在多种肿瘤的发生发展中具有关键作用,但其在卵巢癌耐药中的作用尚不明确。本研究通过分析基因表达综合数据库(Gene Expression Omnibus,GEO)、癌症基因组图谱(The Cancer Genome Atlas,TCGA)以及临床蛋白质组肿瘤分析联盟(Clinical Proteomic Tumor Analysis Consortium,CPTAC)的数据,比较了TMOD3在卵巢癌组织与正常组织中的表达水平,并检测了铂类敏感与铂类耐药卵巢癌在铂类治疗后TMOD3的表达变化。采用Kaplan-Meier法评估TMOD3对卵巢癌患者总生存期(OS)和无进展生存期(PFS)的影响。利用TargetScan预测靶向TMOD3的microRNA(miRNA),并结合TCGA数据库进行分析。通过肿瘤免疫估计资源(Tumor Immune Estimation Resource,TIMER)和肿瘤-免疫系统相互作用综合数据库门户(integrated repository portal for tumor-immune system interactions,TISIDB)分析TMOD3表达水平与免疫细胞浸润的关系。利用LinkedOmics、相互作用基因/蛋白质检索工具(Search Tool for the Retrieval of Interacting Genes/Proteins,STRING)以及功能注释、可视化与整合发现数据库(The Database for Annotation, Visualization, and Integrated Discovery,DAVID)生物信息学平台,探索卵巢癌中TMOD3的共表达网络。结果表明,TMOD3在卵巢癌中高表达,并与卵巢癌的分级、分期及转移相关。在经铂类处理的卵巢癌细胞和患者中,TMOD3表达显著降低;然而,在铂类耐药的卵巢癌细胞和组织中,TMOD3表达水平高于铂类敏感者。在接受铂类化疗的卵巢癌患者中,较高的TMOD3表达与较短的OS和PFS显著相关。miRNA介导的转录后调控可能是导致卵巢癌及铂类耐药组织中TMOD3高表达的原因。TMOD3 mRNA的表达水平与卵巢癌中的免疫细胞浸润相关。这些发现表明,TMOD3在卵巢癌中高表达,且与铂类耐药及免疫浸润密切相关。
引言
卵巢癌在全球女性生殖系统肿瘤的死亡率中位居第二1。根据组织病理学特征,卵巢癌可分为三类:生殖细胞肿瘤、性索间质肿瘤和上皮性肿瘤,其中约90%的患者为上皮性卵巢癌。与卵巢癌相关的风险因素包括持续排卵、促性腺激素暴露增加以及炎症性细胞因子2。超过75%的卵巢癌病例在确诊时已处于晚期,导致缺乏有效的治疗手段。晚期卵巢癌患者的预后较差,尽管采用了如腹腔内给药和靶向治疗等新型化疗方案,其5年生存率仍不足20%。目前卵巢癌的标准治疗方案主要为肿瘤切除术联合以铂类和紫杉醇等药物为基础的化疗。然而,约70%的病例会出现肿瘤复发1。顺铂通过干扰DNA复制和转录发挥其治疗作用,是当前卵巢癌化疗的一线用药。但相当一部分卵巢癌患者对铂类药物耐药3。多种细胞过程,如药物外排、细胞解毒、DNA修复、细胞凋亡和自噬,在卵巢癌细胞的铂类耐药中起关键作用4,5,6。
细胞骨架的改变是影响卵巢癌铂类耐药的重要机制。最近有报道称,细胞骨架相关基因通常异常表达,并且在顺铂诱导的细胞凋亡过程中,肌动蛋白细胞骨架发生显著改变7。许多研究表明,顺铂可调节卵巢癌细胞的纳米力学特性。敏感细胞的细胞刚度随铂类药物剂量增加而升高,这主要归因于 肌动蛋白聚合的破坏 。相比之下,顺铂耐药细胞在顺铂处理后细胞刚度无明显变化8。此外,原子力显微镜显示,顺铂敏感型卵巢癌细胞的杨氏模量较低。相反,顺铂耐药型卵巢癌细胞的细胞骨架特征为存在较长的肌动蛋白应力纤维。抑制Rho GTPase可降低细胞刚度,并增强这些耐药细胞对顺铂的敏感性。相反,在顺铂敏感细胞中激活Rho GTPase会增加细胞刚度,并降低其对顺铂的敏感性9。含多种剪接形式的RNA结合蛋白(RBPMS)是一种肿瘤抑制基因,可通过调控细胞骨架网络的蛋白表达并维持细胞完整性,从而降低卵巢癌细胞的顺铂耐药性10。与A2780细胞相比,A2780/CP细胞中的肌动蛋白应力纤维更为明显。卵巢癌细胞耐药性的形成会引发肌动蛋白细胞骨架的广泛重组,从而影响细胞的力学特性、运动能力以及胞内药物转运11。
TMOD3 是一种细胞骨架调控蛋白,通过封闭肌动蛋白丝的慢速生长端(钝端)来防止肌动蛋白解聚12。TMOD3 通过调控肌动蛋白动态在不同细胞类型中发挥不同作用,参与多种生物学过程,如促进细胞形态维持、细胞迁移以及肌肉收缩。研究表明,小鼠中 TMOD3 的缺失会导致胚胎在 E14.5–E18.5 时期死亡,提示 TMOD3 可能在胚胎发育过程中发挥关键作用13。基于其在干细胞和前体细胞中的生物学功能,TMOD3 可能在肿瘤进展中发挥重要作用。在肝细胞癌中,TMOD3 通过激活 MAPK/ERK 信号通路促进肝细胞癌细胞的增殖、侵袭和迁移14,并通过与表皮生长因子受体相互作用激活 PI3K-AKT 通路促进远处转移15。miRNA-490-3p 通过靶向 TMOD3 抑制肝细胞癌细胞的增殖和侵袭16。miR-145 通过抑制 TMOD3 提高放射抵抗性非小细胞肺癌的放射敏感性17。体外实验表明,TMOD3 通过与赖氨酰氧化酶同源物 2(LOXL2)相互作用,调控细胞骨架介导食管癌细胞的侵袭18。此外,蛋白质组学分析显示,TMOD3 的高表达可能通过凋亡通路介导肺癌对依托泊苷的化学耐药性19。尽管近年来 TMOD3 在肿瘤中的研究逐渐增多,但目前尚无关于 TMOD3 在卵巢癌及化疗中作用的报道。
本研究发现,TMOD3 在卵巢癌中表达上调。值得注意的是,TMOD3 的上调与铂类耐药相关。本研究还评估了 TMOD3 在卵巢癌中的预后价值及其与肿瘤免疫浸润的相关性。研究结果表明,TMOD3 在卵巢癌中的过表达与铂类耐药相关。
方案
1. 基因表达综合数据库(Gene Expression Omnibus, GEO)
注意:卵巢癌中、接受铂类药物治疗的卵巢癌中以及耐药性卵巢癌中的 TMOD3 表达数据均来源于 GEO 数据集。所有数据集的研究类型均为基于芯片的表达谱分析,实验生物体为智人(Homo sapiens)。
- 访问 GEO 数据库(参见材料表),在搜索框中输入关键词,例如 TMOD3、卵巢癌 和 耐药 或 数据登录号(参见补充图1A)。
- 在定义组框中将数据划分为不同组别。在选项菜单中,于P值校正方法框内选择Benjamini 和 Hochberg(错误发现率),然后点击GEO2R菜单中的分析。点击下载完整表格以获取结果。
- 使用图形绘制与统计分析软件对下载的数据进行分析和作图(参见补充图1B)。
- 两组间比较采用非配对t检验。
2. TNMplot
注意:TNMplot 利用来自癌症基因组图谱(The Cancer Genome Atlas,TCGA)、促进有效治疗的治疗研究(Therapeutic Research to Generate Effective Treatments,TARGET)以及基因型-组织表达(Genotype-Tissue Expression,GTEx)数据库的 RNA-seq 数据20。使用 TNMplot 分析了 TMOD3 在正常卵巢组织和卵巢癌中的表达情况。
- 前往 TNMplot 网络工具(参见材料表),然后点击比较肿瘤与正常组织。
- 在选择一个基因框中输入TMOD3,并在选择组织框中选择卵巢浆液性囊腺癌。
- 点击开始分析以获取结果(参见补充图1C)。
3. UALCAN
注意:阿拉巴马大学伯明翰分校癌症数据分析门户(UALCAN)是一个用户友好的在线资源,用于分析公开可用的癌症数据21。使用 UALCAN 分析了 CPTAC 数据中正常组织和卵巢癌中 TMOD3 的蛋白质表达水平。
- 前往 UALCAN (参见材料表),点击蛋白质组学菜单。
- 在输入基因名称框中输入 TMOD3,并在CPTAC 数据集框中选择卵巢癌。
- 点击探索以获取结果(参见补充图 1D)。
4. KM-绘图仪预后分析
注意:使用 Kaplan-Meier 作图仪(KM-plotter)分析了 TMOD3 在卵巢癌中的预后价值,包括总生存期(OS)和无进展生存期(PFS)22。
- 前往 KM-plotter(参见材料表),点击启动卵巢癌的 KM-plotter。
- 在Affy ID/基因符号框中输入 TMOD3。
- 在按以下方式分割患者框中选择自动选择最佳截断值。
- 对接受基于铂类化疗的患者进行预后分析时,在化疗选项中选择包含铂类。
- 在用于分析的以下数据集框中选择TCGA。
- 点击绘制 Kaplan-Meier 曲线以获得结果(参见补充图 2)。
5. ROC 绘图工具
注意:采用受试者工作特征曲线(ROC)绘图工具分析对铂类化疗耐药或 敏感患者的TMOD3表达情况,可通过ROC曲线验证目标基因作为预测标志物的价值。该ROC绘图工具在转录组水平的数据库主要来源于TCGA和GEO,包含1816例卵巢癌患者的治疗及疗效反应数据23。
- 前往 ROC Plotter(参见材料表),点击卵巢癌 ROC 分析工具。
- 在基因符号框中输入 TMOD3。
- 在响应框中选择6 个月无复发生存,在治疗框中选择铂类药物。
- 点击计算以获取结果(参见补充图 3)。
6. mRNA-miRNA 分析
注意:通过 TargetScan24 预测了靶向 TMOD3 的 miRNA,随后利用 cBioportal25 分析了 TCGA 卵巢癌数据集中 TMOD3 与这些 miRNA 的相关性。然后,使用 Cytoscape26 对上述结果进行可视化。通过 LinkedOmics27 分析了顺铂敏感型和耐药型卵巢癌患者中 miRNA 的表达情况。
- 进入 TargetScan (参见材料表),在输入人类基因符号框中输入 TMOD3(参见补充图 4A)。
- 进入 cBioportal (参见材料表)。
- 选择卵巢浆液性囊腺癌(TCGA,Nature 2011)数据集,并在输入基因框中输入TMOD3和miRNA符号。
- 点击提交查询,以获取 TMOD3 在 TCGA 卵巢癌数据集中的 miRNA 相关性数据(参见补充图 4B),然后使用 Cytoscape(参见材料表)可视化结果(参见补充图 4C)。
- 进入 LinkedOmics (参见材料表),并选择TCGA_OV 样本队列。
- 在选择搜索数据集框中选择临床,并在选择搜索数据集属性框中选择铂类治疗状态。
- 在选择目标数据集框中选择miRNA测序,在选择统计方法框中选择t检验。
- 点击提交查询以获取结果(参见补充图 4D)。
7. 免疫浸润分析
注意:本研究使用了人类蛋白质图谱(Human Protein Atlas,HPA)数据库 分析TMOD3在多种免疫细胞中的分布。TIMER是一个便捷的在线数据库,可用于分析与多种癌症类型相关的免疫浸润28本研究采用TIMER分析TMOD3 mRNA表达与卵巢癌纯度及免疫细胞浸润之间的关系。TISIDB是一个用于肿瘤-免疫系统相互作用的在线数据库。29本研究采用TISIDB分析TMOD3与卵巢癌中免疫调节分子的相关性。
- 进入 HPA (参见材料表),在搜索框中输入 TMOD3,然后获取结果。
- 选择免疫选项,以显示 TMOD3 在各类免疫细胞中的分布情况(见补充图 5A)。
- 进入 TIMER (参见材料表),在基因符号框中输入 TMOD3。
- 在癌症类型框中选择 OV,然后点击提交以获取结果(见补充图 5B)。
- 进入 TISIDB (参见材料表),在基因符号框中输入TMOD3。
- 点击提交以获取结果(见补充图 5C)。
8. 卵巢癌中 TMOD3 的共表达网络
注意:通过 LinkedOmics 分析与 TMOD3 共表达的基因,并使用热图展示前 50 个基因(TOP50)。利用 STRING30预测与 TMOD3 相互作用的基因,随后通过维恩图展示重叠基因。使用 DAVID31对重叠基因进行功能注释,包括基因本体生物学过程(GO-BP)、基因本体细胞组分(GO-CC)、 基因本体分子功能(GO-MF)以及京都基因与基因组百科全书(KEGG)通路分析。
- 进入 LinkedOmics,选择 TCGA_OV 样本队列。
- 在 选择搜索数据集 框和 选择目标数据集 框中均选择 RNAseq。
- 点击 提交查询,获取与 TMOD3 共表达的基因结果。
- 进入 STRING (参见 材料表),在 蛋白质名称 框中输入 TMOD3。
- 在 生物体 框中选择 homo sapiens,然后点击 搜索 以获取结果(参见 补充图6)。
- 进入 DAVID (参见 材料表)。
- 在 输入基因列表 框中插入重叠基因,并在 选择标识符 框中选择 ENSEMBL _GENE_SYMBOL 。
- 点击 提交列表 以获取结果(参见 补充图7)。
9. CTD 数据库
注意:CTD 数据库是一种用于分析化学物质、基因、表型、疾病与环境之间关系的新型工具32。CTD 数据库可预测靶向 TMOD3 的药物,随后利用 PubChem 数据库确定该药物的确切分子结构。
- 进入 CTD 数据库(参见材料表),在 搜索 菜单中选择 化学物质-基因相互作用查询。
- 在 基因 框中输入 TMOD3,然后点击 搜索 以获取结果(参见补充图 8)。
- 进入 PubChem 数据库(参见材料表),在 搜索 框中输入药物名称以获取结果(参见补充图 9)。
结果
卵巢癌中 TMOD3 的表达
首先,GEO 数据库显示,在微阵列数据集 GSE51088 和 GSE66957 中,TMOD3 的 mRNA 表达水平升高(图 1A、B)。通过 TNMplot 网络工具分析发现,与正常卵巢组织相比,TMOD3 在卵巢癌中也高表达(图 1C)。利用 UALCAN 网络工具对 CPTAC 数据进行分析显示,TMOD3 的蛋白水平在卵巢癌中也显著高于正常卵巢组织(图 1D)。此外,GEO 数据集 GSE53963 显示,与 2 级和 3 级卵巢癌相比,4 级卵巢癌中 TMOD3 的表达显著更高(图 1E);而 GSE23554 数据集显示,与 1 期和 2 期患者相比,3 期卵巢癌患者的 TMOD3 水平更高(图 1F)。另外,GSE131978 数据集显示,在发生转移的卵巢癌组织中,TMOD3 的表达也显著高于无转移的组织(图 1G)。这些结果提示 TMOD3 可能影响卵巢癌的进展。
铂类药物对卵巢癌中TMOD3表达的影响
化疗是影响卵巢癌进展的重要因素33。为了探究TMOD3是否通过影响化疗来调节卵巢癌的进展,本研究首先观察了在化疗药物处理下,卵巢癌中TMOD3的表达是否发生变化。GSE47856数据集显示,在顺铂处理后,卵巢癌CH1细胞系中TMOD3的表达水平下降(图2A)。GSE49577数据集显示,接受卡铂治疗的卵巢癌异种移植小鼠中,TMOD3的mRNA表达水平低于未治疗小鼠(图2B)。此外,GSE63885数据集还显示,在对铂类高度敏感的卵巢癌患者中,接受基于铂类化疗后的TMOD3表达水平显著低于未接受化疗的患者;但在对铂类中度敏感的卵巢癌患者中则无显著差异(图2C)。上述结果提示,TMOD3可能是铂类药物的作用靶点之一。
TMOD3 在铂类敏感或耐药性卵巢癌中的表达
根据上述结果,本研究假设 TMOD3 在卵巢癌中高表达可能通过调控铂类耐药性影响卵巢癌的进展。因此,本研究首先利用多个 GEO 数据集检测了 TMOD3 在耐药细胞系或患者癌组织中的表达水平。GSE15372 和 GSE33482 数据集均显示,顺铂耐药性卵巢癌细胞系 a2780 中的 TMOD3 表达水平显著高于顺铂敏感组(图 3A、B)。GSE45553 数据集显示,顺铂耐药性卵巢癌类球体中的 TMOD3 表达水平显著高于顺铂敏感组(图 3C)。最后,通过 ROC plotter 对 TCGA 和 GEO 卵巢癌化疗患者进行综合分析发现,铂类耐药性卵巢癌患者的 TMOD3 表达水平显著高于铂类敏感患者(图 3D)。此外,ROC 曲线显示 TMOD3 可作为判断卵巢癌铂类耐药性的标志物(图 3E)。上述结果提示,TMOD3 的高表达可能在卵巢癌铂类耐药性中发挥重要作用。
TMOD3 表达对卵巢癌患者生存率的影响
利用 KM-plotter 工具对 TCGA 卵巢癌患者进行预后分析显示,TMOD3 mRNA 高表达与总体患者以及接受铂类治疗患者的总生存期(OS)和无进展生存期(PFS)降低显著相关(图 4)。有趣的是,在接受铂类治疗的患者中,PFS 的差异比总体患者更为显著(图 4D)。由于 PFS 比 OS 更能反映治疗效果,该预后分析进一步证明了 TMOD3 在卵巢癌患者接受以铂类为基础的化疗中的关键作用。
卵巢癌中 TMOD3 的 mRNA-miRNA 分析
由microRNA介导的转录后调控是影响基因表达的重要机制。通过靶向该基因的microRNA功能,可预测该基因的功能。34为了探究卵巢癌中 TMOD3 表达升高的可能机制,通过 TargetScan 预测鉴定了 21 个靶向 TMOD3 的 microRNA。其与 TMOD3 的相关性也在 TCGA 卵巢癌样本中得到验证(图5A)。所有这些都被证实可介导肿瘤的化学耐药性,其中大多数(21个中的17个)被证实与卵巢癌中的顺铂耐药相关。35,36,37,38,39,40,41,42,43,44,45,46,47,48,但 hsa-miR-301a-3p、hsa-miR-301b-3p、hsa-miR-365a-5p 和 hsa-miR-365b-5p 除外。此外,对 TCGA 卵巢癌样本的分析显示,hsa-miR-454-3p 和 hsa-miR-133a-3p 与 TMOD3 表达的负相关性最为显著(图5A-C)。此外,通过Linkedomics分析发现,hsa-miR-133a-3p在顺铂耐药的卵巢癌中表达水平较低图5E),而 hsa-miR-454-3p 差异无统计学意义(图 5D因此,由microRNA(尤其是hsa-miR-133a-3p)介导的转录后调控可能导致顺铂耐药性卵巢癌中TMOD3的高表达。
TMOD3 表达与卵巢癌免疫浸润之间的关系
与化疗和手术相比,免疫治疗是一种新型且具有前景的治疗策略。约 50% 的卵巢癌患者存在自发性的多种免疫细胞浸润49,50。此外,针对化疗耐药的卵巢癌患者开展免疫治疗也备受关注。例如,程序性死亡受体 1 配体 1(PD-L1)抑制剂度伐利尤单抗(Durvalumab)联合 PARP 抑制剂奥拉帕利(Olaparib)在铂类耐药的卵巢癌患者中显示出良好的治疗效果51。HPA 数据集显示,TMOD3 广泛分布于多种免疫细胞中(图 6A、B),提示 TMOD3 在免疫细胞中可能发挥重要作用。因此,本研究利用 TIMER 数据库分析了 TMOD3 与卵巢癌免疫浸润之间的相关性。结果显示,TMOD3 与肿瘤纯度呈负相关(图 6C),表明卵巢癌组织中存在大量其他类型细胞的浸润,而 TMOD3 可能通过这些浸润细胞影响卵巢癌的发生发展。事实上,进一步结果表明,TMOD3 表达水平与 B 淋巴细胞、CD8+ T 细胞、中性粒细胞和树突状细胞呈正相关,但与 CD4+ T 细胞和巨噬细胞无显著相关性(图 6D–I)。本研究进一步探讨了 TMOD3 表达与卵巢癌中免疫调节分子或趋化因子之间的关系,发现 TMOD3 表达与多种免疫调节分子显著相关(图 7A),包括已被广泛研究的免疫检查点分子,如程序性死亡受体 1(PD1)、PD-L1(CD274)和细胞毒性 T 淋巴细胞相关抗原 4(CTLA4)(图 7B–D)。上述结果提示,TMOD3 可能在卵巢癌的免疫浸润过程中发挥重要作用。
卵巢癌中 TMOD3 的共表达网络
本研究进一步探讨了 TMOD3 参与卵巢癌的潜在机制。首先,本研究构建了卵巢癌中 TMOD3 的共表达网络。在 TCGA 卵巢癌样本中,LinkedOmics 分析显示共有 4774 个基因与 TMOD3 显著相关。热图展示了与 TMOD3 正相关或负相关的前 50 个基因(图 8A、B)。接着,本研究利用 STRING 筛选出 295 个与 TMOD3 相互作用的基因。将这 295 个与 TMOD3 相互作用的基因与上述 4774 个显著相关的基因取交集后,共筛选出 76 个基因(图 8C)。对这 76 个基因进行功能富集分析,结果显示肌动蛋白细胞骨架和黏着斑通路富集程度最高(图 8D)。KEGG 通路富集分析表明,癌症中的蛋白聚糖通路富集最为显著(图 8E)。
小分子治疗药物
使用 CTD 数据库分析了 TMOD3 与潜在药物或小分子之间的相关性。共鉴定出八种可能对 TMOD3 具有抑制作用的药物(图 9A),包括对乙酰氨基酚、马兜铃酸 I、蟾毒灵、多柔比星、叶酸、氟哌啶醇、T-2 毒素和四氯二苯并二噁英(图 9B-I)。所鉴定药物的分子结构由 PubChem 数据库确定。这些药物为克服由 TMOD3 过表达介导的卵巢癌耐药过程提供了线索。
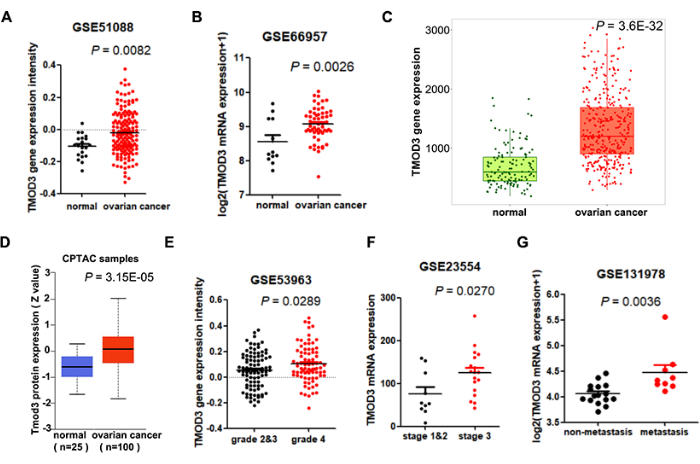
图1:多个卵巢癌数据集中 TMOD3 的 mRNA 和蛋白质表达水平。(A)利用 GSE51088 数据集分析正常卵巢组织(n = 20)和卵巢癌(n = 152)中 TMOD3 的 mRNA 表达水平。(B)利用 GSE66957 数据集分析正常卵巢组织(n = 12)和卵巢癌(n = 57)中 TMOD3 的 mRNA 表达水平。(C)利用 TNM plotter 工具分析正常卵巢组织(n = 133)和卵巢癌(n = 374)中 TMOD3 的 mRNA 表达水平。(D)利用 UALCAN 工具基于 CPTAC 数据分析正常卵巢组织(n = 25)和卵巢癌(n = 100)中 TMOD3 的蛋白质表达水平。(E)利用 GSE53963 数据集分析 2 级和 3 级卵巢癌(n = 94)与 4 级卵巢癌(n = 80)中 TMOD3 的 mRNA 表达水平。(F)利用 GSE23554 数据集分析 1 期和 2 期卵巢癌(n = 10)与 3 期卵巢癌(n = 18)中 TMOD3 的 mRNA 表达水平。在此输入文本。(G)利用 GSE131978 数据集分析有无转移的卵巢癌中 TMOD3 的 mRNA 表达水平。数据以均值 ± 标准误(SEM)表示。请点击此处查看该图的放大版本。
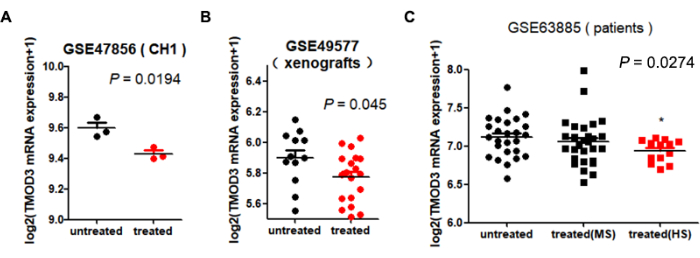
图2:卵巢癌细胞系、移植瘤及患者经铂类药物治疗后TMOD3 mRNA的表达水平。(A)利用GSE47856数据集分析顺铂处理(n = 3)与未处理CH1(n = 3)卵巢癌细胞系中TMOD3 mRNA的表达水平。(B)分析顺铂处理(n = 12)与未处理(n = 19)CH1卵巢癌移植瘤中TMOD3 mRNA的表达水平。(C)分析经顺铂治疗的卵巢癌患者中对顺铂高度敏感(HS,n = 13)和中度敏感(n = 28)者,以及未经顺铂治疗患者(n = 26)中TMOD3 mRNA的表达水平。数据以均值±标准误表示。*与未处理组比较,P < 0.05。请点击此处查看该图的放大版本。
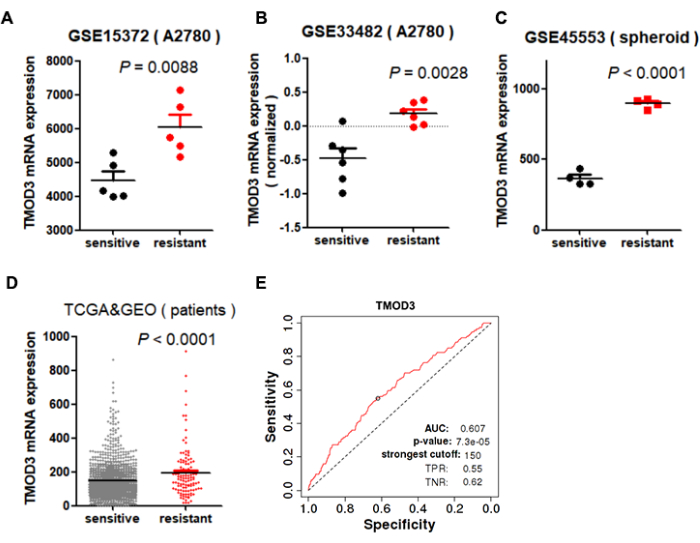
图3:TMOD3 mRNA在铂类敏感型和铂类耐药型卵巢癌细胞系或患者中的表达水平。(A,B)利用GSE15372数据集(A)和GSE33482数据集(B)分析顺铂敏感型和顺铂耐药型A2780细胞系中TMOD3 mRNA的表达水平。(C)利用GSE45553数据集分析顺铂敏感型和顺铂耐药型卵巢癌类球体中TMOD3 mRNA的表达水平。(D,E)利用ROC plotter工具分析铂类敏感型和铂类耐药型卵巢癌患者中TMOD3 mRNA的表达水平(D),并通过ROC曲线鉴定TMOD3为判断铂类耐药性的标志物(E)。数据以均值±标准误(SEM)表示。请点击此处查看该图的放大版本。
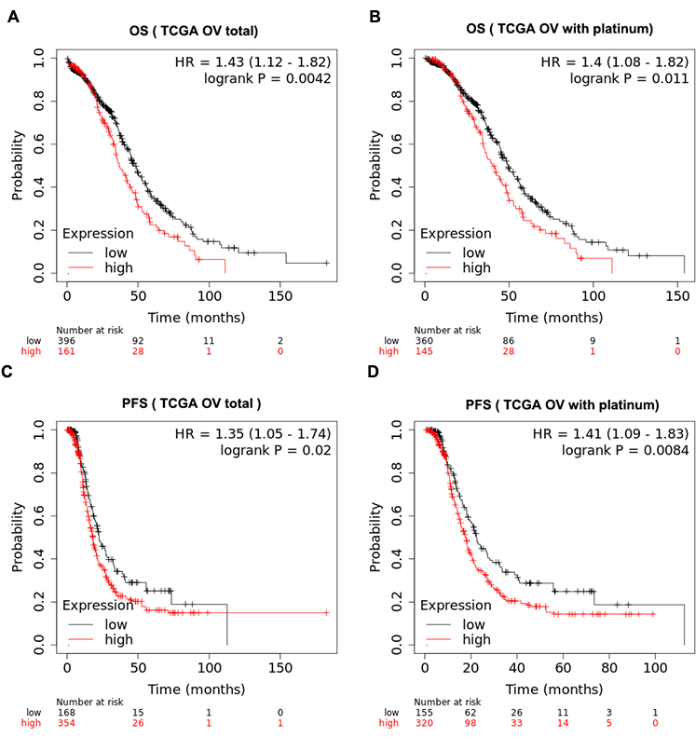
图4:TMOD3 mRNA表达水平与卵巢癌患者总生存期(OS)和无进展生存期(PFS)的相关性分析。(A,B)TMOD3 mRNA表达水平与所有TCGA卵巢癌患者(A)或接受铂类化疗的患者(B)总生存期(OS)的相关性分析。(C,D)TMOD3 mRNA表达水平与所有TCGA卵巢癌患者(C)或接受铂类化疗的患者(D)无进展生存期(PFS)的相关性分析。请点击此处查看该图的放大版本。
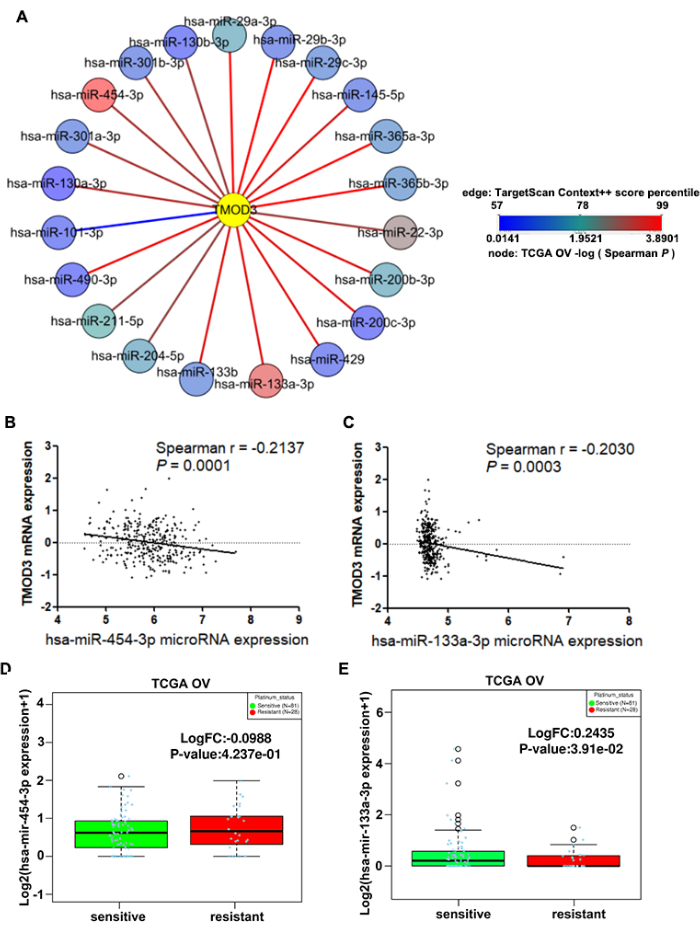
图 5:通过 mRNA-微小RNA 相互作用分析确定 TMOD3 与药物耐药性之间的关系。(A)靶向 TMOD3 的 miRNA 预测。线条颜色表示 TargetScan Context++ 评分百分位数,节点颜色表示该 miRNA 与 TMOD3 在 TCGA 卵巢癌数据集中的相关性强弱。(B,C)在 TCGA 卵巢癌样本中,TMOD3 mRNA 表达水平与 hsa-miR454-3p(B)和 hsa-miR133a-3p(C)的相关性。(D,E)在 TCGA 卵巢癌样本中,hsa-miR454-3p(D)和 hsa-miR133a-3p(E)在顺铂敏感型和耐药型卵巢癌中的表达情况。数据以均值 ± 标准误(SEM)表示。请点击此处查看该图的放大版本。
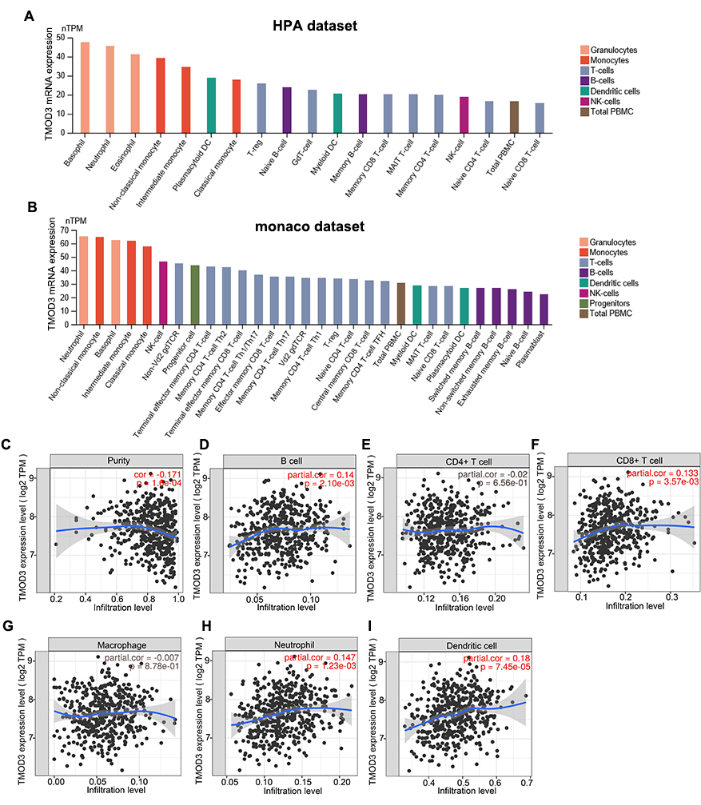
图6:TMOD3 mRNA表达水平与卵巢癌中免疫细胞浸润的相关性。(A,B)HPA数据集(A)和Monaco数据集(B)中免疫细胞的TMOD3 mRNA表达水平。(C–I)TMOD3 mRNA表达水平与TCGA卵巢癌肿瘤纯度(C)、B淋巴细胞(D)、CD4+ T细胞(E)、CD8+ T细胞(F)、巨噬细胞(G)、中性粒细胞(H)以及树突状细胞(I)浸润的相关性。请点击此处查看该图的高清版本。
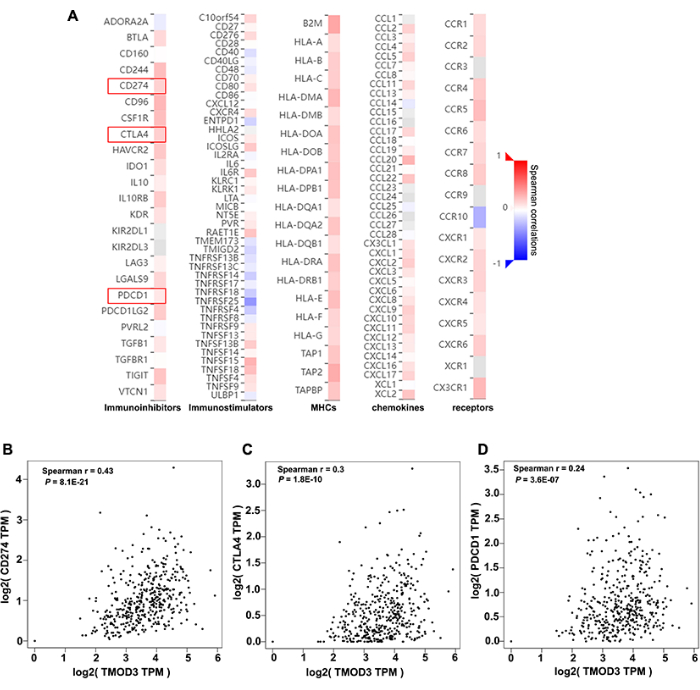
图7:卵巢癌患者中 TMOD3 mRNA 表达水平与免疫调节因子的相关性分析。(A)TCGA 卵巢癌数据集中 TMOD3 mRNA 表达与免疫调节因子之间的相关性热图,包括免疫抑制分子、免疫刺激分子、主要组织相容性复合体(MHC)、趋化因子及其受体。(B-D)TCGA 卵巢癌样本中 TMOD3 mRNA 表达水平与免疫检查点分子 PD1(B)、PD-L1(CD274)(C)和 CTLA4(D)的相关性分析。请点击此处查看该图的高清版本。
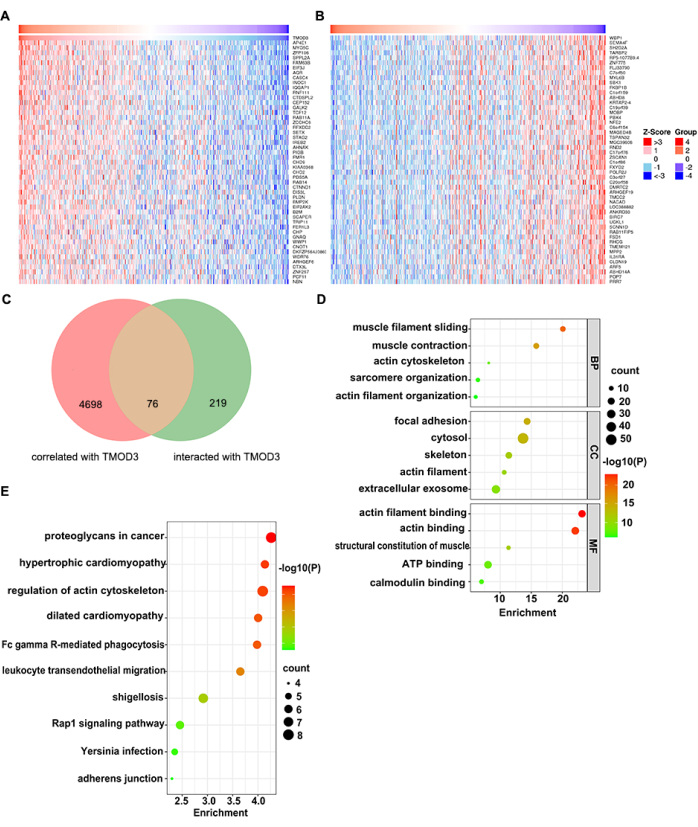
图8:卵巢癌中TMOD3的共表达网络。(A,B)热图显示在TCGA卵巢癌数据集中,与TMOD3呈正相关(A)和负相关(B)的前50个基因。红色和蓝色分别代表与TMOD3正相关和负相关的基因。(C)与TMOD3相互作用的295个基因与TCGA卵巢癌中与TMOD3相关的4774个基因的维恩图。(D)76个重叠基因的功能富集分析。气泡图展示了在生物过程(BP)、细胞组分(CC)和分子功能(MF)中显著富集的前5个条目。(E)KEGG通路富集分析的前10条通路。请点击此处查看该图的放大版本。
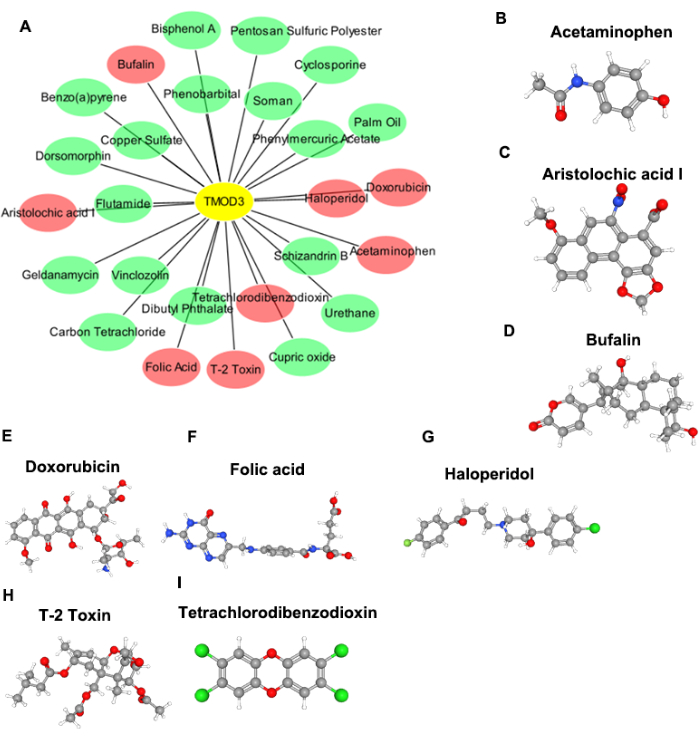
图9:靶向TMOD3的潜在药物或小分子的预测。(A)利用CTD数据库预测靶向TMOD3的潜在药物,其中红色表示可能抑制TMOD3的药物。(B–H)PubChem数据库展示了八种靶向药物的分子结构。(B)对乙酰氨基酚,(C)马兜铃酸I,(D)蟾毒灵,(E)多柔比星,(F)叶酸,(G)氟哌啶醇,(H)T-2毒素。(I)四氯二苯并二噁英。请点击此处查看该图的放大版本。
补充图1:在多个卵巢癌数据集中分析TMOD3 mRNA和蛋白表达水平的方法。(A)使用GEO数据库分析TMOD3的表达。(B)利用统计与绘图软件对从GEO数据库提取的数据进行进一步分析。(C)使用TNMplot分析TMOD3的表达。(D)使用UALCAN分析蛋白表达水平。请点击此处下载该文件。
补充图2:使用KM-plotter进行预后分析。 请点击此处下载该文件。
补充图3:使用ROC plotter进行ROC曲线分析。 请点击此处下载该文件。
补充图4:mRNA-miRNA分析方法。(A)使用TargetScan预测靶向TMOD3的miRNA。(B)利用cBioportal进行TMOD3与miRNA的相关性分析。(C)使用Cytoscape可视化相关性分析结果。(D)利用LinkedOmics分析miRNA的表达水平。请点击此处下载该文件。
补充图 5:免疫浸润分析方法。(A)TMOD3 在各类免疫细胞中分布的分析。(B)利用 cBioportal 进行 TMOD3 与免疫浸润的相关性分析。(C)利用 TISIDB 进行 TMOD3 与免疫调节分子的相关性分析。请点击此处下载该文件。
补充图6:使用STRING预测与TMOD3相互作用的基因。 请点击此处下载该文件。
补充图7:使用DAVID进行功能注释。 请点击此处下载该文件。
补充图8:使用CTD数据库预测靶向TMOD3的药物。 请点击此处下载该文件。
补充图9:利用PubChem数据库分析药物的分子结构。 请点击此处下载该文件。
讨论
细胞骨架被认为在多种肿瘤的发生发展、治疗及预后中具有重要作用52。与主要局限于红细胞和心血管系统的TMOD153以及局限于神经系统的TMOD254相比,TMOD3具有广泛的组织分布,这使得TMOD3在全身性肿瘤中的研究更为广泛14,15,16,17,18,19。然而,目前尚无关于TMOD3在卵巢癌中作用的研究。本研究揭示了TMOD3在卵巢癌中高表达,并进一步分析了其在卵巢癌铂类耐药及肿瘤免疫浸润中的作用。
GEO 是全球领先的完全公开的基因表达数据库。通过整合 GEO 和 TCGA 数据库,本研究证明 TMOD3 在多个独立数据集中,于 mRNA 和蛋白质水平均在卵巢癌中 呈高表达。异常基因表达是肿瘤发生的重要机制55,本研究进一步发现 TMOD3 与卵巢癌的转移、分级、分期及预后显著相关。因此,TMOD3 在卵巢癌中发挥着关键作用。
先前的研究报道,细胞骨架相关基因在顺铂诱导的细胞凋亡中通常出现异常表达,且肌动蛋白细胞骨架发生显著改变7事实上,作为肌动蛋白细丝慢速生长端(钝端)的帽状蛋白,TMOD3在顺铂和卡铂处理后发生改变,GO功能分析和KEGG通路分析也表明,肌动蛋白细胞骨架可能是TMOD3影响卵巢癌进程的潜在机制。然而,细胞骨架是一个复杂的生物学过程,本研究仅证实TMOD3的表达受铂类药物影响。TMOD3是否为铂类药物的直接作用靶点,以及其他化疗药物是否也会改变TMOD3的表达,仍有待通过分子生物学实验进一步验证。本研究中,对铂类药物中度敏感的患者在接受以铂类为基础的化疗后,TMOD3表达未发生显著变化,而在高度敏感患者中TMOD3表达显著下降。鉴于TMOD3在卵巢癌中呈高表达,可以合理推测TMOD3与卵巢癌的铂类耐药相关。利用 体外 实验数据集和患者数据集均显示,TMOD3 在铂类耐药的卵巢癌细胞系或患者中的表达水平显著高于铂类敏感者。卵巢癌的晚期诊断以及因化疗耐药导致的疾病复发,是造成其高死亡率的重要原因。1,2据报道,血清中抗-TMOD3b-自身抗体在诊断rAFS I至II期子宫内膜异位症及超声阴性子宫内膜异位症时,敏感性≥80%56本研究显示,TMOD3 是确定铂类耐药性的有价值标志物。然而,仍需进一步的临床分析以确定在铂类耐药性于不同时间或不同水平出现的所有情况下,TMOD3 是否均具有作为生物标志物的价值。
microRNA介导的转录后调控是导致化疗耐药相关基因异常表达的重要机制34。本研究通过mRNA-miRNA分析揭示了TMOD3在卵巢癌及铂类耐药卵巢癌中高表达的可能原因。已有研究表明,miR-133a通过下调UCP-2的表达可提高乳腺癌对阿霉素的敏感性57,并通过下调ATP7B的表达可提高人喉癌细胞系的敏感性58。在本研究中,miR-133a也被发现可靶向TMOD3,并在TCGA卵巢癌样本中与TMOD3呈显著负相关。顺铂敏感型卵巢癌患者的miR-133a表达水平也高于顺铂耐药患者。这提示miR-133a可能通过转录后调控影响TMOD3的表达,从而介导卵巢癌对顺铂的耐药性。microRNA之所以被认为是肿瘤诊断中的重要指标,原因有以下几点:首先,miRNA可在血液、尿液、初乳和胸腔积液等体液中被检测到;其次,循环miRNA在体液中非常稳定,不受内源性RNase的影响;第三,循环miRNA可携带来自不同肿瘤原发灶或转移灶的病理信号,从而克服肿瘤异质性的问题59。例如, 免疫组织化学联合血浆miR-133a检测可显著提高结直肠癌早期诊断的特异性和敏感性60。因此,miR-133a在卵巢癌铂类耐药中的诊断应用值得进一步研究。
关于TMOD3在免疫细胞中作用的研究较为有限。此前尚未开展过TMOD3表达水平与卵巢癌中免疫细胞浸润之间相关性的分析。在本研究中,我们发现TMOD3的表达与肿瘤组织中浸润性免疫细胞(如CD8+ T细胞和树突状细胞)的数量呈正相关。我们课题组先前的研究已证实,TMOD1可促进树突状细胞的成熟及其免疫功能61,提示TMOD3在卵巢癌中可能发挥类似作用。此外,本研究还发现TMOD3的表达与PD-L1、PDCD1和CTLA4的表达呈正相关。因此,尽管TMOD3参与了免疫细胞向肿瘤组织的募集过程,但也可能导致肿瘤细胞表面PD-L1、PDCD1和CTLA4的表达升高,表明该基因的高表达仍可能对肿瘤免疫应答产生抑制作用。有必要进一步探究其作用机制,并探索通过干预TMOD3的表达来实现对耐化疗卵巢癌进行免疫治疗的可行性。
为了进一步探索TMOD3作为化疗耐药性卵巢癌潜在治疗靶点的可能性,本研究分析了TMOD3与现有药物之间的相互作用,发现若干药物可降低TMOD3的表达。然而,仍需进一步的实验支持,包括临床前研究和前瞻性临床研究,以确定TMOD3高表达的耐药性卵巢癌患者是否能从抑制TMOD3中获益,以及TMOD3是否是一个有前景的治疗靶点。
本研究存在若干局限性。首先,TMOD3 的表达及其预后意义是通过在线公共数据库进行分析的,后续还需通过细胞和动物实验进一步验证这些结果。其次,必须设计体外(in vitro)和体内(in vivo)实验,以阐明 TMOD3 介导卵巢癌铂类耐药的详细机制。第三,结合单细胞测序技术研究 TMOD3 的作用可能更为理想,以避免肿瘤细胞异质性带来的影响。
综上所述,本研究首次发现TMOD3在耐药性卵巢癌中表达上调。该研究还初步探讨了其潜在的作用机制以及作为治疗靶点的可能性。
披露
作者声明无利益冲突。
致谢
本工作得到了国家自然科学基金(编号 32171143、31771280)以及江苏省教育厅自然科学基金(编号 18KJD360003、21KJD320004)的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| cBioportal | 纪念斯隆-凯特琳癌症中心 | 相关性分析 TMOD3 与靶向 miRNA(https://www.cbioportal.org) | |
| CTD 数据库 | 北卡罗来纳州立大学 | 分析化学物质、基因、表型、疾病与环境之间的关系(https://ctdbase.org/) | |
| Cytoscape | 美国国立卫生研究院普通医学科学国家研究所 | 网络数据整合、分析与可视化(www.cytoscape.org/) | |
| DAVID | 美国国家癌症研究弗雷德里克实验室 | 一套全面的功能注释工具,供研究人员理解大量基因列表背后的生物学意义(https://david.ncifcrf.gov/) | |
| GEO | NCBI | 基因表达分析(https://www.ncbi.nlm.nih.gov/geo/) | |
| HPA | Knut &以及阿丽丝·瓦伦伯格基金会 | 人类蛋白质图谱(Human Protein Atlas,HPA)数据库有助于分析TMOD3在多种免疫细胞中的分布(https://www.proteinatlas.org/) | |
| KM-绘图器 | 塞梅尔维斯大学生物信息学系 | 预后分析 (https://kmplot.com/analysis/) | |
| LinkedOmics | 贝勒医学院 | 一个供生物学家和临床医生在单一肿瘤类型内部及不同肿瘤类型之间访问、分析和比较癌症多组学数据的平台(http://www.linkedomics.org/) | |
| PubChem数据库 | 美国国家医学图书馆 | 确定药物的确切分子结构 | |
| ROC Plotter | 塞梅尔维斯大学生物信息学系 | 验证目的基因作为预测标志物(http://www.rocplot.org/) | |
| STRING | 瑞士生物信息学研究所 | 共表达网络分析(https://string-db.org) | |
| TargetScan | 白头生物医学研究所 | miRNA靶点预测(www.targetscan.org/) | |
| 时间相关事件测量(Temporal Interval Measurement) | 哈佛大学 | 多种癌症类型中免疫浸润的系统性分析(https://cistrome.shinyapps.io/timer/) | |
| TISIDB | 香港大学 | 一个用于肿瘤与免疫系统相互作用研究的网络门户(http://cis.hku.hk/TISIDB/) | |
| TNMplot | 塞梅尔维斯大学生物信息学系 | 基因表达分析 (https://www.tnmplot.com/ ) | |
| UALCAN | 阿拉巴马大学伯明翰分校 | 基因表达分析(http://ualcan.path.uab.edu) |
参考文献
- Gaona-Luviano, P., Medina-Gaona, L. A., Magaña-Pérez, K. Epidemiology of ovarian cancer. Chin Clin Oncol. 9 (4), 47(2020).
- Ahmed, N., et al. Ovarian cancer, cancer stem cells and current treatment strategies: A potential role of magmas in the current treatment methods. Cells. 9 (3), 719(2020).
- Song, M., Cui, M., Liu, K. Therapeutic strategies to overcome cisplatin resistance in ovarian cancer. Eur J Med Chem. 232, 114205(2022).
- Binju, M., et al. Mechanisms underlying acquired platinum resistance in high grade serous ovarian cancer - A mini review. Biochim Biophys Acta Gen Subj. 1863 (2), 371-378 (2019).
- El Bairi, K., Singh, S., Le Page, C. Revisiting platinum-resistant ovarian cancer: Advances in therapy, molecular biomarkers, and clinical outcomes. Semin Cancer Biol. 77, 1-2 (2021).
- Freimund, A. E., Beach, J. A., Christie, E. L., Bowtell, D. D. L. Mechanisms of drug resistance in high-grade serous ovarian cancer. Hematol Oncol Clin North Am. 32 (6), 983-996 (2018).
- Shimizu, T., Fujii, T., Sakai, H. The relationship between actin cytoskeleton and membrane transporters in cisplatin resistance of cancer cells. Front Cell Dev Biol. 8, 597835(2020).
- Sharma, S., et al. Correlative nanomechanical profiling with super-resolution f-actin imaging reveals novel insights into mechanisms of cisplatin resistance in ovarian cancer cells. Nanomedicine. 8 (5), 757-766 (2012).
- Sharma, S., Santiskulvong, C., Rao, J., Gimzewski, J. K., Dorigo, O. The role of rho GTPase in cell stiffness and cisplatin resistance in ovarian cancer cells. Integr Biol (Camb). 6 (6), 611-617 (2014).
- Rabelo-Fernández, R. J., et al. Reduced RBPMS levels promote cell proliferation and decrease cisplatin sensitivity in ovarian cancer cells. Int J Mol Sci. 23 (1), 535(2022).
- Seo, Y. H., Jo, Y. N., Oh, Y. J., Park, S. Nano-mechanical reinforcement in drug-resistant ovarian cancer cells. Biol Pharm Bull. 38 (3), 389-395 (2015).
- Parreno, J., Fowler, V. M. Multifunctional roles of tropomodulin-3 in regulating actin dynamics. Biophys Rev. 10 (6), 1605-1615 (2018).
- Sui, Z., et al. Regulation of actin polymerization by tropomodulin-3 controls megakaryocyte actin organization and platelet biogenesis. Blood. 126 (4), 520-530 (2015).
- Jin, C., Chen, Z., Shi, W., Lian, Q. Tropomodulin 3 promotes liver cancer progression by activating the MAPK/ERK signaling pathway. Oncol Rep. 41 (5), 3060-3068 (2019).
- Zheng, H., et al. Tropomodulin 3 modulates EGFR-PI3K-AKT signaling to drive hepatocellular carcinoma metastasis. Mol Carcinog. 58 (10), 1897-1907 (2019).
- Wang, H., Yang, G., Yu, Y., Gu, P. Microrna-490-3p suppresses the proliferation and invasion of hepatocellular carcinoma cells via targeting tmod3. Oncol Lett. 20 (4), 95(2020).
- Li, H., et al. Mir-145 modulates the radiosensitivity of non-small cell lung cancer cells by suppression of TMOD3. Carcinogenesis. 43 (3), 288-296 (2021).
- Zhan, X. H., et al. Loxl2 upregulates phosphorylation of ezrin to promote cytoskeletal reorganization and tumor cell invasion. Cancer Res. 79 (19), 4951-4964 (2019).
- Paul, D., et al. Global proteomic profiling identifies etoposide chemoresistance markers in non-small cell lung carcinoma. J Proteomics. 138, 95-105 (2016).
- Bartha, Á, Győrffy, B. TNMplot.Com: A web tool for the comparison of gene expression in normal, tumor and metastatic tissues. Int J Mol Sci. 22 (5), 2622(2021).
- Chandrashekar, D. S., et al. UALCAN: A portal for facilitating tumor subgroup gene expression and survival analyses. Neoplasia. 19 (8), 649-658 (2017).
- Gyorffy, B., Lánczky, A., Szállási, Z. Implementing an online tool for genome-wide validation of survival-associated biomarkers in ovarian cancer using microarray data from 1287 patients. Endocr Relat Cancer. 19 (2), 197-208 (2012).
- Fekete, J. T., et al. Predictive biomarkers of platinum and taxane resistance using the transcriptomic data of 1816 ovarian cancer patients. Gynecol Oncol. 156 (3), 654-661 (2020).
- Mcgeary, S. E., et al. The biochemical basis of microRNA targeting efficacy. Science. 366, 6472(2019).
- Gao, J., et al. Integrative analysis of complex cancer genomics and clinical profiles using the cBioPortal. Sci Signal. 6 (269), pl1(2013).
- Shannon, P., et al. Cytoscape: A software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Vasaikar, S. V., Straub, P., Wang, J., Zhang, B. Linkedomics: Analyzing multi-omics data within and across 32 cancer types. Nucleic Acids Res. 46 (D1), D956-D963 (2018).
- Li, T., et al. Timer: A web server for comprehensive analysis of tumor-infiltrating immune cells. Cancer Res. 77 (21), e108-e110 (2017).
- Ru, B., et al. TISIDB: An integrated repository portal for tumor-immune system interactions. Bioinformatics. 35 (20), 4200-4202 (2019).
- Szklarczyk, D., et al. String v11: Protein-protein association networks with increased coverage, supporting functional discovery in genome-wide experimental datasets. Nucleic Acids Res. 47 (D1), D607-D613 (2019).
- Sherman, B. T., et al. A web server for functional enrichment analysis and functional annotation of gene lists (2021 update). Nucleic Acids Res. 50 (W1), W216-W221 (2022).
- Grondin, C. J., et al. Predicting molecular mechanisms, pathways, and health outcomes induced by Juul e-cigarette aerosol chemicals using the comparative toxicogenomics database. Curr Res Toxicol. 2, 272-281 (2021).
- Wang, X., et al. Hif-1α is a rational target for future ovarian cancer therapies. Front Oncol. 11, 785111(2021).
- Liu, X., et al. Downregulation of nek11 is associated with drug resistance in ovarian cancer. Int J Oncol. 45 (3), 1266-1274 (2014).
- Tang, J., et al. Inhibition of lc3b can increase the chemosensitivity of ovarian cancer cells. Cancer Cell Int. 19, 199(2019).
- Wang, T., et al. Mir-211 facilitates platinum chemosensitivity by blocking the DNA damage response (DDR) in ovarian cancer. Cell Death Dis. 10 (7), 495(2019).
- Tian, J., Xu, Y. Y., Li, L., Hao, Q. Mir-490-3p sensitizes ovarian cancer cells to cisplatin by directly targeting abcc2. Am J Transl Res. 9 (3), 1127-1138 (2017).
- Liu, L., et al. Mir-101 regulates expression of ezh2 and contributes to progression of and cisplatin resistance in epithelial ovarian cancer. Tumour Biol. 35 (12), 12619-12626 (2014).
- Li, Z., et al. Exosomes secreted by chemoresistant ovarian cancer cells promote angiogenesis. J Ovarian Res. 14 (1), 7(2021).
- Xue, B., Li, S., Jin, X., Liu, L. Bioinformatics analysis of mrna and miRNA microarray to identify the key miRNA-mRNA pairs in cisplatin-resistant ovarian cancer. BMC Cancer. 21 (1), 452(2021).
- Zong, C., Wang, J., Shi, T. M. Microrna 130b enhances drug resistance in human ovarian cancer cells. Tumour Biol. 35 (12), 12151-12156 (2014).
- Yu, P. N., et al. Downregulation of mir-29 contributes to cisplatin resistance of ovarian cancer cells. Int J Cancer. 134 (3), 542-551 (2014).
- Sheng, Q., et al. Cisplatin-mediated down-regulation of mir-145 contributes to up-regulation of pd-l1 via the c-myc transcription factor in cisplatin-resistant ovarian carcinoma cells. Clin Exp Immunol. 200 (1), 45-52 (2020).
- Luo, Y., Gui, R. Circulating exosomal circfoxp1 confers cisplatin resistance in epithelial ovarian cancer cells. J Gynecol Oncol. 31 (5), e75(2020).
- Liu, J., et al. Mir-200b and mir-200c co-contribute to the cisplatin sensitivity of ovarian cancer cells by targeting DNA methyltransferases. Oncol Lett. 17 (2), 1453-1460 (2019).
- Li, T., et al. Exosomal transfer of mir-429 confers chemoresistance in epithelial ovarian cancer. Am J Cancer Res. 11 (5), 2124-2141 (2021).
- Chen, S., Jiao, J. W., Sun, K. X., Zong, Z. H., Zhao, Y. Microrna-133b targets glutathione s-transferase π expression to increase ovarian cancer cell sensitivity to chemotherapy drugs. Drug Des Devel Ther. 9, 5225-5235 (2015).
- Zhou, Y., et al. Mir-133a targets yes1 to reduce cisplatin resistance in ovarian cancer by regulating cell autophagy. Cancer Cell Int. 22 (1), 15(2022).
- Marth, C., Wieser, V., Tsibulak, I., Zeimet, A. G. Immunotherapy in ovarian cancer: Fake news or the real deal. Int J Gynecol Cancer. 29 (1), 201-211 (2019).
- Wu, A., et al. Integrated analysis of prognostic and immune-associated integrin family in ovarian cancer. Front Genet. 11, 705(2020).
- Lampert, E. J., et al. Combination of PARP inhibitor Olaparib, and PD-l1 inhibitor Durvalumab, in recurrent ovarian cancer: A proof-of-concept phase II study. Clin Cancer Res. 26 (16), 4268-4279 (2020).
- Fife, C. M., Mccarroll, J. A., Kavallaris, M. Movers and shakers: Cell cytoskeleton in cancer metastasis. Br J Pharmacol. 171 (24), 5507-5523 (2014).
- Yao, W., Chu, X., Sung, L. A. Cell type-restricted expression of erythrocyte tropomodulin isoform41 in exon 1 knockout/lacz knock-in heterozygous mice. Gene Expr Patterns. 17 (1), 45-55 (2015).
- Omotade, O. F., et al. Tropomodulin isoform-specific regulation of dendrite development and synapse formation. J Neurosci. 38 (48), 10271-10285 (2018).
- Zhang, Q., Zhong, C., Duan, S. The tumorigenic function of linc00858 in cancer. Biomed Pharmacother. 143, 112235(2021).
- Greenbaum, H., Galper, B. L., Decter, D. H., Eisenberg, V. H. Endometriosis and autoimmunity: Can autoantibodies be used as a non-invasive early diagnostic tool. Autoimmun Rev. 20 (5), 102795(2021).
- Yuan, Y., Yao, Y. F., Hu, S. N., Gao, J., Zhang, L. L. Mir-133a is functionally involved in doxorubicin-resistance in breast cancer cells mcf-7 via its regulation of the expression of uncoupling protein 2. PLoS One. 10 (6), e0129843(2015).
- Wang, X., Zhu, W., Zhao, X., Wang, P. Mir-133a enhances the sensitivity of hep-2 cells and vincristine-resistant hep-2v cells to cisplatin by downregulating atp7b expression. Int J Mol Med. 37 (6), 1636-1642 (2016).
- Han, Y., Li, H. MiRNAs as biomarkers and for the early detection of non-small cell lung cancer (SCLC). J Thorac Dis. 10 (5), 3119-3131 (2018).
- Luo, X., Wu, Y., Ji, M., Zhang, S. Combined plasma microRNA and fecal occult blood tests in early detection of colorectal cancer. Clin Lab. 65 (5), (2019).
- Liu, X., et al. Tropomodulin1 expression increases upon maturation in dendritic cells and promotes their maturation and immune functions. Front Immunol. 11, 587441(2020).
重印与许可
