本方案描述了一种利用黑腹果蝇(Drosophila melanogaster)记录糖诱导的搜寻行为的实验方法。该实验可用于研究摄食与觅食相关行为,以及其背后的神经机制。
本文内容
摘要
摘要
觅食行为对于生物体的生存至关重要,因为它使生物能够寻找并获取必需的食物资源。在 果蝇饥饿会在果蝇摄入少量糖溶液后引发一种独特搜寻行为。本报告介绍了一种简单的实验装置,用于研究糖诱发的搜寻行为,旨在揭示其潜在机制。微量高浓度糖溶液即可诱发果蝇持续的搜寻行为。已有研究证实路径整合在此行为中的作用,果蝇可利用其运动轨迹返回糖所在位置。最新研究结果表明,摄入糖后搜寻行为的启动和强度存在时间依赖性调控。我们还利用该装置人工激活咽部特定味觉感受神经元,同样可诱发搜寻行为。 果蝇 神经遗传学工具包提供了多种多样的工具和技术,可与糖诱导的搜寻行为范式相结合,用于研究觅食行为背后的神经与遗传机制。理解果蝇中由饥饿驱动的搜寻行为的神经基础,有助于推动整个神经生物学领域的发展,为调控摄食行为的机制提供新的见解,这些机制不仅存在于其他生物中,也存在于人类中。
引言
觅食行为是生物在不同分类群中表现出的一种基本生存策略。在昆虫中已鉴定出两种觅食行为:饥饿诱导的食物搜寻行为和进食后的局部搜索行为1。当昆虫处于饥饿状态时,依赖感官线索来定位食物源。在遇到并摄取一小片食物后,它们会启动一种局部搜索行为,其特征是行走路径复杂,并在食物位置周围盘旋绕行。
糖诱导的搜寻行为是一种特定形式的局部搜寻,最早由美国生物学家 Vincent Dethier 在60多年前通过对丽蝇的研究首次发现2。当果蝇处于饥饿状态时,若给予少量糖分不足以使其饱足,它们便会启动局部搜寻行为。典型的搜寻行为表现为高度曲折的行走路径,移动速度较低、转向频率较高,并反复返回糖滴所在位置。后续研究已在家蝇和果蝇中对此行为进行了探讨3,4。搜寻行为的启动、强度和持续时间受动物内部状态(如饥饿程度和动机)以及外部因素(如资源的可获得性和质量)共同调控1,5,6。
追踪技术的进步为研究人员提供了宝贵的工具,用于在受控环境中捕捉和分析行为。本文介绍了一种在果蝇摄入糖分后追踪其自由行走行为的实验范式。该简易装置可用来研究由糖分诱发的搜寻行为。 果蝇 通过在实验区域内提供浓缩糖溶液,并捕捉和分析果蝇对其运动反应,利用先进的追踪技术和数据分析方法,成功量化了果蝇的运动模式、空间探索行为以及对糖刺激的响应动态。
通过该实验方法,已通过实验证实糖诱导的搜寻行为涉及路径整合机制,并且在时间和空间上可与糖的摄入过程相分离7,8。此外,研究还表明,该行为可由咽部味觉神经元的激活所触发9。最新研究结果显示,糖刺激并非一种先天的释放机制,而具有调节作用,并在时间上控制该行为的启动8。利用这一实验范式,我们还在蜜蜂(Apis mellifera)中研究了该行为7,8。
本研究的最终目标是通过靶向遗传操作和神经成像技术,揭示调控搜寻行为的神经回路及新型遗传组分。觅食搜寻行为已被证明是研究昆虫导航与空间记忆的高效实验范式。这类行为为探究果蝇在寻找具有奖赏性食物源过程中所涉及的感觉感知、决策过程及运动协调提供了独特的机会。此外,这些研究结果对于理解其他生物(包括人类)的摄食行为也具有广泛意义,因为许多基本的遗传与神经机制在进化上是保守的。摄食行为的失调与多种神经和代谢性疾病相关10。因此,果蝇搜寻行为背后的神经与遗传机制可能为理解乃至应对这些复杂的人类健康问题提供新的途径。
方案
成年雄性果蝇 黑腹果蝇Canton-S (CS)野生型菌株 用于本研究。
1. 实验准备
- 果蝇饲养
- 收集在12小时内羽化的成年雄性果蝇,并将其置于标准果蝇培养基(实验室自制)中,在25 °C、75%相对湿度、12小时光照/12小时黑暗循环条件下饲养48小时。
注:所用的Drosophila培养基配方为(每1 L培养基)玉米粉(80 g)、D-葡萄糖(20 g)、蔗糖(40 g)、琼脂(8 g)、酵母粉(15 g)、丙酸(4 mL)、对羟基苯甲酸甲酯(1.25 g溶于3 mL乙醇中)和正磷酸(600 µL)(见材料表)。初始喂养阶段确保果蝇在饥饿处理前能获得充足的食物和营养。尽管雄性和雌性果蝇均可表现出觅食行为,但雄性果蝇的饥饿时间更为一致。此外,雌性果蝇在交配后会改变其摄食偏好11。
- 收集在12小时内羽化的成年雄性果蝇,并将其置于标准果蝇培养基(实验室自制)中,在25 °C、75%相对湿度、12小时光照/12小时黑暗循环条件下饲养48小时。
- 饥饿处理
- 喂养期结束后,将果蝇移除食物,但提供水源。
注:为了在不同实验组和品系间标准化饥饿状态,建议测定果蝇在无食物条件下存活率达到90%所需的时间。根据该结果,CS品系果蝇饥饿处理28小时(图1A),因为昼夜节律及其他因素可能影响觅食行为12。同时测定了果蝇在一天中不同时段的觅食活动昼夜变化(图1B)。我们注意到,夜间果蝇的相对觅食活动较光照期有所降低。 - 通过剥夺两天龄果蝇的食物来计算其饥饿耐受性。将15–20只果蝇放入一个底部垫有湿润滤纸的试管中。该滤纸作为基质,确保果蝇在整个饥饿期间可获得水分。
- 在饥饿期间每隔1小时定期统计存活果蝇数量。以90%果蝇存活的时间点作为最终的饥饿处理时长(图1A)。每个品系进行3–4次重复实验,以减少个体差异的影响,更可靠地评估饥饿耐受性。
注:测定各品系的饥饿耐受性,旨在不同品系和实验之间建立标准化的饥饿状态。通过定时记录存活果蝇数量,可监测其随时间变化的存活率,并确定各品系在因饥饿死亡前能耐受食物剥夺的时长。
- 喂养期结束后,将果蝇移除食物,但提供水源。
- 行为记录流程
- 将饥饿处理后的单只果蝇转移至小管中(图2A)。每次操作5–6只果蝇为一批次,以尽量减少果蝇的隔离时间。通过单独测试每只果蝇,可将观察到的行为变化或动作归因于被观察的特定个体,避免其他果蝇间相互作用的干扰。
- 使用直径90 mm的培养皿作为行为实验的活动区域(也可使用更大的培养皿;实验表明,使用更大直径的培养皿并未导致行为差异)。通过底部安装的表面贴装冷白光LED面板从下方照明(图2B、C)。为维持均匀的视觉环境并减少外界干扰,用白色聚氯乙烯管包围实验区域(高度51.5 mm,内径114 mm)。
注:该管道起到屏障作用,防止来自活动区域外部的视觉刺激影响果蝇行为。通过减少外界干扰,可专注于果蝇与食物源的互动,确保实验过程的一致性。 - 活动区域中心的光照强度设定为320 lux。
- 在活动区域中心放置0.2 µL糖溶液。本研究中使用500 mM蔗糖溶液,但可根据需要调整。使用2 mL微量离心管(内径8.7 mm,底部填充棉花后长度缩短至5 mm;图2A)倒置于糖滴上方,将单只果蝇引入活动区域。
- 一旦果蝇开始摄食液滴,立即移除果蝇容器,使其可自由接触食物源。
- 使用顶部摄像机记录活动区域的二维位置。
注:本研究采用Flea3相机(Point Grey,1214 mm镜头,见材料表),以每秒40帧(fps)进行录制。但任何能与背景形成良好对比的相机均可使用。可根据实验需求选择30–60 fps的录制帧率。建议以.avi格式录制,因其兼容常用追踪软件。 - 持续记录,直至果蝇逃离活动区域。实验过程中果蝇可自由行走,培养皿上方无盖。
- 通过允许果蝇自主决定何时停止搜索、飞离或移动至活动区域边缘,观察其自然行为及觅食策略。每次实验后,用70%乙醇擦拭培养皿并彻底干燥,或更换新的培养皿。
注:所有实验应在光照开启后2至6小时内进行,此时间段内果蝇活动水平稳定且较高。该时间窗口确保果蝇处于活跃状态,最大程度地观察其自然觅食行为,并减少昼夜节律等其他因素对行为的干扰。行为实验装置置于温湿度可控的房间内,活动区域 放置在防震台上。该实验设计旨在隔离并测试单只果蝇对糖的反应。向饥饿果蝇提供糖滴,并进行视频记录(图2B、C,视频1)。实验在果蝇活动水平稳定的特定时间段内进行。
- 根据步骤2分析运动轨迹,以确定觅食行为特征。
2. 局部搜索轨迹分析
- 使用 Ctrax 软件11(参见材料表)分析录制的视频。
注:该软件可追踪并提取视频中果蝇的位置信息,转换为 x、y 坐标,从而实现对其运动的精确追踪与分析。有关 Ctrax 的使用方法详见补充文件 1。 - 将运动轨迹划分为两个阶段:初始取食阶段和搜索阶段。定义取食结束并开始行走为果蝇在连续三帧中的移动速度>4 mm s-1。
注:取食阶段结束后,其余轨迹部分被用作果蝇的搜索行为响应。本研究使用 VirtualDub(参见材料表)在追踪前从视频中去除取食阶段。 - 通过以下参数量化搜索行为:
- 路径长度:该参数表示果蝇在食物搜索过程中从起点开始行走的距离(单位:mm)。
- 停留时间:果蝇在搜索过程中行走所花费的时间(单位:s)。该参数反映搜索持续时间以及果蝇寻找食物的坚持程度。
- 蜿蜒度:通过将路径的直线距离(路径起点与终点之间的距离)除以总路径长度,再用 1 减去该比值得到。蜿蜒度值越高,表明轨迹越曲折。
- 返回次数:使用开发的算法,通过两个同心圆识别并统计返回次数。
注:内圆表示搜索起点,Rin(2.5 mm);外圆表示果蝇必须离开起点的最小距离,Rout(4 mm)。当果蝇移动至外圆之外(Rout),随后再次进入内圆(Rin),即定义为一次返回。 - 活动率:以百分比表示,通过计算果蝇在食物搜索期间行走速度超过 2 mm/s 的时间占比得出。该参数反映果蝇在食物搜索中的活动水平和参与程度,可用于区分活跃觅食个体与不活跃个体。
注:本研究使用 MATLAB 和 Python 对轨迹进行进一步分析。相关脚本可在此处获取:https://github.com/eagermeagre/sugar_elicited_search。分析流程包括使用 Ctrax 软件追踪果蝇运动,并确定食物搜索持续时间、总路径长度、搜索时间、蜿蜒度、返回次数和活动率等参数。这些参数为果蝇在记录的食物搜索实验中的行为特征和觅食效率提供了重要信息。
结果
果蝇需根据食物饥饿耐受性估计的时长进行饥饿处理,并逐一检测其对糖的反应(图1A 和 图2A)。行为实验在温湿度受控的房间内进行记录。所报道的实验使用0.2 µL的500 mM蔗糖溶液。将糖滴置于实验区域中央,随后引入果蝇接触糖分(图2B)。持续记录果蝇行为直至其离开实验区域。通过分析视频获取果蝇的x、y坐标及其运动轨迹。采用多个参数量化行为反应:运动路径长度、停留时间、蜿蜒度、返回次数和活动频率。
饥饿果蝇摄入糖分后会进行局部搜索,路径蜿蜒并形成环状结构(图3A,C)。作为阴性对照,记录了未给予糖分的饥饿果蝇行为8。当这些果蝇被引入一个空的实验区域时,并未启动搜索行为,而是逃离了该区域(图3B,D)。该组果蝇被称为未进食果蝇。未进食果蝇的搜索参数——包括路径长度、停留时间、蜿蜒度以及返回次数——均显著低于接受糖滴的果蝇(图4A–D)。
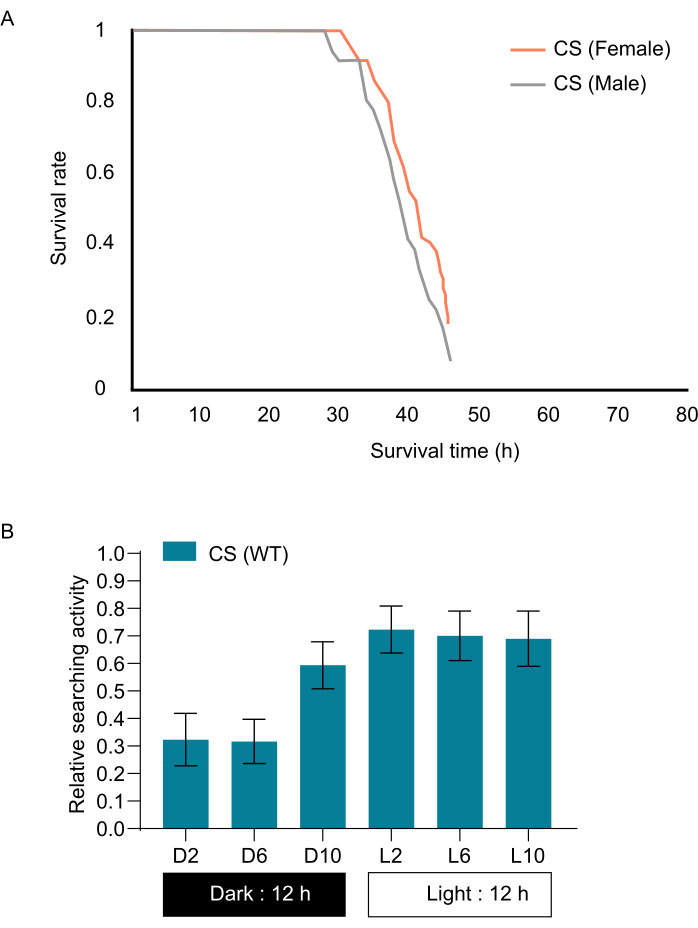
图 1:野生型品系 CS 的饥饿曲线。(A)显示野生型 CS 雄性和雌性果蝇存活率的饥饿曲线。(B)果蝇在一天中不同时间点的觅食活动的昼夜变化。误差线表示标准误(S.E.M.)(n = 10)。请点击此处查看该图的放大版本。
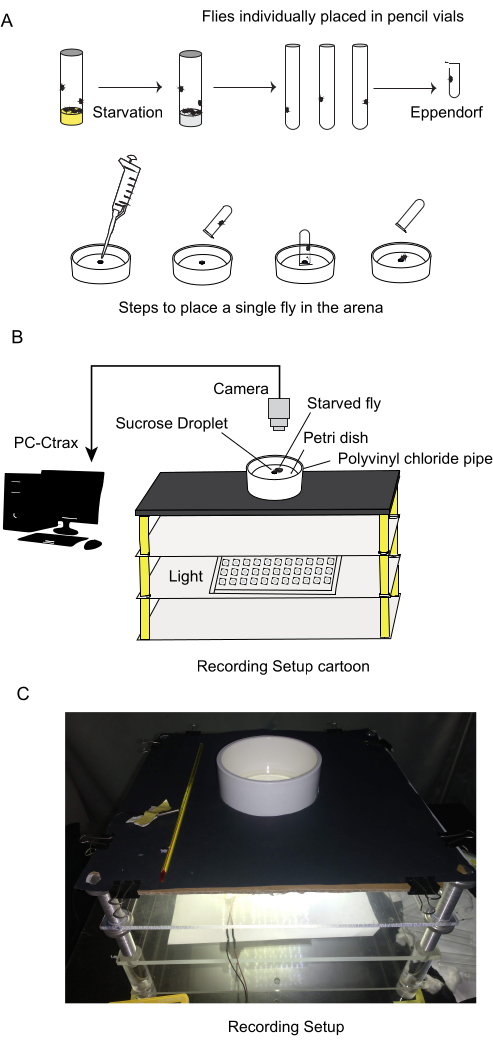
图 2:实验装置,包括饥饿耐受性计算、行为记录流程及轨迹分析。(A)通过测定食物剥夺耐受性以建立标准化的饥饿状态。为进行行为记录,实验前将单只果蝇隔离于小管中。行为实验区域为直径90 mm的培养皿,从底部提供均匀照明。在培养皿中央放置一滴糖溶液,果蝇可自由接触食物源。(B)持续记录果蝇行为直至其逃离实验区域。视频分析采用Ctrax软件进行追踪,并使用MATLAB/Python进行轨迹分析。(C)实验装置实物照片。请点击此处查看该图的放大版本。
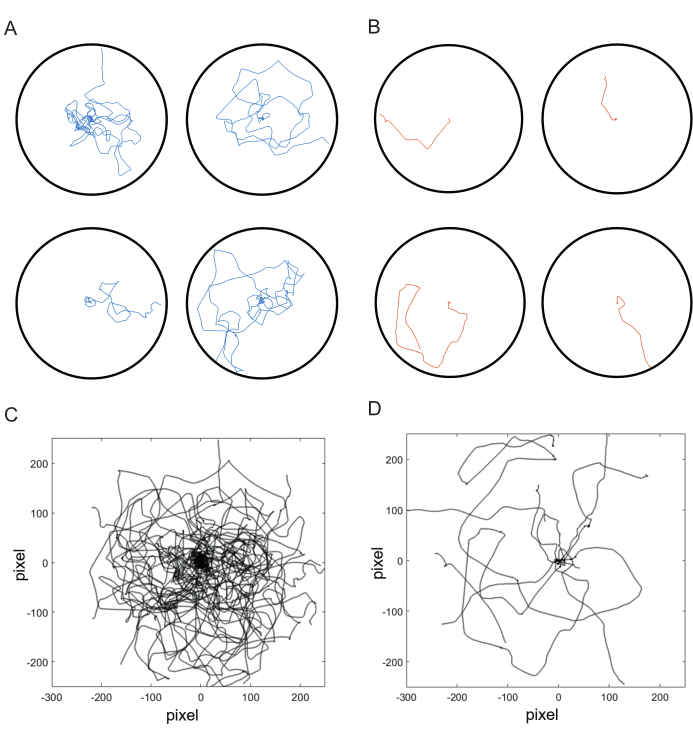
图3:摄取糖分对启动局部搜索行为的必要性。(A)喂食500 mM、0.2 µL糖溶液的果蝇个体运动轨迹。(B)未给予糖分的果蝇个体运动轨迹。(C)对照组果蝇搜索轨迹的叠加图(n = 11)。(D)未给予糖分的果蝇运动路径叠加图(n = 11)。所有轨迹均已归一化至行走起始点。本图改编自Shakeel和Brockmann8。请点击此处查看此图的放大版本。
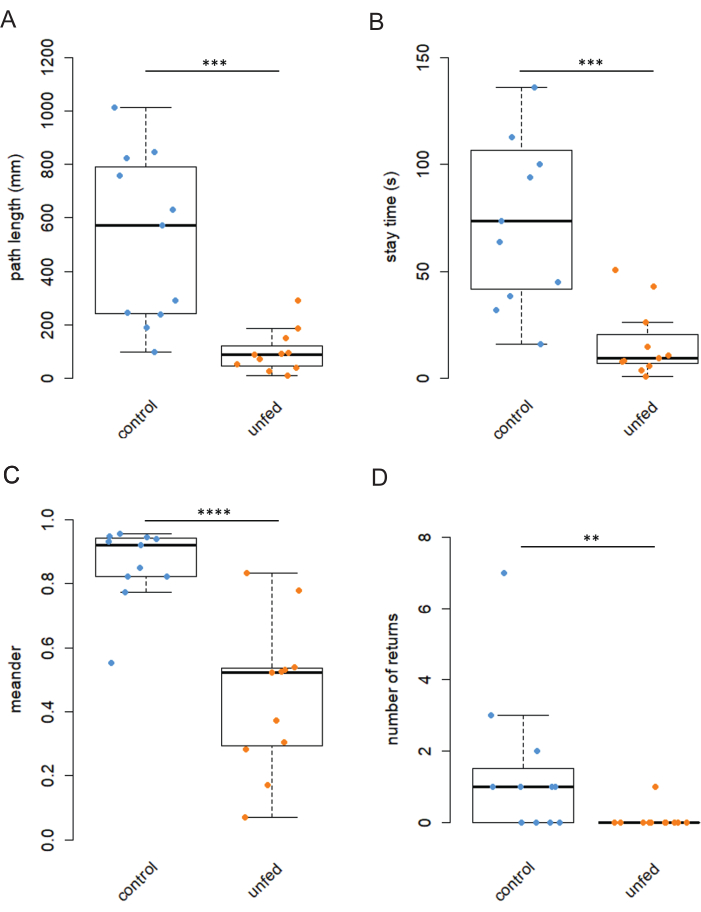
图 4:未喂食果蝇行为参数的降低。 (A–D)与接受糖刺激的对照组果蝇相比,未获得糖奖励的饥饿果蝇其路径长度、停留时间、蜿蜒度及返回次数均更少。**p < 0.001,***p < 0.0001,****p < 0.00001,Wilcoxon 秩和检验。本图改编自 Shakeel 和 Brockmann8。 请点击此处查看此图的放大版本。
视频 1:果蝇的搜索行为及其路径的实时轨迹。 请点击此处下载该视频。
补充文件 1:使用 CTRAX 跟踪视频文件的分步说明。 请点击此处下载该文件。
讨论
本研究介绍了一种用于研究果蝇(Drosophila)糖诱导觅食行为的简单范式,该行为最初由 Dethier2 描述。这种先天行为使果蝇在接触到食物奖励后,会进行局部搜索以寻找额外的食物资源。实验方案中最关键的部分在于恰当地激发果蝇的行为动机。首先,果蝇必须处于饥饿状态,即在剥夺食物的同时仍可获得水分,以确保其摄入糖分。为了在不同实验重复中保持一致的饥饿状态,采用种群中90%个体能够存活的时间长度作为饥饿处理的持续时间。至关重要的是,进食后诱发搜索反应需要提供一种质量足够高但又不足以使果蝇完全饱足的食物刺激。因此,标准化糖的浓度和用量以及饥饿时间虽然耗时,但对于获得稳定且可靠的行为反应至关重要。
在本研究中,使用500 mM、0.2 µL的蔗糖溶液作为饥饿果蝇的刺激物。糖的摄入会引发一种特征性的局部搜索行为,表现为转向行为增加,并频繁返回糖滴所在位置(视频1)。相反,未获得任何糖分的饥饿果蝇则不会表现出搜索反应。值得注意的是,所有与行为相关的参数,包括路径长度、停留时间、蜿蜒度以及返回次数,在未进食果蝇中均显著降低。我们先前已证明,仅摄入水不会引发搜索反应9。
该装置为研究这种先天行为提供了一种成本低且维护简便的方法。尽管本研究使用了背光实验 arena,但只要果蝇与背景之间具有足够的对比度,顶部照明同样可以采用。所使用的追踪软件依赖于在静态背景下检测果蝇的运动13。相机及其分辨率设置可根据所研究行为的具体尺度进行调整。重要的是,该方法能够用于研究觅食行为的多个组成部分,包括觅食过程中对感觉线索的关注、与食物的接触及摄食行为、搜索过程中的运动控制,以及与开发和探索相关的决策过程等。此外,该范式有助于研究局部搜索行为,这种行为在多种生态背景下广泛存在于不同分类群中6。在Drosophila中研究这一行为,为探索与觅食相关的神经通路提供了科学契机。我们已在蜜蜂中研究过局部搜索行为,并发现其与果蝇的行为具有相似性7,8。
最近的研究表明,通过光遗传学激活果蝇的多种糖感觉神经元可触发局部搜索行为14,15,16。然而,目前尚不清楚这些研究中观察到的局部搜索行为在多大程度上能够准确反映果蝇在实际摄入糖分后的自然行为。果蝇的摄食行为受到严格调控,这些发现表明,咽部糖受体的激活会启动搜索行为。跗节味觉感受器负责检测糖分并引发喙伸展反射,而咽部味觉神经元则决定摄食是否继续进行17,18。糖溶液被摄入后,经食道进入前胃,并进入嗉囊,其扩张程度由一条返行神经进行监测19。此外,值得注意的是,前述部分研究涉及对果蝇的束缚或限制,而本方法允许动物在整个实验过程中自由行走。在我们的实验中,果蝇具有足够的动机停留在实验区域内并进行搜索,无需加盖限制。
理解果蝇搜索行为中神经通路、遗传因素与环境线索之间复杂的相互作用,有助于揭示信息处理、学习和记忆形成的普遍原理。此外,觅食行为的失调已被认为与多种人类疾病相关,包括进食障碍和肥胖症。黑腹果蝇(Drosophila)中丰富的神经遗传学工具为研究糖诱导的搜索行为以及解析其背后的神经与遗传机制提供了宝贵的资源。结合光遗传学操控与功能成像技术,该研究范式展现出强大而广阔的应用前景20,21,22。然而,构建用于光遗传学实时操控神经元活动的实验装置可能具有挑战性。若要在果蝇执行搜索行为的同时监测其脑内神经元活动,则需要采用不同的实验设置,例如将果蝇固定在跑步球装置上。许多觅食行为的特征,如摄食调控和决策过程,在不同物种间具有高度保守性。因此,通过研究果蝇觅食行为的神经机制所获得的见解,可为理解其他生物(包括人类)中类似过程提供重要参考。
披露
作者声明,本研究、作者身份和/或本文发表不存在任何潜在的利益冲突。
致谢
我们感谢Ravikumar Boyapati在搭建实验场地方面提供的帮助。本工作由Wellcome信托基金与印度生物技术部联合设立的印度联盟中级研究员项目(资助号:IA/I/15/2/502074)资助,授予P.K.。M.S.由印度医学研究委员会(ICMR)提供的奖学金资助。A.B.由NCBS-TIFR机构经费(编号:12P4167)以及印度政府原子能部(编号:12-R&D-TFR-5.04-0800和12-R&D-TFR-5.04-0900)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2 mL 离心管 | Sigma Aldrich | BR780546 | 用于将果蝇引入糖滴 |
| 琼脂 | SRL | 9002-18-0 | |
| Azure 透镜 | https://www.rmaelectronics.com/azure-photonics-azure-1214mm/ | ||
| 相机 | Logicool, Japan | ||
| 玉米粉 | 本地可得 | ||
| Ctrax 软件 | https://ctrax.sourceforge.net/ | ||
| D-葡萄糖 | SRL | 50-99-7 | |
| Flea3 | Sony | https://www.flir.com/products/flea3-usb3/?vertical=machine+vision&segment=iis | |
| 玻璃管 | Borosil | 用于单独饲养果蝇 | |
| 吸水纸(Kimwipe) | Kimberly-Clark | 34155 | 在食物饥饿期间为果蝇提供饮水途径 |
| LED 光源面板 | 实验室定制制作 | ||
| 照度计 | TENMARS | TM-203 | |
| 对羟基苯甲酸甲酯 | Fisher Scientific | 99-76-3 | |
| 正磷酸 | SRL | 7664-38-2 | |
| 培养皿(90 mm) | Tarsons | 460090 | |
| 丙酸 | SRL | 79-09-4 | |
| 蔗糖 | Qualigens | Q28105 | |
| 糖 | 本地可得 | ||
| VirtualDub | https://www.virtualdub.org/ | ||
| 白色聚氯乙烯管(内径 67 mm × 高 100 mm) | 实验室定制制作 | ||
| 酵母粉 | SRL | REF-34266 |
参考文献
- Jander, R. Ecological aspects of spatial orientation. Annu Rev Ecol Evol Syst. 6 (1), 171-188 (1975).
- Dethier, V. G. Communication by insects: Physiology of dancing. Science. 125 (3243), 331-336 (1957).
- White, J., Tobin, T. R., Bell, W. J. Local search in the housefly Musca domestica after feeding on sucrose. J. Insect Physiol. 30 (6), 477-487 (1984).
- Bell, W. J., Cathy, T., Roggero, R. J., Kipp, L. R., Tobin, T. R. Sucrose stimulated searching behaviour of Drosophila melanogaster in a uniform habitat: modulation by period of deprivation. Animal Behav. 33, 436-448 (1985).
- Dethier, V. G. Microscopic Brains. Science. 143 (3611), 1138-1145 (1964).
- Bell, W. J. Searching behavior patterns in insects. Annu Rev Entomol. 35 (1), 447-467 (1990).
- Brockmann, A., et al. Sugar intake elicits intelligent searching behavior in flies and honey bees. Front Behav Neurosci. 12, 280(2018).
- Shakeel, M., Brockmann, A. Temporal effects of sugar intake on fly local search and honey bee dance behaviour. J Comp Physiol A Neuroethol Sens Neural Behav Physiol. , (2023).
- Murata, S., Brockmann, A., Tanimura, T. Pharyngeal stimulation with sugar triggers local searching behavior in Drosophila. J Exp Biol. 220 (Pt 8), 3231-3237 (2017).
- Nishijo, H., Ono, T. Neural mechanisms of feeding behavior and its disorders new insights into metabolic syndrome. IntechOpen. , (2021).
- Carvalho, G. B., Kapahi, P., Anderson, D. J., Benzer, S. Allocrine modulation of feeding behavior by the sex peptide of Drosophila. Curr Biol. 16 (7), 692-696 (2006).
- Xu, K., Zheng, X., Sehgal, A. Regulation of feeding and metabolism by neuronal and peripheral clocks in Drosophila. Cell Metab. 8 (4), 289-300 (2008).
- Branson, K., Robie, A. A., Bender, J., Perona, P., Dickinson, M. H. High-throughput ethomics in large groups of Drosophila. Nat Methods. 6 (6), 451-457 (2009).
- Corfas, R. A., Sharma, T., Dickinson, M. H. Diverse food-sensing neurons trigger idiothetic local search in Drosophila. Curr Biol. 29 (10), 1660-1668.e4 (2019).
- Behbahani, A. H., Palmer, E. H., Corfas, R. A., Dickinson, M. H. Drosophila re-zero their path integrator at the center of a fictive food patch. Curr Biol. 31 (20), 4534-4546.e5 (2021).
- Titova, A. V., et al. Displacement experiments provide evidence for path integration in Drosophila. J Exp Biol. 226 (12), jeb245289(2023).
- Stocker, R. F. The organization of the chemosensory system in Drosophila melanogaster: a review. Cell Tissue Res. 275 (1), 3-26 (1994).
- LeDue, E. E., Chen, Y. C., Jung, A. Y., Dahanukar, A., Gordon, M. D. Pharyngeal sense organs drive robust sugar consumption in Drosophila. Nat Commun. 6, 6667(2015).
- Gelperin, A. Abdominal sensory neurons providing negative feedback to the feeding behavior of the blowfly. Zeitschrift für vergleichende Physiologie. 72 (1), 17-31 (1971).
- Simpson, J. H., Looger, L. L. Functional imaging and optogenetics in Drosophila. Genetics. 208 (4), 1291-1309 (2018).
- DeAngelis, B. D., Zavatone-Veth, J. A., Gonzalez-Suarez, A. D., Clark, D. A. Spatiotemporally precise optogenetic activation of sensory neurons in freely walking Drosophila. Elife. 9, e54183(2020).
- Grover, D., Katsuki, T., Li, J., Dawkins, T. J., Greenspan, R. J. Imaging brain activity during complex social behaviors in Drosophila with Flyception2. Nat Commun. 11 (1), 623(2020).
重印与许可
