本文介绍了一种类组装体模型系统,用于模拟承重肌腱核心组织与含有在疾病和损伤中被激活的细胞群体的外部区室之间的肌腱细胞间相互作用。作为一个重要的应用实例,我们展示了如何利用该系统探究与疾病相关的外部内皮细胞的激活过程。
本文内容
摘要
摘要
肌腱通过将肌肉力量传递至骨骼来实现运动功能。其结构依赖于由胶原纤维和基质细胞群体组成的坚韧肌腱核心。这一承重核心由一种类似滑膜的组织层包裹、提供营养并实现修复,该组织层构成肌腱的外在区室。尽管肌腱具有如此精密的结构设计,肌腱损伤仍十分常见,目前临床治疗仍主要依赖物理治疗和手术。现有实验模型系统的局限性,阻碍了新型疾病修饰疗法以及预防复发的临床治疗方案的开发。
关于人体的体内研究仅限于在修复手术期间比较健康肌腱与终末期病变或断裂的组织,无法实现对潜在肌腱疾病进行纵向研究。体内动物模型在生理复杂性不透明、动物伦理负担以及使用相关的高昂经济成本方面也存在重要局限。此外,体内动物模型难以系统性地探究药物作用以及多细胞、多组织间的相互作用通路。更简单的体外模型系统同样未能满足需求,其中一个主要原因是未能充分模拟研究肌腱细胞及其功能所必需的三维力学加载环境。
本文介绍的新型3D模型系统通过利用小鼠尾腱核心外植体缓解了上述部分问题。重要的是,这些外植体可从单只小鼠获取大量样本,并保持3D结构 原位 细胞水平上的加载模式,并具有以下特征 体内类细胞外基质。本方案逐步介绍了如何利用负载肌源性内皮细胞、肌腱源性成纤维细胞和骨髓源性巨噬细胞的胶原水凝胶增强肌腱核心外植体,以替代外在肌腱区室中因疾病或损伤而激活的细胞群体。同时展示了如何对所得的肌腱类组装体施加力学刺激或特定的微环境刺激,以研究疾病和损伤过程中出现的多细胞间相互作用。
引言
肌腱通过将肌肉力量传递至骨骼以实现运动,在此过程中承受着人体内最极端的机械应力1,2,3。由于社会老龄化、肥胖率上升以及高强度体育活动日益流行,发达国家中肌腱疾病和损伤的发生率预计将持续上升4,5,6。目前可用的模型系统存在局限性,这阻碍了新型循证且可改变疾病进程的治疗方案的开发1,7,8。
理想情况下,疾病与损伤修复模型应能够用于研究目标器官如何处理一组明确的输入参数(模拟疾病诱因), 表1)转化为可测量的输出参数(代表疾病的特征性标志, 表2)的同时控制混杂因素。利用此类模型系统的研究将能够识别疾病和损伤修复背后的(病理)生理过程,并获得可用于预防或减轻临床疾病与损伤特征的知识。将这一原理应用于肌腱研究时,一个有效的模型系统应能重现肌腱中的核心部分 体内 肌腱对疾病和损伤的反应,其特征包括:微损伤、炎症、新生血管形成、细胞增多、基质 turnover 加速以及结构去区室化9,10,11,12,13,14,15以这些特征为基础,可以推断出一个成功的肌腱疾病与损伤修复模型系统应满足以下要求。
机械性超负荷被认为是肌腱损伤和疾病发生的核心因素,因此常被用作实验手段以产生微损伤16。因此,可控的机械负荷能力是构建肌腱疾病与损伤修复模型的首要前提。理想的模型系统应能实现三种主要负荷模式:单次拉伸致损加载、疲劳加载和卸载8,17,18。在机械形变过程中,组织驻留细胞会经历复杂的力学环境,包括张力、剪切力(由细胞周围胶原纤维滑动引起)以及在卸载期间或附着点附近产生的压缩力19,20。模型系统应尽可能真实地重现这些复杂的加载模式。
引入基质微损伤的另一种方法是利用生化应激因子,模拟肌腱疾病和损伤的全身性易感因素,例如(前)炎性细胞因子、氧化应激或高葡萄糖浓度21,22,23。因此,可控的微环境对于构建肌腱疾病与损伤修复模型系统具有优势。
能够重现炎症、新生血管形成和细胞过度增殖的模型系统通常需要选择性地存在驱动这些过程的细胞群体24。对于炎症过程,这些细胞群体包括中性粒细胞、T细胞和巨噬细胞;而研究新生血管形成则需要内皮细胞和壁细胞25,26,27,28,29。肌腱成纤维细胞不仅在肌腱修复中起关键作用,而且作为具有增殖和迁移能力的细胞,也部分导致了肌腱疾病中所观察到的局部细胞过度增殖30,31,32,33,34,35,36。
除了驻留细胞群体的变化外,肌腱疾病和损伤也会改变肌腱基质的组成7,37,38,39,40。为了呈现正确的疾病相关微环境信号,模型系统应能够整合与特定疾病或损伤阶段相匹配的细胞外基质成分,例如,通过实现胶原蛋白-1、胶原蛋白-3和细胞纤连蛋白的适当比例组合41。
健康肌腱被区分为肌腱核心和外部结构(即内腱膜、外腱膜和腱周膜),这种区室化对其功能至关重要,而在病变或受损肌腱中,这种结构常受到破坏1,42,43,44,45,46,47。因此,将三维肌腱区室化结构整合到肌腱模型系统中,不仅有助于更真实地模拟去区室化和再区室化过程,还有助于建立细胞因子和营养物质正确的时空浓度梯度48,49。
最后,模块化是模型系统的另一项核心优势,它使研究人员能够在所研究的过程中,整合并调控前述各种应激因素之间的相对贡献及其相互作用8,17。
除了选择最佳的输入方式外,一个重要的步骤是能够测量、观察并追踪输出结果的变化。模型系统的力学性能(即 toe 区长度、线弹性模量、最大拉伸应变、最大拉伸应力、疲劳强度和应力松弛)在此至关重要,因为它们表征了肌腱的主要功能50,51,52。为了将这些功能变化与组织层面的变化相关联,必须采用能够检测(胶原)结构基质损伤,并追踪与疾病及修复相关细胞群体增殖和募集的方法30,53,54,55,56,57,58,59,60。
为了研究新出现的细胞间及细胞与基质间的相互作用,应能够分离或标记足量的蛋白质以进行定量分析(例如ELISA、蛋白质组学、免疫组织化学、流式细胞术)14,21,61,62。还应能够进行群体特异性或至少区室特异性的基因表达分析(例如荧光激活细胞分选[FACS]、单细胞/群体RNA测序以及实时定量聚合酶链式反应[RT-qPCR])21,24,27,63。该模型系统应允许在同一样本及多个样本上快速测量上述尽可能多的输出参数,以便开展高通量研究。
在目前可用于研究人类肌腱疾病及损伤修复的模型系统中,人体本身无疑是最具代表性的模型。然而,它也最不适合进行实验性干预。尽管急性肌腱损伤患者在临床研究中较为常见,但早期肌腱病(最常见的肌腱疾病)患者大多无明显症状,通常在出现更严重的病变之前难以被临床发现14,64,65。这使得研究人员难以确定肌腱稳态失衡的关键时刻及其背后的机制16,66,67,68,69。此外,从健康肌腱中获取活检样本存在伦理难题,因其可能导致持续性损伤。前交叉韧带重建手术中获取的腘绳肌腱残余组织常被用作健康对照,但其在功能、力学特性、细胞群体以及基质组成方面,与常受肌腱疾病和损伤影响的肩袖肌腱、跟腱和髌腱存在差异70,71,72,73。
体内动物模型虽然更易于获取和操作,但其使用会给动物带来显著的伦理负担,并给研究人员带来较高的经济成本。此外,大多数常用的模式动物要么不会自发产生腱病样病变(例如大鼠、小鼠、兔),要么缺乏必要的引物和基因修饰品系,无法追踪参与多细胞通讯的信号通路(例如马、兔)。
简单的二维 体外 模型系统位于复杂性与可操作性光谱的另一端,能够更好地在更可控的触发条件下,对特定的细胞间通讯通路进行可控且高效的时间进程研究8,74然而,这些简化系统通常无法重现肌腱功能所依赖的多维力学负荷(即张力、压缩力和剪切力)。此外,组织培养塑料过高的刚度往往会掩盖通过涂层所提供的、旨在模拟特定疾病状态的基质信号75,76.
为克服这一缺陷,人们已开发出日益复杂的组织工程三维模型系统,以提供一种可加载的基质,其成分至少可在一定程度上模拟目标疾病状态77,78,79然而,这些系统不仅难以精确模拟复杂的 体内 细胞外基质成分和细胞加载模式,但通常缺乏长期负载能力以及用于研究跨区室信号通路所需的区室界面,这些信号通路协调肌腱疾病与损伤修复过程48,49,80.
离体 肌腱外植体模型系统具有内置的显著优势 体内-样基质成分,包含细胞周围微环境、跨区室屏障,以及时空性的细胞因子/营养梯度,在拉伸时可重现复杂的负荷模式8由于尺寸依赖性的营养扩散限制,来自动物体型较大动物模型(如马)的组织外植体难以长期存活,从而为肌腱疾病及损伤修复的长期研究带来困难81,82,83与此同时,来自小鼠物种的较小外植体(例如跟腱、髌腱)在可重复夹持和机械加载方面具有挑战性。其尺寸也限制了可用于细胞、蛋白和基因水平检测的材料量,除非合并样本,但这会降低通量。从这一角度来看,小鼠尾腱束具有实现肌腱疾病与损伤修复高通量研究的潜力,因为单只小鼠即可提供大量此类组织,且其保留了复杂的 体内 细胞周围基质成分,并重现细胞受力模式。然而,在提取过程中,它们会失去大部分外部结构以及其中包含的血管、免疫和成纤维细胞群体,而这些成分目前被认为在肌腱疾病的发生与修复过程中起驱动作用8,18.
为了弥合这一差距,已开发出一种模型系统,该系统结合了小鼠尾腱来源的芯状组织外植体与基于三维水凝胶的模型系统的优势。该模型系统由包裹尾腱外植体的含细胞(I型胶原)水凝胶构成84,85。本文详细提供了该系统的必要制备步骤,并介绍了将芯状外植体(内在区室)与含内皮细胞的I型胶原水凝胶(外在区室)共培养后可获得的有用检测指标。
方案
本文所述所有方法均经相关主管部门批准(苏黎世州许可证编号 ZH104-18 和 ZH058-21)。图1展示了总体流程。
1. 从12至15周龄小鼠(即B6/J-Rj)中分离肌腱类器官组分
- 通过 CO2 气体诱导窒息法处死小鼠。为最大化产量,每次处理的小鼠数量不超过 3 只,并在处死后立即进行细胞分离。
- 通过双侧诱导气胸确认动物死亡。
- 用 80% 乙醇对小鼠皮肤进行消毒,并将小鼠转移至无菌生物安全柜中。
- 分离尾腱核心外植体。
- 使用手术刀(No. 21)在尾部基部切断,将尾部从小鼠身上分离。
- 从尾尖开始,用镊子夹住尾部并轻轻晃动以撕裂皮肤,然后缓慢将镊子向外拉,以暴露腱核心外植体。
- 将腱核心外植体放入标准培养基(DMEM/F12 + 10% FBS + 1% 青霉素/链霉素 + 1% 两性霉素 + 1% 非必需氨基酸)中,并使用新的手术刀刀片(No. 21)将其与剥离的尾部组织分离开。
- 重复步骤 1.4.2 和 1.4.3,直至处理完整个尾部,且腱外植体长度短于 25 mm。
- 使用新的手术刀刀片(No. 21)将分离出的核心外植体切成 25 mm 长的片段。
- 使用连接数字 C 型接口相机和图像分析软件的光学显微镜测量核心外植体的平均直径。
- 在软件界面右侧点击选择线测量工具。
- 在三个不同位置测量外植体直径,并计算其平均值。
- 为便于后续夹持和力学测试,仅保留平均直径大于 100 µm 的核心外植体。
- 卸载状态结合标准培养条件(37 °C,20% O2,血清补充)会在分离后 6 小时内改变基因表达,并在 7 天内导致组织降解21。为从准稳态开始实验,应在腱核心分离后立即构建腱类器官并启动实验。
- 根据实验设计,可能需要使用失活的腱核心外植体作为对照组。为使腱核心外植体失活,使用镊子将其置于盛有液氮的小容器中冷冻 5 秒,随后在室温(RT)下解冻 5 秒。重复此冻融循环 3 次,然后进入步骤 4("夹持核心外植体")。
警告:液氮可导致冻伤、窒息,并使多种普通材料变脆。仅可使用专为低温液体设计的容器,并穿戴防护服(如面罩、合适的手套、封闭式鞋履)。
- 分离腱成纤维细胞。
- 使用手术刀(No. 21)在小鼠足部中央做横向切口,从切口两端沿后肢两侧垂直向上切割至髋部。
- 用镊子固定足部切下的皮肤瓣,剥离覆盖小腿肌肉的皮肤。若需从同一只小鼠中分离内皮细胞,则应完全去除所有皮肤。
- 使用新的手术刀刀片(No. 21)将跟腱从跟骨上分离。用镊子固定跟腱游离端,并将其另一端从腓肠肌中分离。
- 将跟腱在 PBS 中清洗一次,使用手术刀(No. 21)去除所有残留的肌肉组织,仅保留白色腱组织。若需从同一只小鼠中分离内皮细胞,则将跟腱保留在 PBS 中,并先继续进行步骤 1.6。
- 将一只动物的跟腱收集至含 10 mL 腱消化液(DMEM/F12 + 1% 青霉素/链霉素 + 1% 两性霉素 + 2 mg/mL I 型胶原酶)的 15 mL 塑料管中,在 37 °C 下以低速轨道摇床(15 rpm)缓慢恒定振荡消化 6–8 小时。
- 将消化后的腱溶液在室温下以 500 x g 离心 5 分钟,吸除上清液,沉淀物重悬于 8 mL 标准培养基(DMEM/F12 + 10% FBS + 1% 青霉素/链霉素 + 1% 两性霉素 + 1% 非必需氨基酸)中,置于 T25 培养瓶内,在标准培养条件下(37 °C,20% O2)培养 7 天,期间不更换培养基,之后每周更换一次培养基。
- 当细胞融合度达到 80% 时,按 1:6 比例传代至 T150 培养瓶。在第 2 代时,将细胞以每支 1.5 mL 冻存管分装两管,每管含 2 mL 无菌过滤的冻存液(70% DMEM/F12 + 20% FBS + 10% DMSO),置于 -80 °C 保存以备后续使用。使用胰蛋白酶从组织培养塑料表面消化细胞。
- 分离肌肉来源的内皮细胞。
- 若未从同一只小鼠中分离腱成纤维细胞,则从步骤 1.5.1 和 1.5.2 开始。
- 使用剪刀在髋关节处切断后肢,将其与身体分离。
- 将后肢在冷 PBS(约 4 °C)中清洗一次,使用手术刀(No. 21)去除股四头肌、趾长伸肌、比目鱼肌和腓肠肌,并将肌肉组织置于冰上的培养皿中。
- 使用新的手术刀刀片(No. 21)在保持培养皿冰浴的条件下,将肌肉组织切成小于 1 mm3 的小块。
- 将双侧后肢的肌肉组织收集至含 12.5 mL 肌肉消化液(PBS + 2 mg/mL IV 型胶原酶 + 2 mg/mL dispase II + 2 mM CaCl2)的 50 mL 塑料管中。
- 将塑料管置于 37 °C 水浴中 10 分钟,剧烈震荡后再次放入水浴 10 分钟,重复此过程直至溶液均匀,仅剩(白色)腱和筋膜组织(约 4 次 × 10 分钟)。在此期间可继续进行腱成纤维细胞或巨噬细胞的分离。
- 向塑料管中加入 12.5 mL 冷 PBS + 10% FBS 以终止消化反应。
- 使用配备 50 mL 移液器的电动移液器从塑料管中吸取悬液。在塑料管口安装 400 µm 细胞筛,过滤去除碎片,再用 100 µm 细胞筛重复过滤一次。
- 将过滤后的悬液在室温下以 400 x g 离心 5 分钟,沉淀物重悬于 10 mL 冷 PBS + 10% FBS 中,再次离心。
- 将细胞重悬于 8 mL 内皮细胞培养基(DMEM/F12 与 endopan 3 套件等体积混合 + 10 U/mL 肝素 + 20% FBS + 1% 青霉素/链霉素 + 1% 两性霉素 + 30 mg/mL 内皮细胞生长补充剂)中,并添加嘌呤霉素(4 mg/mL)用于细胞群体筛选。
- 将一只小鼠来源的细胞接种至一个预先包被 2 mL 无菌 0.2% 明胶溶液(37 °C 孵育 2 小时,去除多余液体后室温过夜干燥)的 T25 培养瓶中。培养瓶应在分离前一天准备。
- 在标准培养条件(37 °C,20% O2)下培养 24 小时后,移除含嘌呤霉素的培养基,用 PBS 清洗细胞一次,然后加入 8 mL 内皮细胞培养基继续培养。
- 当细胞融合度达到 80% 时,按 1:5 比例传代至明胶包被的培养瓶中,实验使用不超过第 2 代(P2)的细胞。使用非胰蛋白酶类细胞解离液(材料表)从组织培养塑料表面分离细胞,且不得冻存。
- 分离骨髓来源的巨噬细胞。
- 若未从同一只小鼠中分离腱成纤维细胞或内皮细胞,则先执行步骤 1.5.1、1.5.2、1.6.2 和 1.6.3。
- 去除皮肤、腱和肌肉组织后,将剩余骨骼(股骨和胫骨)在冷 PBS(约 4 °C)中清洗一次。
- 将骨骼置于新鲜冷 PBS(约 4 °C)中,使用手术刀(No. 21)逐步切除骨骺,直至暴露骨髓(在骨骼两端呈现为红色小点)。
- 在注射器上安装 0.4 mm × 25 mm(G27)注射针头,并吸入 10 mL 巨噬细胞培养基(DMEM/F12 + 10% FBS + 1% 青霉素/链霉素 + 1% 两性霉素 + 1% 非必需氨基酸)。
- 依次将骨骼置于 50 mL 塑料管上方,将注射针头插入骨骼顶端暴露的骨髓约 1 mm 深,通过排空注射器冲洗骨髓。冲洗出的骨髓在培养基中呈红色管状结构。
- 使用 1 mL 移液器反复轻柔吹打,使骨髓组织充分分散。使用配备 50 mL 移液器的电动移液器将细胞悬液通过 100 µm 细胞筛过滤回 50 mL 塑料管中,在室温下以 350 x g 离心 5 分钟。
- 吸除上清液,沉淀物重悬于 10 mL 红细胞(RBC)裂解缓冲液中,再次在室温下以 350 x g 离心 10 分钟。
- 将沉淀物重悬于 5 mL 巨噬细胞培养基(DMEM/F12 + 10% FBS + 1% 青霉素/链霉素 + 1% 两性霉素 + 1% 非必需氨基酸)中,接种至未包被的 100 mm 直径培养皿中(每皿 5–8 × 10⁶ 个细胞)。
- 4 小时后,向不含 m-CSF 的细胞培养基中加入 5 mL 含 40 ng/mL 巨噬细胞集落刺激因子(m-CSF)的培养基(1:1 混合),使 m-CSF 的终浓度为 20 ng/mL。
- 6 天后,将细胞用于实验或冻存以备后续使用。使用非胰蛋白酶类细胞解离液(材料表)从组织培养塑料表面分离细胞。
注意:细胞分离后不再增殖。本方法所述的细胞分离技术也适用于超出指定年龄范围的小鼠和大鼠。
- 为通过流式细胞术验证分离细胞群体的表型,请继续进行步骤 6.3.4。
2. 从Wistar或Sprague-Dawley大鼠中分离胶原蛋白
- 按照 elsewhere86 中详细描述的分离方案进行操作。该方法也可用于小鼠,但产量要低得多。
- 使用羟脯氨酸检测法测定所得溶液的浓度,通过 SDS-PAGE 评估其纯度,并将溶液在 4 °C 保存,直至实验使用。
3. 培养系统组分的制备
- 打印夹具支架、安装座和腔室模具。
- 将附带的 .stl 文件(补充文件 1)加载到切片软件中,用于夹具支架、安装座和腔室模具。根据需要调整对象数量时,使用鼠标点选并复制粘贴以增加对象数量。
- 点击 导出 G 代码(Ctrl-R)生成 G 代码,然后导出该文件(Ctrl-G)。
- 将 G 代码载入 3D 打印机。
- 打印过程中使用无色、生物相容性耗材(例如聚乳酸)。
- 使用丝锥在夹具支架上用于安装螺丝的孔中攻出 3 mm 的螺纹(补充文件 2 和 补充文件 3,孔 1 和孔 3)。
- 将不锈钢定位销插入夹具支架背面的孔中(补充文件 2 和 补充文件 3,孔 4)。
- 使用前至少用紫外线照射夹具支架和安装座 1 小时进行灭菌。3D 打印的夹具支架不得重复使用。
- 可选方案:可使用附带的设计图(补充文件 2、补充文件 3 和补充文件 4)采用聚醚酰亚胺(PEI)加工夹具支架和安装座,成本较高,但可实现更佳的灭菌方式(例如高压灭菌)并可重复使用。
- 使用 3D 打印的模具浇铸腔室。
- 将硅胶注入腔室模具中。
- 在真空箱(90 mbar)中对硅胶脱气 30 分钟。
- 根据模具所用耗材的耐热性,将溶液在室温下静置过夜,或在 70 °C 的加热板上加热 1 小时,使其聚合。
- 小心地将聚合后的腔室从模具中取出,并使用手术刀(No. 21)切除多余的硅胶。
- 可选:若类组装体及其周围的腔室需承受机械载荷,可用不锈钢制成的空心管加固硅胶腔室中的孔。
- 根据附带的设计图(补充文件 5)使用不锈钢加工金属夹具。
- 每次使用前,清洗不锈钢夹具、聚醚酰亚胺夹具支架、螺丝和硅胶腔室。
- 在 80% 乙醇(EtOH)和 20% 反渗透水(ROW)中进行超声清洗 10 分钟。
- 在 50% EtOH 和 50% 异丙醇中进行超声清洗 10 分钟。
- 用 ROW 冲洗 3 次。
- 在 0.5% 碱性清洗浓缩液(例如,3 mL 加入 600 mL ROW)中进行超声清洗 10 分钟。
- 在 0.5% 碱性清洗浓缩液中进行超声清洗 10 分钟。
- 在 0.5% 碱性清洗浓缩液中震荡浸泡 1 小时 50 分钟。
- 用 ROW 冲洗 3 次。
- 在 ROW 中进行超声清洗 10 分钟。
- 将组件晾干后进行高压灭菌。
4. 夹紧核心外植体
- 将配对的夹具架与各自的金属夹具(每个夹具架配一个金属夹具)放入安装位。
- 将湿润的高压灭菌纸片(4 mm × 25 mm)置于金属夹具上方,然后用手术刀(No. 21)沿夹具内缘切割纸片。另取纸片裁切出2个更小的纸片(4 mm × 1.5 mm),并保持湿润备用。
- 使用尖头镊子将8个核心外植体放置在金属夹具之间的纸片上,使其两端落在金属夹具上。
- 用准备好的小纸片(4 mm × 1.5 mm)覆盖核心外植体的两端,然后将金属夹具压在上面。使用螺丝刀和小螺丝(M3 × 6 mm)将核心外植体固定在金属夹具与夹具架之间。
- 小心地将夹好的核心外植体转移至硅胶培养腔中,并向每个腔内加入2 mL标准细胞培养基(DMEM/F12 + 10% FBS + 1%青霉素/链霉素 + 1%两性霉素 + 1%非必需氨基酸)。
- 可选步骤:若需对assembloids或周围腔室施加机械负荷,可使用额外的螺丝(M3 × 16 mm)将其固定在3号孔位(补充文件2和补充文件3,3号孔)。
5. 胶原蛋白水凝胶的制备与浇铸
- 使用细胞脱离液将靶细胞从组织培养塑料表面脱离,于室温下以 400 × g 离心 5 分钟,然后重悬于 1 mL 标准培养基中。
- 制备一个类组装体需要以下组分:10 µL PBS(20×)、1.28 µL 1 M NaOH(125×)、8.72 µL 双蒸水(ddH2O,23×)、80 µL 胶原蛋白-1(终浓度为 2.5× 或 1.6 mg/mL)以及 100 µL(2×)标准培养基(用于核心 // 无细胞类组装体)或细胞悬液。将这些组分分别配制成两种独立的溶液,并仅在浇铸前立即混合。
- 交联溶液:将 PBS、NaOH、ddH2O 以及最多 12 个类组装体(+10% 安全余量)所需的细胞悬液混合,制成交联溶液,置于 15 mL 塑料管中并置于冰上保存。调整细胞悬液浓度,使两种溶液混合后达到以下终浓度:250,000 个细胞/mL 肌腱成纤维细胞、500,000 个细胞/mL 肌源性内皮细胞,或 370,000 个细胞/mL 骨髓来源巨噬细胞。
- 胶原蛋白-1 溶液:将最多 12 个类组装体(+10% 安全余量)所需的胶原蛋白-1 溶液加入另一支 15 mL 塑料管中,并置于冰上保存。
- 当交联溶液和胶原蛋白-1 溶液均已在冰上准备就绪后,吸除含有夹持核心外植体的培养腔室中的细胞培养基。
- 使用 1000 µL 移液器将胶原蛋白-1 溶液加入交联溶液中,并通过快速吹打混合两种溶液,避免产生气泡。将混合溶液以 200 µL 覆盖每个肌腱核心外植体,移液至硅胶腔室提供的凹槽中。
- 将水凝胶在 37 °C 下聚合 50 分钟。
- 通过将培养基移液至腔室角落,小心地向硅胶培养腔室中加入 1.5 mL 相应的共培养基。
- 对于核心 // 成纤维细胞共培养,加入 DMEM/F12、10% FBS、1% 非必需氨基酸、1% 青霉素/链霉素、1% 两性霉素、200 µM L-抗坏血酸、20 ng/mL 巨噬细胞集落刺激因子。
- 对于核心 // 巨噬细胞共培养,加入 DMEM/F12、10% FBS、1% 非必需氨基酸、1% 青霉素/链霉素、1% 两性霉素、200 µM L-抗坏血酸、20 ng/mL 巨噬细胞集落刺激因子。
- 对于核心 // 内皮细胞共培养,加入 DMEM/F12 与 endopan 3 试剂盒组分的 1:1 混合液,并添加 10 U/mL 肝素、20% FBS、1% 青霉素/链霉素、1% 两性霉素和 30 mg/mL 内皮细胞生长补充剂。
- 根据假设条件,在适当的培养条件下培养类组装体。例如,为模拟类似损伤的微环境,可在 37 °C 和 20% O2 条件下进行培养。每周更换两次培养基。为防止污染,在将腔室放入培养箱前,应将其置于大型培养皿或无菌盒中。
注意:培养时间取决于具体研究假设和共培养设置。例如,在类似损伤的微环境中,核心 // 成纤维细胞类组装体在约 3 周后会变得机械不稳定。
6. 可用的检测方法
- 进行荧光显微镜观察,包括细胞活力和形态学检测。
- 通常情况下,可将组装体作为整体样本进行成像。操作时,用剪刀在靠近夹具处剪断,将组装体从夹具上取下,并转移至12孔板中。
- 用PBS洗涤组装体一次。
- 若进行活力分析,每例组装体加入100 µL含4 × 10⁻⁶ M乙啶同二聚体(EthD-1)的PBS溶液,在37 °C避光孵育20分钟。
- 用PBS洗涤组装体3次,随后每例加入500 µL 4%甲醛,在室温下固定20分钟。
警告:4%甲醛具有致敏性、致癌性和致突变性,对生殖系统有毒性,可能导致发育毒性(生殖毒性)或器官损伤。操作时应穿戴防护服、手套、眼部防护装备以及口罩或其他呼吸防护装置。 - 用PBS洗涤组装体3次,然后继续选择合适的染色方案。已有文献报道过一系列染色方法84,85。
注意:避免使用发射波长接近胶原蛋白自发荧光(约480 nm)的荧光染料。
- 根据制造商说明书,进行特定区室的RNA分离,用于RT-qPCR或全基因组RNA测序。
- 用剪刀将组装体从夹具上取下。
- 可选:使用镊子将核心外植体与外部胶原水凝胶区室分离。
- 将20–24个20 mm的核心外植体或2个含细胞的胶原水凝胶合并,以获得足量RNA。
- 加入1 mL冷Trizol,并通过机械破碎(如金属珠或低温研磨)破坏合并后的核心外植体或胶原水凝胶的细胞外基质。
警告:具有口服、皮肤和吸入毒性,可引起皮肤和眼睛刺激。仅可在佩戴手套并在化学安全柜内操作。 - 按照先前描述的方法或制造商说明书,使用标准RNA提取试剂盒从细胞裂解液中继续进行RNA提取84,85。
- 区室特异性流式细胞术。
- 用剪刀将组装体从夹具上取下。
- 可选:使用镊子将核心外植体与外部胶原水凝胶区室分离。
- 在1 mL PBS中加入胶原酶I(3 mg/mL)和分散酶II(4 mg/mL),于37 °C持续振荡消化4小时。
- 在室温下以500 × g离心5分钟,吸弃上清液。
- 将沉淀重悬于100 µL FACS缓冲液(含1% FBS的PBS)中,并加入所选荧光标记抗体。已有文献报道过一系列可用的荧光标记抗体84,85。
- 在室温下孵育染色溶液30分钟。
- 加入1.4 mL FACS缓冲液稀释染色溶液,在室温下以500 × g离心5分钟。
- 将沉淀重悬于350 µL FACS缓冲液中,通过带100 µm尼龙滤网帽过滤后,按照制造商说明书使用所选流式细胞仪进行分析。
- 分析上清液。
- 在收集上清液前3天,更换为无血清共培养基。
- 立即或延迟使用酶联免疫吸附测定(ELISA)和Meso Scale Discovery(MSD)检测试剂盒,对浓缩且未稀释的上清液进行检测。如需延迟分析,将上清液储存于-80 °C的1.5 mL塑料管中。
- 评估组装体的机械性能。
- 使用自制拉伸装置施加机械力并测量机械性能22。不锈钢定位销和不锈钢螺钉使夹具也可连接至其他拉伸装置。
- 由于组装体的机械性能主要由嵌入的核心外植体决定18,建议在将核心外植体包埋入水凝胶前,先测量其机械性能,以降低测量过程中破坏新制备水凝胶的风险。
结果
组分分离(图1 和 图2)
在将核心外植体和细胞群体用于类组装体共培养之前,需在显微镜下检查这些组分(图1)。核心外植体应具有均匀的直径(100–200 µm),且无明显扭曲或皱褶。内皮细胞应呈细长形态,并相互接触;若分离初始得率过低导致接种密度过低,则细胞无法呈现此形态。在此情况下,内皮细胞将呈现更接近圆形的形态,伴有细胞骨架突起,且增殖速度明显减慢。在培养7–10天后按1:5比例传代。从跟腱分离的肌腱成纤维细胞在传代1–2次(每次10–14天)后,相较于人源成纤维细胞,形态更趋圆形,传代比例为1:6。巨噬细胞的体积明显小于成纤维细胞或内皮细胞,且分离后不再增殖。根据批次不同,其形态可从锥形到圆形不等。
通过流式细胞术验证了细胞组分的表型。使用偶联的CD31抗体作为内皮细胞的标记物(图2A)。以未染色对照样本(灰色)设定荧光阈值,第1代(P1)细胞中有90.1%、第2代(P2)细胞中有48.7%被鉴定为CD31阳性。采用一种经基因修饰的小鼠品系,该品系共表达肌腱成纤维细胞标志物Scleraxis和绿色荧光蛋白(ScxGFP),并结合使用偶联的CD146抗体,用于表征肌腱成纤维细胞(图2B)35,60。经一次传代(P1)后,37.3%的成纤维细胞为ScxGFP+CD146-,0.2%为ScxGFP+CD146+,4.3%为ScxGFP-CD146+,58%为ScxGFP-CD146-。经两次传代(P2)后,ScxGFP+CD146-细胞的比例下降至27.6%,ScxGFP+CD146+细胞的比例上升至6.9%,ScxGFP-CD146+细胞的比例上升至10.6%,而ScxGFP-CD146-细胞的比例下降至54.9%。为鉴定和表征巨噬细胞,联合使用F4/80抗体、CD86抗体和CD206抗体(图2C)。分离并培养后,96.4%的骨髓来源细胞为F4/80阳性。在这些F4/80阳性细胞中,8.6%为CD206+CD86-,23.6%为CD206+CD86+,28.3%为CD206-CD86+,39.4%为CD206-CD86-。胶原交联速度可能因批次不同而有所差异,应在开始实验前进行测试。
类组装体外观(图3)
在类病变培养条件下(36 °C,20% O2),核心外植体保持机械延展性,外观未发生改变,并且在至少21天内仍可在视觉上与周围水凝胶区分并可进行物理分离(图3A、B)。随着时间推移,周围水凝胶逐渐发生压缩,其压缩速度取决于接种于其中的细胞群体。来源于跟腱的成纤维细胞对其周围水凝胶的收缩速度最快;当水凝胶围绕核心外植体成模时,其收缩呈径向;而无核心外植体时,则在各个方向均发生收缩(图3B、C)。最初,置于核心外植体周围的无细胞水凝胶也出现压缩现象,这可能是由核心外植体迁移出的细胞所致,表明存在动态的跨区室界面。由于未嵌入核心外植体的无细胞水凝胶未出现可检测到的压缩,因此由水分流失引起的收缩效应可忽略不计(图3B 和 补充文件6)。
因此,缺乏水凝胶收缩可被用于检测类组装体构建过程中的错误(例如细胞浓度过低),并在继续使用更昂贵的检测方法之前进行检查。在建立该方法的过程中,常见的导致细胞浓度降低的错误包括:由于外层水凝胶中的细胞在相对严苛的交联溶液(高pH、低温)中放置时间过长而导致细胞死亡,以及核心外植体干燥,原因可能是吸除培养基与注射水凝胶之间的时间间隔过长,或因夹持核心外植体的位置过高而无法将其完全包埋于胶原中。
共聚焦荧光显微镜:活力与形态学分析(图3)
从夹具上用剪刀取下后(图3B),类组装体可整体进行固定、染色,并通过共聚焦显微镜成像,无需切片。在此,核心//内皮细胞、核心//巨噬细胞以及核心//成纤维细胞类组装体使用DAPI(NucBlue)和碘化乙啶同型二聚体(EthD-1)染色以分析细胞活力,使用DAPI和F-肌动蛋白染色以分析三维胶原水凝胶中的细胞形态与铺展情况(图3D)。核心//内皮细胞类组装体的活力(图3E)经量化后发现,相较于先前报道的核心//巨噬细胞和核心//成纤维细胞类组装体84,组装后总体活力较低。然而,在类组装体培养期间,其活力在至少第7天前保持稳定。
机械诱导微损伤及力学性能测量(图4)
固定在夹具支架上的螺钉和销钉可用于将夹持的类组装体固定到单轴拉伸装置上。此处使用的定制拉伸装置配备了一个10 N的负荷传感器,此前已有文献描述(图4A)22。所有样品在正式测量前均经过五次1%应变的预加载循环处理。
记录核心外植体或类组装体的完整应力-应变曲线(图4B)可量化线性弹性模量(α)、最大应力(β)和最大应变(у)。然而,该操作会不可逆地损伤核心外植体或类组装体,从而无法对同一样本纵向评估其最大应力(β)和最大应变(у)的变化(图4B)。因此,本研究采用线性弹性模量作为衡量样本抵抗外力能力的指标,因为该测量仅需将样本拉伸至2%应变,而先前研究已证实此程度的拉伸不会导致线性弹性模量发生永久性降低18。具体而言,核心-内皮细胞类组装体被施加夹持处理至2%应变(约在线性弹性区域末端)或6%应变(约在最大应变水平)。通过测量处理前后线性弹性模量的变化来评估所引起的微损伤(图4C)。
与先前利用单层培养的芯部外植体所进行的实验一致,在拟稳态生态位条件下培养时,芯部//内皮细胞类组装体至少在14天内保持其线性弹性模量29 °C,3% O₂2)并暴露于不超过2%的应变18,21关于机械基础刺激,通过夹具施加的静态拉伸似乎足以模拟肌腱核心单元所经历的天然应变水平 体内 以防止通常与基质卸载相关的分解代谢过程87事实上,核心-内皮细胞组装体在承受6%应变时,其线性弹性模量的进行性且具有统计学意义的下降,可归因于机械诱导的基质微损伤所导致的基质卸载。
进行这些实验时,重要的是防止类组装体干燥。此处使用经高压灭菌并润湿的纸张包裹,但其他方法也可能可行,具体取决于其与所用拉伸装置的兼容性。由于金属夹具与核心外植体之间的摩擦力有限,因此在夹紧过程中应在金属与核心外植体之间添加小块纸片,以防止滑脱,并密切监测拉伸过程,及时发现并剔除发生滑脱的核心外植体和类组装体。
特定区室转录组与特定类器官分泌组分析(图5 和 图6)
在本研究展示的第一组核心单培养实验中,评估了组织块分离后核心基因表达的稳定性,以区分分离过程本身与实验处理效应(图5A)。尽管需要更高的重复次数才能得出精确结论,但在模拟病变微环境条件(37 °C,20% O2)下培养时,新鲜分离的核心组织块在分离后数小时内即表现出 Vegfa 和 Mmps 表达的显著上升。
新生血管形成是肌腱疾病与修复过程中的一个核心特征,部分可能由肌腱核心在缺氧条件下分泌的促血管生成因子(例如血管内皮生长因子,Vegfa)激活内皮细胞所驱动88。通过研究这一潜在交互作用的第一步(图5B),发现在低氧张力(3% O2)下单培养的组织外植体中,Vegfa 和缺氧标志物碳酸酐酶9(Ca9)的表达水平均较在高氧张力(20% O2)下单培养的外植体显著升高。与此同时,较低的氧张力似乎并未引起肌腱成纤维细胞标志物如Scleraxis(Scx)和胶原蛋白-1(Col1a1)表达水平的变化。综上,这些结果表明在缺氧微环境中,肌腱核心驻留细胞可能是促血管生成信号的潜在贡献者。
接下来,在高氧条件(20% O₂)下,通过核心-内皮细胞类器官共培养体系评估促血管生成核心信号通路对内皮细胞的激活作用。2)和低(3% O₂)2) 氧张力。幸运的是,类组装体的模块化结构允许在培养后通过将核心外植体与外源胶原蛋白水凝胶物理分离,进而进行区室特异性的转录组分析图6A)。在核心外植体(图6D), Vegfa 表达再次被证实会在低氧张力下增加,尽管对其他缺氧标志物的影响如 Fgf2 较不明确,需要更高的重复次数以得出精确结论。此外,促炎性标志物(如 Tnf-α 以及用于降解细胞外基质的标记物,例如 Mmp3 在低氧张力下,核心区域的含量降低。在最初接种了内皮细胞的外源性水凝胶中(图6E),存活的核心外植体(aC)的存在减少了 Vegfa 低氧张力下表达,但在高氧张力下不表达。此外,在低氧张力下,存在失活的(dC)核心外植体并未降低 Vegfa 表达也受到低氧张力的影响。 Tnf-α 在高氧张力下,活体核心外植体周围的外源性水凝胶中表达增加,而在aC/dC周围则与之相当。 Fgf2 在所有条件下,表达均较在高氧张力下围绕失活核心外植体培养的外源性内皮细胞负载水凝胶有所降低,而在低氧张力下降低最为显著。 Mmp3 表达水平在高氧张力下存活的核心外植体周围最高,而在低氧张力下失活的核心外植体周围最低。总体而言,共培养的内皮细胞似乎对具有启动细胞间通讯能力的活性核心外植体以及氧浓度变化均有响应。更全面的转录组分析将有助于阐明二者各自的贡献。
类器官系统的模块化特性使得含有荧光报告基因的遗传修饰细胞能够被整合。在此,将从Pdgfb-iCreER mG小鼠中分离的内皮细胞接种至水凝胶区室中89。这些细胞共同表达内皮细胞标志物血小板源性生长因子亚基b(Pdgfb)以及增强型绿色荧光蛋白(EGFP),从而使表达Pdgfb的内皮细胞在显微镜下呈现绿色(图6C)。通过该方法,证实表达Pdgfb的内皮细胞在培养条件下(37 °C)可维持存在至少7天,且其存在似乎不受氧张力影响(20% O2 与 3% O2 相比)。
为了分析类组装体(assembloids)的分泌组,分别在吸取并冻存上清液前3天,将核心组织//无细胞、核心组织//成纤维细胞、核心组织//巨噬细胞或核心组织//内皮细胞共培养所用的培养基更换为无血清培养基,从而使上清液中富含分泌组成分(图6A)。该富集时间足以通过MSD检测法检测到如血管内皮生长因子(VEGF)等细胞因子,如本实验中在病灶样微环境条件下培养的核心组织外植体及核心组织//成纤维细胞类组装体所示(图6B)。
在分析核心外植体和类组装体的分泌组和转录组时,一个重要考虑因素是使用适当的对照。新鲜分离的核心外植体作为对照价值有限,因为其Vegfa和Mmps的表达在分离后数小时内会显著升高(图5A)。相比之下,周围被初始无细胞水凝胶包绕的时间匹配外植体,更适合作为核心区室基因表达的对照。对于外部水凝胶部分,不含核心外植体的载细胞水凝胶作为对照的效果较差,不如围绕失活核心外植体培养的载细胞水凝胶(补充文件7),主要原因在于前者会收缩成近似圆形的结构,而非伸长形水凝胶,从而显著改变细胞形态(图3A)。

图1类器官组分的分离与组装以构建模型 体内 串扰 肌腱核心外植体从小鼠尾巴中提取,切割后夹紧。小鼠腿部肌肉(即股四头肌(QF)、腓肠肌(G)和胫骨前肌(TA))经消化处理以分离内皮细胞,随后在组织培养塑料表面进行培养。跟腱(AT)也经过消化以分离肌腱成纤维细胞,并同样在组织培养塑料表面培养。从胫骨和股骨中冲洗出骨髓,分离单核细胞后在组织培养塑料上培养,并诱导分化为幼稚型巨噬细胞。光学显微镜图像(10倍)显示了核心外植体、内皮细胞、肌腱成纤维细胞和巨噬细胞在整合形成类组装体前的形态。在组装过程中,培养在塑料表面的细胞被重悬,接种至I型胶原溶液(1.6 mg/mL)中,随后将细胞-水凝胶混合物包裹于夹紧的核心外植体周围,并在37 °C下聚合50分钟 37 °C 在添加培养基之前,通过夹具(机械张力)和培养箱设置(氧气浓度、温度)控制培养条件。 请点击此处以查看此图的放大版本。

图2:细胞类器官组分的表征。(A)肌肉来源的内皮细胞在一次传代(P1,上排)和两次传代(P2,下排)后的代表性流式细胞术分析。未染色(灰色)和CD31染色(绿色)细胞的计数已归一化至众数。百分比数据针对CD31染色组给出。(B)跟腱来源成纤维细胞在一次传代(P1,上排)和两次传代(P2,下排)后的代表性流式细胞术分析。坐标轴显示未染色细胞(灰色)以及同时表达ScxGFP并用CD146抗体染色的细胞(彩虹色)的荧光强度。(C)骨髓来源巨噬细胞培养后的代表性流式细胞术分析。在上排图中,未染色(灰色)和F4/80染色(绿色)细胞的计数已归一化至众数。百分比数据针对F4/80染色组给出。下排图显示未染色细胞(灰色)以及F4/80+细胞亚群经CD206抗体和CD86抗体染色后的荧光强度(彩虹色)。请点击此处查看该图的放大版本。

图3类器官成像与形态特征 (A) 分别为培养第0天(d0)和第21天(d21)的代表性照片(37 °C,20% O₂2显示含有外源性成纤维细胞但无嵌入核心组织块的水凝胶发生多维收缩,以及含有外源性成纤维细胞的水凝胶围绕核心组织块发生强烈的径向压缩。B) 培养第21天(d21)拍摄的代表性照片(37 °C,20% O₂2显示了无细胞水凝胶、围绕核心外植体浇铸的无细胞水凝胶,以及负载肌腱成纤维细胞并围绕核心外植体浇铸的水凝胶在收缩速度上的差异。C代表性光学显微镜图像(10倍)分别于培养第0天(d0)和第21天(d21)采集37 °C,20% O₂2) 显示核心外植体(E)周围胶原水凝胶(HG)中细胞群体的存在情况及水凝胶收缩速度在核心 // 无细胞和核心 // 成纤维细胞类组装体共培养中的纵向变化。示意图展示了核心 // 无细胞类组装体与核心 // 成纤维细胞类组装体共培养之间水凝胶收缩的差异。D第7天(d7)核心//内皮细胞、核心//巨噬细胞以及核心//成纤维细胞类组装体共培养的代表性共聚焦显微镜图像37 °C,20% O₂2左侧一列表示细胞核染为蓝色(DAPI)且死细胞染为粉红色(Ethidium homodimer-1)的类组装体图像。其余两列表示细胞核染为蓝色(DAPI)且肌动蛋白纤维染为绿色(F-actin)的类组装体图像。E) 第1天(d1)和第7天(d7)共培养的核心//内皮细胞类组装体存活率定量结果的箱线图。N = 5。上下 hinges 分别对应第一和第三四分位数(25th 和 75th 百分位数)中间一条线表示中位数。须线从上下 hinge(四分位点)延伸至不超过四分位距 1.5 倍范围内的最大值/最小值。P 值: 无显著性差异p > 0.05. 请点击此处以查看此图的放大版本。
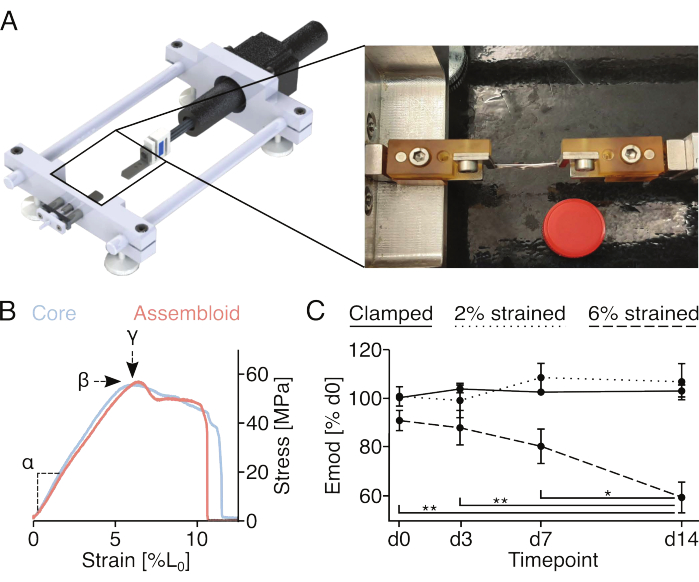
图 4:类组装体的机械刺激及其力学特性的测量。(A)定制拉伸装置的示意图,包含夹具支架平台、力传感器和步进电机。照片显示一个用夹具固定在拉伸装置上的类组装体。图中使用一个15 mL塑料管盖(直径:17 mm)作为比例尺。(B)显示核心外植体(浅蓝色)和类组装体(浅红色)代表性应力/应变曲线的图表。可从数据中提取线性弹性模量(α)、最大应力(β)和最大应变(у),以进行核心外植体或类组装体的力学表征。(C)图表显示核心//内皮细胞类组装体在共培养(29 °C,3% O2)条件下,经过14天时间过程的线性弹性模量(Emod)变化,实验开始时分别进行夹持(实线)、夹持并拉伸至2% L0应变(虚线)或夹持并拉伸至6% L0应变(点划线)。N = 5。数据点已归一化至拉伸前的初始线性弹性模量,所有数据均以均值±标准误(±sem)表示。P值:*p < 0.05,**p < 0.01。请点击此处查看该图的放大版本。
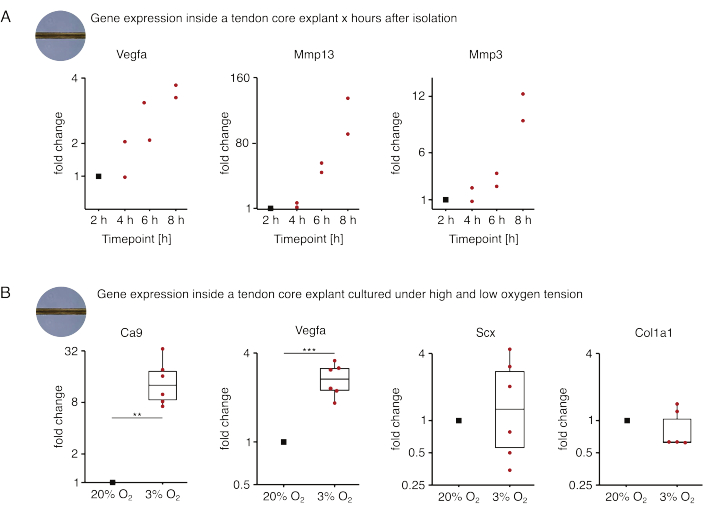
图5不同微环境条件下分离与培养后核心转录组的变化 (A散点图显示了倍数变化情况 Vegfa, Mmp13,以及 Mmp3 单培养中的基因表达(37 °C,20% O₂2) 小鼠尾部核心组织块在分离后2 h、4 h、6 h和8 h的基因表达变化,以分离后2 h的基因表达水平为基准进行标准化。N = 2。B) 箱线图显示了倍数变化情况 Ca9, Vegfa, Scx,以及 Col1a1 低氧张力(3% O₂)下单培养核心外植体中的基因表达2) 标准化后与在高氧张力(20% O₂)条件下单培养的样本进行比较2)。n = 5-6。箱线图的上下 hinges 分别对应第一和第三四分位数(25th 和 75th 百分位数)中间一条表示中位数。须线从上下 hinges(四分位距的边界)延伸至不超过四分位距 1.5 倍范围内的最大值/最小值。用于标准化的数据点以黑点表示,单个数据点以红点表示。P 值:**p < 0.01,***p < 0.001. 请点击此处以查看此图的放大版本。

图6类器官特异性分泌组与区室特异性转录组分析 (A代表性照片显示了第7天(d7)的类组装体,此时采集了分泌组和转录组样本,并展示了相应的实验流程。B7天共培养后,核心//无细胞和核心//成纤维细胞组装体上清液中的VEGF浓度(pg/mL)37 °C,20% O₂2) 以箱线图表示。N = 6。C共培养7天后核心-内皮细胞组装体的代表性共聚焦显微镜图像(37 °C)在高氧张力(20% O₂)条件下2)和低氧张力(3% O₂2)。细胞核染成蓝色(DAPI),嵌入的内皮细胞共表达增强型绿色荧光蛋白(EGFP)和内皮细胞标志物血小板源性生长因子亚基b(Pdgfb)。虚线表示核心外植体(E)与含内皮细胞的水凝胶(HG)之间的区室界面。D散点图显示了倍数变化情况 Vegfa, Tnf-α, Fgf2,以及 Mmp3 低氧张力(3% O₂)共培养条件下核心-内皮细胞类组装体核心区室中的基因表达2) 标准化后与在高氧张力(20% O₂)条件下培养的进行比较2)。N = 2。(E)散点图显示倍数变化 Vegfa, Tnf-α, Fgf2,以及 Mmp3 核心外在区室中的基因表达 // 活性核心(aC)或去活性核心(dC)内皮细胞类组装体在高氧张力(20% O₂)下共培养2)和低氧张力(3% O₂2)。在相应条件下,以在高氧张力(20% O₂)下共培养的、具有去活性核心(dC)的中心-内皮细胞类组装体的外在区室为参照进行归一化处理。2)。N = 3-4。在图B中,箱线图的上下 hinges 分别对应第一和第三四分位数(25th 和 75th 百分位数)中间一条表示中位数。须线从上下 hinge(四分位数)延伸至不超过四分位距 1.5 倍范围内的最大值/最小值。异常值以黑点表示。P 值:*p < 0.05。在 D 和 E用于归一化的数据点以黑点表示,单个数据点以红点表示。 请点击此处以查看此图的放大版本。
表1:肌腱疾病与损伤模型系统的输入要求。 列出与所选输入参数相匹配的原发性肌腱疾病诱因及继发性驱动因素,这些参数的可操作性对于建立肌腱疾病与损伤模型至关重要。请点击此处下载该表格。
表2:肌腱疾病与损伤模型系统的输出要求。 一系列肌腱疾病的典型特征与相应的输出参数相匹配,这些输出参数的可量化性对于解读肌腱疾病与损伤模型的行为至关重要。请点击此处下载该表格。
补充文件 1:夹具支架、安装站和腔室模具的 .stl 文件。 请点击此处下载该文件。
补充文件2:右侧夹具支架示意图。 请点击此处下载该文件。
补充文件3:左侧夹具支架示意图。 请点击此处下载该文件。
补充文件4:安装平台的设计图 请点击此处下载该文件。
补充文件5:金属夹具的设计图。 请点击此处下载该文件。
补充文件6:显示无细胞水凝胶收缩的图像。 请点击此处下载该文件。
补充文件 7:显示去活化核心外植体的图像。 请点击此处下载该文件。
讨论
总体而言,本文介绍的类组装体模型系统有几个关键步骤需要强调。首先,模型系统的质量取决于其组分的质量。在启动组装过程之前,必须在显微镜下检查核心外植体以及待接种的细胞群体。同样重要的是,至少通过流式细胞术对分离的细胞群体表型进行一次验证。尤其是当首次使用新的一批胶原蛋白-1时,建议在将细胞包埋入其中之前,先通过预实验检测其交联速度。类组装体的组装过程涉及大量手动操作,这会增加污染风险。为最大限度降低污染风险,应在具有层流空气的无菌生物安全柜中操作,频繁更换手套,并使用80%乙醇对手套及工作区域进行去污处理。出于类似原因,3D打印的夹具固定器不应重复使用。在包埋过程开始前,应将所有水凝胶组分(交联溶液、胶原蛋白-1溶液)置于冰上,以防止提前交联。因此,在将细胞加入交联溶液后必须迅速操作,以减少因交联溶液的高pH值和低温导致的细胞死亡。为防止夹持的核心外植体因干燥而死亡,在将交联溶液与胶原蛋白-1溶液混合前,应立即吸除覆盖在夹持核心外植体上的培养基。为确保核心外植体在水凝胶中的中心位置,理想做法是在略微张紧的夹持核心外植体周围浇铸水凝胶。为此,可使用圆柱销和M3 × 16 mm螺钉将夹具固定器固定在带有适当间距孔位的(3D打印)平板上。经过50分钟的聚合后,可根据所需的培养条件再次释放包埋后核心外植体的张力。类组装体在培养过程中所受的张力大小对实验结果具有显著影响,应在不同样本和实验条件之间保持一致21。
然而,机械(非)加载对实验结果的巨大影响是类组装体模型相较于大多数其他组织工程替代方案的主要优势,尤其是因为核心外植体维持的基质成分应能在细胞水平上重现复杂的体内加载模式90。尽管在实际操作中,目前仅展示了对类组装体的线性弹性模量、最大拉伸应变和最大拉伸应力的测量,但已有文献报道了肌腱核心外植体的疲劳强度和应力松弛测量方案,这些方法应同样适用于类组装体91,92。除了类似体内的加载模式外,类组装体的多层次模块化设计可能是其最大的优势。得益于独立的培养腔室,每个样本可单独设定可控的一组微环境条件(例如温度、氧张力、葡萄糖浓度、添加物、刺激剂、抑制剂以及通过培养板施加的静态拉伸)。此外,通过调节水凝胶成分,可定制化外在区室的基质硬度和基质组成,例如,通过增加III型胶原和细胞纤连蛋白的含量,可用于研究日益病变的组织微环境的影响93,94,95。外在区室中所评估的细胞群体可通过选择接种的细胞类型灵活调整,也可通过利用已建立的基因修饰细胞系和小鼠品系(例如ScxLin细胞耗竭)对外植体肌腱核心中的细胞进行改造96。两个区室之间不同的基质和细胞组成进一步提供了独特的区室化三维结构,这也是肌腱的关键特征之一1,30,46。
使用该系统时,需考虑系统模块化设计对结果参数精细程度的影响。尽管每个区室的细胞增殖和募集情况可分别评估,但目前机械性能、分泌组成分和降解产物仅能针对完整的类组装体(assembloid)进行测量。在通量方面,一名经过适当培训的操作人员在一个常规工作日内最多可制备50个类组装体,主要瓶颈在于夹紧步骤。尽管部分检测方法相互排斥,但可在同一样本上重复检测机械性能和分泌组成分,并在实验终点检测细胞群体组成(流式细胞术)、细胞转录组(RT-qPCR、RNA测序)或基质与细胞分布(免疫细胞化学/荧光显微镜)。在先前的研究中,这些方法已被广泛用于表征在模拟损伤微环境刺激下,核心//成纤维细胞和核心//巨噬细胞类组装体中细胞间及跨区室相互作用84,85。本研究进一步探索了该类组装体模型系统在不同微环境刺激下,研究核心区室与外源性内皮细胞之间跨区室相互作用的能力。
该模型系统的模块化设计为未来方法的优化提供了可能,这对于克服当前设计迭代中的以下局限性十分必要。本研究中展示的流式细胞术分析以及近期发表的单细胞RNA测序数据表明,肌腱核心定居的腱细胞和跟腱来源的细胞群体比先前假设的更具异质性24,34,59,84,97此外,在培养过程中,最初位于类器官核心或水凝胶区域的细胞群体的迁移行为会模糊类器官的区室化结构。这两个因素共同导致难以将转录组差异归因于特定细胞类型,并难以区分增殖与迁移相关的过程。这一局限性可通过基于近期表征的健康或病变肌腱细胞组成,利用荧光激活细胞分选(FACS)优化输入细胞群体来克服。 体内 研究,通过实施单细胞RNA测序来改进检测结果,并在显微镜观察过程中整合增殖标志物,如EdU(5-乙炔基-2'-脱氧尿苷)染色。
本文所展示的类组装体也与目前大多数可用的体外(in vitro)系统存在类似的局限性,即这些系统模拟的是与机体其他部分分离的病变器官98,99。然而,本研究中使用的基于培养室的平台,为该模型系统进一步整合到多器官平台中提供了良好基础,从而可连接模拟不同器官的类组装体,并用于研究器官间的相互作用。
从根本上讲,该模型系统基于啮齿类动物的定位肌腱,因而具有其自身独特的一系列缺陷。首先,由于野生型小鼠不会发生或罹患肌腱疾病,导致研究结果的可转化性受到限制8,100,101。整合来自人类组织或新开发的小鼠品系(表现出肌腱疾病特征)的组织与细胞,有望缓解这一问题102。转向基于人类的类组装体尤其具有吸引力,因为它能够利用来自不同肌腱疾病患者(如肌腱炎、肌腱变性或腱周炎)的组织进行研究,甚至可使用对治疗无反应的供体组织,从而开发更具个性化的治疗方案。其次,小鼠尾部肌腱外植体对过载引起的微损伤耐受性较差,这限制了该模型系统在急性肌腱损伤研究中的应用。
基于上述所有原因,组织块-水凝胶组装体非常适用于研究肌腱核心生物学、基质结构与功能之间的相互作用,以及特定细胞群体在微环境诱导的微损伤响应下的跨区室相互作用。通过这些通量相对较高的研究获得的见解可为后续研究提供方向 体内 研究与治疗方案开发
披露
作者无任何利益冲突需要披露。
致谢
本工作由ETH资助项目1-005733资助
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.4 mm x 25 mm 注射针(G27) | Sterican | 9186174 | |
| 3D打印耗材:透明聚乳酸prusament | Prusa | NA | |
| 4% 甲醛 | Roti-Histofix | P087.4 | |
| Accutase 细胞解离溶液 | Sigma-Aldrich | A6964-100ML | |
| 两性霉素 | VWR | L0009-100 | |
| 可连接式数码C接口相机:Moticam 2 | Motic | NA | |
| 螺钉 M3 x 16 mm,不锈钢 | RS PRO | 1871235 | |
| 螺钉 M3 x 6 mm,不锈钢 | RS PRO | 1871207 | |
| CaCl₂ | Sigma-Aldrich | C5670 | |
| CD146 抗体:PE 标记抗小鼠 | BioLegend | 134703 | |
| CD206 抗体:Alexa Fluor 488 标记抗小鼠 | BioLegend | 141709 | |
| CD31 抗体:Alexa Fluor 488 标记抗小鼠 | BioLegend | 102413 | |
| CD86 抗体:PE 标记抗小鼠 | BioLegend | 105007 | |
| 胶原酶 I | Thermo Fisher Scientific | 17100017 | |
| 胶原酶 IV | Gibco | 17104-019 | |
| 透析胎牛血清(FBS) | Sigma-Aldrich | F0392-100ML | |
| 二甲基亚砜(DMSO) | Sigma-Aldrich | 7000183 | |
| Dispase II | Sigma-Aldrich | D4693-1G | |
| DMEM/F12 | Sigma | 7002211 | |
| 圆柱销,3 mm x 16 mm,不锈钢 | Accu | HDP-3-16-A1 | |
| Dragon Skin 10 Slow/1 硅胶 | KauPO | 09301-004-000001 | |
| Endopan 3 试剂盒 | Pan-Biotech | P04-0010K | |
| 内皮细胞生长补充剂 | Lonza | CC-3162 | |
| Eppendorf 安全锁塑料管(1.5 mL) | Eppendorf | 30121023 | |
| 溴化乙锭同型二聚体,EthD-1,2 mM DMSO 储存液 | Sigma-Aldrich | 46043-1MG-F | |
| F4/80 抗体:Apc/Fire 750 标记抗小鼠 | BioLegend | 123151 | |
| Falcon 塑料管(15 mL) | Corning | 352096 | |
| Falcon 塑料管(50 mL) | Corning | 352070 | |
| 流式细胞仪:LSR II Fortessa | BD Bioscience | 23-11617-02 | |
| 明胶 | Invitrogen | D12054 | |
| Hellmanex III 碱性清洗浓缩液 | Sigma | Z805939-1EA | |
| 肝素 | Sigma-Aldrich | H3149-10KU | |
| 羟脯氨酸检测试剂盒 | Sigma-Aldrich | MAK008 | |
| 图像分析软件:Motic Images Plus 3.0 ML | Motic | NA | |
| L-抗坏血酸磷酸镁盐 n-水合物 | Wako Chemicals | 013-19641 | |
| LSE 低速轨道摇床 | Corning | 6780-FP | |
| MEM 非必需氨基酸 | Sigma | 7002231 | |
| 小鼠巨噬细胞刺激因子(m-CSF) | PeproTech | 315-02-50ug | |
| MSD 检测试剂盒 | Mesoscale Discovery | various | |
| NucBlue | Thermo Fisher Scientific | R37605 | |
| 尼龙网筛帽,100 µm | Corning | 734-2761 | |
| Original Prusa i3 MK3S 3D 打印机 | Prusa | i3 MK3S | |
| 青霉素-链霉素 | Sigma-Aldrich | P4333 | |
| 磷酸盐缓冲液(PBS),pH 7.4,无菌,10 L | Gibco | 10010001 | |
| 嘌呤霉素 | Gibco | A1113803 | |
| 红细胞裂解缓冲液 | VWR | 786-650 | |
| 重组 m-CSF | PeproTech | 315-02 | |
| RNA 提取试剂盒:Rneasy plus Micro | Qiagen | 74034 | |
| 切片软件:PrusaSlicer | Prusa | NA | 版本 2.6.0 或更高 |
| 无菌细胞筛,100 µm | Fisherbrand | 22363549 | |
| 手术刀片 No. 21 | Swann-Morton | 307 | |
| Trizol 试剂 | Thermo Fisher Scientific | 15596018 | |
| 胰蛋白酶-EDTA(0.5%) | Gibco | 15400054 |
参考文献
- Snedeker, J. G., Foolen, J. Tendon injury and repair - A perspective on the basic mechanisms of tendon disease and future clinical therapy. Acta Biomaterialia. 63, 18-36 (2017).
- Wang, J. H. C. Mechanobiology of tendon. Journal of Biomechanics. 39 (9), 1563-1582 (2006).
- Kirkendall, D. T., Garrett, W. E. Function and biomechanics of tendons. Scandinavian Journal of Medicine and Science in Sports. 7 (2), 62-66 (1997).
- Götmark, F., Cafaro, P., O'Sullivan, J. Aging human populations: Good for us, good for the earth. Trends in Ecology and Evolution. 33 (11), 851-862 (2018).
- Maffulli, N., Wong, J., Almekinders, L. C. Types and epidemiology of tendinopathy. Clinics in Sports Medicine. 22 (4), 675-692 (2003).
- Renström, P. A. F. H., Woo, S. L. -Y. Tendinopathy: A major medical problem in sport. Tendinopathy in Athletes. , (2007).
- Screen, H. R. C., Birk, D. E., Kadler, K. E., Ramirez, F., Young, M. Tendon functional extracellular matrix. Journal of Orthopaedic Research. 33 (6), 793-799 (2016).
- Wunderli, S. L., Blache, U., Snedeker, J. G., Wunderli, S. L., Blache, U., Tendon, J. G. S. Tendon explant models for physiologically relevant in vitro study of tissue biology - a perspective. Connective Tissue Research. 61 (3-4), 262-277 (2020).
- Magnusson, S. P., Langberg, H., Kjaer, M. The pathogenesis of tendinopathy: balancing the response to loading. Nature Reviews Rheumatology. 6 (5), 262-268 (2010).
- Heinemeier, K. M., Schjerling, P., Øhlenschlæger, T. F., Eismark, C., Olsen, J., Kjær, M. Carbon-14 bomb pulse dating shows that tendinopathy is preceded by years of abnormally high collagen turnover. FASEB Journal. 32 (9), 4763-4775 (2018).
- Andersson, G., Backman, L. J., Scott, A., Lorentzon, R., Forsgren, S., Danielson, P. Substance P accelerates hypercellularity and angiogenesis in tendon tissue and enhances paratendinitis in response to Achilles tendon overuse in a tendinopathy model. British Journal of Sports Medicine. 45 (13), 1017-1022 (2011).
- Rolf, C. G., Fu, B. S. C., Pau, A., Wang, W., Chan, B. Increased cell proliferation and associated expression of PDGFRβ causing hypercellularity in patellar tendinosis. Rheumatology. 40 (3), 256-261 (2001).
- Riley, G. The pathogenesis of tendinopathy. A molecular perspective. Rheumatology. 43 (2), 131-142 (2004).
- Jarvinen, M., Jozsa, L., Kannus, P., Järvinen, T. L., Kvist, M., Leadbetter, W. Histopathological findings in chronic tendon disorders. Scandinavian Journal of Medicine & Science in Sports. 7 (2), 86-95 (1997).
- Soslowsky, L. J., et al. Overuse activity injures the supraspinatus tendon in an animal model: A histologic and biomechanical study. Journal of Shoulder and Elbow Surgery. 9 (2), 79-84 (2000).
- Tran, P. H. T., et al. Early development of tendinopathy in humans: Sequence of pathological changes in structure and tissue turnover signaling. FASEB Journal. 34 (1), 776-788 (2020).
- Theodossiou, S. K., Schiele, N. R. Models of tendon development and injury. BMC Biomedical Engineering. 1 (1), 1-24 (2019).
- Stauber, T., Blache, U., Snedeker, J. G. Tendon tissue microdamage and the limits of intrinsic repair. Matrix Biology. 85-86, 68-79 (2020).
- Wang, T., et al. In vitro loading models for tendon mechanobiology. Journal of Orthopaedic Research. 36 (2), 566-575 (2018).
- Fang, F., Sawhney, A. S., Lake, S. P. Different regions of bovine deep digital flexor tendon exhibit distinct elastic, but not viscous, mechanical properties under both compression and shear loading. Journal of Biomechanics. 47 (12), 2869-2877 (2014).
- Wunderli, S. L., et al. Tendon response to matrix unloading is determined by the patho-physiological niche. Matrix Biology. 89, 11-26 (2020).
- Wunderli, S. L., et al. Minimal mechanical load and tissue culture conditions preserve native cell phenotype and morphology in tendon - A novel ex vivo mouse explant model. Journal of Orthopaedic Research. 36 (5), 1383-1390 (2017).
- Arnoczky, S. P., Lavagnino, M., Egerbacher, M., Caballero, O., Gardner, K. Matrix metalloproteinase inhibitors prevent a decrease in the mechanical properties of stress-deprived tendons. The American Journal of Sports Medicine. 35 (5), 763-769 (2007).
- de Micheli, A. J., et al. Single-cell transcriptomic analysis identifies extensive heterogeneity in the cellular composition of mouse Achilles tendons. American Journal of Physiology - Cell Physiology. 319 (5), C885-C894 (2020).
- Arvind, V., Huang, A. H. Reparative and maladaptive inflammation in tendon healing. Frontiers in Bioengineering and Biotechnology. 9 (July), 1-16 (2021).
- Marsolais, D., Côté, C. H., Frenette, J. Neutrophils and macrophages accumulate sequentially following Achilles tendon injury. Journal of Orthopaedic Research. 19 (6), 1203-1209 (2001).
- Garcia-Melchor, E., et al. Novel self-amplificatory loop between T cells and tenocytes as a driver of chronicity in tendon disease. Annals of the Rheumatic Diseases. 80 (8), 1075-1085 (2021).
- Stolk, M., Klatte-Schulz, F., Schmock, A., Minkwitz, S., Wildemann, B., Seifert, M. New insights into tenocyte-immune cell interplay in an in vitro model of inflammation. Scientific Reports. 7 (1), 9801(2017).
- Tempfer, H., Traweger, A. Tendon vasculature in health and disease. Frontiers in Physiology. 6, 330(2015).
- Mienaltowski, M. J., Adams, S. M., Birk, D. E. Regional differences in stem cell/progenitor cell populations from the mouse achilles tendon. Tissue Engineering - Part A. 19 (1-2), 199-210 (2013).
- Sakabe, T., et al. Transcription factor scleraxis vitally contributes to progenitor lineage direction in wound healing of adult tendon in mice. Journal of Biological Chemistry. 293, (2018).
- Dyment, N. A., Hagiwara, Y., Matthews, B. G., Li, Y., Kalajzic, I., Rowe, D. W. Lineage tracing of resident tendon progenitor cells during growth and natural healing. PLoS One. 9 (4), e96113(2014).
- Harvey, T., Flamenco, S., Fan, C. M. A Tppp3 + Pdgfra + tendon stem cell population contributes to regeneration and reveals a shared role for PDGF signalling in regeneration and fibrosis. Nature Cell Biology. 21 (12), 1490-1503 (2019).
- Zhang, J., et al. Characterization of the structure, vascularity, and stem/progenitor cell populations in porcine Achilles tendon (PAT). Cell and Tissue Research. 384 (2), 367-387 (2021).
- Tarafder, S., et al. Tendon stem/progenitor cells regulate inflammation in tendon healing via JNK and STAT3 signaling. FASEB Journal. 31 (9), 3991-3998 (2017).
- Lee, C. H., et al. Harnessing endogenous stem/progenitor cells for tendon regeneration Find the latest version Harnessing endogenous stem/progenitor cells for tendon regeneration. J Clin Invest. 125 (7), 2690-2701 (2015).
- Lui, P. P. Y., Chan, L. S., Cheuk, Y. C., Lee, Y. W., Chan, K. M. Expression of bone morphogenetic protein-2 in the chondrogenic and ossifying sites of calcific tendinopathy and traumatic tendon injury rat models. Journal of Orthopaedic Surgery and Research. 4, 27(2009).
- Takeuchi, E., et al. Localization and expression of osteopontin in the rotator cuff tendons in patients with calcifying tendinitis. Virchows Archiv. 438 (6), 612-617 (2001).
- Kadler, K. E., Hill, A., Canty-Laird, E. G. Collagen fibrillogenesis: fibronectin, integrins, and minor collagens as organizers and nucleators. Current Opinion in Cell Biology. 20 (5), 495-501 (2008).
- Millar, N. L., et al. MicroRNA29a regulates IL-33-mediated tissue remodelling in tendon disease. Nature Communications. 6, 6774(2015).
- Riley, G. P., Harrall, R. L., Constant, C. R., Chard, M. D., Cawston, T. E., Hazleman, B. L. Tendon degeneration and chronic shoulder pain: changes in the collagen composition of the human rotator cuff tendons in rotator cuff tendinitis. Annals of the Rheumatic Diseases. 53 (6), 359-366 (1994).
- Thorpe, C. T., Peffers, M. J., Simpson, D., Halliwell, E., Screen, H. R. C., Clegg, P. D. Anatomical heterogeneity of tendon: Fascicular and interfascicular tendon compartments have distinct proteomic composition. Scientific Reports. 6, 20455(2016).
- Thorpe, C. T., et al. Distribution of proteins within different compartments of tendon varies according to tendon type. Journal of Anatomy. 229 (3), 450-458 (2016).
- Choi, H., et al. Heterogeneity of proteome dynamics between connective tissue phases of adult Tendon. eLife. 9, e55262(2020).
- Spiesz, E. M., et al. Tendon extracellular matrix damage, degradation and inflammation in response to in vitro overload exercise. Journal of Orthopaedic Research. 33 (6), 889-897 (2015).
- Dyment, N. A., et al. The paratenon contributes to scleraxis-expressing cells during patellar tendon healing. PLoS One. 8 (3), e59944(2013).
- Cadby, J. A., Buehler, E., Godbout, C., Van Weeren, P. R., Snedeker, J. G. Differences between the cell populations from the peritenon and the tendon core with regard to their potential implication in tendon repair. PLoS One. 9 (3), e92474(2014).
- Huh, D., Hamilton, G. A., Ingber, D. E. From three-dimensional cell culture to organs-on-chips. Trends in Cell Biology. 21 (12), 745-754 (2011).
- Duval, K., et al. Modeling physiological events in 2D vs. 3D cell culture. Physiology. 32 (4), 266(2017).
- Wang, J. H. C. Mechanobiology of tendon. Journal of Biomechanics. 39 (9), 1563-1582 (2006).
- Derwin, K. A., Soslowsky, L. J. A quantitative investigation of structure-function relationships in a tendon fascicle model. Journal of Biomechanical Engineering. 121 (6), 598-604 (1999).
- Herod, T. W., Veres, S. P. Development of overuse tendinopathy: A new descriptive model for the initiation of tendon damage during cyclic loading. Journal of Orthopaedic Research. 36 (1), 467-476 (2017).
- Andersen, M. B., Pingel, J., Kjær, M., Langberg, H. Interleukin-6: A growth factor stimulating collagen synthesis in human tendon. Journal of Applied Physiology. 110 (6), 1549-1554 (2011).
- Langberg, H., Rosendal, L., Kjær, M. Training-induced changes in peritendinous type I collagen turnover determined by microdialysis in humans. Journal of Physiology. 534 (1), 297-302 (2001).
- Zitnay, J. L., et al. Molecular level detection and localization of mechanical damage in collagen enabled by collagen hybridizing peptides. Nature Communications. 8, 14913(2017).
- Hwang, J., et al. Molecular assessment of collagen denaturation in decellularized tissues using a collagen hybridizing peptide. Acta Biomaterialia. 53, 268-278 (2016).
- Lin, A. H., Zitnay, J. L., Li, Y., Yu, S. M., Weiss, J. A. Microplate assay for denatured collagen using collagen hybridizing peptides. Journal of Orthopaedic Research. 37 (2), 431-438 (2019).
- Blomgran, P., Blomgran, R., Ernerudh, J., Aspenberg, P. A possible link between loading, inflammation and healing: Immune cell populations during tendon healing in the rat. Scientific Reports. 6, 29824(2016).
- Harvey, T., Flamenco, S., Fan, C. -M. A Tppp3+Pdgfra+ tendon stem cell population contributes to regeneration and reveals a shared role for PDGF signalling in regeneration and fibrosis. Nature Cell Biology. 21 (12), 1490-1503 (2019).
- Pryce, B. A., Brent, A. E., Murchison, N. D., Tabin, C. J., Schweitzer, R. Generation of transgenic tendon reporters, ScxGFP and ScxAP, using regulatory elements of the scleraxis gene. Developmental Dynamics. 236 (6), 1677-1682 (2007).
- Godinho, M. S. C., Thorpe, C. T., Greenwald, S. E., Screen, H. R. C. Elastin is localised to the interfascicular matrix of energy storing tendons and becomes increasingly disorganised with ageing. Scientific Reports. 7 (1), 9713(2017).
- Smith, M. M., et al. Modulation of aggrecan and ADAMTS expression in ovine tendinopathy induced by altered strain. Arthritis and Rheumatism. 58 (4), 1055-1066 (2008).
- Asundi, K. R., Rempel, D. M. MMP-1, IL-1β, and COX-2 mRNA expression is modulated by static load in rabbit flexor tendons. Annals of Biomedical Engineering. 36 (2), 237-243 (2008).
- Millar, N. L., et al. Inflammation is present in early human tendinopathy. American Journal of Sports Medicine. 38 (10), 2085-2091 (2010).
- Dakin, S. G., et al. Inflammation activation and resolution in human tendon disease. Science Translational Medicine. 7 (311), 311ra173(2015).
- Jelinsky, S. A., Rodeo, S. A., Li, J., Gulotta, L. V., Archambault, J. M., Seeherman, H. J. Regulation of gene expression in human tendinopathy. BMC Musculoskeletal Disorders. 12, 86(2011).
- Kannus, P., Józsa, L. Histopathological changes preceding spontaneous rupture of a tendon. A controlled study of 891 patients. The Journal of Bone and Joint Surgery. American. 73 (10), 1507-1525 (1991).
- Comin, J., et al. The prevalence and clinical significance of sonographic tendon abnormalities in asymptomatic ballet dancers: A 24-month longitudinal study. British Journal of Sports Medicine. 47 (2), 89-92 (2013).
- Schubert, T. E. O., Weidler, C., Lerch, K., Hofstädter, F., Straub, R. H. Achilles tendinosis is associated with sprouting of substance P positive nerve fibres. Annals of the Rheumatic Diseases. 64 (7), 1083-1086 (2005).
- Quigley, A. S., Bancelin, S., Deska-Gauthier, D., Légaré, F., Kreplak, L., Veres, S. P. In tendons, differing physiological requirements lead to functionally distinct nanostructures. Scientific Reports. 8 (1), 4409(2018).
- Herod, T. W., Chambers, N. C., Veres, S. P. Collagen fibrils in functionally distinct tendons have differing structural responses to tendon rupture and fatigue loading. Acta Biomaterialia. 42, 296-307 (2016).
- Shepherd, J. H., Riley, G. P., Screen, H. R. C. Early stage fatigue damage occurs in bovine tendon fascicles in the absence of changes in mechanics at either the gross or micro-structural level. Journal of the Mechanical Behavior of Biomedical Materials. 38, 163-172 (2014).
- Birch, H. L. Tendon matrix composition and turnover in relation to functional requirements. International Journal of Experimental Pathology. 88 (4), 241-248 (2007).
- Kapałczyńska, M., et al. 2D and 3D cell cultures - a comparison of different types of cancer cell cultures. Archives of Medical Science. 14 (4), 910-919 (2018).
- Hussien, A. A., Niederoest, B., Bollhalder, M., Goedecke, N., Snedeker, J. G. The stiffness-sensitive transcriptome of human tendon stromal cells. Advanced Healthcare Materials. 12 (7), 2101216(2023).
- Heo, S. J., et al. Aberrant chromatin reorganization in cells from diseased fibrous connective tissue in response to altered chemomechanical cues. Nature Biomedical Engineering. 7 (2), 177-191 (2023).
- Liu, C. -F., Aschbacher-Smith, L., Barthelery, N. J., Dyment, N., Butler, D., Wylie, C. What we should know before using tissue engineering techniques to repair injured tendons: A developmental biology perspective. Tissue Engineering Part B: Reviews. 17 (3), 165-176 (2011).
- Ruiz-Alonso, S., Lafuente-Merchan, M., Ciriza, J., Saenz-del-Burgo, L., Pedraz, J. L. Tendon tissue engineering: Cells, growth factors, scaffolds and production techniques. Journal of Controlled Release. 333, 448-486 (2021).
- Rinoldi, C., et al. Tendon tissue engineering: Effects of mechanical and biochemical stimulation on stem cell alignment on cell-laden hydrogel yarns. Advanced Healthcare Materials. 8 (7), e1801218(2019).
- Walia, B., Huang, A. H. Tendon stem progenitor cells: Understanding the biology to inform therapeutic strategies for tendon repair. Journal of Orthopaedic Research. 37 (6), 1270-1280 (2018).
- Thorpe, C. T., Riley, G. P., Birch, H. L., Clegg, P. D., Screen, H. R. C. Fascicles from energy-storing tendons show an age-specific response to cyclic fatigue loading. Journal of The Royal Society Interface. 11 (92), 20131058-20131058 (2014).
- Thorpe, C. T., Riley, G. P., Birch, H. L., Clegg, P. D., Screen, H. R. C. Fascicles and the interfascicular matrix show decreased fatigue life with ageing in energy storing tendons. Acta Biomaterialia. 56, 58-64 (2017).
- Youngstrom, D. W., Rajpar, I., Kaplan, D. L., Barrett, J. G. A bioreactor system for in vitro tendon differentiation and tendon tissue engineering. Journal of Orthopaedic Research. 33 (6), 911-918 (2015).
- Stauber, T., et al. Extrinsic macrophages protect while tendon progenitors degrade: Insights from a tissue engineered model of tendon compartmental crosstalk. Advanced Healthcare Materials. 10 (20), e2100741(2021).
- Stauber, T., Moschini, G., Hussien, A. A., Jaeger, P. K., De Bock, K., Snedeker, J. G. IL-6 signaling exacerbates hallmarks of chronic tendon disease by stimulating progenitor proliferation & migration to damage. eLife. 12, RP87092(2023).
- Doillon, C. J., Mantovani, D., Rajan, N., Habermehl, J., Cote, M. Preparation of ready-to-use storable and reconstituted type I collagen from rat tail tendon for tissue engineering applications. Nature Protocols. 1 (6), 2753-2758 (2007).
- Blache, U., et al. Inhibition of ERK 1/2 kinases prevents tendon matrix breakdown. Scientific Reports. 11 (1), 6838(2021).
- Liu, X., et al. The role of vascular endothelial growth factor in tendon healing. Frontiers in Physiology. 12, 766080(2021).
- Claxton, S., Kostourou, V., Jadeja, S., Chambon, P., Hodivala-dilke, K., Fruttiger, M. Efficient, inducible Cre-recombinase activation in vascular endothelium. Genesis. 46 (2), 74-80 (2008).
- Passini, F. S., et al. Shear-stress sensing by PIEZO1 regulates tendon stiffness in rodents and influences jumping performance in humans. Nature Biomedical Engineering. 5 (12), 1457-1471 (2021).
- Lee, A. H., Szczesny, S. E., Santare, M. H., Elliott, D. M. Investigating mechanisms of tendon damage by measuring multi-scale recovery following tensile loading. Acta Biomaterialia. 57, 363-372 (2017).
- Lee, A. H., Elliott, D. M. Multi-scale loading and damage mechanisms of plantaris and rat tail tendons. Journal of Orthopaedic Research. 37 (8), 1827-1837 (2019).
- Williams, I. F., Heaton, A., McCullagh, K. G. Cell morphology and collagen types in equine tendon scar. Research in Veterinary Science. 28 (3), 302-310 (1980).
- Maffulli, N., Ewen, S. W. B., Waterston, S. W., Reaper, J., Barrass, V. Tenocytes from ruptured and tendinopathic achilles tendons produce greater quantities of type III collagen than tenocytes from normal achilles tendons: An in vitro model of human tendon healing. American Journal of Sports Medicine. 28 (4), 499-505 (2000).
- Pajala, A., Melkko, J., Leppilahti, J., Ohtonen, P., Soini, Y., Risteli, J. Tenascin-C and type I and III collagen expression in total Achilles tendon rupture. An immunohistochemical study. Histology and Histopathology. 24 (10), 1207-1211 (2009).
- Best, K. T., et al. Scleraxis-lineage cell depletion improves tendon healing and disrupts adult tendon homeostasis. eLife. 10, e62203(2021).
- Lehner, C., et al. Tenophages: A novel macrophage-like tendon cell population expressing CX3CL1 and CX3CR1. DMM Disease Models and Mechanisms. 12 (12), dmm041384(2019).
- Ajalik, R. E., et al. Human organ-on-a-chip microphysiological systems to model musculoskeletal pathologies and accelerate therapeutic discovery. Frontiers in Bioengineering and Biotechnology. 10, 846230(2022).
- Ingber, D. E. Human organs-on-chips for disease modelling, drug development and personalized medicine. Nature Reviews Genetics. 23 (8), 467-491 (2022).
- Brehm, M. A., Shultz, L. D., Luban, J., Greiner, D. L. Overcoming current limitations in humanized mouse research. The Journal of Infectious Diseases. 208 Suppl (Suppl 2), 125-130 (2013).
- Nunan, R., Harding, K. G., Martin, P. Clinical challenges of chronic wounds: searching for an optimal animal model to recapitulate their complexity. Disease Models & Mechanisms. 7 (11), 1205-1213 (2014).
- Costa-Almeida, R., Calejo, I., Reis, R. L., Gomes, M. E. Crosstalk between adipose stem cells and tendon cells reveals a temporal regulation of tenogenesis by matrix deposition and remodeling. Journal of Cellular Physiology. 233 (7), 5383-5395 (2018).
重印与许可
