本文介绍了一种利用网络药理学和分子对接技术探讨加味生姜散(JWSJS)治疗糖尿病肾病作用机制的实验方案。
方法文章
加味生姜散对糖尿病肾病大鼠模型的拮抗作用:与EGFR/MAPK3/1信号通路相关
* These authors contributed equally
本文内容
摘要
摘要
本研究旨在通过网络药理学方法深入探究加味生姜散(JWSJS)治疗糖尿病肾病的作用机制。采用网络药理学与分子对接技术,预测JWSJS的活性成分及其作用靶点,并构建精细的“药物-成分-靶点”网络。通过基因本体(GO)和京都基因与基因组百科全书(KEGG)富集分析,揭示JWSJS的治疗通路与关键靶点。利用Autodock Vina 1.2.0进行分子对接验证,并开展100纳秒的分子动力学模拟以确认对接结果,随后进行体内动物实验验证。研究结果显示,JWSJS与糖尿病肾病存在227个交集靶点,构建了蛋白-蛋白相互作用网络拓扑结构。KEGG富集分析表明,JWSJS可能通过调控脂质与动脉粥样硬化、PI3K-Akt信号通路、细胞凋亡以及HIF-1信号通路来缓解糖尿病肾病,其中丝裂原活化蛋白激酶1(MAPK1)、MAPK3、表皮生长因子受体(EGFR)和丝氨酸/苏氨酸蛋白激酶1(AKT1)被识别为多条通路的共同靶点。分子对接结果证实,JWSJS的核心成分(槲皮素、棕榈油酸和木犀草素)可通过氢键与三个关键靶点(MAPK1、MAPK3和EGFR)形成稳定的构象结合。体内实验表明,JWSJS显著增加大鼠体重,并降低糖化血清蛋白(GSP)、低密度脂蛋白胆固醇(LDL-C)、三磷酸尿苷(UTP)和空腹血糖(FBG)水平。电镜结合苏木精-伊红(HE)染色与过碘酸-雪夫(PAS)染色显示,各给药组在不同程度上缓解了肾脏损伤,表现为治疗组大鼠肾组织中p-EGFR、p-MAPK3/1和BAX表达不同程度下降,同时BCL-2表达上升。综上所述,这些结果提示JWSJS对糖尿病肾病的保护作用可能与其抑制EGFR/MAPK3/1信号通路的激活及减轻肾小管上皮细胞凋亡有关。
引言
糖尿病(DM)是一种慢性疾病,可影响多个系统,并因持续性高血糖导致多种并发症,例如糖尿病肾病(DN)、视网膜病变和神经病变1。DN 是 DM 的一种严重并发症,约占终末期肾病(ESRD)病例的 30%–50%2。其临床表现为微量白蛋白尿,可进展为 ESRD,特征包括肾小球体积增大、系膜基质增生以及肾小球基底膜增厚3。DN 的发病机制复杂,尚未完全阐明。目前临床上主要采用控制血糖、调节血压和减少蛋白尿等方法来延缓其进展,但总体效果有限。
目前尚未发现可治疗糖尿病肾病(DN)的特效药物4。然而,数百年来,中药已被广泛用于糖尿病(DM)及其并发症的治疗5,并改善了患者的临床症状,延缓了疾病进展。由于中药具有多组分、多靶点、多通路作用的优势,有望成为治疗糖尿病肾病(DN)的创新药物来源6。
“升降散”源自明代医家龚廷贤所著的《万病回春》。《内府仙方》一书记载使用Bombyx Batryticatus、Cicadae Periostracum、Curcumae longae Rhizoma和Radix Rhei et Rhizome。在此基础上,加入Hedysarum Multijugum Maxim、Epimedii Herba和Smilacis Glabrae Rhizoma后,形成具有升清降浊、透散郁“热”、调和“气”血功能的升降散7,8,同时增强了健脾补肾的作用。其功效与糖尿病肾病(DN)因“正气”亏虚、燥“热”亢盛、三焦气机失调导致“气”升降失常、郁“热”内停的病机相吻合7,8。
既往临床研究显示,中药已被用于治疗糖尿病(DM)及其并发症,加味生姜散(JWSJS)可调节血糖和血脂,减少蛋白尿,并显著提高早期糖尿病肾病(DN)患者的临床疗效7。已有研究证实,JWSJS能够降低DN大鼠的尿蛋白和血糖水平,其机制可能与抑制TXNIP/NLRP3和RIP1/RIP3/MLKL信号通路、减少足细胞焦亡以及防止DN大鼠肾组织发生坏死性凋亡有关,从而发挥肾脏保护作用9。JWSJS可上调DN大鼠肾组织中nephrin和podocin蛋白的表达,减轻足细胞损伤,提示JWSJS对足细胞损伤具有抑制作用。JWSJS具有一定抗DN作用且安全性良好,但相关研究较少,现有工作多集中于焦亡和坏死性凋亡方面,文献深度和系统性不足10。我们前期研究已证实,JWSJS可减少DN大鼠的蛋白尿并缓解肾脏损伤7。然而,关于JWSJS治疗DN的作用机制研究仍较少,且缺乏深度与系统性。因此,本研究拟通过网络药理学方法分析JWSJS治疗DN的分子物质基础及作用机制,为后续研究提供坚实基础。
网络药理学是一种研究药物作用机制的新兴方法,涵盖化学信息学、网络生物学、生物信息学和药理学11,12。网络药理学的研究设计与中医药的整体观念高度相似13,14,是研究中药复方作用机制的重要手段。分子对接可用于研究分子间的相互作用,并预测其结合模式与亲和力,已成为计算机辅助药物研究领域的一项关键技术15。因此,本研究通过网络药理学与分子对接方法构建了JWSJS-糖尿病肾病(DN)-靶点相互作用网络,为深入探讨JWSJS治疗DN的作用机制提供了可靠且理论性的依据。
方案
所有动物的饲养和使用均遵循美国国家研究委员会《实验动物护理与使用指南》第8版的规定。th 版本,并按照ARRIVE指南的建议进行报告16,17本研究遵循中国国家研究委员会《实验动物护理与使用指南》进行,并已获得河北中医学院动物伦理委员会批准(DWLL2019030)。
1. JWSJS 活性成分及靶点收集
- 输入药物成分 JWSJS(Hedysarum multijugum Maxim., Epimedium Herba, 光叶菝葜根茎, 大黄根及根茎, 和 姜黄根茎)进入 传统中医药系统药理学数据库与分析平台(TCMSP)数据库18 以回收所有化学成分。 根据吸收情况, 分布、代谢和排泄(ADME) 筛选口服生物利用度(OB)≥ 30% 且类药性(DL)≥ 0.18 的化学成分19,20.
- 使用TCMSP数据库 (https://old.tcmsp-e.com/tcmsp.php,版本。 2.3)以获取化学成分的相应靶点。
- 获取活性成分 白僵蚕 和 蝉蜕 通过检索中医药和化学成分数据库21.
- 为确保实验的可信度,本研究应选择具有化学文摘服务(CAS)编号的化合物。随后从 PubChem(https://pubchem.ncbi.nlm.nih.gov/,2021 年更新)下载活性成分的二维结构图(.sdf 格式)。22.
- 使用 SwissADME(www.swissadme.ch,2021 年更新)23筛选具有高胃肠道(GI)吸收且符合药物相似性规则(Lipinski、Ghose、Veber、Egan、Muegge)中至少两项为“是”的成分。由此确定了活性成分 白僵蚕 和 蝉蜕.
- 将这些导入TCMSP数据库以进行靶蛋白预测(https://old.tcmsp-e.com/tcmsp.php,版本 2.3)18.
- 在 UniProt 数据库(https://www.uniprot.org,2021 年更新)中,将状态设为 已审核 和物种设定为 人类24.
2. DN 对应目标收集
- 通过 GeneCards(https://www.genecards.org/,版本 5.1)25、OMIM(https://omim.org/,2021 年更新)26、TTD(http://db.idrblab.net/ttd/,2021 年更新)27、PharmGKB(https://www.pharmgkb.org/,2021 年更新)28 和 DrugBank 数据库(https://www.drugbank.ca/,2021 年更新)29 搜索糖尿病肾病,整合并去重后获得糖尿病肾病(DN)的相关靶点。
- 筛选 JWSJS 与 DN 的共同靶点并构建网络
- 使用 R 4.2.0 软件筛选 JWSJS 与 DN 的共同靶点,并绘制维恩图。将 JWSJS 的活性成分及其潜在靶点导入 Cytoscape 3.8.0 软件30,构建药物-成分-靶点网络图,以可视化展示药物、成分、靶点与疾病之间的关联。
- 节点大小反映其度值(degree value)的大小,度值越高,表示该节点在网络中越重要。
- 构建蛋白质-蛋白质相互作用(PPI)网络并筛选核心靶点
- 利用在线平台 STRING(版本:11.5)分析交集基因,构建蛋白质-蛋白质相互作用(PPI)网络31。采用Multiple Protein分析模式,物种设定为Homo sapiens,最低相互作用评分设为>0.930。
- 使用 Cytoscape 3.8.0 对网络进行拓扑学分析,计算每个节点的介数中心性(BC)、接近中心性(CC)、度中心性(DC)、特征向量中心性(EC)、基于局部平均连接性的方法(LAC)和网络中心性(NC)值,并筛选出六项指标均高于中位数的节点32。重复此过程多次,以确定 JWSJS 治疗 DN 的核心靶点。
- GO 功能分析与 KEGG 通路富集分析
- 进行 GO 和 KEGG 富集分析,以识别 JWSJS 与 DN 共同靶点所涉及的生物学过程、分子功能、细胞组分及相关通路。
- 使用org.Hs.eg.db包获取交集靶点的 ID,并利用clusterProfiler、org.Hs.eg.db、enrichplot和ggplot2包进行富集分析33。
- 对 GO 功能富集分析结果,筛选经校正的 P 值< 0.05 的前 10 个生物学过程;对 KEGG 分析,选择富集程度最高的前 30 条通路。
3. 分子对接
- 使用 AutoDock Vina 软件对 JWSJS 核心成分与糖尿病肾病治疗的核心靶点进行分子对接34。
- 在 PubChem 数据库中检索 JWSJS 核心成分的二维结构 sdf 文件。使用 ChemBio 3D Ultra 14.0 软件生成并优化其三维结构,以 mol2 格式保存,作为配体文件。
- 从结构生物信息学研究协作实验室(RCSB)蛋白质数据库(PDB)中查找并下载核心靶点三维结构的 pdb 格式文件。使用 Pymol 2.4.0 软件去除蛋白结构中的水分子和配体,保存为 pdb 格式,作为受体文件。
- 将受体 pdb 文件导入 AutoDockTools 1.5.7 软件进行加氢处理,将受体蛋白和小分子配体均转换为 pdbqt 格式,并设置受体蛋白的活性口袋,间距系数设为 1。
- 使用 Autodock Vina 1.2.0 进行分子对接并计算结合能;若亲和力(Affinity)< 0,则认为该分子可自发与蛋白结合,亲和力绝对值越大表示结合越稳定。最后,使用 Pymol 2.3.0 和 LigPlot 2.2.5 软件可视化对接结果。
4. 分子动力学模拟
- 使用 Desmond 软件进行分子动力学(MD)模拟,请遵循以下步骤:
- 采用 2019-1 学术版 Desmond 软件,评估蛋白质-配体相互作用的稳定性与柔性。
- 对来自分子对接研究中最具潜力的三种配体复合物进行分子动力学(MD)研究。在 SPC 水环境并添加 0.15 M NaCl 的条件下进行模拟,以模拟生理离子环境。模拟体系的盒子设计需确保溶质与边界之间至少保持 10 Å 的距离。引入反离子以中和体系的净电荷。同时应用周期性边界条件,并依据 OPLS 2005 力场参数进行控制。
- 使用 Desmond 默认参数,进行 100 ps 的能量最小化阶段。
- 通过 Nosé-Hoover 链方法和 Martyna-Tobias-Klein 方法,确保所有生产级 MD 体系的温度和压力分别稳定在 26.85 °C(300 K)和 1.01325 bar。分子动力学模拟以 2 fs 的时间步长执行,总时长为 100 ns,每 100 ps 记录一次原子坐标。
- 打开模拟相互作用图(SID)模块。将模拟结果数据文件加载至该模块中。
- 从模块提供的选项中选择所需的分析类型(例如,均方根偏差 [RMSD]、均方根涨落 [RMSF]、氢键分析等),并设定所选分析类型所需的其他参数。
- 点击“分析”或“开始”按钮运行分析。
- 分析完成后,在 SID 模块界面中查看并解读结果。如有需要,可导出结果以供进一步使用或展示。
5. 动物实验验证
- 动物与实验设计
注意:本研究共使用75只雄性Sprague-Dawley大鼠,来源于SPF级动物生产机构,年龄为8周,体重为150 g ± 20 g(动物生产许可证号SCXK[河北]2018-004)。- 将大鼠饲养于SPF级动物实验室中,适应性喂养1周后随机分为正常组和模型组。正常组给予普通饮食,模型组给予高糖高脂饮食。4周后,禁食12小时,不禁水。
- 向模型组腹腔注射链脲佐菌素(STZ;35 mg·kg⁻¹),连续注射5天。-1。72 小时后,通过尾静脉采血检测血糖水平。若空腹血糖水平 ≥16.7 mmol·L⁻¹-1,确认其为成功的糖尿病模型。
- 通过观察大鼠肾脏的组织病理学变化来确认DN模型是否成功建立。
- 将成功复制的模型随机分为模型组和伊贝沙坦组(0.014 g/kg),其中模型组分别给予加味三生解毒散 4.37 g/kg、8.73 g/kg 和 17.46 g/kg(相当于临床等效剂量的 3.2、6.3 和 12.6 倍)。每组均包含 10 只大鼠。所有药物均通过口服灌胃给药,每日一次,连续给药 4 周。
- 使用1%戊巴比妥钠(50 mg/kg)经腹腔注射麻醉大鼠,并通过足底回缩反射消失确认麻醉效果。在实施安乐死前,从腹主动脉采集血液样本。
- 在使用150 mg/kg剂量的戊巴比妥钠经腹腔注射处死大鼠后,采集肾脏。
注意:动物安乐死操作遵循美国兽医医学协会(AVMA)最新发布的《动物安乐死指南》(https://www.avma.org/resources-tools/avma-policies/avma-guidelines-euthanasia-animals),以人道方式进行。
- 肾脏组织学分析
注意:肾脏组织经4%多聚甲醛固定,48小时后经乙醇脱水,石蜡包埋。切片厚度为4 µm,用于苏木精-伊红(HE)染色和过碘酸-希夫(PAS)染色,在光学显微镜下观察肾脏组织的形态学改变。- HE染色:
- 脱蜡与水化:将组织切片依次置于二甲苯Ⅰ和二甲苯Ⅱ中各10分钟,无水乙醇Ⅰ和无水乙醇Ⅱ中各3分钟。随后将组织切片浸入95%、90%、80%和70%乙醇中,每级乙醇中各2分钟,最后用蒸馏水洗涤5分钟。
- 将组织切片置于苏木精染液中染色5分钟,然后用盐酸酒精分化5秒。
- 将切片置于伊红染色液中染色3分钟。
- 脱水、透明与封片:将切片依次置于不同浓度的乙醇(70%、80%、90%、95%及无水乙醇)中进行梯度脱水,随后在二甲苯Ⅰ和Ⅱ中透明,最后用中性树胶封片。
- PAS染色:
- 按照步骤5.2.1中所述进行脱蜡,并将切片置于过碘酸染色液中处理约8分钟。
- 用蒸馏水冲洗切片2分钟,然后在避光条件下用希夫试剂染色15分钟。
- 用希夫试剂处理切片后,用自来水冲洗10分钟。
- 使用苏木精对切片复染1分钟,然后用盐酸酒精分化30秒。将切片再次用自来水冲洗5分钟,使细胞核呈蓝色。
- 电子显微镜技术
- 将样品在2.5%戊二醛中固定3小时,然后用PBS冲洗3小时。接着将样品在1%锇酸中处理3小时,再用PBS冲洗3小时。
- 通过一系列浓度递增的酒精溶液进行脱水,最后用丙酮处理(每个步骤总时长约2小时)。
- 在室温下用环氧丙烷与环氧树脂的混合液(1:1)浸透样品 2 小时,随后在 37 °C 下用纯环氧树脂再浸透 2 小时。
- 此后,将样品在36小时内逐步升温进行固化和硬化,然后切片。该过程可确保组织被树脂充分渗透,随后硬化以利于电子显微镜所需的薄切片。
- 用3%醋酸铀和铅酸进行双重染色,并在15分钟内通过电子显微镜观察和拍照样品。
注意:透射电子显微镜(TEM)的设置如下:在TEM系统上以80.0 kV的加速电压,采用高对比度模式(Zoom-1 HC-1)进行7000倍放大。
- HE染色:
- 免疫组织化学
- 脱蜡:将组织切片依次放入二甲苯Ⅰ和二甲苯Ⅱ中,各10分钟。
- 复水:将脱蜡的组织切片依次置于无水乙醇Ⅰ和无水乙醇Ⅱ中各3分钟,随后依次在95%、90%、80%和70%乙醇中各2分钟,进行复水。
- 抗原修复:将组织切片浸入0.1 M柠檬酸-柠檬酸钠缓冲液中,高压处理约5分钟,随后冷却至室温。
- 封闭:为防止抗体非特异性结合,将组织切片在5%正常山羊血清中约37 °C孵育30分钟进行封闭。
- 一抗孵育:将p-EGFR(1:200稀释)和p-MAPK3/1(1:200稀释)一抗加入组织切片,于湿盒中4 °C孵育过夜。
- 二抗孵育:用PBS洗涤切片3次,然后将生物素标记的二抗(按生产商说明书用PBS稀释)加入切片,37 °C孵育30分钟。
- 将辣根过氧化物酶标记的链霉亲和素工作液加至组织切片上,37 °C孵育,随后用磷酸盐缓冲液(PBS)洗涤三次。
- DAB显色时,将切片与DAB显色液在室温避光孵育3分钟,随后用蒸馏水冲洗。DAB作为辣根过氧化物酶(HRP)的发色底物,在氧化后呈棕色。
- 用苏木精复染约2分钟,用1%盐酸酒精分化5秒,然后在流水下冲洗至变蓝。
- 依次将切片经低浓度到高浓度的乙醇系列脱水,二甲苯Ⅰ和二甲苯Ⅱ透明,最后用中性树胶封片。
注意:此步骤总共需要约18–24小时,包括过夜的一抗孵育。 - 每张切片随机选取三个视野(200倍),使用图像分析软件分析染色结果。采用Image Pro Plus 6.0软件,按以下步骤进行。
- 首先,将切片的图像导入软件中。
- 密度校正:为确保结果准确,需进行密度校正。
- 导航至 测量 > 校准 > 强度 > 新 > 标准可选密度 > 选项 > 图像然后,单击图像的空白区域以记录背景值,并通过单击确认 好的.
- 设置测量参数:设定测量参数以计算面积和积分光密度(IOD)。
- 点击 测量 > 计数/尺寸 > 测量 > 选择测量项目选择 面积(100) 和 IOD,然后点击 好的.
- 前往 选项,勾选确认 样品暗背景,4-连接预滤器 并点击 好的.
- 颜色选择:为准确判断阳性结果,应选择合适的颜色以区分染色区域与未染色区域。
- 点击 选择颜色 > 基于直方图 > HSI. 根据图片调整 H 值,同时保持 S 未改变且 我 在零到背景值之间。然后,通过单击确认 关闭.
- 数据收集与计算:通过点击进行数据收集与计算 测量 > 数据收集器 > 布局,其中 名称,面积(总和),以及 IOD(总和) 进行选择,然后点击 计数 > 立即采集 > 数据列表 用于导出数据以进行进一步分析或存储。
注意:这得到了每个切片中蛋白质表达的半定量测量结果,以IOD/面积表示,该比值指示了所分析的总面积中蛋白质的相对含量。
- 蛋白质印迹法
- 获取肾脏组织并切成小块,将组织块放入1.5 mL离心管中,加入预冷的蛋白裂解液(50 mM Tris [pH 7.4],150 mM NaCl,1% Triton X-100,1% 脱氧胆酸钠,0.1% 十二烷基硫酸钠 [SDS]),进行匀浆处理。
- 冰上静置30分钟,然后在13400 x g 4 °C条件下孵育20分钟。将所得样品储存在-80 °C冰箱中。
- 使用 Bradford 法测定蛋白质含量。
- 按1:4的比例将考马斯亮蓝试剂与蒸馏水混合,配制工作液。
- 设立三组——空白组、标准蛋白组和样品蛋白组。向每组中加入3 mL考马斯亮蓝工作液,空白组加入生理盐水,标准蛋白组加入标准蛋白,样品蛋白组加入提取的上清液蛋白。
- 静置混合物5分钟后,使用紫外分光光度计测定其吸光度值。
- 使用以下公式计算样品浓度:蛋白质浓度(mg/mL)=(样品吸光度值 / 标准管吸光度值)× 标准蛋白浓度 × 5。
- 向每个蛋白质样品中加入等体积的6x上样缓冲液。在100 °C下煮沸5分钟,随后分装并储存于-20 °C冰箱中,待后续使用。
- 进行标准的电泳、转印和封闭。
- 使用12%分离胶进行标准SDS-聚丙烯酰胺凝胶电泳(PAGE)。浓缩胶阶段施加100 V恒定电压,分离胶阶段施加120 V恒定电压,直至染料前沿迁移至凝胶底部。
- 在4 °C的低温室中,使用湿转系统以100 V电压将蛋白质转移至聚偏二氟乙烯(PVDF)膜上,持续2小时。
- 蛋白转膜后,在室温下用含5%脱脂奶粉的TBST溶液封闭膜1小时。
- 用含5% BSA的TBST稀释一抗EGFR(1:2,000)、p-EGFR(1:2,000)、MAPK3/1(1:2,000)、p-MAPK3/1(1:2,000)、Bcl-2(1:2,000)、BAX(1:2,000)和CAPDH(1:5,000)。将稀释后的一抗加入膜中,4 °C轻度振荡孵育过夜。
- 用TBST洗涤膜三次后,加入稀释的二抗(1:5,000),室温孵育1小时。显色反应完成后,使用ImageJ软件对目标条带进行定量分析。
- qPCR分析
- 分组:将样本分配至以下组别——对照组、DN组、伊贝沙坦组、JWSJS-L组、JWSJS-M组、JWSJS-H组。
- RNA提取:按照制造商说明书进行组织匀浆和RNA提取,随后加入氯仿,离心并沉淀RNA。
- RNA沉淀与洗涤:使用异丙醇沉淀RNA,并用乙醇洗涤。
- RNA溶解:将RNA沉淀干燥后,溶于经DEPC处理的水中。
- cDNA合成:根据制造商说明书,使用特定的反应混合物进行逆转录。
- qPCR 扩增:使用针对 GAPDH、MAPK3、MAPK1 和 EGFR 的特异性引物进行 qPCR,按照试剂盒说明书进行扩增。
引物序列如下:
GAPDH:F-5'-GCAAGTTCAACGGCACAG-3',R-5'-CTCGCTCCTGGAAGATGG-3';
MAPK3:F-5'-AGATCTGTGATTTTGGCCT-3',R-5'-TCAATGGATTTGGTGTAGC-3';
MAPK1:F-5'-CCTCAAGCCTTCCAACCTC-3',R-5'-GCCCACAGACCAAATATCA-3';
EGFR:F-5'-GGGGATGTGATTATTTCTG-3',R-5'-ATTTTGGTCTTTTGATTGG-3'。
6. 统计学方法
- 使用适当的软件(如 SPSS)进行分析,并将测量数据表示为均值 ± 标准差(s)。如果数据符合正态分布和方差齐性的条件,则采用单因素方差分析(one-way ANOVA)进行组间比较,并使用 Bonferroni 法进行多重比较。
- 若方差不齐,采用 T2 检验进行多重比较。将 P < 0.05 视为具有统计学意义。
结果
根据筛选和去重标准(OB和DL),最终从JWSJS中获得90种活性成分。其中包括20种Hedysarum Multijugum Maxim、23种Epimedium Herba、15种Smilacis Glabrae Rhizoma、16种Radix Rhei et Rhizome、4种Curcumae longae Rhizoma、15种Cicadae Periostracum以及6种Bombyx Batryticatus的成分。由于JWSJS中活性成分较多,仅列出其中20种(见表1)。经过去重后,最终共获得与JWSJS活性成分对应的396个靶点。
在筛选疾病相关基因后,经过合并与去重,最终获得3035个糖尿病肾病(DN)相关靶基因。将DN的相应靶点与药物活性成分的靶点进行比较分析,确定其交集,得到JWSJS与DN的227个共同靶点。随后绘制韦恩图(见图1A)。利用Cytoscape 3.8.0软件构建“药物-成分-靶点”网络图(见图1B),并进行拓扑学分析。各节点按度值从高到低排序,前五位的药物成分为槲皮素(quercetin)、棕榈油酸(palmitoleic acid)、木犀草素(luteolin)、山奈酚(kaempferol)和柚皮素(naringenin),前五位靶点为PTGS2、PTGS1、NCoA2、AR和ESR1。
接下来,构建了JWSJS与DN交集靶点的蛋白质-蛋白质相互作用(PPI)网络(包含196个节点和1714条边,平均度值为17.4)。此外,经过三轮筛选,获得了JWSJS治疗DN可能的关键靶点共7个:MAPK14、TP53、MAPK3、MYC、HIF1A、ESR1和MAPK1(见图1C)。
随后,进行GO功能富集分析,以推测JWSJS治疗DN的作用靶点的生物学特征。在生物过程(BP)、细胞组分(CC)和分子功能(MF)中,前10个富集条目如图1D所示。结果表明,JWSJS可通过与膜筏和膜微区中的转录因子及蛋白激酶结合,调控细胞增殖、分化和凋亡,从而对DN产生治疗作用。对参与的靶点进行KEGG通路富集分析,以探索JWSJS在DN中的潜在作用通路。前30条富集通路如图1E所示。结果显示,JWSJS治疗DN可能作用于181条信号通路,主要涉及脂质与动脉粥样硬化、PI3K-Akt信号通路、化学致癌作用、肝炎、前列腺癌、细胞凋亡、HIF-1信号通路以及TNF信号通路。
为进一步探究前30条KEGG富集通路的作用靶点,我们利用Cytoscape 3.8.0软件构建了JWSJS干预糖尿病肾病的KEGG信号通路关联网络图。结果显示,MAPK1、MAPK3、EGFR和AKT1为多条通路共同作用的靶点(见 图1F),表明这些蛋白可能在介导JWSJS对DN的作用中发挥核心作用。
为了进一步验证加味四君子汤(JWSJS)治疗糖尿病肾病(DN)的潜在作用靶点,我们接下来筛选了在蛋白质-蛋白质相互作用(PPI)网络和KEGG信号通路网络中具有高度值的三个关键靶点:MAPK1、MAPK3 和 EGFR。将这三个靶点分别与治疗 DN 的加味四君子汤(JWSJS)中排名前三的核心成分——槲皮素、棕榈油酸和木犀草素进行分子对接。筛选 PDB ID 的条件如下:(1)来源于人类;(2)构象分辨率 ≤ 2.5Å,即尽可能小;(3)构象序列尽可能完整,即结构复合物必须包含小分子配体信息;(4)晶体的 pH 值应尽可能接近人体正常生理范围35。最终确定 MAPK1、MAPK3 和 EGFR 的 PDB ID 分别为 4QTA、4QTB 和 7JXQ。
为了验证 AutoDock 软件在本研究对接系统中的可靠性36,我们首先对 MAPK1、Mapk3 和 EGFR 的三种蛋白质进行了重新对接。将三种靶蛋白原始晶体结构中的配体构象与对接后的配体进行叠加(图 2A),并计算对接后配体构象与原始晶体结构之间的均方根偏差(RMSD)值。RMSD 值分别为 1.129、1.201 和 1.877 Å,均 ≤ 2 Å,表明该对接方法可靠,可用于后续的分子对接验证。为比较并阐明核心成分的抑制潜力,以 MAPK1、MAPK3 和 EGFR 的原始配体作为对照。对接分析成功预测了木犀草素、棕榈油酸和槲皮素与三个核心靶点之间的结合能,所有结合能均为负值且小于 -637;见表 2。值得注意的是,木犀草素与 MAPK1 的分子对接具有最大的结合腔尺寸和最低的结合能。总体而言,分子对接结果表明,木犀草素、棕榈油酸和槲皮素对三个核心靶点均具有良好的结合活性(图 2B、C)。
RMSD 用于量化所选原子组相对于参考构象的平均位移变化。与此同时,RMSF 能有效表征蛋白质链上的局部变化。RMSD 曲线图(图 2D)显示,木犀草素-MAPK1 复合物和槲皮素-MAPK3 复合物的 RMSD 值在 5 ns 内趋于稳定。木犀草素-EGFR 复合物的 RMSD 值在 0–35 ns 期间呈现波动,随后在 35 ns 时达到稳定,并持续至 100 ns 分子动力学(MD)模拟结束。所有复合物在 100 ns MD 模拟结束时均保持稳定结合状态。RMSF 值由 MD 模拟轨迹评估得出:活性位点及主链中原子的微小波动表明构象变化极小,提示所述先导化合物牢固锚定于靶蛋白结合口袋的空腔内。RMSF 结果显示复合物结构的波动范围有限。
最后,我们验证上述结果 在体我们首先观察到,模型组大鼠体重显著下降,同时GSP、LDL-C、UTP和FBG显著升高(P < 0.05)。与模型组相比,厄贝沙坦组和各JWSJS组大鼠体重显著增加。GSP、LDL-C、UTP和FBG均不同程度下降(P < 0.05;参见 表3).
随后,HE染色显示,正常组的肾小球大小正常,结构规则清晰,基底膜光滑,肾小管排列整齐,无炎性细胞浸润。模型组中,肾小球出现肥大,基底膜增厚,系膜基质增多,间质可见炎性细胞浸润。各给药组的病理表现较模型组均有不同程度的改善(见图3A)。
PAS 染色显示,与正常组相比,模型组肾小球体积增大、基底膜增厚、系膜基质增多。各给药组的上述病理表现均有显著改善(见图3B)。通过透射电子显微镜观察发现,模型组肾小球基底膜较正常组增厚,系膜基质增多,足细胞足突广泛融合。各给药组大鼠的显微病变较模型组均有不同程度的缓解(见图3C)。
最后,检测了JWSJS处理的DN大鼠中总EGFR、p-EGFR、MAPK3/1和p-MAPK3/1的表达,以观察其是否发生变化。与正常组相比,模型组中总EGFR和MAPK3/1的表达无显著变化。p-EGFR、p-MAPK3/1和BAX的表达显著升高,而BCL-2的表达显著降低。与模型组相比,各给药组大鼠肾组织中p-EGFR、p-MAPK3/1和BAX的表达均显著降低,BCL-2的表达则不同程度地显著上调(图3D,E)。免疫组织化学结果进一步证实了上述发现(图3F,G)。本研究表明,JWSJS可通过调节p-EGFR、p-MAPK3/1、BAX和BCL-2蛋白的表达,减少细胞凋亡,从而对DN大鼠的肾脏起到保护作用。此外,采用qPCR检测了各组中MAPK3、MAPK1和EGFR mRNA的表达水平。结果显示,DN组的相对表达量显著高于对照组以及伊贝沙坦组、JWSJS-L组、JWSJS-M组和JWSJS-H组,进一步支持了前述结果(图3H)。
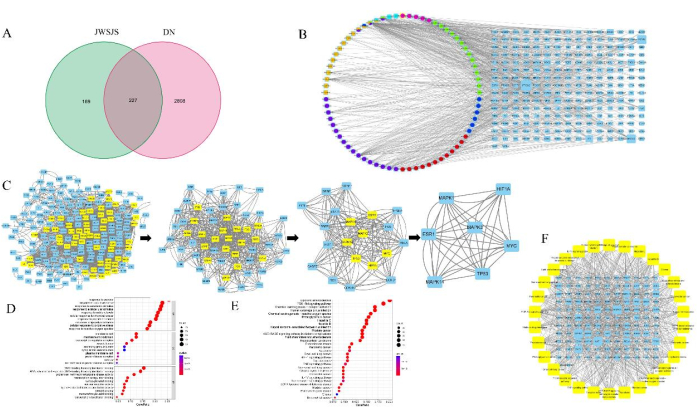
图 1:网络药理学阐明了JWSJS在糖尿病肾病中的潜在靶点和信号通路。(A)JWSJS与糖尿病肾病交集靶点的维恩图。绿色表示JWSJS组分的治疗靶点数量,紫色表示糖尿病肾病(DN)的相关靶点数量,交集部分表示共同靶点数量(即JWSJS治疗DN的靶点数量)。(B)JWSJS治疗DN的“药物-成分-靶点”网络图。浅蓝色表示JWSJS治疗DN的相关靶点;品红色表示僵蚕的活性成分;绿色表示多序黄芪的活性成分;深蓝色表示大黄根及根茎的活性成分;红色表示蝉蜕的活性成分;紫色表示淫羊藿的活性成分;黄色表示光果甘草根茎的活性成分;天蓝色表示姜黄根茎的活性成分。(C)JWSJS与DN交集靶点的蛋白质-蛋白质相互作用(PPI)网络。(D)通过治疗靶基因的本体分析鉴定出的10个最显著基因。(E)通过治疗靶基因的通路分析鉴定出的30个最显著基因。(F)JWSJS治疗DN过程中KEGG信号通路的关系网络。黄色图标代表信号通路,蓝色图标代表作用靶点,图形越大表示连接的通路越多。请点击此处查看该图的高清版本。
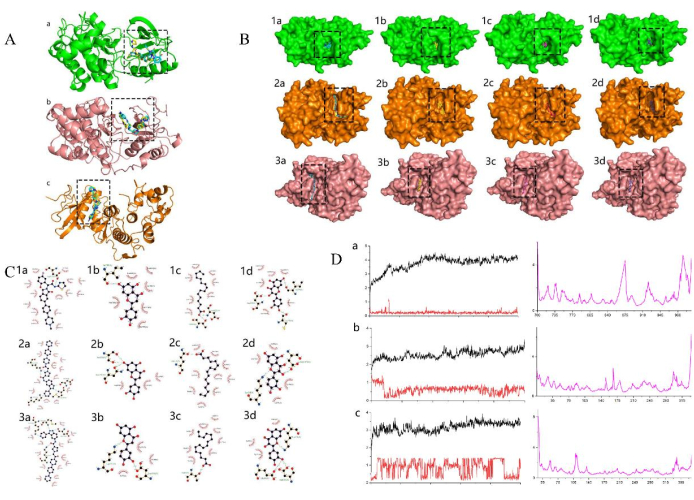
图 2:JWSJS 在治疗糖尿病肾病中的分子对接与分子动力学轨迹可视化。(A)三种靶蛋白复合物 7JXQ(a)、4QTA(b)和 4QTB(c)原始晶体结构中的配体构象与对接后配体构象的比较。绿色、橙色和粉色分别为 EGFR、MAPK1 和 MAPK3 靶蛋白。金色为原始配体分子,蓝色为对接后的配体分子。(B)JWSJS 在治疗糖尿病肾病中的三维分子对接可视化。绿色、橙色和粉色分别为靶蛋白 7JXQ、4QTA 和 4QTB。1a-3a 表示 7JXQ、4QTA 和 4QTB 与原始抑制剂(蓝色)的相互作用图。1b-3b 表示 7JXQ、4QTA、4QTB 与木犀草素(黄色)的相互作用图。1c-3c 表示 7JXQ、4QTA、4QTB 与棕榈油酸(品红色)的相互作用图。1d-3d 表示 7JXQ、4QTA、4QTB 与槲皮素(紫色)的相互作用图。(C)JWSJS 在治疗糖尿病肾病中的二维分子对接可视化。1a-3a 表示 7JXQ、4QTA 和 4QTB 与原始抑制剂的相互作用图。1b-3b 表示 7JXQ、4QTA、4QTB 与木犀草素的相互作用图。1c-3c 表示 7JXQ、4QTA、4QTB 与棕榈油酸的相互作用图。1d-3d 表示 7JXQ、4QTA、4QTB 与槲皮素的相互作用图。(D)(a)木犀草素与靶蛋白 7JXQ、(b)木犀草素与靶蛋白 4QTA、以及(c)槲皮素与靶蛋白 4QTB 复合物的分子动力学轨迹的 RMSD 与 RMSF 分析。请点击此处查看该图的放大版本。
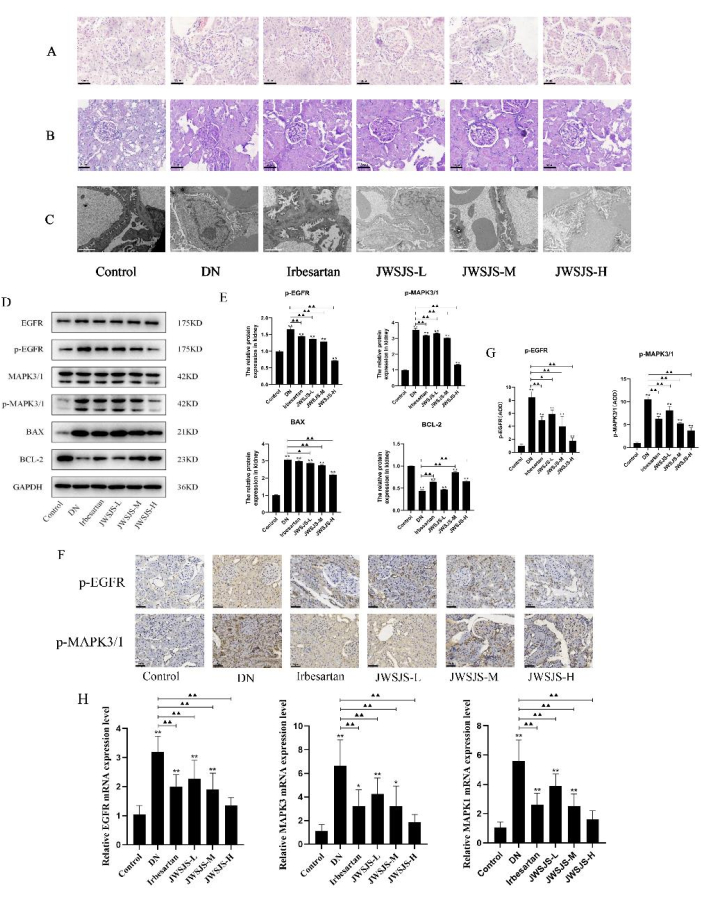
图3JWSJS 减轻肾脏损伤并抑制 EGFR/MAPK3/1 信号通路的活化 体内 实验 (AHE 染色和(B) 不同组别大鼠肾组织的过碘酸-雪夫(PAS)染色(放大倍数:200×;n = 10)。(C) 不同组别大鼠肾组织的透射电子显微镜观察(放大倍数:5000×;n = 3)。D) 通过蛋白质印迹法检测糖尿病大鼠肾组织中 EGFR、p-EGFR、MAPK3/1、p-MAPK3/1、BAX 和 BCL-2 的表达(n = 3)。(E) p-EGFR、p-MAPK3/1、BAX 和 BCL-2 表达的统计学分析。F) 六组间(n = 6)p-EGFR 和 p-MAPK3/1 表达的免疫组织化学分析。G) p-EGFR 和 p-MAPK3/1 表达的统计分析。H) 六组中MAPK3、MAPK1和EGFR mRNA表达的qPCR分析。*P < 0.05 与对照组相比。**P < 0.01 与对照组相比。▲P < 0.05 与 DN 相比。▲▲P < 0.01 与 DN 的比较。 请点击此处以查看此图的放大版本。
表1:JWSJS中部分有效成分的信息。 该表列出了各组分及其特性或性质的详细信息。请点击此处下载该表格。
表2:JWSJS核心靶点与主要活性成分的对接结果表。 该表格展示了JWSJS核心靶点与主要活性成分的分子对接研究结果,反映了这些成分与其相应靶点之间的相互作用情况,有助于揭示JWSJS的作用机制。 请点击此处下载该表格。
表3:JWSJS对糖尿病肾病大鼠体重及生化指标的影响(以均值 ± 标准差表示,n = 10)。与正常组比较:* P < 0.05;与模型组比较:# P < 0.05。请点击此处下载该表格。
讨论
本研究采用网络药理学、分子对接与 体内 动物模型。一个关键步骤是建立 "药物-成分-靶点" 网络,这对于揭示JWSJS治疗DN的潜在机制至关重要,尤其聚焦于其与EGFR/MAPK3/1信号通路的相互作用。
在本研究中,我们进行了多项改进,特别是在分子对接过程中,以提高预测的准确性。问题排查主要集中在优化以下条件: 体内 通过鉴定JWSJS的关键活性成分及其作用靶点,本研究为JWSJS作为糖尿病肾病治疗潜在候选药物的进一步研发提供了理论依据。
该研究探讨了JWSJS在减轻糖尿病肾病(DN)中肾细胞凋亡的潜在作用机制。分子对接结果显示,槲皮素、棕榈油酸和木犀草素对关键靶点(包括MAPK1、MAPK3和EGFR)具有稳定的结合活性。由于这些靶点在多条信号通路中具有共同作用,我们选择其进行进一步研究。在DN大鼠模型中,JWSJS治疗显著降低了空腹血糖(FBG)和糖化血清蛋白(GSP)水平,改善了尿蛋白(UTP)和低密度脂蛋白胆固醇(LDL-C)水平,促进了体重增加,并改善了肾组织的显微病理表现,表明JWSJS在治疗DN方面具有潜在疗效。
细胞凋亡是一种重要的细胞死亡方式,其调控失常会增加多种疾病的发生风险38。既往研究表明,DN大鼠肾组织中凋亡相关蛋白BAX和caspase-3的表达升高,且凋亡细胞数量显著增加39,40。本研究结果显示,JWSJS治疗可逆转上述变化,提示其在糖尿病条件下能够减轻足细胞凋亡。
对JWSJS潜在作用机制的进一步研究表明,其对糖尿病肾病(DN)具有多靶点、多通路的作用。我们重点研究了MAPK1、MAPK3和EGFR,因为它们富集的通路数量最多。ERK通路是MAPK信号转导通路中的关键通路,参与细胞生长、增殖、分化、凋亡以及类固醇分泌异常等多种生理和病理过程13,41,42,43。由此推断,JWSJS通过抑制EGFR/MAPK3/1信号通路,从而挽救足细胞的凋亡。
我们还发现,JWSJS 能够调节 p-EGFR 和 p-MAPK3/1 的表达,显著上调 Bcl-2 水平,同时明显下调 Bax 表达,从而减少肾细胞凋亡。既往研究也获得了类似结果。例如,Chen 报道指出,足细胞中 EGFR 的缺失可减轻糖尿病肾病44。一些研究人员发现,EGFR/ERK 信号通路可促进猪肠上皮细胞的增殖与分化9。抑制 EGFR 可下调 TGF-β 和 BAX 的表达,从而改善肾纤维化和细胞凋亡45。这些发现表明,JWSJS 是一种中药复方,在通过抑制 EGFR/MAPK3/1 信号通路辅助治疗糖尿病肾病(DN)方面具有重要作用。然而,仍需进一步研究以全面阐明 JWSJS 治疗 DN 的潜在作用机制。
本研究存在若干局限性。首先,依赖动物模型可能无法完全复制人类对JWSJS的反应。此外,尽管网络药理学预测具有一定的参考价值,但仍需通过实验数据进一步验证。有必要开展更多针对人类受试者的临床研究以证实本研究结果。其次,尽管网络药理学是分析药物与疾病关系的有用工具,但其结果基于预测而非实验数据,因此应谨慎解读。第三,JWSJS治疗糖尿病肾病(DN)的作用机制尚不明确,本研究仅聚焦于MAPK1、MAPK3和EGFR的潜在靶点。
本研究中采用的方法可应用于其他中药制剂,有望为糖尿病肾病(DN)及其他复杂疾病发现新的治疗方案。此外,该方法为传统医学与现代医学在未来药理学研究中的整合奠定了基础。尚需进一步研究以全面阐明加味四君子汤(JWSJS)治疗作用背后的分子机制。最后,本研究未探讨加味四君子汤(JWSJS)可能存在的副作用或毒性,而这是任何新药开发过程中需要重点考虑的问题。未来还需开展更多研究以评估加味四君子汤(JWSJS)的安全性,确保其在临床中的应用。
总之,本研究主要利用网络药理学、分子对接和 体内 动物验证。该研究强调实验操作细节,重点关注用于解析加味四君子散(JWSJS)与EGFR/MAPK3/1信号通路之间相互作用的方法学,以及这些相互作用如何可能减轻糖尿病肾病中的肾细胞凋亡。
披露
作者无任何利益冲突需要披露。
致谢
本研究由河北省自然科学基金面上项目(编号:H2019423037)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2×SYBR Green qPCR Master Mix | 中国武汉,Servicebio | G3320-05 | |
| 24小时尿蛋白定量(UTP) | 中国南京,南京建成生物工程研究所 | N/A | |
| 3,3'-二氨基联苯胺 | 中国上海,胡正生物科技 | 91-95-2 | |
| 全自动生化分析仪 | 日本,日立 | 7170A | |
| 无水乙醇 | 中国天津,百奥莱科 | N/A | |
| BAX一抗 | 美国,Affinity | AF0120 | 大鼠 |
| BCL-2一抗 | 美国,Affinity | AF6139 | 大鼠 |
| BX53显微镜 | 日本,奥林巴斯 | BX53 | |
| 氯仿替代品 | 中国广州,ECOTOP | ES-8522 | |
| Desmond软件 | 美国,纽约州,纽约市 | Release 2019-1 | |
| 数字恒温水浴锅 | 中国常州,金坛市良友仪器 | DK-8D | |
| EGFR一抗 | 美国,Affinity | AF6043 | 大鼠 |
| Embed-812树脂 | 美国,Shell Chemical | 14900 | |
| 空腹血糖(FBG) | 中国南京,南京建成生物工程研究所 | N/A | |
| FC型全波长酶标分析仪 | 美国,Multiskan;Thermo | N/A | |
| GAPDH 一抗 | 美国,Affinity | AF7021 | 大鼠 |
| 糖化血清蛋白(GSP) | 中国南京,南京建成生物工程研究所 | N/A | |
| 透射电子显微镜 | 日本,日立 | H-7650 | |
| 苏木精-伊红(HE)染色液 | 美国,Servicebio | G1003 | |
| Image-Pro Plus | 美国,MEDIACYBERNETICS | N/A | |
| 实时荧光定量PCR扩增仪 | 美国,Applied Biosystems | iQ5 | |
| 厄贝沙坦片 | 杭州赛诺菲制药 | N/A | |
| 异丙醇 | 中国天津,百奥莱科 | N/A | |
| JWSJS颗粒 | 广东一方制药 | N/A | |
| Kodak Image Station 2000 MM成像系统 | 美国,Kodak | IS2000 | |
| 低密度脂蛋白胆固醇(LDL-C) | 中国南京,南京建成生物工程研究所 | N/A | |
| MAPK3/1一抗 | 美国,Affinity | AF0155 | 大鼠 |
| 医用离心机 | 中国湖南,湘仪实验室仪器开发 | TGL-16K | |
| 小型转印印迹系统 | 美国,Bio-Rad | N/A | |
| Mini-PROTEAN电泳系统 | 美国,Bio-Rad | N/A | |
| NanoVue Plus分光光度计 | 瑞典,Healthcare Bio-Sciences AB | 111765 | |
| p-EGFR一抗 | 美国,Affinity | AF3044 | 大鼠 |
| 过碘酸-雪夫(PAS)染色液 | 美国,Servicebio | G1008 | |
| p-MAPK3/1一抗 | 美国,Affinity | AF1015 | 大鼠 |
| 二抗 | 美国,Santa Cruz | sc-2357 | 兔 |
| 链脲佐菌素 | 美国,Sigma | S0130 | |
| SureScript第一链cDNA合成试剂盒 | 美国,GeneCopeia | QP056T | |
| TriQuick试剂 | 中国北京,索莱宝 | R1100 | |
| 超净工作台 | 中国苏州,净化设备 | SW-CJ-1F |
参考文献
- Viigimaa, M., Sachinidis, A., Toumpourleka, M., Koutsampasopoulos, K., Alliksoo, S., Titma, T. Macrovascular complications of Type 2 diabetes mellitus. Curr Vasc Pharmacol. 18 (2), 110-116 (2020).
- Umanath, K., Lewis, J. B. Update on diabetic nephropathy: Core Curriculum 2018. Am J Kidney Dis. 71 (6), 884-895 (2018).
- Han, W., et al. Huangkui capsule alleviates renal tubular epithelial-mesenchymal transition in diabetic nephropathy via inhibiting NLRP3 inflammasome activation and TLR4/NF-kappaB signaling. Phytomedicine. 57, 203-214 (2019).
- Giralt-Lopez, A., et al. Revisiting experimental models of diabetic nephropathy. Int J Mol Sci. 21 (10), 3587(2020).
- Lu, Z., Zhong, Y., Liu, W., Xiang, L., Deng, Y. the efficacy and mechanism of Chinese herbal medicine on diabetic kidney disease. J Diabetes Res. 2019, 2697672(2019).
- Niu, H., et al. The therapeutic mechanism of PuRenDan for the treatment of diabetic nephropathy: Network pharmacology and experimental verification. J Ethnopharmacol. 293, 115283(2022).
- Gao, F., Wang, Z., Yang, B., Tan, J. Mechanism of Jiawei Shengjiang San in the treatment of membranous nephropathy based on network pharmacology. Pharmacology and Clinics of Chinese Materia Medica. 37 (5), 132-138 (2021).
- Li, W., Xie, M. Analysis of composing and application rule in the evolution of Shengjiang San. Journal of Beijing University of Traditional Chinese Medicine. 44 (10), 894-898 (2021).
- Zhang, Y., et al. Mechanism of Jiawei Shengjiang powder in inhibiting renal inflammation and fibrosis in diabetic rats based on TLR4/NF-kappaB and Raf/MEK pathways. Pharmacology and Clinics of Chinese Materia Medica. 38 (5), 20-27 (2022).
- Zhao, L., et al. Pharmacodynamic mechanism of Yishen Tongluo Formula in treatment of diabetic kidney disease based on network pharmacology and verification of key regulation pathway. Journal of Beijing University of Traditional Chinese Medicine. 45 (8), 824-834 (2022).
- Zhang, J., Liang, R., Wang, L., Yang, B. Effects and mechanisms of Danshen-Shanzha herb-pair for atherosclerosis treatment using network pharmacology and experimental pharmacology. J Ethnopharmacol. 229, 104-114 (2019).
- Chen, L., et al. Network pharmacology-based strategy for predicting active ingredients and potential targets of Yangxinshi tablet for treating heart failure. J Ethnopharmacol. 219, 359-368 (2018).
- Zhu, M., Qin, Y. C., Gao, C. Q., Yan, H. C., Wang, X. Q. l-Glutamate drives porcine intestinal epithelial renewal by increasing stem cell activity via upregulation of the EGFR-ERK-mTORC1 pathway. Food Funct. 11 (3), 2714-2724 (2020).
- Ding, Z., et al. Systems pharmacology reveals the mechanism of activity of Ge-Gen-Qin-Lian decoction against LPS-induced acute lung injury: A novel strategy for exploring active components and effective mechanism of TCM formulae. Pharmacol Res. 156, 104759(2020).
- Pinzi, L., Rastelli, G. Molecular docking: Shifting paradigms in drug discovery. Int J Mol Sci. 20 (18), 4331(2019).
- Kilkenny, C., Browne, W. J., Cuthill, I. C., Emerson, M., Altman, D. G. Improving bioscience research reporting: the ARRIVE guidelines for reporting animal research. PLoS Biol. 8 (6), e1000412(2010).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guides for the Care and Use of Laboratory Animals. , National Academies Press (US). Washington (DC. (2011).
- Ru, J., et al. TCMSP: a database of systems pharmacology for drug discovery from herbal medicines. J Cheminform. 6, 13(2014).
- Xu, X., et al. A novel chemometric method for the prediction of human oral bioavailability. Int J Mol Sci. 13 (6), 6964-6982 (2012).
- Tao, W., et al. Network pharmacology-based prediction of the active ingredients and potential targets of Chinese herbal Radix Curcumae formula for application to cardiovascular disease. J Ethnopharmacol. 145 (1), 1-10 (2013).
- Traditional Chinese Medicine and Chemical Composition databases in Chemistry Database[DB/OL]. , Available from: http://www.organchem.csdb.cn (2021).
- Halladay, C. W., Trikalinos, T. A., Schmid, I. T., Schmid, C. H., Dahabreh, I. J. Using data sources beyond PubMed has a modest impact on the results of systematic reviews of therapeutic interventions. J Clin Epidemiol. 68 (9), 1076-1084 (2015).
- Daina, A., Michielin, O., Zoete, V. SwissADME: a free web tool to evaluate pharmacokinetics, drug-likeness and medicinal chemistry friendliness of small molecules. Sci Rep. 7, 42717(2017).
- UniProt, C. Reorganizing the protein space at the Universal Protein Resource (UniProt). Nucleic Acids Res. 40 (D1), D71-D75 (2012).
- Stelzer, G., et al. The GeneCards Suite: From gene data mining to disease genome sequence analyses. Curr Protoc Bioinformatics. 54, 1-33 (2016).
- Amberger, J. S., Hamosh, A. Searching Online Mendelian Inheritance in Man (OMIM): A knowledgebase of human genes and genetic phenotypes. Curr Protoc Bioinformatics. 58, 1-12 (2017).
- Zhou, Y., et al. Therapeutic target database update 2022: facilitating drug discovery with enriched comparative data of targeted agents. Nucleic Acids Res. 50 (D1), D1398-D1407 (2022).
- Whirl-Carrillo, M., et al. Pharmacogenomics knowledge for personalized medicine. Clin Pharmacol Ther. 92 (4), 414-417 (2012).
- Law, V., et al. DrugBank 4.0: shedding new light on drug metabolism. Nucleic Acids Res. 42 (D1), D1091-D1097 (2014).
- Shannon, P., et al. Cytoscape: a software environment for integrated models of biomolecular interaction networks. Genome Res. 13 (11), 2498-2504 (2003).
- Xu, J., et al. Pharmacological mechanisms underlying the neuroprotective effects of Alpinia oxyphylla Miq. on Alzheimer's disease. Int J Mol Sci. 21 (6), 2071(2020).
- Tang, Y., Li, M., Wang, J., Pan, Y., Wu, F. X. CytoNCA: a cytoscape plugin for centrality analysis and evaluation of protein interaction networks. Biosystems. 127, 67-72 (2015).
- Yu, G., Wang, L. G., Han, Y., He, Q. Y. clusterProfiler: an R package for comparing biological themes among gene clusters. OMICS. 16 (5), 284-287 (2012).
- Trott, O., Olson, A. J. AutoDock Vina: improving the speed and accuracy of docking with a new scoring function, efficient optimization, and multithreading. J Comput Chem. 31 (2), 455-461 (2010).
- Yang, X., et al. Rational selection of the 3D structure of biomacromolecules for molecular docking studies on the mechanism of endocrine disruptor action. Chem Res Toxicol. 29 (9), 1565-1570 (2016).
- Diller, D. J., Merz, K. M. throughput docking for library design and library prioritization. Proteins. 43 (2), 113-124 (2001).
- Hsin, K. Y., Ghosh, S., Kitano, H. Combining machine learning systems and multiple docking simulation packages to improve docking prediction reliability for network pharmacology. PLoS One. 8 (12), e83922(2013).
- Godse, N. R., et al. TMEM16A/ANO1 inhibits apoptosis via downregulation of Bim expression. Clin Cancer Res. 23 (23), 7324-7332 (2017).
- Ilhan, I., et al. Irbesartan decreased mitochondrial stress-related apoptosis in cisplatin-induced acute kidney injury via regulating BCL-2/BAX signaling. Mol Biol Rep. 49 (7), 6125-6133 (2022).
- Lee, M., et al. Protective effect of hydroxysafflor yellow a on nephropathy by attenuating oxidative stress and inhibiting apoptosis in induced Type 2 diabetes in rat. Oxid Med Cell Longev. 2020, 7805393(2020).
- Schlessinger, J. Ligand-induced, receptor-mediated dimerization and activation of EGF receptor. Cell. 110 (6), 669-672 (2002).
- Gu, X., Chu, L., Kang, Y. Angiogenic factor-based signature predicts prognosis and immunotherapy response in non-small-cell lung cancer. Front Genet. 13, 894024(2022).
- Chu, L., et al. Age-related changes in endogenous glucocorticoids, gonadal steroids, endocannabinoids and their ratios in plasma and hair from the male C57BL/6 mice. Gen Comp Endocrinol. 301, 113651(2021).
- Chen, J., Chen, J. K., Harris, R. C. EGF receptor deletion in podocytes attenuates diabetic nephropathy. J Am Soc Nephrol. 26 (5), 1115-1125 (2015).
- Skibba, M., et al. New EGFR inhibitor, 453, prevents renal fibrosis in angiotensin II-stimulated mice. Eur J Pharmacol. 789, 421-430 (2016).
重印与许可
