本文描述了优化荧光显微镜成像参数的方法,以在活体线虫中以单神经元分辨率观察内源性标记货物的轴突运输过程。
本文内容
摘要
摘要
轴突运输是将轴突蛋白从神经元胞体内的合成部位运送至其在轴突中目的地的先决条件。因此,轴突运输功能的丧失会损害神经元的生长与功能。研究轴突运输有助于加深我们对神经元细胞生物学的理解。随着CRISPR Cas9基因组编辑技术的近期进展,对轴突运输货物进行内源性标记已成为可能,从而能够突破基于异位表达的运输可视化方法的局限。然而,内源性标记常伴随信号强度较低的问题,因而需要优化策略以获得可靠的数据。本文介绍了一种通过讨论成像参数和漂白方法来优化轴突运输可视化的实验方案,以增强内源性标记货物的信号,降低弥散性胞质背景的干扰。我们以绿色荧光蛋白(GFP)标记的RAB-3标记突触小泡前体(SVPs)为例,应用该方案优化Caenorhabditis elegans (C. elegans)中内源性标记轴突货物的可视化效果,阐明精细调整成像参数如何提升对内源性标记轴突货物的分析质量。
引言
在生物体的一生中,神经元依赖轴突运输将蛋白质、脂质及其他分子从胞体运送至轴突内的最终目的地。因此,轴突运输功能的受损会导致神经元功能丧失,并常参与神经退行性疾病的病理过程1,2。因此,阐明轴突运输背后的机制具有重要意义。
数十年来对轴突运输的研究揭示了介导该过程的分子机制、其组成成分以及调控机制的许多重要见解。长距离轴突运输发生在微管细胞骨架上,微管细胞骨架由部分重叠的微管多聚体构成,这些微管在轴突中通常以正端朝外的方式排列3。因此,顺向运输由朝向微管正端运动的马达蛋白——驱动蛋白(kinesins)介导,而逆向运输则依赖于朝向微管负端运动的驱动动力蛋白(dynein)。尽管运输的许多方面已被阐明,但对于许多轴突蛋白而言,它们如何被装载到运输机制中、单个运输囊泡如何组织,以及该运输过程如何被调控,目前仍不清楚3。
轴突运输最初通过放射性标记实验进行研究,其中将放射性标记的氨基酸注入胞体区室,使其整合到新生的内源性蛋白质中,随后可通过放射自显影技术在轴突区室中随时间追踪这些蛋白质4尽管放射性标记实验允许研究内源性蛋白质的轴突运输 体内,无法直接追踪单个货物分子的行为以获得机制层面的深入见解4这一局限性通过使用荧光显微镜得以克服。然而,轴突运输通常并非通过内源性蛋白进行可视化,而是通过表达荧光标记的蛋白拷贝来实现。特别是对于低表达蛋白,过表达可提供更高的信号强度,从而实现单神经元分辨率下的可视化。此外,异位表达荧光标记蛋白避免了基因组编辑所需的技术要求和挑战。相反,也有观点认为,异位表达的运输货物行为可能与内源性货物的行为存在差异。5.
基因组编辑技术的最新进展使得内源性标记策略更易于实现。因此,与外源性表达相比,采用内源性标记研究货物蛋白的轴突运输时,信号强度较低已成为主要限制因素。通过审慎设计内源性标记策略,并优化图像采集条件,可克服这一挑战。
由于线虫具有透明的身体和易于进行遗传操作的特点,它们为在活体中研究轴突运输提供了极佳的研究模型。in vivo 在本方案中,我们描述了一种可在活体秀丽隐杆线虫(Caenorhabditis elegans)中以单个神经元分辨率观察内源性蛋白质轴突运输的研究策略。我们利用由 Jorgensen 实验室构建的一种线虫品系6,通过该品系中运动神经元 DA9 内源性标记了绿色荧光蛋白(GFP)的囊泡相关 RAB GTP 酶 RAB3,来观察突触囊泡前体的轴突运输过程。本方案通过探讨不同成像参数和光漂白条件的微小调整如何改善单个运输事件的可视化效果,为优化成像条件提供了具体思路。
方案
有关如何培养和制备线虫用于活细胞成像的详细实验方案,请参考 S.Niwa 的研究7。
1. 线虫品系的构建
除了构建线虫品系外,秀丽隐杆线虫遗传学中心(Caenorhabditis Genetics Center,CGC)8 还拥有一个不断扩增的线虫品系库,其中包含内源性荧光标记蛋白的品系,可直接从其网站获取。
- 荧光标记策略的选择
- 使用线虫品系 MTS1161,该品系含有 rab-3(ox699) 等位基因6,以在 DA9 运动神经元中可视化内源性 GFP 标记的 RAB-3 蛋白(该品系将提交至 CGC)。若需可视化其他轴突蛋白,可使用 Mello 实验室的 CRISPR Cas9 编辑方案9构建表达内源性标签蛋白的线虫品系。
注意:MTS1161 利用一种重组方法,在特定细胞中以内源性方式用 GFP 标签标记 RAB-36。另一种常用方法是基于分裂荧光蛋白的重组,对于表达水平特别低的蛋白推荐使用该方法,因为它利用多个分裂荧光蛋白拷贝,使每个内源性蛋白对应的荧光信号拷贝数增加10。拷贝数最初可根据 CenGen 网站(https://cengen.shinyapps.io/CengenApp/)提供的转录组数据集进行估算11。
- 使用线虫品系 MTS1161,该品系含有 rab-3(ox699) 等位基因6,以在 DA9 运动神经元中可视化内源性 GFP 标记的 RAB-3 蛋白(该品系将提交至 CGC)。若需可视化其他轴突蛋白,可使用 Mello 实验室的 CRISPR Cas9 编辑方案9构建表达内源性标签蛋白的线虫品系。
- 用于观察轴突运输的神经元选择
- 在 MTS1161 品系中,观察 DA9 运动神经元中的 RAB-3(见图 1)。对于其他轴突运输货物,尤其是低表达蛋白,可利用 CenGen 网站确定目标蛋白表达水平最高的神经元。
注意:CenGen 项目(cengen.org)提供了一个强大的在线资源,基于覆盖秀丽隐杆线虫(C. elegans)神经系统全部 302 个神经元的大规模转录组数据集,可估算目标蛋白在多种神经元中的表达水平12,13。
- 在 MTS1161 品系中,观察 DA9 运动神经元中的 RAB-3(见图 1)。对于其他轴突运输货物,尤其是低表达蛋白,可利用 CenGen 网站确定目标蛋白表达水平最高的神经元。
2. 线虫操作与成像前准备
- 在含有细菌菌株 OP50 的线虫生长培养基平板上,于 20 °C 培养线虫,并使其生长至成虫第 1 天用于成像。
注意:在特定年龄阶段测量轴突运输非常重要,因为运输速率会随着衰老而持续下降,这一现象在不同轴突货物、神经元类型和生物体中均一致14,15,16,17,18。大多数研究使用 L4 幼虫期或成虫第 1 天的线虫,因此这些阶段提供了最丰富的数据集用于比较。 - 准备线虫用于活细胞成像:所有后续步骤均需在体视显微镜下操作,以便观察和处理线虫。
- 使用铂金丝挑取线虫,将其转移至一滴 0.5 mM 左旋咪唑(Levamisole)溶液中,并在该液滴中孵育 20 分钟。
- 使用毛发挑取器,从左旋咪唑液滴中小心地将 10–20 条线虫转移至载玻片上 10% 琼脂糖(溶于 M9 培养基)区域中的 12 µL M9 培养基液滴内。关于制备 10% 琼脂糖区域的详细步骤,请参考 S. Niwa7 的实验方案。
注意:由于每张载玻片上仅有少数线虫可在其开始缺氧前完成成像,因此转移少量线虫即可满足需求。 - 将盖玻片(22 mm × 22 mm 或 18 mm × 18 mm)覆盖在液滴上方。若需对 DA9 轴突中的运输进行成像,应将轴突调整至靠近盖玻片的位置。为此,可在盖玻片放置于琼脂糖区域上后,将其旋转 45°,使线虫翻转至背部朝下。
- 使用粘稠凝胶(如凡士林)密封盖玻片与载玻片之间的缝隙,以防止琼脂糖区域干燥,避免线虫漂移出成像视野。
注意:必须尽可能轻柔地处理线虫。过高的左旋咪唑浓度或对线虫造成的物理损伤均可能影响轴突运输。成像过程中若观察到尾部轻微抽动,表明线虫仍处于健康状态。线虫通常可保持健康,甚至在成像结束后从琼脂糖区域恢复活力。
3. 活细胞显微镜观察
注意:不同显微镜之间的精确采集参数值可能有所不同。然而,各采集参数的变化趋势应与所使用的显微镜无关。本实验方案采用配备独立漂白激光线路的转盘共聚焦显微镜(有关显微镜的详细信息,请参见材料表)。绿色荧光由488 nm激光激发,发射光通过ET525/36发射滤光片进行过滤。漂白过程使用488 nm激光线路完成。
- 确保房间温度恒定,或使用温控载物台并将温度设定为恒定值。对于线虫,将温度设置为 20 °C。
- 安装载玻片,使用 4x–20x 放大倍数的物镜定位载玻片上的线虫并记住其位置。切换至 63x 放大倍数的物镜进行图像采集。
- 拍摄单张图像以检查初始采集参数。利用采集软件的强度直方图跟踪视野中的信号强度。强度值应覆盖相机可检测最大信号的最低三分之一范围,避免像素饱和。若信号强度过低,可增强激发激光的强度。
注意:请勿使用过高的激发激光强度,以免在延时成像过程中导致荧光蛋白漂白。 - 在此调整采集参数和步骤,以优化荧光信号的检测。
- 漂白步骤的实施:使用 488 nm 激光(功率:15 mW)对将要分析的轴突区域进行线扫描漂白。漂白效率应至少达到 90%。通过比较漂白前后该区域的信号强度来确定漂白效率。
注意:漂白可通过降低来自静止颗粒以及细胞质中背景蛋白信号的贡献,从而增强运动颗粒的信号。对于细胞膜运输货物(如突触小泡前体上的 RAB-3),其细胞质组分较少,因此漂白步骤仅轻微提高运输颗粒相对于细胞质背景的信号(图 2A、D)。然而,漂白有助于在较长距离内追踪单个运输事件,并可量化暂停时间(图 2A)。 - 像素合并(Binning):采用 2 × 2 像素合并以增强单个运输事件的信号强度。像素合并将多个像素阵列整合为一个更大的像素,虽会降低空间分辨率,但能显著提升单个运输事件的信号强度,尤其适用于较暗的颗粒(图 2B、D)。
- 曝光时间:延长曝光时间以增强信号强度。增加曝光时间可提高样本信号强度,但会降低运输事件的时间分辨率。本实验中,建议连续时间点之间的时间分辨率为 300 ms 至 700 ms(曝光时间为 100–500 ms),以追踪 RAB-3 的单个运输事件(图 2C、D)。
- 漂白步骤的实施:使用 488 nm 激光(功率:15 mW)对将要分析的轴突区域进行线扫描漂白。漂白效率应至少达到 90%。通过比较漂白前后该区域的信号强度来确定漂白效率。
- 延时记录:根据蛋白的信号强度及单个运输事件的发生频率,进行至少 1–3 分钟的延时成像。完成一段延时记录后,移至下一个个体。同一载玻片上的个体总成像时间不应超过 30 分钟,以确保记录过程中的动物处于健康状态。
注意:记录过程中动物尾部出现轻微抽动,表明其仍存活。
4. 分析轴突运输数据
注意:后续图像分析步骤请使用 ImageJ/Fiji19。Fiji 能够读取所有常见显微镜软件包的数据。
- 生成时空图
- 导入数据:将延时数据文件导入 Fiji。如果无法直接导入,可先从原始软件包中将时间记录数据导出为 TIFF 文件,再将其加载到 Fiji 中。
- 漂移校正:检查动物或轴突片段在图像采集过程中是否发生移动或轻微漂移。通过运行插件 StackReg20 来校正动物移动或图像漂移。运行该插件时,选择刚体变换模式。
- 手动生成时空图:详细操作步骤见图3。使用经过漂移校正的视频生成时空图。使用分段线工具,通过左键双击分段线图标调整线宽,使其与轴突直径匹配,并沿待分析的轴突段绘制一条线。运行 ImageJ/Fiji 插件 Kymoreslicewide 生成时空图,并在其参数设置中采用线宽方向上的最大强度值。
注意:保持绘线方向的一致性(例如始终从近端到远端,或相反),有助于在时空图中准确追溯运动方向。
- 运输参数分析
- 计算运输参数:根据以下步骤,从时空图中计算事件数量、速度、运行长度和暂停持续时间。
- 追踪时空图中的运输事件:使用直线 工具在时空图上逐个追踪运输事件。将每条线保存至 ROI 管理器,并完成对时空图中所有运输事件的追踪。在 ImageJ/Fiji 中选择以下测量参数:面积、边界矩形、平均灰度值、Feret 直径。
- 计算运输参数:将结果表粘贴至电子表格中,并利用结果部分的以下列进行计算:
运行长度:将宽度(以像素为单位)乘以相机分辨率(例如,x µm/pxl),得到以 µm 为单位的运行长度。
速度:运行长度 / 运行持续时间。为确定运动事件的持续时间(秒),将高度(以像素为单位)乘以连续时间点之间的采集时间间隔(例如,x s/pixel)。
暂停时间:两个连续运动之间速度为 0 的持续时间。
事件数量:可将总事件数归一化为时空图的总长度,以计算每分钟每轴突长度段的事件数。事件可进一步分为顺向运输和逆向运输事件。为确定每个运动事件的方向性,使用 Feret 角度工具。对于初始绘线方向为从近端到远端生成的时空图,若顺向运输事件在图中表现为从右向左,则 Feret 角度 < 90° 表示顺向运输事件,>90° 表示逆向运输事件;反之则相反。
- 计算运输参数:根据以下步骤,从时空图中计算事件数量、速度、运行长度和暂停持续时间。
结果
模型系统与测量步骤概述
为了可视化突触小泡前体的轴突运输过程,我们追踪了内源性GFP标记的RAB-3。本文使用了一种近期构建的GFP::Flip-on::RAB-3品系6,该品系在细胞特异性启动子(glr-4p)驱动下表达重组酶Flippase,从而对DA9运动神经元中的内源RAB-3进行标记。DA9是一种双极性运动神经元,其胞体位于动物腹侧后部,靠近肛门区域(图1A)。该神经元具有一条较短的树突,沿腹侧神经索向前延伸;另有一条较长的轴突,向后延伸,形成一条连合支,随后沿背侧神经索向前走行,在此沿途形成突触,支配背侧肌肉和VD神经元22,23,24。我们在非突触区域观察轴突运输过程;大多数运输事件可通过单一焦平面捕捉(图1A)。为降低该区域内静止囊泡造成的背景信号(这些囊泡常在此区域暂停),我们实施了初始光漂白步骤(图1B)。连续拍摄3分钟的时间序列视频,并将非突触区域内的RAB-3信号绘制为线扫图(kymograph),以提取单个运输事件(图1C)。
调整采集参数以优化轴突运输的可视化
为了克服许多内源性荧光标记蛋白信号强度较低的问题,需要优化显微镜的采集参数。为了对运输事件进行可靠的定量分析,单个运输事件的信号强度应尽可能高于胞质背景或暂停状态、静止货物的信号。突触小泡前体常在非突触区域的特定小泡池中暂停,这会干扰新到达小泡的检测,并使其运输轨迹难以追踪7。
单次初始荧光淬灭步骤可显著降低来自囊泡池的荧光信号,从而增强对新进入囊泡运动的检测(图2A)。由于RAB-3的胞质组分极低,淬灭步骤仅轻微增强了运动中RAB-3囊泡相对于胞质背景强度的信号(图2D)。
分箱技术的使用通过将多个像素组合为单个像素,为提高单个运输事件的信噪比提供了额外的一层优化。采用2×2分箱会将空间分辨率降低一半(此处从108.33 nm/像素降至216.7 nm/像素),尽管如此,该分辨率仍足以追踪单个RAB-3运输颗粒(图2B),同时显著增强单个囊泡的信号强度(图2D)。除非需要极高的空间分辨率,否则分箱技术也可用于可视化多种其他轴突运输货物。
接下来,我们探讨了曝光时间的变化如何改善单个运输事件的信号强度。我们特别将曝光时间纳入分析,以证明即使在后续成像时间点之间间隔700 ms的情况下,高达500 ms的曝光时间仍能提供足以追踪突触小泡前体的时间分辨率(图2C,D)。
使用 Fiji 生成和分析线扫图
要生成线扫图并分析单个运输事件,请遵循图3中的步骤。
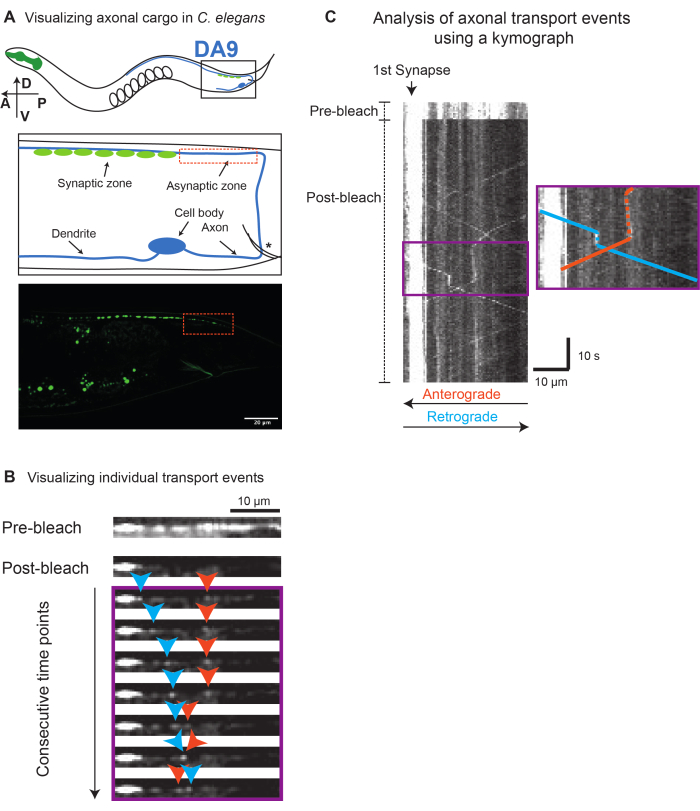
图 1:可视化内源性荧光标记 RAB-3 轴突运输的模型系统概览。(A)上图:显示线虫整体结构,标示出后-前轴和腹-背轴。运动神经元 DA9 以蓝色标出。中图:上图方框区域的放大图,显示 DA9 的区室化结构。绿色部分表示旁突触(en passant synapses),* 表示肛门。请注意,轴突继续延伸至背侧神经索,直至通过阴门。红色方框标示出无突触区域。下图:在单一焦平面上拍摄的近端轴突中内源性 GFP 标记 RAB-3 的共聚焦显微图像。注意,在无突触区域存在 RAB-3 停留时间较长的囊泡滞留区,尽管大多数 RAB-3 信号聚集在突触区域。无突触区域以红色方框标出。比例尺:20 µm。(B)用于可视化轴突运输的延时成像代表性图像。为增强对单个运输颗粒相对于静止颗粒的可追踪性,实验中首先对无突触区域进行光漂白。紫色方框内的下图展示了顺向(橙色箭头)和逆向(蓝色箭头)运动事件的示例。从上到下的各图代表连续的时间点。(C)将(B)中的延时记录绘制成轨迹图(时间-位置二维图)。斜线代表运动事件,其斜率反映运动速度;垂直线表示静止事件。紫色方框为轨迹图的放大区域,用于突出显示在(B)中所示的运输事件,并标示出顺向(橙色)和逆向(蓝色)运输轨迹。虚线垂直线表示暂停事件。请点击此处查看该图的放大版本。
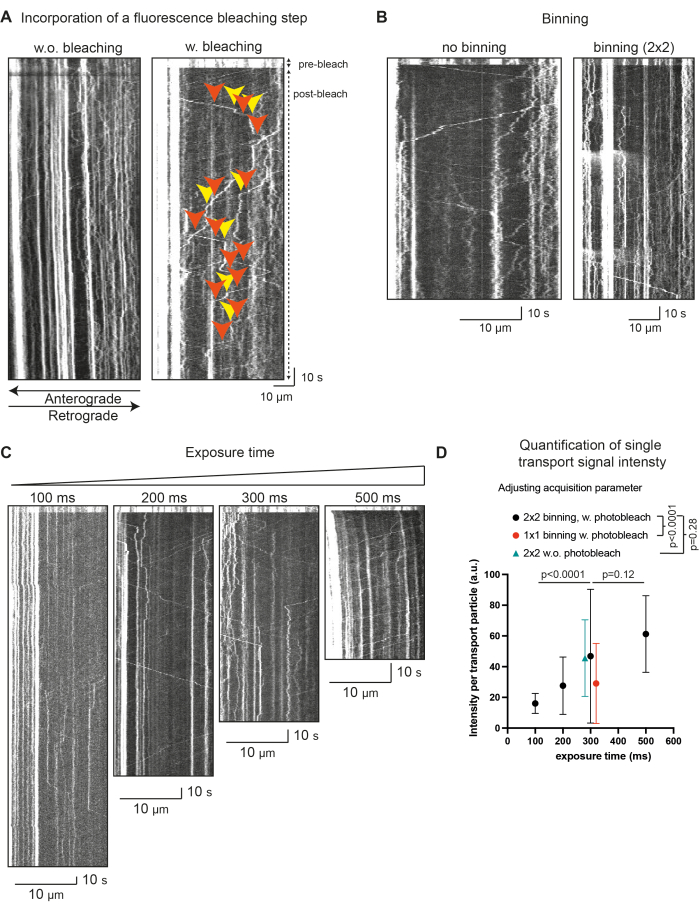
图2:优化采集步骤与参数以改善内源性轴突货物的可视化效果。 在DA9轴突的非突触区,通过共聚焦转盘显微镜对单一焦平面成像,观察内源性GFP::RAB-3。通过生成延时图像(kymograph)来可视化顺向(从右到左)和逆向(从左到右)的单个运输事件(A-C)。(A) Kymograph显示了无(左侧kymograph)或有集成漂白步骤的RAB3运输事件。注意,漂白步骤可改善连续运输事件之间暂停事件的可视化效果(由黄色箭头指示),而连续运输事件本身由橙色箭头指示。(B) 采用2×2像素合并有助于增强微弱RAB3运输事件的信号强度。图像采集曝光时间为300 ms,并结合(C) 逐步增加曝光时间(从最左侧的100 ms到最右侧的500 ms),有助于提高单个运输事件的信号强度。图像采集时采用2×2像素合并,并实施初始光漂白步骤。所有kymograph的总时长均为3分钟,且按相同比例绘制,因此由于连续成像点之间的时间间隔较长而导致采集时间点较少的kymograph,其总长度较短。(D) 对(A-C)中kymograph进行背景荧光扣除后,每个运输事件的信号强度定量分析。注意,像素合并和光漂白步骤的数据均在300 ms曝光时间下采集。统计比较使用以下样本量:100 ms(nevents= 27,nanimals= 2)、200 ms(nevents= 30,nanimals= 2)、300 ms(nevents= 88,nanimals= 6)、500 ms(nevents= 12,nanimals= 1)、300 ms无(w.o.)像素合并(nevents= 31,nanimals= 3)、300 ms有(w)像素合并(nevents= 88,nanimals= 6),以及300 ms、2×2像素合并并进行漂白(nevents= 88,nanimals= 6)和未漂白条件下的数据。每个数据点代表沿轨迹随机选择的一个时间点处,单个RAB-3运输事件在扣除背景(轴突胞质)荧光后的信号强度。曝光时间的比较采用Kruskal-Wallis检验,随后进行Dunn多重比较检验;像素合并和光漂白的比较采用成对Mann-Whitney检验。误差线表示标准差。请点击此处查看该图的放大版本。
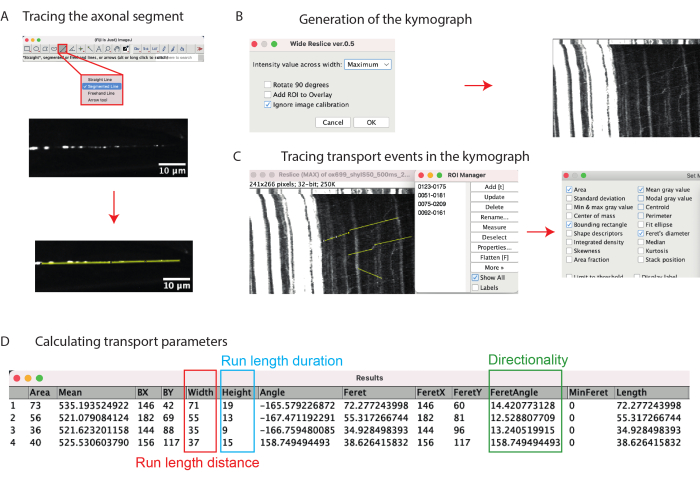
图 3:生成轨迹图并测量单个运输事件的逐步操作流程。(A)将视频记录加载到Fiji后,使用分段线工具沿待分析轴突片段的长度绘制一条线。(B)使用Kymoreslicewide插件并根据左侧面板所示参数生成轨迹图(右侧面板)。(C)使用直线工具追踪单个运输事件,并将其存储至ROI管理器。右侧面板显示用于生成结果表格的测量设置。(D)利用表格中的结果计算运输参数。方框标出了本实验方案方法部分中描述的关键参数。请点击此处查看该图的放大版本。
讨论
该方法的局限性及替代方法
在本实验方案中,我们优化了成像参数,以观察内源性标记的 RAB-3 的轴突运输过程,该蛋白与突触小泡前体相关。为了实现 RAB-3 的可视化,我们采用了近期发表的 FLIP-on::GFP::RAB-3 菌株6,并在细胞特异性启动子(glr-4p)驱动下表达重组酶 Flippase25。该策略使我们能够使用单个 GFP 荧光蛋白对 RAB-3 进行标记。由于 RAB-3 表达水平较高,并且在突触小泡前体上高度富集,因此其信号较强,个体运输事件可在较低的细胞质背景信号之上清晰可见,因而较易观察。其他轴突蛋白可能需要在显微成像参数之外进一步优化标记策略,才能实现运输事件的可视化。特别是对于低表达蛋白,分裂 GFP(split-GFP)系统提供了一种极佳的替代方案。在该系统中,将 GFP11 插入目标蛋白的内源基因位点,同时由细胞特异性启动子驱动表达 GFP1-10。该系统的一大优势在于,所需插入基因组的 DNA 修复模板尺寸较小(约 70 个核苷酸),相较于插入完整荧光蛋白开放阅读框,同源重组效率更高26,27。由于其尺寸小,可在内源蛋白中插入多个 GFP11 片段,从而增加每个蛋白分子上重组 GFP 荧光蛋白的数量,进而增强内源蛋白及其运输复合物的荧光信号强度28。
除了使用分裂GFP或GFP方法标记蛋白质外,还可利用其他基因编码的荧光蛋白,这些荧光蛋白在光化学性质方面具有各自独特的优缺点,近期已有相关比较研究29。此外,可通过在目标蛋白上内源性地标记HALO或SNAP标签,从而使用光稳定性更强的化学荧光染料30。
对于在整个轴突中大量存在的细胞质蛋白,可能需要采用条件性标记方法。我们最近通过荧光显微镜,利用时间可控的标记技术,仅对新合成的内源性血影蛋白进行可视化观察,成功实现了此类货物蛋白的成像。为了在单个神经元水平上实现条件性标记,我们将热激驱动的重组酶表达与分裂GFP系统相结合31。
如果研究目标是了解细胞器的运输过程,表达与该细胞器结合的蛋白质结构域可作为异源表达全长蛋白质的一种替代方法。
实验方案中的关键步骤
根据预期的表达水平仔细准备,以优化蛋白质的可视化效果,并选择最佳的标记策略,这对于成功可视化内源性标记蛋白尤为重要。大多数蛋白质在多种神经元中的表达水平可根据Cengen的转录组数据集进行估算13。对于表达量较低或位于细胞质的蛋白质,其运输事件的信号强度可能较弱,可通过连接多个荧光染料分子来增强信号。然而需要注意的是,在任何标记实验中,都必须确保不破坏被标记蛋白的功能。如果相应突变体已知具有特定表型,则必须验证标记操作不会引发该表型;在无已知表型的情况下,则需采用其他替代方法,具体策略需根据实际情况逐一确定。
成像轴突运输事件的一个关键步骤是动物的健康状态。在图像制备以及成像过程中,应尽可能轻柔地对待动物(例如,使用塑料细针而非金属丝转移麻痹的动物,尽量缩短在麻痹剂中的孵育时间,尽量减少成像时间以避免光毒性)。
修饰与故障排除
尽管我们旨在优化内源性蛋白质轴突运输的可视化,但采集参数的优化策略同样适用于外源表达的蛋白质。特别是当内源性表达水平过低而无法观察到运输事件时,可通过外源表达该蛋白质作为替代方案。
如果尽管内源性标记蛋白信号强度较高,但仍无法记录到运输事件,则动物可能处于不健康状态。可通过采用更温和的制备方法将动物用于显微成像来解决此问题(例如,缩短在麻痹剂中的孵育时间)。或者,运输事件本身可能较为罕见,3分钟的视频记录可能不足以捕捉到事件。可通过延长视频录制时间、增加成像动物数量,或在运输事件可能更频繁的不同发育阶段对动物进行成像,以优化对罕见运输事件的捕捉。
披露
作者声明不存在可能影响本文报道工作的竞争性或经济利益。
致谢
作者感谢Yogev实验室和Hammarlund实验室提供的技术支持、反馈意见和讨论。我们特别感谢Grace Swaim在活细胞成像方面的指导,以及Grace Swaim和Brian Swaim在实验室中首次建立手动kymograph分析方法。OG由德国研究基金会(Deutsche Forschungsgemeinschaft, DFG,德国研究基金会)资助的Walter-Benjamin奖学金(项目编号# 465611822)支持。SY由美国国立卫生研究院(NIH)资助项目R35-GM131744支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂糖 | Sigma-Aldrich | A9539 | |
| 盖玻片(22 mm × 22 mm,No.1);Gold Seal 盖玻片 | Thomas Scientific | 6672A14 | |
| 左旋咪唑 | ChemCruz | sc-205730 | |
| 显微镜:Nikon Ti2 倒置显微镜,Yokogawa CSU-W1 SoRa 扫描头,Hamatsu Orca-Fusion BT sCMOS 相机,Nikon CFI Plan Apo lambda 60x 1.4 NA 油浸物镜,Nikon 488 nm 光刺激扫描系统,配备 ET525/36 发射滤光片 | 尼康 | 转盘共聚焦显微镜 | |
| NIS-elements AR | 尼康 | 尼康 Ti2 软件 | |
| 普通预清洁显微镜载玻片 | 赛默飞世尔科技 | 420-004T | |
| <强>线虫品系 | 标识符 | 来源 | |
| rab-3(ox699[GFP::flip-on::rab-3]) (II);shyIs43(glr-4p::FLP-NLSx2;odr-1p::RFP) (II) | Park 等(DOI: 10.1016/j.cub.2023.07.052) | MTS1161 | 将存入 CGC(https://cgc.umn.edu/) |
参考文献
- Millecamps, S., Julien, J. P. Axonal transport deficits and neurodegenerative diseases. Nat Rev Neurosci. 14 (3), 161-176 (2013).
- Brady, S. T., Morfini, G. A. Regulation of motor proteins, axonal transport deficits and adult-onset neurodegenerative diseases. Neurobiol Dis. 105, 273-282 (2017).
- Kevenaar, J. T., Hoogenraad, C. C. The axonal cytoskeleton: from organization to function. Front Mol Neurosci. 8, 44(2015).
- Roy, S. Seeing the unseen: the hidden world of slow axonal transport. Neuroscientist. 20 (1), 71-81 (2014).
- Watson, E. T., Pauers, M. M., Seibert, M. J., Vevea, J. D., Chapman, E. R. Synaptic vesicle proteins are selectively delivered to axons in mammalian neurons. Elife. 12, e82568(2023).
- Schwartz, M. L., Jorgensen, E. M. SapTrap, a toolkit for high-throughput CRISPR/Cas9 gene modification in Caenorhabditis elegans. Genetics. 202 (4), 1277-1288 (2016).
- Niwa, S. Immobilization of Caenorhabditis elegans to analyze intracellular transport in neurons. J Vis Exp. (128), e56690(2017).
- Caenorhabditis genetics center (CGC). University of Minnesota. , Available from: https://cgc.umn.edu/ (2023).
- Ghanta, K. S., Mello, C. C. Melting dsDNA donor molecules greatly improves precision genome editing in Caenorhabditis elegans. Genetics. 216 (3), 643-650 (2020).
- He, S., Cuentas-Condori, A., Miller, D. M. NATF (Native and Tissue-Specific Fluorescence): A strategy for bright, tissue-specific GFP labeling of native proteins in Caenorhabditis elegans. Genetics. 212 (2), 387-395 (2019).
- Hammarlund, M., Hobert, O., Miller, D. M., Sestan, N. The CeNGEN Project: The complete gene expression map of an entire nervous system. Neuron. 99 (3), 430-433 (2018).
- Taylor, S. R., et al. Molecular topography of an entire nervous system. Cell. 184 (16), 4329-4347 (2021).
- Hammarlund, M., Hobert, O., Miller, D. M., Sestan, N. The CeNGEN project: The complete gene expression map of an entire nervous system. Neuron. 99 (3), 430-433 (2018).
- Takihara, Y. In vivo imaging of axonal transport of mitochondria in the diseased and aged mammalian CNS. Proc Natl Acad Sci U S A. 112 (33), 10515-10520 (2015).
- Li, L. B. The neuronal kinesin UNC-104/KIF1A is a key regulator of synaptic aging and insulin signaling-regulated memory. Curr Biol. 26 (5), 605-615 (2016).
- Viancour, T. A., Kreiter, N. A. Vesicular fast axonal transport rates in young and old rat axons. Brain Res. 628 (1-2), 209-217 (1993).
- Cross, D. J., Flexman, J. A., Anzai, Y., Maravilla, K. R., Minoshima, S. Age-related decrease in axonal transport measured by MR imaging in vivo. Neuroimage. 39 (3), 915-926 (2008).
- Vagnoni, A., Hoffmann, P. C., Bullock, S. L. Reducing Lissencephaly-1 levels augments mitochondrial transport and has a protective effect in adult Drosophila neurons. J Cell Sci. 129 (1), 178-190 (2016).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Methods. 9 (7), 676-682 (2012).
- Thevenaz, P., Ruttimann, U. E., Unser, M. A pyramid approach to subpixel registration based on intensity. IEEE Trans Image Process. 7 (1), 27-41 (1998).
- Neumann, S., Chassefeyre, R., Campbell, G. E., Encalada, S. E. KymoAnalyzer: a software tool for the quantitative analysis of intracellular transport in neurons. Traffic. 18 (1), 71-88 (2017).
- Hall, D. H., Russell, R. L. The posterior nervous system of the nematode Caenorhabditis elegans: serial reconstruction of identified neurons and complete pattern of synaptic interactions. J Neurosci. 11 (1), 1-22 (1991).
- White, J. G., Southgate, E., Thomson, J. N., Brenner, S. The structure of the ventral nerve cord of Caenorhabditis elegans. Philos Trans R Soc Lond B Biol Sci. 275 (938), 327-348 (1976).
- White, J. G., Southgate, E., Thomson, J. N., Brenner, S. The structure of the nervous system of the nematode Caenorhabditis elegans. Philos Trans R Soc Lond B Biol Sci. 314 (1165), 1(1986).
- Park, J., Xie, Y., Miller, K. G., De Camilli, P., Yogev, S. End-binding protein 1 promotes specific motor-cargo association in the cell body prior to axonal delivery of dense core vesicles. Curr Biol. 33 (18), 3851-3864 (2023).
- Dokshin, G. A., Ghanta, K. S., Piscopo, K. M., Mello, C. C. Robust genome editing with short single-stranded and long, partially single-stranded DNA donors in Caenorhabditis elegans. Genetics. 210 (3), 781-787 (2018).
- Paix, A., Folkmann, A., Rasoloson, D., Seydoux, G. High efficiency, homology-directed genome editing in Caenorhabditis elegans using CRISPR-Cas9 ribonucleoprotein complexes. Genetics. 201 (1), 47-54 (2015).
- Goudeau, J., et al. Split-wrmScarlet and split-sfGFP: tools for faster, easier fluorescent labeling of endogenous proteins in Caenorhabditis elegans. Genetics. 217 (4), (2021).
- Cranfill, P. J., et al. Quantitative assessment of fluorescent proteins. Nat Methods. 13 (7), 557-562 (2016).
- Fan, X., et al. SapTrap assembly of Caenorhabditis elegans MosSCI transgene vectors. G3. 10 (2), Bethesda. 635-644 (2020).
- Glomb, O., et al. A kinesin-1 adaptor complex controls bimodal slow axonal transport of spectrin in Caenorhabditis elegans. Dev Cell. 58 (19), 1847-1863 (2023).
重印与许可
