大多数啮齿类动物的行为实验最初是为大鼠设计的。由于大鼠与小鼠之间存在行为差异,这些实验有时需要针对小鼠进行修改。本文介绍了一种用于检测小鼠空间工作记忆的方法,旨在尽量减少工作记忆任务过程中小鼠所承受的压力。
本文内容
摘要
摘要
本文详细介绍了一种利用半自动八臂放射状迷宫(radial 8-arm maze, RAM)检测小鼠空间工作记忆的实验方案。RAM 是一种部分封闭的装置,由中央平台向外呈放射状延伸出8条水平且等距分布的臂,每条臂的入口可通过伺服电机控制的自动门独立调控。实验开始时,动物被放置于中央平台,并允许其在迷宫中探索,以获取位于各臂末端或特定臂末端的食物奖励。RAM 任务最初为大鼠设计,我们已将其方案优化适用于小鼠,例如增加了适应性训练步骤。在本方案中,所有臂最初均放置加糖炼乳作为诱饵,小鼠首先被依次引导进入4条经伪随机选择的臂以获取奖励(“强制运行”阶段),随后同时打开所有门,允许小鼠自由探索并寻找剩余4个奖励(“自由运行”阶段)。在强制运行与自由运行之间设置5秒延迟,以增加对工作记忆的挑战;若小鼠在自由运行阶段进入此前已访问过的臂,则记录为一次错误。当所有奖励均被获取后,任务结束。经过6天的适应期及9天的迷宫训练后,雄性C57BL/6小鼠通常可达到每日≥80%的成功率,成功率计算公式为4/(4+E),其中E为错误次数。该半自动化任务原则上可与其他 体内 电生理学、多光子显微镜或钙成像等监测方法。
引言
工作记忆1 是一种认知过程,能够在短时间内存储有限的信息,并在执行心理任务(如记忆电话号码或从不同位置记住前往目的地的路线)的规划与实施过程中对这些信息进行操作和使用。工作记忆与流体智力密切相关,后者是指快速推理和抽象思维的能力。有研究认为,工作记忆训练可以提升流体智力2。因此,工作记忆对于科学研究至关重要。
目前最常用的啮齿类动物行为实验最初是于20世纪80年代为大鼠设计的,而如今研究人员经常将这些实验方案应用于小鼠。然而,大鼠与小鼠在行为上存在持续且显著的差异3,4,5,6,7,8,9,10,11,12,13,14,15,16,17,18,19。特别是恐惧管理是一个可能影响实验结果的重要因素,因为与大鼠相比,小鼠更容易产生应激反应3,4,5,6,7,10,11,12,13,14,15,16,17,18,19。因此,在将这些实验方案应用于小鼠时,必须充分考虑二者之间的差异。在本实验方案中,我们力求在八臂放射迷宫工作记忆任务期间最大限度地减少应激因素。这通过使用小鼠追踪与迷宫控制软件精确控制门的关闭时间来实现。此外,我们避免在实验阶段结束时于中央枢纽区域捕捉小鼠。该方法使小鼠能够在选择下一个臂时,不会将该位置与被捕获的恐惧感相关联。将小鼠的捕捉延迟至迷宫中所有奖励均已被取走之后,确保了最后一次获取奖励的体验不会与被捕获的负面经历相联系。
陆地放射臂迷宫(radial arm maze, RAM)是一种广泛使用的实验装置,用于评估啮齿类动物的空间与非空间学习记忆能力,并检测其工作记忆和参考记忆。它是小鼠空间学习与记忆研究中最常用的实验装置之一20,21,22。RAM 利用啮齿类动物探索迷宫、寻找新奇事物以及通过试错方式学习空间信息的自然倾向,同时也结合了觅食行为。通过限制其饮食并在迷宫中以偏好食物作为奖励,可进一步增强这种行为倾向。目前,已有多种 RAM 装置的变体被使用,例如具有 6、8、12 或 16 个臂的迷宫,以及部分封闭或开放/高架式的装置23,24,25。现今大多数实验方案均基于 Olton 等人提出的方法20,26,但通常采用更简单的(6 或 8 个臂)迷宫设计9,24,27,28,29。在放射臂迷宫(6 或 8 个臂)中测试工作记忆比使用 T 型迷宫(2 个臂)更具优势,因为动物在前者中有更多的臂可供选择和探索。
原始的RAM由Olton和Samuelson设计20 通过使用食物诱饵作为正向强化手段来评估大鼠的空间学习与记忆能力,不同于 Morris 水迷宫和八臂放射状水迷宫等利用负向强化(即让动物浸入水中)的水迷宫实验20,30,31,32. Olton 和 Samuelson20发现大鼠在通过放射状迷宫(RAM)时对空间位置具有出色的记忆能力。他们证明了海马体参与空间信息的处理。因此,他们提出了一个概念 双重记忆系统,包括工作记忆和 参考记忆,啮齿类动物中的双重 记忆系统已被提出 此前由 Honig 报道36 基于实验 与鸽子。Olton 等人 发现海马体功能对工作记忆至关重要。这是通过在内嗅区、穹窿伞体部、海马体前方、隔区或后连合穹窿等部位制造损伤,以破坏海马体结构的主要外部纤维连接而实现的。26,33,34,35穹窿-齿状回病变未影响参考记忆26.
在现代实验方案中,动物通过连续3天、每天自由探索迷宫10-15分钟来适应环境,随后进行为期1-3周的迷宫训练,所有分支末端或固定选定分支末端放置偏好的食物,分别用于测试工作记忆,或在同一实验中同时测试工作记忆和参考记忆9,29,37。
这些实验方案通常描述得不够完整,且未充分考虑大鼠与小鼠之间的行为差异。本文中,我们详细介绍了我们的实验方案及相关经验,特别是如何根据大鼠与小鼠在恐惧管理方面的差异,避免将恐惧经历与特定地点和时间相关联。本方案适用于希望研究空间工作记忆,并将其应用于小鼠的电生理学、实时成像和组织学研究的科研人员。
方案
所有小鼠实验均事先获得伦敦大学学院伦理委员会批准,并依据英国政府《1986年动物(科学程序)法》及后续相关法规授权进行。
1. 在软件应用程序上制备自动迷宫控制程序
注意:使用了如图1A-C所示的自动化放射臂迷宫,以及图1D中的房间布局。
- 按照图2所述准备门关闭的实验流程。
- 在软件应用程序中设置习惯化阶段1的开始(图2A)。具体操作步骤如下:
- 设置试验开始和视频录制,并在软件中关闭所有臂。当软件识别到小鼠进入迷宫中央枢纽后5秒,开始追踪并打开所有门。
- 当小鼠进入某一臂且距离中央枢纽最近的门4 cm时,关闭所有门。随后立即打开小鼠所选臂的门。
- 当小鼠返回中央枢纽后,关闭该臂的门,将其限制在中央枢纽内5秒。重复此过程30分钟。
- 当30分钟结束且小鼠返回中央枢纽时,停止视频录制和追踪。
注:允许小鼠根据自身意愿自由探索迷宫。
- 习惯化阶段2(图2B)
- 在相关软件中设置试验开始和视频录制,并关闭所有门。
- 当软件识别到小鼠进入迷宫中央枢纽后5秒,开始追踪并打开所有门。
- 若小鼠每个臂至少进入两次,或经过30分钟后返回中央枢纽,则结束试验。允许小鼠根据自身意愿自由探索迷宫。
- 习惯化阶段3(图2C)
注:此阶段为阶段1和阶段2的结合。- 设置软件以启动试验和视频录制,并关闭所有门。
- 当软件识别到小鼠进入中央枢纽后5秒,设置软件控制迷宫门的开启。此时开始追踪并打开所有门。
- 当小鼠进入某一臂且距离中央枢纽最近的门4 cm时,关闭所有门,然后打开该臂的门。
- 当小鼠完全进入中央枢纽后关闭门,将其限制在中央枢纽内3秒。重复此序列30分钟,或直到小鼠每个臂至少进入一次。
- 在满足上述条件且小鼠完全进入中央枢纽后,设置试验结束。
注:允许小鼠根据自身意愿自由探索迷宫。
- 工作记忆任务(图2D、E)
- 设置软件以启动试验和录制,并关闭所有门。
- 当软件识别到小鼠进入中央枢纽后5秒,设置软件开始追踪。
- 开始强制运行阶段。以伪随机顺序依次向小鼠呈现4个臂。
- 当小鼠进入第一个臂且距离中央枢纽3 cm时,确保门关闭,并将其限制在该臂内15秒。
- 让门 打开,使小鼠返回中央枢纽。
- 关闭该门,然后打开第二个臂。
- 重复此过程直至第四个臂。
- 在强制运行阶段中,当小鼠完成第四个臂并返回中央枢纽后,将其限制在中央枢纽内5秒。
- 打开所有门,开始自由运行阶段。
- 当小鼠在收集完所有奖励/每个臂至少进入一次后返回中央枢纽时,结束试验。
2. 准备用于单只饲养的家居笼
- 为新实验设置使用标准筑巢材料的新笼子。
- 为每只实验小鼠在新笼子中放入新垫料、木屑、纸制小屋、纸制隧道、纸制筑巢条和木质咬合块。
- 放置食物加料斗并盖上盖子。
注意:若未放置食物加料斗,小鼠可能会损坏通风部件。
3. 动物饲养室中的操作、称重及饮食限制(第 -7 天至第 0 天)
- 用手轻轻地引导小鼠进入饲养笼中提供的纸制隧道。
- 用手通过纸制隧道38,39,40将小鼠从群养笼中提起,并在胸部高度保持数秒。或者,让小鼠自愿爬到手上。
注意:在行为学实验中,以最小化应激的方式处理动物至关重要。切勿通过尾巴抓取小鼠,这会对其造成显著应激。使小鼠适应实验人员同样重要。小鼠必须充分适应并保持放松状态,否则后续在迷宫中的学习效果将不佳。 - 始终采用相同的抓取方式固定小鼠。将小鼠置于天平上监测体重,并记录其体重。
注意:避免因快速移动或制造噪音而使小鼠产生应激。最好在安静环境中进行此操作,否则小鼠可能从天平或实验人员手中跳下。此外,若小鼠处于应激状态,可能出现眯眼、发出尖叫声,甚至咬伤实验人员的手41,42。 - 称重后,将小鼠放入先前准备好的新笼中。
- 在接触放射臂迷宫前一周,开始对小鼠实施限量饮食。此举可激励其在迷宫中主动觅食以获取食物奖励。实验期间的食物奖励为稀释的甜炼乳。
- 在笼中提供 2 ~ 3 g 标准饲料,并在整个实验过程中维持小鼠体重为其初始体重的 85 ~ 90%。
注意:C57BL/6 小鼠每日摄食标准饲料约 3–4 g43。 - 以夜间体重下降情况为参考,标准化次日饲料供给量。此后,每日提供足量的标准饲料,以在整个实验期间维持其体重为初始体重的 85–90%。
注意:这些动物需缓慢减重。应监测其体重及面部表情,以避免应激。 - 在饲养笼中放置装有 1 mL 稀释炼乳(奖励物;甜炼乳 : 水 = 1 : 1)的小塑料杯,直至第一阶段适应期结束,以使小鼠适应奖励物。确保小鼠摄食该奖励物。若所用小鼠品系对所提供食物表现出新奇物恐惧(neophobia),应更换奖励食物。
注意:自第二阶段适应期起,不再在饲养笼中提供奖励物。若任何小鼠的体重降至初始体重的 80% 以下,应根据 IACUC 及所在国家相关指南实施安乐死。若在首次体重检测时,某小鼠未达到所用品系的正常体重范围(8–12 周龄时为 20–30 g),则不应将其纳入实验队列,以避免后续难以维持其体重在目标范围内。
4. 将小鼠带入测试室
- 使用推车将小鼠缓慢运送到行为测试室。
- 让小鼠在推车上静置 5 分钟,期间不进行干扰。
5. 实验室设置
- 将中央枢纽区域的间接照明设置为80勒克斯(lux),使用暖白光灯泡,并在中央枢纽处播放70分贝(dB)的白噪声。注:已知中等强度的白噪声暴露可使大鼠在几何结构复杂的迷宫中表现更佳44,45。白噪声的作用似乎不仅仅是掩盖环境中不可避免的背景噪声;70分贝的白噪声可增加大鼠多个脑区的胆碱摄取,包括前额叶皮层、下丘脑和海马体(但纹状体除外)46,而RAM工作记忆的表现已知依赖于海马体、额叶皮层和前脑之间胆碱能通路的完整性32,47。此外,动物在环境中精确导航时会同时利用远端和近端视觉线索。然而,在空间学习过程中,小鼠更依赖远端视觉线索而非近端线索进行导航48。在本实验中,尽管在8臂RAM的各个臂后壁上引入了印在小纸片上的近端视觉线索,但并未减少“链式”行为(daisy-chaining behavior)。相反,几何不对称的远端视觉线索(位于房间天花板和墙壁上)能够减少链式行为,并对RAM中的空间导航至关重要。
6. 习惯化阶段1 - 无奖励(第1-2天)
注意:迷宫中不放置任何奖励物。此阶段旨在使小鼠适应迷宫的门及其发出的声音。
- 点击开始小鼠追踪和视频录制 开始 点击软件上的按钮,然后将小鼠缓慢移至迷宫,避免使其受到应激。操作时,实验者用手握住小鼠,缓慢移动并逐渐调整高度。将小鼠放置于中央枢纽区域。
注意:如果小鼠在实验者手上出现颤抖,应放慢动作,这是恐惧的表现。在中央枢纽内5秒的限制期间,小鼠会移动。在开始强制跑动阶段前,小鼠被放入中央枢纽时可面向任意一侧。 - 持续在放置于远离迷宫或低于迷宫壁高度的电脑显示器上观察小鼠的行为。若小鼠试图通过攀爬迷宫壁逃离,只需从椅子上站起以表明实验者的存在,并向其走近。 监测其表现。在最坏情况下,将小鼠推回 迷宫
注意:通常情况下,当实验人员靠近时,其衣物摩擦产生的声音会使小鼠返回迷宫。此操作需迅速完成。若实验人员持续进行该操作,小鼠在适应阶段1至3结束后会停留在迷宫内。若小鼠 repeatedly 跳出迷宫,建议将其排除于后续实验及分析之外。 - 试验结束后,从迷宫的一个臂中收集小鼠时,让小鼠自愿爬到实验者的一只手上,同时用另一只手遮住迷宫臂,防止小鼠跳离迷宫。
- 刷去小鼠粪便,并用干纸巾擦拭迷宫,以清除食物奖励的任何残留痕迹。随后用湿纸巾擦拭,再用干纸巾将迷宫擦干(约2分钟)。
- 对每只小鼠依次进行两天的上述操作。
注意:30 分钟后,小鼠可能尚未访问迷宫的全部 8 个臂。这是正常现象,不会造成问题。小鼠通常以非系统性、非顺序性的方式访问各臂,并谨慎移动,在每个臂中停留的时间不均等。在此阶段,小鼠可能会攀爬迷宫壁和/或跳出迷宫。如果发生此类情况(例如小鼠试图攀爬墙壁),实验人员应通过靠近迷宫并制造一些声响(如衣物摩擦声)使小鼠意识到其存在,从而阻止该行为。因此,可能需要仔细观察小鼠在放射状八臂迷宫(RAM)中的行为并迅速采取行动。经过数次重复该操作后,小鼠通常会留在迷宫内。如果尽管采取了所有措施,小鼠在适应阶段仍无法留在 RAM 中,则应将其从分析中剔除。
7. 习惯化阶段2 - 奖励阶段(第3-4天)
注意:此阶段旨在鼓励小鼠在迷宫中自由探索以获取食物奖励。
- 在每个臂的食物孔中各加入 70 μL 的食物奖励。
- 点击软件上的 开始 按钮启动小鼠轨迹追踪和视频录制,然后按照 6.1 节所述将小鼠放置于迷宫中央枢纽。
- 从远处通过电脑显示器持续观察小鼠行为,必要时记录其行为表现,例如攀爬迷宫壁或跳出迷宫。当小鼠每个臂至少进入两次,或已过去 30 分钟时,结束该次试验。
- 试验结束后,通过让小鼠自愿爬到实验者的手上将其从某一臂中取出,同时用另一只手遮挡该臂,防止其跳出迷宫。
- 按照 6.4 节(习惯化阶段 1)所述方法清洁迷宫(约 2 分钟)。
- 每只小鼠每天进行两次,连续两天重复此操作。
注意:在此阶段,小鼠可能出现连锁行为(daisy-chaining),但无需担忧,因为在工作记忆任务中额外增加的 4 次入臂次数可能会抑制此类行为。在此步骤中,小鼠可在不取食奖励的情况下停留在臂内。第 4 天时,小鼠应比第 3 天训练得更好,但仍可能停留在臂的中间位置。
8. 习惯化阶段3 - 奖励阶段(第5-6天)
注意:此阶段旨在使小鼠适应第一阶段和第二阶段组合环境。
- 用70 μL的奖励物将所有食物井进行诱饵处理。
- 点击软件的开始按钮,并将小鼠放置于迷宫的中央枢纽,以启动小鼠追踪和视频记录。
- 从远处持续观察PC显示器上小鼠的行为,直到小鼠至少进入每个臂一次,或已过去30分钟。若小鼠试图逃离迷宫,应按照适应阶段1(6.2)所述迅速处理。
- 试验结束后,让小鼠自愿爬到实验者的手上,同时用另一只手遮盖迷宫臂,防止其跳离迷宫,从而将小鼠从迷宫中移出。
- 按照6.4节(适应阶段1)所述方法清洁迷宫(约2分钟)。
- 每只小鼠每天进行两次,持续两天。
注意:在此阶段,最好将任何试图逃离迷宫的小鼠从分析中剔除。
9. 工作记忆任务 - 有奖励(第7天 - 第15天)
- 用40 μL的奖励物对所有臂进行引诱。将奖励物放置在每个食物井中靠近中央枢纽的位置,以使小鼠从中央枢纽难以看到。
- 点击软件的开始按钮,启动小鼠追踪和记录,然后将小鼠轻轻放置在迷宫的中央枢纽上,避免使其受到应激。
- 在中央枢纽限制5秒期间,走开并坐在远离迷宫的地方。观察小鼠的行为,并记录小鼠在迷宫中访问各臂的顺序(见补充文件1)。
- 当小鼠收集完全部八个食物奖励后,停止记录其访问臂的顺序,这标志着工作记忆任务的结束,随后让小鼠额外访问四个臂。
注意:通过此操作,小鼠在被取出前可获得稍长的自由活动时间,有助于其专注于工作记忆任务。此步骤还可强化小鼠对“奖励物一旦被取走便不会补充”的认知。 - 在完成四次额外臂访问后,在最后一次臂访问结束时,将手覆盖该臂的上方,让小鼠爬到手上,从而将其从迷宫中移出。
注意:避免在中央枢纽捕捉小鼠,以免小鼠将被捕捉与中央枢纽(即其决定下一步前往哪个臂的位置)产生关联。当小鼠熟悉任务(包括额外臂访问)后,它们可在最后一个食物井附近自由移动,或在中央枢纽停留一段时间。但应在3分钟内完成4次额外臂访问。若超过5分钟仍未完成,则将其放回饲养笼。 - 通过轻敲下一个笼子的笼壁,选择下一个笼子以调节小鼠的觉醒水平,准备下一次试验。
- 按照6.4节(适应阶段1)所述方法清洁迷宫(约2分钟)。
- 继续进行下一只小鼠的实验,并在9天内轮流对每只小鼠重复此过程6次。
注意:随着小鼠逐渐学会识别已无更多奖励或已无新臂可探索的情况,后期试验中四次额外臂访问的平均持续时间应逐渐延长。
10. 评分
- 计算 "每日成功率评分" (%) = 4(目标进入次数)/(总臂进入次数 [4 + 错误次数])× 100
注意:强制运行后,仅有四个臂内设有奖励(即目标臂)。若小鼠进入其在强制运行阶段已访问过的臂,则计为一次错误;重复进入任一臂也计为错误。 在自由运行状态下。 - 计算 "完美试验比例评分" (%) 在6次试验中 = [(完美试验次数)/ 6] × 100
注意:完美得分表示无工作记忆错误。 - 在软件中选择小鼠的速度、移动距离和加速度参数,用于分析并计算每天的平均值。分析时需排除额外的四次臂进入次数。此外,在实验结束后通过回看小鼠轨迹追踪视频,测量这四次额外臂进入的持续时间。
注意:小鼠在之后可立即快速转身 进入一个臂。不要将其计数或评分 一个条目,因其为快速纠正错误, 这意味着工作记忆是有效的49然而,如果小鼠越过臂的中点或在臂内停留超过3秒,则记录并计为一次进入。每日成功次数得分反映小鼠的学习曲线,完美试验比例得分反映工作记忆保持效率。
11. 统计学
- 若研究对照组与基因敲除小鼠品系之间的差异(如先前发表的研究50中所述),请按以下方法进行统计分析。
- 使用重复测量双因素方差分析(ANOVA)并结合事后分析(例如 Bonferroni 检验),比较对照组和实验组的结果数据[在 9 个不同时间点对每个个体进行测量]。
- 若进行组间比较,每组应至少测试 10 只,理想情况下约 20 只小鼠。当基因操作、造模损伤或药物处理的效果明显时,可使用较小样本量得出结论。
结果
本方案曾用于我们此前的发表研究,旨在利用MyRF cKO小鼠和对照组50,探究新生少突胶质细胞和髓鞘是否对空间工作记忆任务的表现具有必要性。我们发现,对照组小鼠的工作记忆任务表现有所提升,而MyRF cKO小鼠则未见改善。在野生型小鼠中,工作记忆任务可刺激并促进与工作记忆处理相关的脑区中少突胶质前体细胞(OPCs)的增殖与分化,以及少突胶质细胞(OL)的髓鞘形成。我们还曾采用T型迷宫奖励交替任务评估空间工作记忆。该任务用于检测MyRF cKO小鼠的工作记忆缺陷。然而,在接受T型迷宫奖励交替任务的小鼠组与笼内对照组之间,组织学分析未观察到显著差异。因此,我们得出结论:本研究中所呈现的方案在研究工作记忆方面比T型迷宫奖励交替任务更为有效。
每只小鼠每天进行6次工作记忆任务试验,总计持续一小时。因此,本实验方案允许每批最多8只小鼠同时进行。在早期适应阶段,小鼠在迷宫臂中的停留时间不均,运动速度较慢,并在迷宫臂末端停留较长时间。直到适应期第5天结束时,它们在各迷宫臂中的活动时间仍存在较大差异,且可在不触碰奖励物的情况下返回中央枢纽(图3A)。然而,到第6天时,动物在8–15分钟内至少进入每个迷宫臂一次,并在各个臂中停留的时间趋于一致,表明动物已适应迷宫环境,具备开展正式任务的条件(图3A,第6天下排图像,以及 图3B)。
在适应阶段,它们经常用后肢站立,并从臂部或中央枢纽向上张望。在工作记忆任务期间也观察到类似行为,但它们并不一定沿相同方向移动(例如,2 -> 3-> 5 -> 8 [顺时针] 或 8 -> 5 -> 3 ->2 [逆时针])。它们可以改变方向(例如,5 -> 4 -> 6 -> 1). 单只小鼠对选择臂的顺序没有明显的群体倾向性。在自由运行阶段,小鼠选择最后一个获得奖励的臂所花费的时间略长于选择第一个获得奖励的臂,这可能是因为在自由运行阶段的首次选择时有四个选项,而到最后一次奖励时仅剩一个选项。强制运行阶段的第一个臂至少在自由运行开始前50(15+15+15+5)秒向小鼠呈现。因此,若无工作记忆错误,该工作记忆任务并不容易完成。 补充视频 1 显示一只小鼠在工作记忆任务训练第8天完成了一次完美试验。
无论采用哪种评分系统,我们均发现小鼠在为期9天的RAM测试期的前3天表现几乎持平,但此后显著改善(图4A、B)。经过6天的适应期和9天的迷宫训练后,雄性C57BL/6小鼠通常从第8天起每日成功率得分稳定达到≥80%,该得分定义为4/(4+E),其中E为错误次数。自由运行期间的平均行进距离随时间逐渐缩短,但平均速度和加速度则日间相对稳定(图4C–F)。小鼠可能在额外进入四次迷宫臂期间形成了被捕获的恐惧记忆,这可能是实验后期小鼠停留时间延长的原因之一(图4G)。
在本实验方案中,适应期持续6天,这有助于使动物的生物钟适应实验条件,即使动物饲养设施中的光/暗周期未被反转。

图1:RAM 规格与特性 (A从顶部安装的CCD和侧面观察的迷宫视图及其尺寸。B食物井低于迷宫底面1.5 cm,以确保小鼠无法从迷宫表面看到其中的内容 >10 cm 远处。 (C迷宫区域设置。图中显示中央枢纽及第1至第8臂。D实验房间示意图及外部视觉线索,附房间照片。 请点击此处以查看此图的放大版本。

图 2:迷宫控制程序的流程图。(A)适应阶段 1(第 1 和第 2 天)。(B)适应阶段 2(第 3 和第 4 天)。(C)适应阶段 3(第 5 和第 6 天)。(D)工作记忆任务(第 7–15 天)。(E)工作记忆任务范式的示意图。小鼠依次进入伪随机选择的四个强制运行臂,在中央枢纽内被限制 5 秒后,再进行自由运行以获取剩余的奖励。请点击此处查看该图的放大版本。

图 3:6天适应期间的热图与鸟巢图。(A)三只小鼠在适应期第1至第6天的运动轨迹热图。在适应期第3至第6天,每只小鼠每天进行两次试验;上方热图显示第一次试验,下方热图显示第二次试验。(B)适应期第6天的鸟巢图。上方三幅为小鼠1、2、3的第一次试验,下方三幅为第二次试验。下方表格列出了这三只小鼠各次试验的持续时间。请点击此处查看该图的放大版本。

图4:RAM工作记忆任务。(A)每日平均成功率(%),计算公式为 [4 /(自由探索阶段的入臂次数)× 100]。每天的成绩取6次试验的平均值。(B)任务进行9天期间的完美试验得分。(C)个体小鼠行进距离及平均值。(D)任务中小鼠的个体奔跑速度及平均值。(E)小鼠的个体加速度及平均值。(F)小鼠的个体减速度及平均值。(G)额外4次入臂访问的个体持续时间及平均值。请点击此处查看此图的放大版本。
补充视频 1:小鼠在工作记忆任务训练的第 8 天完成了一次完美的试验。请点击此处下载此文件。
补充文件 1:示例记录表。在观察小鼠行为的同时,记录其前肢访问的顺序。请点击此处下载该文件。
讨论
在放射状迷宫中训练和测试工作记忆
工作记忆是一种认知过程,能够在短时间内保持有限数量的信息,并在计划和执行心理任务时对其进行操作和利用。例如,记住在远程位置的门禁密码,或记住通往特定目的地的路径。双N-back任务和空间跨距任务是常用的人类视空间工作记忆测试任务,受试者需要记忆刺激的位置、身份及其时间顺序。Takeuchi等人发现,在人类成功完成工作记忆任务(包括双N-back任务)的训练量与其使用MRI研究中胼胝体体部前段的分数各向异性增加呈正相关51。在我们之前的研究50中,采用本文所述的实验方案,我们发现参与工作记忆处理的脑区(包括被认为与注意力相关的前扣带皮层)中的髓鞘化少突胶质细胞在胼胝体前部及其他脑区有所增加。少突胶质细胞的增加与其工作记忆任务表现密切相关,这与Takeuchi等人在人类中的研究结果一致50,51,52。然而,仍需进一步研究人类与小鼠之间在心理过程(例如电生理活动)上是否存在相似性。工作记忆与注意力密切相关,它与人类“流体智力”的测量指标相关,并对学习至关重要,因此具有重要的研究价值。Olton和Samuelson描述了一种用于训练和评估大鼠空间记忆的8臂放射状迷宫(RAM)任务20。在自由选择实验中,他们在所有迷宫臂末端放置0.1 g大鼠饲料,且在测试过程中不补充食物,因此每次测试最多只能获得8次奖励。所有迷宫臂均开放,大鼠在实验期间可立即进入任意臂。由于食物奖励不会被补充,大鼠必须依赖工作记忆避免重复进入已访问过的臂,以在任务结束前尽可能多地获取奖励。每只大鼠从中央枢纽开始实验,可自由选择进入任一臂获取食物奖励,直到完成16次臂选择或持续10分钟为止。Olton等人统计了大鼠在前8次选择中进入的不同臂的数量,发现所有大鼠在10天内平均选择超过7个不同的臂20。我们尝试了类似的方案用于小鼠,发现小鼠与大鼠不同,在最初几天表现出“链式行为”(daisy-chaining),且之后并未改变其策略,从而规避了工作记忆评估的目的。因此,我们选择在小鼠每次进入迷宫臂之间将其限制在中央枢纽内,期望这种限制能够防止其出现链式行为。
Olton 等人将大鼠限制在中央枢纽内 1 分钟或 15 秒,以干扰其选择序列。这阻止了它们持续沿顺时针或逆时针方向在迷宫中行进的通常倾向。20,53如果对任一臂的选择是随机的、概率均等的,且完全独立于先前的选择,则该实验属于经典的“占用问题”示例20,因此概率 p(n,8) 选择的 n 在连续八次手臂访问中,不同的手臂为: p(1,8)=4.8×10⁻⁷, p(2,8)=4.2×10⁻⁴, p(3,8)=0.019,p(4,8)=0.17,p(5,8)=0.42,p(6,8)=0.32,p(7,8)=0.067,p(8,8)=0.0024。根据这些概率,可以计算出选择不同臂的平均偶然概率为5.3(期望值 = 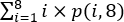 = 5.25;5.3/8 = 66%)(共8个臂)。Olton 等报道,在为期10天的训练期间,大鼠在第1至5天平均进入5.7/8个不同臂(71%;范围:4.2–6.6),在第6至10天增加至7.6/8个不同臂(95%;范围:7.2–8.0)20,显著高于随机水平,表明大鼠利用工作记忆来避免已无食物的臂。我们尝试在小鼠中采用类似方法,在每次进入臂之间将其限制在中央枢纽区域5秒。在第1至5天期间,小鼠平均每8臂试验进入5.7/8个不同臂(71%;范围:5.2–5.8;11只C57BL/6小鼠),第6至10天期间为5.9/8个臂(74%;范围:5.7–6.5;11只C57BL/6小鼠)。因此,在为期10天的实验中,小鼠无法有效学习或学习进程极为缓慢,其寻找奖励的表现未能显著超越随机水平。因此,上述方案被认为不适用于小鼠,转而采用“强制运行/自由运行”范式,类似于Sasaki等人对大鼠所描述的方法。27
在 Sasaki 等人的实验方案中27所有臂在实验开始时均放置诱饵,且奖励物不补充,每只大鼠最初被限制在开放高架八臂放射迷宫的中央枢纽区域。随后,大鼠被依次释放进入4个预先选定的臂,每次进入一个臂,且在进入各臂之间不将其限制在臂内或中央枢纽区域(称为“强制运行”)。在完成4次th 臂访问后,大鼠会返回中央枢纽,此时所有门立即打开,允许大鼠自由进入任一或全部臂(“自由运行”)。为了在自由运行期间以最高效的方式收集所有剩余的食物奖励,动物需要记住并避免其在强制运行或自由运行中已经访问过的臂。我们采用了一种非常相似的方法(图 2E) 与小鼠进行实验。在佐佐木等人的放射状迷宫(RAM)训练中,每天训练开始前均有10分钟的适应期。27 用一个为期6天的单次适应期取代了之前的适应程序,该适应期在训练前进行。另一项修改是在每次试验中,当所有奖励均已被获取后,允许小鼠额外进入迷宫臂四次。这一调整旨在强化以下概念:此前已访问过的迷宫臂不会再补充奖励。此外,由于小鼠会学习“避免遗憾”54,55,这可能会抑制小鼠在下一次实验中出现菊花链式行为,因为在此后的四次额外臂访问期间,此类行为将不再获得奖励。增加这四次额外臂访问的另一个原因是为了防止小鼠将成功获取所有奖励与任务结束时被实验人员抓取可能带来的恐惧体验相关联。在四次额外臂访问期间被抓取可能导致小鼠形成恐惧记忆,这可能是它们在实验后期花费更多时间的原因之一图 4G)。事实上,如果小鼠在试验中进行了额外的四次臂访问,则会中断串行访问行为。此外,在强制运行期间,小鼠在每个臂内被限制15秒,随后在中央枢纽区被限制5秒,然后才打开所有门以开始自由运行。如果不将小鼠在中央枢纽区进行限制,小鼠倾向于如上所述进行串行访问。
在强制运行阶段,我们从一组包含五个四臂伪随机序列中进行选择,每个序列中相邻臂的数量不超过三个。这些序列为(1,3,5,7)、(2,4,5,8)、(1,4,5,7)、(2,3,4,7)、(1,2,5,6),以及它们的不同臂顺序和旋转变体,臂编号从顶部开始顺时针方向依次为1至8(图1C)。在RAM测试的9天后适应阶段,每只小鼠每天进行六次试验(一次试验 = 强制运行 + 在中央枢纽内禁闭5秒 + 自由运行)。在自由运行阶段,若某只小鼠仅进入四个臂即取回强制运行后剩余的全部四个奖励,则该次试验被称为“完美试验”。它们在9天训练期间的表现通过“每日成功率评分”进行量化,计算公式为4/(4+E),其中E为自由运行期间的错误次数,或“完美试验”所占的比例(即E=0)。例如,若某只小鼠在自由运行中需要7次臂进入才能取回剩余的4个奖励,则其“每日成功率评分”为4/7 = 0.57 或 57%,而一次完美试验在此评分标准下的得分为100%;若某只小鼠当天完成了5次完美试验,则其完美试验比例评分为5/6 = 83.3%。
通过菊花链式策略实现的日成功率分数,针对所采用的每种四臂强制运行模式(见前一段),在假设小鼠从RAM的8个臂中任意一个随机开始自由运行的前提下,手动计算得出。菊花链式策略在各个独立的强制运行臂模式下,多次试验的平均得分为53%至56%,所有臂模式总体平均约为55%。通过菊花链式策略获得满分(100%)的概率为零,而通过随机访问臂位获得满分的概率为 <1%(4/8 × 3/7 × 2/7 × 1/7 = 0.87%),假设小鼠从不返回其刚刚离开的臂。因此,每日平均成功率得分(>80%)和完美试验得分的百分比(>60%)达到的水平,该数据来自小鼠在为期9天测试期的最后2天图 4A,B只有使用基于工作记忆的策略才能始终如一地实现这一目标。
熟悉任务的小鼠在吃完所有奖励后,倾向于在最后一个食物井或中央枢纽区域逗留,并且在任务结束时的额外四次臂访问中也倾向于花费更多时间(图 4G),表明它们已学会“每个臂仅包含一个且唯一的奖励”这一规则,并能够记住自己已访问过所有可用的臂。对于与本研究使用的小鼠(C57BL/6)不同遗传背景的小鼠,实验结果可能会有所不同,因为遗传背景在行为学实验中具有重要影响56,57,58然而,在我们之前的研究中50使用混合C57BL/6、CBA、129P2背景但经C57BL/6J小鼠回交的小鼠,采用本文所述方案后,其工作记忆任务表现显著改善,在自由运行阶段采用链式行为的小鼠数量减少。Koike等59 报道指出,所有129小鼠近交亚系均携带一种 Disc-1 由外显子6中25 bp缺失组成的缺失多态性 Disc-1 导致DISC-1蛋白发生移码和截短,影响其功能60,61该突变在T型迷宫延迟交替任务中被研究时,导致工作记忆受损。59,另一种由食欲驱动的“赢-转”迷宫任务,这可能解释了为何在我们之前的研究中所使用的对照小鼠50 工作记忆得分略低于近交系C57BL/6小鼠。我们始终选用与其年龄和品系相符的正常体重范围内的小鼠,以避免在维持其体重于85%至90%过程中出现困难。由于早期过度喂养,窝仔数可能影响NMRI品系小鼠的空间记忆和类似焦虑行为。62. 较小的产仔数会导致 NMRI 和 C57BL/6 小鼠品系的过度喂养及体重增加。然而,这两个品系在解决空间学习任务方面表现出差异。C57BL/6 小鼠在小产仔数组与对照组之间未表现出学习能力的差异,而 NMRI 小鼠在 Morris 水迷宫(MWM)测试的学习阶段表现出显著的认知功能损害,在 Y 迷宫自发交替实验中也表现出轻微损害,但差异未达到显著性。此外,在 NMRI 品系中,小产仔数显著降低了海马脑源性神经营养因子(BDNF)的蛋白水平,并在 MWM 和 Y 迷宫测试后显著提高了海马白细胞介素-1β(IL-1β)的蛋白含量。然而,这些变化在 C57BL/6 品系中未被观察到。当在较小产仔数条件下饲养时,NMRI 小鼠品系表现出焦虑样行为的显著增加以及应激诱导的皮质酮水平升高;相比之下,C57BL/6 品系在小产仔数条件下则表现出焦虑样行为和皮质酮水平的降低。因此,在设计行为学实验时,必须考虑小鼠品系的产仔数因素。
大鼠与小鼠之间的行为差异
大多数认知任务最初是为大鼠设计的,此外,空间学习/记忆在大鼠中也得到了广泛研究。由于当前转基因和基因组编辑技术在小鼠中的优势,研究人员常将为大鼠设计的实验方案应用于小鼠。然而,大鼠与小鼠之间存在持续存在的行为差异3,4,5,6,7。例如,它们在偏好上有所不同(大鼠倾向于社交偏好,而小鼠倾向于食物偏好)3,并且在完成不同迷宫任务(水迷宫或陆地迷宫)时采用不同的策略4。此外,小鼠在8臂放射状迷宫(8-arm RAM)中通常需要更长时间才能达到良好的空间学习得分4,8,9,这也是小鼠通常被认为在空间学习任务中表现不如大鼠的原因之一。
大鼠和小鼠在总体行为/特性上也存在差异,包括它们对压力或恐惧管理的反应3,4,5,6,7,10。例如,先前的研究发现,青春期小鼠的恐惧消退学习能力较差11,12,13,14,而大鼠则未表现出此现象15,16,17,18。此外,与大鼠相比,小鼠更容易受到压力影响,且不喜欢被人抓握;而大鼠在适应抓握后,显然会享受操作者对其的搔抓刺激,并主动与操作者互动以获得更多搔抓19。因此,在研究小鼠行为时,恐惧管理是一个需要重点考虑的因素。此外,Borrow 等人63报道,慢性可变压力会降低催产素 mRNA 水平,并增加室旁核中催产素神经元的胞体体积。另外,近期研究表明,使用隧道法抓取小鼠可减轻其压力,并改善行为实验中的表现38,39,40。因此,在行为实验期间或之前,应避免使小鼠产生压力。
小鼠不喜欢暴露在开阔环境中,例如在敞箱实验或高架十字迷宫中,它们更倾向于进入封闭且较暗的区域64,65。在放射状迷宫(RAM)中,中央平台是最为开阔的空间,小鼠在此决定接下来进入哪一个臂。如果小鼠在中央平台感到焦虑,可能会分散注意力,导致任务表现下降。因此,我们决定在其中一个放射臂内捕捉小鼠(见操作步骤部分),而不是在中央平台,以避免小鼠将中央平台与恐惧经历联系起来。
在探索八臂放射状迷宫(8-arm RAM)以获取食物奖励时,大鼠从某一臂离开后,通常会以直角转向下一个臂,跳过中间的臂,很少按顺序连续访问各臂(我们称之为“串联式访问”);也就是说,大鼠倾向于按照1、3、5、7的顺序访问,而非1、2、3、4的顺序20,53,66。相比之下,小鼠常采用串联式访问策略,这可能与其体型较小和身体灵活性较高有关。对小鼠而言,串联式访问是一种获取食物奖励的较高效策略,但对研究者测试空间工作记忆而言却存在明显缺陷,因为它规避了实验的初衷67。然而,应激暴露可能影响学习能力并改变学习策略68。由于采用串联式访问策略可能提示动物处于应激状态,因此确保小鼠在实验过程中保持无应激状态至关重要。我们将当前的实验方案描述为在工作记忆任务期间对小鼠无应激,因为小鼠未表现出串联式访问行为。
已知小鼠在走迷宫时更依赖远端视觉线索而非近端视觉线索48,69,70。我们发现,在所有臂后方墙壁上粘贴印有额外近端视觉线索的纸张,并不能减弱这种行为,这与Olton等人关于大鼠的研究结论一致20。然而,在一项实验中,将信标作为迷宫内线索放置于目标臂处,相较于迷宫外线索,更能帮助小鼠完成六臂放射状迷宫中的参考记忆和工作记忆测试任务71。此外,不同小鼠品系具有不同的视觉能力72,但其在巴恩斯迷宫中测得的视觉空间学习能力和记忆并不一定反映其实际视觉能力,提示视觉能力较差的小鼠品系(如BALB/c)可能依赖不同的脑部机制。因此,实验人员需要根据实验需求仔细考虑所使用的线索类型。
减少小鼠在抓取过程中的焦虑
已知操作应激会对动物的生理和行为产生显著影响73,74,75,76,77。此外,Sandi 等人通过在依赖海马体的水迷宫任务中使用雌性猫作为应激源,在最后一次学习试验与探测试验之间对大鼠进行测试,发现急性应激引起的空问记忆障碍与海马体和前额叶皮层中神经细胞黏附分子(NCAM)表达降低相关78,提示海马体和前额叶皮层对高水平应激较为敏感。因此,减少实验动物的应激/焦虑对于避免动物实验内部及之间的不可解释变异至关重要。特别是工作记忆任务要求动物在实验过程中保持专注,因此必须避免不必要的干扰。已发表的大鼠工作记忆测试方案,或同时测试工作记忆与参考记忆的方案,通常未包含一些重要细节,例如实验人员在任务结束后如何、何时以及从何处将动物从迷宫中移出。由于小鼠与操作者之间的社会性互动弱于大鼠,且更容易产生应激反应,因此这些细节在小鼠实验中尤为重要。啮齿类动物能够形成情景记忆,这是一种包含时间、地点及相关情绪记忆的外显性长时记忆形式79,80,81。因此,我们在放射状臂迷宫(RAM)中并未在小鼠获取全部食物奖励后立即将其移出迷宫,而是允许其继续进行四次无奖励的臂部访问。此举旨在防止小鼠将成功获取全部奖励与可能引发恐惧的被实验者捕捉经历相关联,这一点在RAM学习的早期阶段尤为重要。此外,额外的四次无奖励臂部访问有助于强化“小鼠先前访问过的臂内食物奖励不会被补充”的认知。如果操作过程对小鼠而言不具显著应激性,则它们会更频繁地与实验者互动38。为避免应激,在RAM实验开始时,应使用在分组饲养转移至单独饲养时即已提供于笼内的纸管从家养笼中提起小鼠38;或在实验前于家养笼中操作小鼠时,让其自愿爬上实验者的手掌,并在将其从家养笼带往迷宫的过程中保持此方式。在实验结束时从迷宫中取回小鼠时,不应在迷宫内追逐它们,而应一手遮挡迷宫臂入口,同时另一手覆盖该臂以防止小鼠跳出迷宫,待小鼠自愿爬上手后再进行捕捉。这种方法可减少因在迷宫内被追逐或被尾部抓取而产生的应激。就小鼠而言,男性实验者有时比女性实验者更容易引发应激反应82。然而,通过注意上述减应激操作步骤,发现男性实验者亦可顺利开展RAM测试。由此可见,如何操作小鼠更为关键。
性别差异
本研究中仅使用雄性小鼠,原因是不同物种(啮齿类和人类)在认知、学习和记忆方面存在由性别带来的多种影响,且雄性和雌性在应激应对反应上存在差异63,83,84,85,86,87。然而,在将啮齿类动物的研究结果外推以评估其对人类的潜在应用价值时,研究两性均具有重要意义。美国国立卫生研究院(NIH)及其他资助机构的指南也建议在动物实验中同时使用雄性和雌性动物。
该方案的优势
我们半自动化的八臂放射迷宫是一种封闭式迷宫,具有不透明的白色亚克力壁,但无顶盖(参见 图1A (用于尺寸测量)。在穿越迷宫时,小鼠无法看到实验者,这在具有透明墙壁或开放式高架臂的迷宫中可能构成干扰;但它们可以看到迷宫上方远处的外部视觉线索(参见 图1)。此外,原则上,本方案适用于实时 体内 成像与电生理记录,因为迷宫上方无需布线,小鼠能够高效地学习该任务。
未来方向
当前方案从适应期到工作记忆任务结束共持续15天。我们执行该方案时未在周末中断;然而,在6天的适应期后安排一个周末休息,可能不会显著影响后续9天的工作记忆任务。但在9天的工作记忆任务期间安排周末休息,可能会延缓小鼠的学习进程。因此,配备两名经过良好训练、能够熟练处理小鼠的实验人员,有助于减轻实验人员的压力,同时不减慢小鼠的学习速度。根据图4A、B所示,前3天至关重要,因为小鼠在第4天之后平均可完成超过一次完美试验。因此,建议在最初3天内避免中断。如果目标小鼠完成工作记忆任务过于轻松,可能需要延长强制运行后的限制停留时间。这些参数需根据具体实验情况 individually 调整。
披露
作者声明无利益冲突需要披露。
致谢
我们感谢沃尔夫森生物医学研究所的同事们在讨论中提供的帮助,感谢牛津大学的大卫·班纳曼(David Bannerman)在小鼠行为学方面的建议以及对论文初稿的审阅。我们还感谢马修·格里斯特(Matthew Grist)在技术与行政方面的支持。本研究由惠康信托基金 [108726/Z/15/Z 和 214286/Z/18/Z] 以及 Gerald Choa Neuroscience Institute [PJ8425013] 资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 动脉钳或钳子 | 任何 | N/A | 用于切割标准饲料 |
| C57BL/6J小鼠 | 杰克逊实验室 | 000664 | 2~3个月大 |
| 炼乳(Carnation) | Nestle | N/A | 在任务中用作奖励 |
| 蒸馏水 | 任何 | N/A | 用于炼乳的清洗和稀释液 |
| EthovisionXT13 | Noldus | N/A | 控制迷宫门并追踪小鼠 |
| 多体位点模块 | Noldus | N/A | 用于多身体部位追踪 |
| 试验 &硬件控制模块 | Noldus | N/A | 用于试验 &硬件控制 |
| I/O 盒 | Noldus | N/A | 控制迷宫门 |
| 迷宫外视觉线索 | 任何 | N/A | 用于小鼠迷宫定位 |
| 高分辨率相机 | Tracksys | N/A | 用于小鼠追踪与拍摄 |
| 画笔 | 任何 | N/A | 用于清洗 |
| 纸隧道 | 任何 | N/A | 用于小鼠操作 |
| 纸制圆顶屋 | 任何 | N/A | 用于筑巢 |
| 纸张嵌套条纹 | 任何 | N/A | 用于筑巢 |
| Pipetteman P1000 | Gilson | F144059M | 为家庭笼舍提供稀释的炼乳 |
| P1000 吸头 | 任何 | 任何 | |
| Pipetteman P200 | Gilson | F144058M | 用于迷宫诱饵 |
| P200 吸头 | 任何 | 任何 | |
| 放射臂迷宫 | Tracksys | N/A | 定制 |
| 房间灯具 | 任何 | N/A | 为了确保迷宫内光照均匀 |
| 小型塑料杯 | 任何 | N/A | 为家庭饲养笼提供稀释的炼乳 |
| 白噪声扬声器 | 任何 | N/A | 用于播放白噪声 |
| 标准饲料 | 任何 | N/A | 饮食限制 |
| 纸巾 | 任何 | N/A | 用于清洗 |
| 可调焦透镜 | Tracksys | N/A | 5-50 毫米,手动对焦,手动光圈 |
| 木质咬口器 | 任何 | N/A | 用于筑巢 |
| 50 ml 离心管 | Falcon | Falcon™ 352070 | 用于将炼乳与蒸馏水按1:1比例混合 |
参考文献
- Baddeley, A. Working memory. Science. 255 (5044), 556-559 (1992).
- Wang, L., Sheng, A., Chang, L., Zhou, R. Improving fluid intelligence of children through working memory training: The role of inhibition control. Front Psychol. 13, 1025036(2022).
- Reppucci, J. C., Brown, L. A., Chambers, A. Q., Veenema, A. H. Wistar rats and C57BL/6 mice differ in their motivation to seek social interaction versus food in the Social versus Food Preference Test. Physiol Behav. 227, 113162(2020).
- Whishaw, I. Q., Tomie, J. Of mice and mazes: similarities between mice and rats on dry land but not water mazes. Physiol Behav. 60 (5), 1191-1197 (1996).
- Cressant, A., Besson, M., Suarez, S., Cormier, A., Granon, S. Spatial learning in Long-Evans Hooded rats and C57BL/6J mice: different strategies for different performance. Behav Brain Res. 177 (1), 22-29 (2007).
- Hok, V., Poucet, B., Duvelle, E., Save, E., Sargolini, F. Spatial cognition in mice and rats: similarities and differences in brain and behavior. Wiley Interdiscip Rev Cogn Sci. 7 (6), 406-421 (2016).
- Bisby, M. A., Stylianakis, A. A., Baker, K. D., Richardson, R. Fear extinction learning and retention during adolescence in rats and mice: A systematic review. Neurosci Biobehav Rev. , 1264-1274 (2021).
- Mizuno, M., Yamada, K., Olariu, A., Nawa, H., Nabeshima, T. Involvement of brain-derived neurotrophic factor in spatial memory formation and maintenance in a radial arm maze test in rats. J Neurosci. 20 (18), 7116-7121 (2000).
- Rai, R., Singh, H. K., Prasad, S. A special extract of Bacopa monnieri (CDRI-08) restores learning and memory by upregulating expression of the NMDA receptor subunit GluN2B in the brain of scopolamine-induced amnesic mice. Evid Based Complement Alternat Med. 2015, 254303(2015).
- Ellenbroek, B., Youn, J. Rodent models in neuroscience research: is it a rat race. Dis Model Mech. 9 (10), 1079-1087 (2016).
- Hefner, K., Holmes, A. Ontogeny of fear-, anxiety- and depression-related behavior across adolescence in C57BL/6J mice. Behav Brain Res. 176 (2), 210-215 (2007).
- Pattwell, S. S., et al. Altered fear learning across development in both mouse and human. Proc Natl Acad Sci U S A. 109 (40), 16318-16323 (2012).
- Pattwell, S. S., et al. Dynamic changes in neural circuitry during adolescence are associated with persistent attenuation of fear memories. Nat Commun. 7, 11475(2016).
- Riddle, M. C., et al. Caloric restriction enhances fear extinction learning in mice. Neuropsychopharmacology. 38 (6), 930-937 (2013).
- Cruz, E., Lopez, A. V., Porter, J. T. Spontaneous recovery of fear reverses extinction-induced excitability of infralimbic neurons. PLoS One. 9 (8), e103596(2014).
- Barbayannis, G., et al. Differential effects of stress on fear learning and activation of the amygdala in pre-adolescent and adult male rats. Neuroscience. 360, 210-219 (2017).
- Chen, C. V., Chaby, L. E., Nazeer, S., Liberzon, I. Effects of trauma in adulthood and adolescence on fear extinction and extinction retention: advancing animal models of posttraumatic stress disorder. Front Behav Neurosci. 12, 247(2018).
- Schipper, P., et al. Impaired fear extinction recall in serotonin transporter knockout rats is transiently alleviated during adolescence. Brain Sci. 9 (5), 9050118(2019).
- Ishiyama, S., Brecht, M. Neural correlates of ticklishness in the rat somatosensory cortex. Science. 354 (6313), 757-760 (2016).
- Olton, D. S., Samuelson, R. J. Remembrance of places passed - spatial memory in rats. J Exp Psychol Anim Behav Process. 2 (2), (1976).
- Kraemer, P. J., Gilbert, M. E., Innis, N. K. The influence of cue type and configuration upon radial-maze performance in the rat. Animal Learning & Behavior. 11, 373-380 (1983).
- Wenk, G. L. Assessment of spatial memory using the radial arm maze and Morris water maze. Curr Protoc Neurosci. Chapter 8 (Unit 8 5A), (2004).
- Harper, D. N., Dalrymple-Alford, J. C., McLean, A. P. Production of a serial position effect in rats using a 12-arm radial maze. J Neurosci Methods. 44 (2-3), 197-207 (1992).
- Schmitt, W. B., Deacon, R. M., Seeburg, P. H., Rawlins, J. N., Bannerman, D. M. A within-subjects, within-task demonstration of intact spatial reference memory and impaired spatial working memory in glutamate receptor-A-deficient mice. J Neurosci. 23 (9), 3953-3959 (2003).
- Brown, M. F. The effects of maze-arm length on performance in the radial-arm maze. Animal Learning & Behavior. 18, 13-22 (1990).
- Olton, D. S., Papas, B. C. Spatial memory and hippocampal function. Neuropsychologia. 17 (6), 669-682 (1979).
- Sasaki, T., et al. Dentate network activity is necessary for spatial working memory by supporting CA3 sharp-wave ripple generation and prospective firing of CA3 neurons. Nat Neurosci. 21 (2), 258-269 (2018).
- Jew, K., et al. Selective memory and behavioral alterations after ambient ultrafine particulate matter exposure in aged 3xTgAD Alzheimer's disease mice. Part Fibre Toxicol. 16 (1), 45(2019).
- Harvey, R. E., Thompson, S. M., Sanchez, L. M., Yoder, R. M., Clark, B. J. Post-training inactivation of the anterior thalamic nuclei impairs spatial performance on the radial arm maze. Front Neurosci. 11, 94(2017).
- Morris, R. G. M. Spatial localization does not require the presence of local cues. Learning and Motivation. 12 (2), (1981).
- Buresova, O., Bures, J., Oitzl, M. S., Zahalka, A. Radial maze in the water tank: an aversively motivated spatial working memory task. Physiol Behav. 34 (6), 1003-1005 (1985).
- Buresova, O., Bolhuis, J. J., Bures, J. Differential effects of cholinergic blockade on performance of rats in the water tank navigation task and in a radial water maze. Behav Neurosci. 100 (4), 476-482 (1986).
- Olton, D. S., Walker, J. A., Gage, F. H. Hippocampal connections and spatial discrimination. Brain Res. 139 (2), 295-308 (1978).
- Olton, D. S., Werz, M. A. Hippocampal function and behavior: spatial discrimination and response inhibition. Physiol Behav. 20 (5), 597-605 (1978).
- Olton, D. S., Branch, M., Best, P. J. Spatial correlates of hippocampal unit activity. Exp Neurol. 58 (3), 387-409 (1978).
- Honig, W. K. Studies of Working Memory in the Pigeon. 38, 1 edn, (1978).
- Brolese, G., Lunardi, P., Lopes, F., Gonçalves, C. -A. Chapter 2 - Prenatal Alcohol Exposure and Neuroglial Changes in Neurochemistry and Behavior in Animal Models. , Academic Press. 11-22 (2017).
- Gouveia, K., Hurst, J. L. Reducing mouse anxiety during handling: Effect of experience with handling tunnels. PLoS One. 8 (6), e66401(2013).
- Gouveia, K., Hurst, J. L. Optimising reliability of mouse performance in behavioural testing: the major role of non-aversive handling. Sci Rep. 7, 44999(2017).
- Gouveia, K., Hurst, J. L. Improving the practicality of using non-aversive handling methods to reduce background stress and anxiety in laboratory mice. Sci Rep. 9 (1), 20305(2019).
- Ebbesen, C. L., Froemke, R. C. Body language signals for rodent social communication. Curr Opin Neurobiol. 68, 91-106 (2021).
- Langford, D. J., et al. Coding of facial expressions of pain in the laboratory mouse. Nat Methods. 7 (6), 447-449 (2010).
- Tordoff, M. G., Pilchak, D. M., Williams, J. A., McDaniel, A. H., Bachmanov, A. A. The maintenance diets of C57BL/6J and 129X1/SvJ mice influence their taste solution preferences: implications for large-scale phenotyping projects. J Nutr. 132 (8), 2288-2297 (2002).
- Prior, H. Effects of the acoustic environment on learning in rats. Physiol Behav. 87 (1), 162-165 (2006).
- Prior, H., Schwegler, H., Ducker, G. Dissociation of spatial reference memory, spatial working memory, and hippocampal mossy fiber distribution in two rat strains differing in emotionality. Behav Brain Res. 87 (2), 183-194 (1997).
- Lai, H. Acute exposure to noise affects sodium-dependent high-affinity choline uptake in the central nervous system of the rat. Pharmacol Biochem Behav. 28 (2), 147-151 (1987).
- Granon, S., Poucet, B., Thinus-Blanc, C., Changeux, J. P., Vidal, C. Nicotinic and muscarinic receptors in the rat prefrontal cortex: differential roles in working memory, response selection and effortful processing. Psychopharmacology (Berl). 119 (2), 139-144 (1995).
- Hebert, M., Bulla, J., Vivien, D., Agin, V. Are distal and proximal visual cues equally important during spatial learning in mice? a pilot study of overshadowing in the spatial domain. Front Behav Neurosci. 11, 109(2017).
- Yamamoto, J., Suh, J., Takeuchi, D., Tonegawa, S. Successful execution of working memory linked to synchronized high-frequency gamma oscillations. Cell. 157 (4), 845-857 (2014).
- Shimizu, T., et al. Oligodendrocyte dynamics dictate cognitive performance outcomes of working memory training in mice. Nat Commun. 14 (1), 6499(2023).
- Takeuchi, H., et al. Training of working memory impacts structural connectivity. J Neurosci. 30 (9), 3297-3303 (2010).
- Wu, D., et al. Persistent neuronal activity in anterior cingulate cortex correlates with sustained attention in rats regardless of sensory modality. Sci Rep. 7, 43101(2017).
- David, S., Olton, C. C., Ann Werz Mary, Spatial memory and radial arm maze performance of rats. Learning and Motivation. 8 (3), 289-314 (1977).
- Steiner, A. P., Redish, A. D. Behavioral and neurophysiological correlates of regret in rat decision-making on a neuroeconomic task. Nat Neurosci. 17 (7), 995-1002 (2014).
- Sweis, B. M., Thomas, M. J., Redish, A. D. Mice learn to avoid regret. PLoS Biol. 16 (6), e2005853(2018).
- Sultana, R., Ogundele, O. M., Lee, C. C. Contrasting characteristic behaviours among common laboratory mouse strains. R Soc Open Sci. 6 (6), 190574(2019).
- Marchette, R. C. N., Bicca, M. A., Santos, E., de Lima, T. C. M. Distinctive stress sensitivity and anxiety-like behavior in female mice: Strain differences matter. Neurobiol Stress. 9, 55-63 (2018).
- Brooks, S. P., Pask, T., Jones, L., Dunnett, S. B. Behavioural profiles of inbred mouse strains used as transgenic backgrounds. I: motor tests. Genes Brain Behav. 3 (4), 206-215 (2004).
- Koike, H., Arguello, P. A., Kvajo, M., Karayiorgou, M., Gogos, J. A. Disc1 is mutated in the 129S6/SvEv strain and modulates working memory in mice. Proc Natl Acad Sci U S A. 103 (10), 3693-3697 (2006).
- Gomez-Sintes, R., Kvajo, M., Gogos, J. A., Lucas, J. J. Mice with a naturally occurring DISC1 mutation display a broad spectrum of behaviors associated to psychiatric disorders. Front Behav Neurosci. 8, 253(2014).
- Clapcote, S. J., Roder, J. C. Deletion polymorphism of Disc1 is common to all 129 mouse substrains: implications for gene-targeting studies of brain function. Genetics. 173 (4), 2407-2410 (2006).
- Salari, A. A., Samadi, H., Homberg, J. R., Kosari-Nasab, M. Small litter size impairs spatial memory and increases anxiety- like behavior in a strain-dependent manner in male mice. Sci Rep. 8 (1), 11281(2018).
- Borrow, A. P., Bales, N. J., Stover, S. A., Handa, R. J. Chronic Variable Stress Induces Sex-Specific Alterations in Social Behavior and Neuropeptide Expression in the Mouse. Endocrinology. 159 (7), 2803-2814 (2018).
- Walf, A. A., Frye, C. A. The use of the elevated plus maze as an assay of anxiety-related behavior in rodents. Nat Protoc. 2 (2), 322-328 (2007).
- Võikar, V., Stanford, S. C. The Open Field Test. 190, Humana. New York, NY. 9-29 (2023).
- Haga, Y. Effects of food deprivation and food reward on the behavior of rats in the radial-arm maze. Jpn. Psychol. Res. 37 (4), 252-257 (1995).
- Vorhees, C. V., Williams, M. T. Assessing spatial learning and memory in rodents. ILAR J. 55 (2), 310-332 (2014).
- Schwabe, L. Stress and the engagement of multiple memory systems: integration of animal and human studies. Hippocampus. 23 (11), 1035-1043 (2013).
- Bannerman, D. M., et al. Dissecting spatial knowledge from spatial choice by hippocampal NMDA receptor deletion. Nat Neurosci. 15 (8), 1153-1159 (2012).
- Bannerman, D. M., et al. Hippocampal synaptic plasticity, spatial memory and anxiety. Nat Rev Neurosci. 15 (3), 181-192 (2014).
- Yoder, R. M., Kirby, S. L. Otoconia-deficient mice show selective spatial deficits. Hippocampus. 24 (10), 1169-1177 (2014).
- Wong, A. A., Brown, R. E. Visual detection, pattern discrimination and visual acuity in 14 strains of mice. Genes Brain Behav. 5 (5), 389-403 (2006).
- Meaney, M. J., et al. Early environmental regulation of forebrain glucocorticoid receptor gene expression: implications for adrenocortical responses to stress. Dev Neurosci. 18 (1-2), 49-72 (1996).
- Nunez, J. F., Ferre, P., Escorihuela, R. M., Tobena, A., Fernandez-Teruel, A. Effects of postnatal handling of rats on emotional, HPA-axis, and prolactin reactivity to novelty and conflict. Physiol Behav. 60 (5), 1355-1359 (1996).
- Balcombe, J. P., Barnard, N. D., Sandusky, C. Laboratory routines cause animal stress. Contemp Top Lab Anim Sci. 43 (6), 42-51 (2004).
- Meijer, M. K., Sommer, R., Spruijt, B. M., van Zutphen, L. F., Baumans, V. Influence of environmental enrichment and handling on the acute stress response in individually housed mice. Lab Anim. 41 (2), 161-173 (2007).
- Ghosal, S., et al. Mouse handling limits the impact of stress on metabolic endpoints. Physiol Behav. 150, 31-37 (2015).
- Sandi, C., et al. Acute stress-induced impairment of spatial memory is associated with decreased expression of neural cell adhesion molecule in the hippocampus and prefrontal cortex. Biol Psychiatry. 57 (8), 856-864 (2005).
- Tulving, E. Organization of Memory. Tulving, E., Donaldson, W. , Academic Press. (1972).
- Panoz-Brown, D., et al. Rats Remember Items in Context Using Episodic Memory. Curr Biol. 26 (20), 2821-2826 (2016).
- Fellini, L., Morellini, F. Mice create what-where-when hippocampus-dependent memories of unique experiences. J Neurosci. 33 (3), 1038-1043 (2013).
- Sorge, R. E., et al. Olfactory exposure to males, including men, causes stress and related analgesia in rodents. Nat Methods. 11 (6), 629-632 (2014).
- Pawluski, J. L., Kokras, N., Charlier, T. D., Dalla, C. Sex matters in neuroscience and neuropsychopharmacology. Eur J Neurosci. 52 (1), 2423-2428 (2020).
- Gogos, A., Sbisa, A., Witkamp, D., van den Buuse, M. Sex differences in the effect of maternal immune activation on cognitive and psychosis-like behaviour in Long Evans rats. Eur J Neurosci. 52 (1), 2614-2626 (2020).
- Espinosa-Garcia, C., et al. Sex differences in the performance of cognitive tasks in a murine model of metabolic syndrome. Eur J Neurosci. 52 (1), 2724-2736 (2020).
- Conner, M. R., Adeyemi, O. M., Anderson, B. J., Kritzer, M. F. Domain-specific contributions of biological sex and sex hormones to what, where and when components of episodic-like memory in adult rats. Eur J Neurosci. 52 (1), 2705-2723 (2020).
- Sensini, F., et al. The impact of handling technique and handling frequency on laboratory mouse welfare is sex-specific. Sci Rep. 10 (1), 17281(2020).
重印与许可
