该方案描述了一种先进的微流控平台,用于定量测量单个外周血单个核细胞的细胞因子分泌动态。以脂多糖刺激为例,该平台可对每个单个细胞并行检测多达三种细胞因子(IL-6、TNFα 和 IL-1β)。
方法文章
微流控方法解析单个多功能细胞同时与顺序性细胞因子分泌
* These authors contributed equally
本文内容
摘要
摘要
感染、自身免疫性疾病以及治疗过程中期望或不良的免疫学反应,均可引发体内复杂且动态的细胞因子反应。in vivo。该反应涉及多种免疫细胞分泌不同类型的细胞因子,以协调免疫应答。然而,由于缺乏合适的研究工具,目前对不同细胞亚群分泌细胞因子的动力学特征、分泌量及其共表达情况仍知之甚少。本文介绍了一种基于微流控液滴平台的实验方案,可在单细胞水平上实现对多种细胞因子分泌动力学的并行、时间分辨定量检测。该方法通过将单个细胞与多重免疫检测体系共同包裹于微流控液滴中,实现细胞因子浓度的并行定量;通过荧光成像对细胞因子进行固定和动态监测,并结合图像分析获取其分泌量与动力学参数。本方案以脂多糖刺激的人外周血单个核细胞为例,详细描述了功能化磁性纳米颗粒的制备、校准实验、细胞准备,以及细胞与纳米颗粒共同包裹进液滴后的荧光成像、图像处理与数据分析流程。该平台可识别单分泌与共分泌细胞之间不同的细胞因子分泌行为,刻画所测细胞样本中预期存在的表型异质性。此外,该检测方法具有模块化特性,可灵活调整并应用于多种蛋白质、细胞因子及细胞样本的研究,有望加深对不同免疫细胞类型之间相互作用,以及动态分泌的各类细胞因子在精细调控免疫应答中所起作用的理解。这些新见解在免疫失调相关研究、治疗靶向细胞群的识别及药物开发中可能具有重要意义。
引言
感染通常会引起复杂的宿主反应,涉及先天免疫系统和适应性免疫系统1,2。在发生感染或识别病原体后,宿主细胞可产生多种趋化因子和细胞因子,这些小分子蛋白质被称为免疫系统的关键信号分子和调节因子3。促炎性细胞因子在感染早期释放,以启动免疫应答,随后释放抗炎性细胞因子,这对于防止组织损伤以及继发的慢性或自身炎症性疾病至关重要。这种在清除威胁与保护组织之间的平衡,表现为在感染过程中发挥不同功能的多种细胞因子谱型,从而实现免疫应答的精细调控4,5。在此类混合物中,根据病原体及其诱导的信号、组织部位以及来源的免疫细胞不同,可观察到独特的细胞因子特征。然而,细胞因子的释放似乎也是一种对每个细胞群体而言具有独特性的多功能生物学过程,在分泌动力学和个体反应方面表现出多样性。这种异质性已在文献中被描述多年,例如在T细胞亚群之间6,7,针对自身炎症性疾病和重症COVID-19感染的研究显示,患者体内及患者之间炎症标志物存在显著的功能多样性8,9。近年来,单细胞测序技术的出现揭示了免疫微环境中各亚群之间高度的可塑性和相互作用,这些此前并不明显,表明需要采用单细胞方法来捕捉这种异质性10,11。尽管目前正不断开发新方法用于转录组分析,表型分析仍然具有挑战性,因为它需要在单细胞水平上对蛋白质分泌进行同时、定量且具有时间分辨率的测量。此类测量使我们能够研究分泌细胞的身份、动力学特征以及分泌模式(快/慢、早/晚、同时/顺序)针对一组或一个面板的细胞因子。通过实现对免疫应答过程中细胞因子释放动力学的定量和时间分辨研究,所获得的见解可能有助于理解细胞群体行为及其诱导的应答机制。
在标准方案中,通常使用酶联免疫吸附测定法(ELISA)检测细胞悬液上清液和血清中的细胞因子,从而获得总体分泌量。总体测量方法无法量化每个细胞产生的细胞因子含量,这一问题在异质性细胞样本中尤为突出。其他替代方法,如细胞内细胞因子染色、酶联免疫斑点(ELISpot)检测或微刻蚀检测(例如 Isoplexis),虽可检测单个细胞表达的细胞因子,但仅能提供终点测量结果12,13。这意味着细胞在孵育期间分泌动力学及分泌模式可能发生的动态变化将被忽略。此外,终点测量无法区分细胞因子是同时分泌还是顺序分泌,因此通过这些方法仍无法明确免疫细胞在细胞因子分泌中真正的同时多效性程度。
利用液滴微流控技术生成和处理皮升级的物理隔室,可在单细胞水平上根据免疫细胞独特的细胞因子分泌表型对其进行研究,从而实现单细胞分辨率14,15。这些隔室由水包油乳液构成,可通过微流控芯片生成16,17。事实上,基于液滴的微流控检测方法在单细胞水平上展现出极强的灵活性,能够实现对不同生物样本和分子库的分析,并可与上游(细胞与试剂处理)和下游过程(单细胞分选、蛋白质组学或测序)整合18,19,20,21,22。特别是允许液滴固定的实验装置,可实现对单细胞功能随时间变化的动态监测,这对于蛋白质分泌分析具有重要价值18。此外,整合多重定量检测方法有助于在共分泌等此前难以触及的研究维度上开展进一步探索,并实现多功能免疫细胞的鉴定23,24。
本方案描述了一种基于固定化液滴的单细胞工作流程,用于并行检测、定量及时间分辨地测量单个细胞分泌最多三种细胞因子的情况17,23。该技术能够并行监测超过 20,000 个细胞的细胞因子反应。
所示工作流程包括将单个免疫细胞和功能化纳米颗粒在60 pL的水包油微滴中进行微流控封装。随后实现固定化 >观察室中的一万个液滴及时间分辨荧光显微镜技术可实现对每个液滴内每种细胞因子分泌动态的测量图1A)。对于液滴中的每个单个细胞,通过夹心免疫测定法检测其分泌的细胞因子,其中连接有特异性捕获抗体的磁性纳米颗粒与分泌的细胞因子结合,从而导致荧光标记的检测抗体发生后续的迁移与结合图1B,C)。通过排列磁性纳米颗粒形成微珠线,可在细胞因子存在时定量荧光重定位现象。此处,荧光重定位定义为微珠线上平均荧光强度与液滴其余部分平均荧光强度的比值。通过混合不同功能化的纳米颗粒批次及相应标记在不同荧光通道的检测抗体,该检测可实现针对多种细胞因子的多重分析。23,导致不同通道中出现特定的荧光重定位现象。借助定制的分析脚本,可提取荧光重定位数值,并将图像转换为每个单细胞及每种细胞因子的分泌动态谱。因此,所得数据集可提供多种读数,例如随时间变化的定量分泌测量、共分泌亚群的鉴定,以及根据分泌量、分泌速率和细胞因子组合对细胞进行分布分析。

图1:工作流程与检测原理。(A)刺激后分析分泌细胞因子的单细胞的工作流程概览。将单细胞悬液与磁性纳米颗粒混合,并封装成体积为60 pL的油/水乳液(液滴)。液滴在磁场中固定,纳米颗粒在其中排列,随后每30分钟进行一次测量,持续最长4小时。最后对图像进行分析,提取每个液滴在各个时间点及荧光通道中的参数。本图经修改自17。(B)液滴夹心生物检测原理。经功能化的纳米颗粒结合细胞分泌的细胞因子,促使荧光标记的检测抗体随之迁移至纳米颗粒表面。通过重组细胞因子的校准实验对荧光迁移信号进行量化与验证。使用不同功能化的纳米颗粒混合物,可实现最多三种细胞因子的多重同步检测。(C)在基于细胞的实验中,随测量时间推移追踪液滴,通过荧光信号在纳米颗粒上随时间增强的现象识别出分泌细胞。示意图未按比例绘制。图示使用BioRender.com创建。请点击此处查看该图的放大版本。
方案
所有实验均在伦理协议 EK202-N-56 下进行,并经苏黎世联邦理工学院伦理委员会批准。人源细胞的操作在生物安全二级实验室内的生物安全柜中进行。
注意:以下部分详细说明在单细胞水平上测量时间分辨细胞因子分泌的实验方案。此处所述步骤适用于用脂多糖(LPS)刺激外周血单个核细胞(PBMC),并同时检测细胞因子 IL-6、TNFα 和 IL-1β 的分泌情况。然而,如有需要,该方案可针对其他细胞类型、刺激物及细胞因子进行相应调整。
1. 观察室的制备
注意:为避免成像过程中液滴移动,观察室的高度应设置为比液滴直径小约10%。
- 切割双面胶带和顶部玻璃盖片的制备
- 在切割软件的“设计”选项卡中绘制或加载所需的腔室切口设计。此处使用的具体尺寸参见 图2E。
- 使用胶带将厚度为32 µm的双面胶带固定在粘性切割垫上,并将切割垫放入自动切割机中。
- 从胶带上切割出腔室设计,注意在步骤1.3中便于剥离,应沿相同方向切割腔室的长边。
- 长期储存时,将胶带切片在室温下保存;短期储存时,将其保存在-20 °C,并仅在步骤1.3前短时间内取出,以便于操作。
- 在一片标准显微镜载玻片(76 mm × 26 mm × 1 mm)中央钻两个直径约1 mm的孔,两孔之间的距离约为3.5 cm。
- 玻璃载玻片的清洗与等离子活化
- 用肥皂清洗一片带孔和一片无孔的玻璃载玻片,用去离子水充分冲洗,并使用无尘精密擦拭纸擦干。
- 将玻璃载玻片放入等离子清洗仪中,以55 W功率对上表面进行10分钟的等离子处理。取出载玻片后立即进行步骤1.3。
- 腔室组装
- 将带孔的玻璃载玻片放置在洁净表面上,等离子活化面朝上,避免接触活化表面。
- 沿与切割相同的方向去除双面胶带一侧的保护层。在不接触的情况下,将胶带切片与玻璃载玻片边缘及钻孔对齐,并从短边开始缓慢地将胶带贴附到玻璃载玻片上。
注意:注意不要在胶带上产生拉伸或褶皱,否则会导致腔室高度不准确。由于此步骤容易出错且需要一定的实践经验,建议同时制备多个玻璃载玻片。 - 再次沿切割方向去除胶带的第二层保护层,将另一片无孔玻璃载玻片(活化面朝下)放置其上。通过在顶部放置一块平板并用上半身力量按压约10秒,使两片玻璃载玻片的整个表面紧密贴合。
- 组装完成后,翻转腔室,使两个孔朝向操作者。在纳米接口下方的环形区域滴加少量紫外光固化胶,将接口置于载玻片的孔上,完成粘接。在接口周围再加一圈紫外光固化胶,并用紫外灯固化胶水。此时腔室应如 图2E 所示。完成后立即进入步骤1.4。
注意:紫外光可能损伤眼睛和皮肤,请佩戴适当的防护装备。
- 腔室表面的疏油涂层处理
注意:此步骤应在玻璃载玻片等离子处理(步骤1.2.2)后1小时内完成,以确保良好的涂层效率。- 新鲜配制1 mL含1%氟硅烷溶液(1H,1H,2H,2H-全氟癸基三氯硅烷)的氟化油(HFE-7500),装入注射器。将涂层溶液通过连接至0.3 mm × 0.76 mm PTFE微管的PTFE注射器滤膜和27G × 0.75英寸针头,注入观察腔室中。
- 孵育1分钟后,在通风橱中使用氮气压力将涂层溶液从腔室中冲洗出去。使用另一套注射器组件,用氟化油(仅HFE-7500)冲洗腔室。
- 将腔室充满氟化油并封闭入口,在室温(RT)下保存。每次实验后,应立即清洗细胞和液滴,以确保涂层的良好保存。
注意:本方案可在此处暂停,腔室可在数月内储存并重复使用。
- 带磁体的腔室支架
- 为实现磁性纳米颗粒的定向排列,在液滴包封和成像过程中需对观察腔室施加静态磁场。为此,将腔室置于定制的3D打印显微镜支架中(参见 图2D 及Bounab等17补充数据4中的文件),该支架在腔室长边两侧固定有两块钕磁铁。
2. 纳米颗粒功能化
注意:每种细胞因子的纳米颗粒功能化过程相似,唯一的区别在于添加了针对特定细胞因子的捕获抗体。每种细胞因子的功能化需在不同的独立反应管中平行进行。在本方案之前,TNFα 捕获抗体和 IL-1β 检测抗体已分别在本实验室用生物素(biotin)和 Alexa Fluor 647 进行标记。标记操作按照供应商网站上提供的说明书进行(参见材料表中的链接),标记后的抗体经分装后储存于 -20 °C。
- 向用于 TNFα 检测的试管中加入 50 µL 链霉亲和素功能化的纳米颗粒(直径 (Ø) 300 nm),向用于 IL-1β 检测的试管中加入 50 µL,向用于 IL-6 检测的试管中加入 100 µL。用磷酸盐缓冲液 (PBS) 将纳米颗粒溶液按 1:1 (v/v) 稀释。
- 向每支试管中加入相应体积 1/20 (v/v) 的生物素化捕获抗体(储存浓度为 0.5 mg/mL),在室温下孵育 30 分钟。
注意:向纳米颗粒溶液中加入小体积液体时,应将液体加至试管顶部,并用主体溶液多次冲洗管壁,以确保充分混合并防止形成聚集体。 - 向试管中加入 1/100 (v/v) 的 1 mM D-生物素溶液,在室温下孵育 5 分钟。最终生物素浓度为 10 µM。
注意:过量的生物素可封闭纳米颗粒上的游离结合位点,减少非特异性聚集的形成。 - 将钕磁铁靠近试管以收集颗粒,待上清液澄清后弃去上清液。
注意:本实验中使用的磁铁具有极强的吸引力,若两个磁铁意外吸合,可能造成身体伤害。 - 为减少非特异性吸附至纳米颗粒表面,立即将颗粒重悬于 Pluronic F-127(10%)溶液中,体积为步骤 2.1 最终体积的 0.5 倍,再加入等体积的 PBS。在室温下孵育 30 分钟。
- 使用磁铁收集颗粒,弃去上清液,然后将颗粒重悬于 1 倍体积的储存缓冲液(RPMI 1640,5% 去除血清替代物,1% 青霉素-链霉素,1% 重组人血清白蛋白 (HSA),25 mM HEPES,0.1% Pluronic F-127)中。在室温下孵育 30 分钟。
注意:此处可暂停实验流程,颗粒可在 4 °C 下保存最多 1 周。 - 在包封前立即用移液器重悬颗粒,并按 IL-6:TNFα:IL-1β 为 2:1:1 (v/v) 的比例混合已偶联的纳米颗粒。
注意:不同功能化纳米颗粒的比例取决于每种细胞因子所用的抗体对,该比例已通过校准样品实验确定,以获得最佳动态范围。 - 用完全培养基(RPMI 1640,10% FBS,1% 青霉素-链霉素,25 mM HEPES)洗涤颗粒:使用磁铁收集颗粒,弃去上清液,然后重悬。重复此步骤一次,但第二次重悬时仅使用步骤 2.7 中完全培养基体积的 0.5 倍。
- 向溶液中加入不同标记的 IL-6、TNFα 和 IL-1β 检测抗体,使每种抗体的最终浓度均为 10 nM。该溶液现已可用于液滴实验。
3. 细胞制备
注意:PBMC 来源于苏黎世血库提供的血沉棕黄层。细胞经冷冻后储存于液氮中数月,冻存于冻存管(1 × 10⁷ 个细胞/管)中。
- 细胞复苏
- 实验开始前1小时,将完全培养基和MACS缓冲液(含2 mM EDTA、0.5% BSA的DPBS溶液,经无菌过滤)置于室温(RT)预温。准备一个15 mL离心管,加入9 mL完全培养基,并将其置于37 °C水浴中保温。
- 从液氮储存中取出一支PBMC冻存管(含约1 × 10⁷个细胞),在37 °C水浴中轻轻摇动冻存管,直至仅剩少量冰晶。
- 用70%乙醇擦拭管壁,转移至超净台中。向冻存管中加入1 mL预温的完全培养基,轻柔混匀后将全部细胞转移至含有温热完全培养基的离心管中。可用1 mL温热完全培养基冲洗冻存管,以最大限度回收细胞。
- 在室温下以500 × g离心5分钟,弃上清,用移液器轻柔地将细胞沉淀重悬于1 mL完全培养基中,再加入9 mL完全培养基。
- 在室温下以500 × g离心5分钟,弃上清,按前述方法将细胞沉淀重悬于1 mL完全培养基中。
- 使用可用的细胞计数仪进行细胞计数。本实验中使用了自动细胞计数仪。将10 µL细胞悬液与10 µL台盼蓝混合,取10 µL混合液加入细胞计数板中进行计数。
- 染色与FcR封闭
- 计算细胞总数,并确定将细胞重悬至2 × 10⁶ 个活细胞/mL所需的体积。通过将原液(5 mM)在PBS中稀释1000倍,配制细胞染色工作液(CellTrace Violet,终浓度为5 µM)。
- 在室温下以500 × g离心5分钟,弃上清,将细胞沉淀重悬于步骤3.2.1中计算体积的染色工作液中。37 °C孵育5分钟。
- 孵育结束后,加入完全培养基(体积至少为染色液体积的2倍)以淬灭未反应的染料。在室温下以500 × g离心5分钟。
- 弃上清,将细胞沉淀重悬于60 µL MACS缓冲液中,并按每1 × 10⁷个细胞加入20 µL人FcR封闭剂。室温孵育10分钟。
- 用MACS缓冲液补至总体积10 mL,在室温下以500 × g离心5分钟。
- 弃上清,将细胞重悬于1 mL完全培养基中,按步骤3.1.6所述方法进行细胞计数。
- 用LPS刺激细胞
- 根据细胞计数结果,将细胞稀释至1 × 10⁶ 个/mL,并将2 mL细胞悬液转移至超低吸附6孔板的每个孔中。
- 将LPS用完全培养基稀释后加入含细胞的孔中,使LPS终浓度为1 µg/mL。37 °C孵育6小时。
- 包封前准备
- 刺激结束后,将细胞悬液转移至新的15 mL离心管中。
- 向空孔中加入1 mL完全培养基,用细胞刮刀刮下残留细胞,将刮下的细胞转移至新的15 mL离心管中。再用1 mL完全培养基冲洗孔壁,并将冲洗液转移至另一支15 mL离心管中。
- 将两管细胞在室温下以500 × g离心5分钟,并将第一管(含未冲洗细胞的上清)中1 mL未稀释的上清液转移至新管,以备后续分析(如ELISA)。
- 弃去其余上清液。
- 将细胞沉淀用0.5 mL完全培养基重悬,合并来自同一孔的细胞,转移至离心管中。按步骤3.1.6所述方法进行细胞计数。
- 在室温下以500 × g离心5分钟,弃去大部分上清液(保留约100 µL)。不重悬细胞沉淀,小心地加入200 µL完全培养基。
- 弃去上清液。将细胞用完全培养基重悬,浓度为6.6至13.3 × 10⁶ 个细胞/mL,以实现包封时每个液滴平均细胞数λ = 0.2–0.4,具体定义见步骤8.6。
注:步骤3.4.6和3.4.7应在包封前立即进行,以避免细胞因子分泌至培养上清中。每个液滴中的细胞数遵循泊松分布: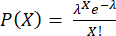 ,其中P表示含有X个细胞的液滴所占比例,λ为每个液滴的平均细胞数。
4. 包封与液滴生成
注意:细胞在液滴中的包封由微流控液滴发生芯片实现,该芯片的制备方法在其他文献中有详细描述17。此类芯片也有商业化产品可供选择(参见材料表中的示例)。一种合适的液滴发生芯片设计包含两个水相入口、一个油相入口以及一个用于输出生成液滴的出口。此外,合适的商业化液滴发生芯片应能够生成体积为40–60 pL的水相/氟化油相液滴。本方案所制备的水/油乳液(液滴)直径为50 µm。通过调整本方案中的不同参数,可获得更大或更小的液滴。
- 注射泵的准备(图 2A)
- 用 500 µL 连续相填充 1 mL 注射器,连续相由 2% 008-氟表面活性剂溶于 HFE-7500 氟化油组成。将 27G × 0.75 英寸针头连接至 0.30 mm × 0.76 mm 的 PTFE 微管,并将该组件安装到注射器上,再将注射器固定在注射泵上。
注意:确保注射器或套管中无残留空气,否则会影响流速的稳定性。 - 为水相制备两个自制的移液枪头连接器(图 2B):使用直径为 0.75 mm 的活检打孔器在直径 6 mm、高度约 5 mm 的 PDMS 切片中央打孔。将约 3 cm 长的 PTFE 管(内径 0.56 mm,外径 1.07 mm)穿过 PDMS 切片上的孔,并将该组件推入 200 µL 移液枪头顶部。将管子的另一端连接至 23G × 1.25 英寸针头。在枪头顶部涂布紫外光固化胶进行密封,并用紫外光照射固化。
注意:由于紫外光对眼睛有害,请佩戴防紫外护目镜以保护眼睛。 - 用 500 µL 轻质矿物油填充两个 1 mL 注射器,分别安装带有自制接头的 23G 针头,并将两者固定在注射泵上。
- 使用注射泵控制软件,将 30 µL 纳米颗粒溶液和 30 µL 细胞溶液分别吸入水相的移液枪头中。
- 通过用水清洁表面以去除灰尘和污物,并用精密擦拭纸擦干,制备观察室。将观察室夹持在配备两个钕磁铁的打印支架中。
注意:确保磁铁方向正确(相互吸引),以形成拉长的聚集体。 - 将观察室略微倾斜(30°)。打开两个端口,并在上端口塞入一张纸巾,以吸收填充过程中多余的外相液体。
- 用 500 µL 连续相填充 1 mL 注射器,连续相由 2% 008-氟表面活性剂溶于 HFE-7500 氟化油组成。将 27G × 0.75 英寸针头连接至 0.30 mm × 0.76 mm 的 PTFE 微管,并将该组件安装到注射器上,再将注射器固定在注射泵上。
- 液滴生成与腔室填充
- 通过管路将连续相连接至微流控芯片的顶部入口(图 2A、C、F)。以 1800 µL/h 的流速用连续相冲洗芯片约 30 秒。
- 将水相溶液的移液枪头连接至两个中间入口(图 2A、C、F)。
- 以每路 200 µL/h 的流速启动水相流动,使通道和出口完全充满液体。当使用磁性纳米颗粒时,芯片出口应流出均匀的棕红色溶液。
- 当出口处出现液体后,以 800 µL/h 的流速启动氟化油相流动,并等待液滴生成趋于稳定,稳定状态的标志是出口流出均匀、呈灰色且有光泽的溶液。
- 当液滴生成稳定后,通过将 PTFE 微管(内径 0.3 mm × 外径 0.76 mm)连接至出口端口,收集生成的液滴,并使微管穿过指旋一体式接头的卡套模块,将液滴导入观察室(图 2A)。
- 若液滴生成正常,观察室应被均匀、有光泽的液体自下而上直线填充。
- 当腔室充满后,停止流动,并用指旋压力将端口塞插入端口以封闭腔室。
注意:注意不要过度拧紧腔室,否则可能夹入空气或导致气泡进入,引起液滴移动,从而影响测量过程中的追踪效果。 - 液滴生成结束后,用氟化油冲洗芯片,并用氮气吹出残留液体,以保持芯片功能。只要芯片未堵塞,可多次重复使用并可长期存放数月。

图2:微流控装置的总体示意图。(A)液滴包封装置,包括注射泵、液滴生成芯片、观察室及显微镜固定架。(B)打孔后的PDMS塞(上图),用于与200 µL移液器吸头(下图)连接,如实验步骤4.1.2所述。(C)管路和移液器吸头与液滴生成芯片连接的图像。(D)置于定制3D打印显微镜固定架内的观察室照片,其顶部和底部各有一个磁铁。(E)观察室照片(白色胶带仅为示意)。(F)用于液滴生成的微流控芯片布局(比例尺:750 µm)。本图经修改自17。请点击此处查看此图的放大版本。
5. 图像采集与测量
注意:图像采集在置于培养箱内的标准倒置落射荧光显微镜上进行,可在 37 °C 条件下完成测量。此处所述设置专用于配备 Orca Fusion 相机、运行 NIS Elements 软件(V. 5.30.04)的 Nikon Eclipse Ti2 显微镜,但这些参数可普遍适配于其他荧光显微镜和相机系统。
- 设置测量参数
- 设置图像尺寸时,选择 10 × 10 图像的阵列大小。该阵列将包含约 50,000–70,000 个液滴。使用 1% 重叠,并启用图像拼接的融合功能。
- 设置测量通道数量时,选择 DAPI 通道用于细胞检测,FITC、TRITC 和 Cy5 通道用于细胞因子检测(微球信号),以及 BF 通道用于液滴检测。使用 2 × 2 像素合并(pixel binning)和 16 位深度。调整相机设置,使每个荧光通道中液滴内的强度像素值不超过相机的最大值。
注意:每个通道的确切曝光时间和光源强度取决于所使用的显微镜型号和试剂,应在生成校准曲线之前(第 7 步)确定。在校准测量和细胞测量中使用相同的采集设置对于准确量化至关重要。 - 设置时间分辨测量时,选择每 30 分钟测量一次,共进行 9 次测量。
注意:测量参数可能因所用细胞、刺激物、试剂、检测的细胞因子、孵育温度和显微镜型号的不同而有所差异。
- 开始测量
- 将腔室支架安装到配备孔板格式载物台的显微镜上(图 2D),并使用 10× 物镜切换至明场(BF)通道。
- 在明场下对固定液滴进行调焦,并通过平移观察并根据需要调整,确保装置处于完全水平的平面上。随后将视野移至腔室中央进行后续操作。
- 启用自动对焦系统(PFS),并在 BF 通道中将其设置为最佳测量平面,使液滴边缘呈现为黑色、清晰的圆环,能够与油相和背景明显区分。
注意:即使没有自动对焦系统也可进行测量,但如果显微镜配备该系统,我们强烈建议使用。这将显著提高大尺寸且需大量拼接图像的测量质量。 - 依次切换至所有荧光通道,并为每个通道设置最佳测量焦平面。在 FITC、TRITC 和 Cy5 通道的重复定位测量中,确保纳米颗粒聚集体处于最佳焦点;在 DAPI 通道中,确保细胞处于焦点清晰状态。
注意:所有测量通道的最佳焦平面和 z 值可能不同。务必为每个通道保存独立的 PFS 偏移值。 - 开始测量前,依次检查所有通道的焦点是否准确,并等待 5 分钟以使系统平衡,因为在溶液升温初期可能会发生轻微位移。
- 启动测量。生成第一张图像后,检查是否存在任何异常(如失焦、液滴移动、通道错误等)。如有需要,重新启动采集;若出现气泡,则重新填充腔室(从步骤 4.1.4 开始)。让系统持续成像液滴 4 小时。
6. 图像分析
- 在 MatLab 中安装图像分析软件(DropMap Analyzer App v 4.023)(https://github.com/ESPCI-LCMD/MiMB),并将实验生成的 .nd2 文件传输至分析计算机。
- 打开应用程序。选择指定的设置,否则保留默认值:CH1:DAPI,选择 WD(整个液滴);CH2:FITC,选择 BL(微珠线);CH3:TRITC,选择 BL;CH4:Cy5,选择 BL;最大液滴直径(µm):70;液滴检测:完整;追踪:是。点击 开始 按钮(水果图标)以选择 .nd2 文件位置并启动分析。
- 几分钟后,程序将显示图像的一个示例区域(图 3A)。按 空格键 直到找到一个适合液滴检测的图像帧,然后按 回车键。在同一图像区域中,在一个代表性区域内绘制一个矩形,用于确定检测液滴的阈值参数。
- 几分钟后,另一个窗口将打开,显示 DAPI 通道的强度分布。拖动滑块以仅检测染色细胞的信号,然后单击右上角的 完成。
- 将图像分割为直径小于最大液滴直径(µm)的单个液滴后,程序将无需进一步用户输入,针对每个液滴、时间点和荧光通道自动执行以下步骤(见 图 3)。
- 软件计算液滴在不同时间点之间的移动像素(移动超过 40 个像素的液滴将被自动排除)。
- 软件测量整个液滴的平均荧光值,并通过在水平线上找到最亮的像素,以及从液滴顶部到底部在垂直线上对所有像素强度进行平均,来检测并测量平均微珠线强度。此过程自动完成,并用于根据以下公式计算平均微珠线重定位值(图 3B):
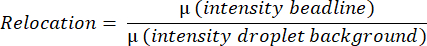
- 软件计算液滴区域内高于 DAPI 通道设定阈值的总像素百分比。
- 生成的 .xslx 文件将包含以下用于进一步分析的关键列:DropIdX(随时间追踪的液滴 ID)、TrueCentroid_ t*2-1 和 t+2(分别为时间点 t 时液滴中心的 x 和 y 坐标)、DiameterMicrons(液滴直径,单位为 µm)、TrackingMove(在整个测量时间内移动的像素数)、FluoChannel_BL_Ratio_t(时间点 t 时 FluoChannel 的重定位值)、DAPI_WD_PosPxlCount_t(时间点 t 时 DAPI 通道中整个液滴内高于阈值的像素数)。
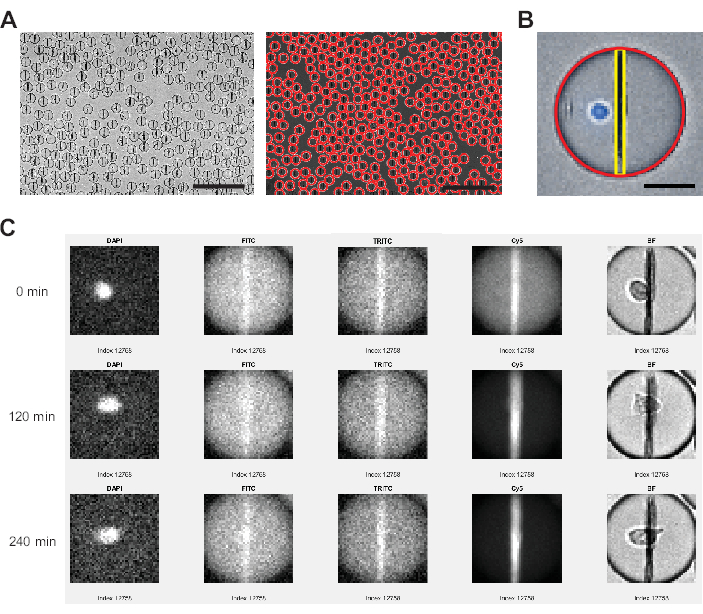
图 3:图像分析软件执行的图像分析。(A)通过霍夫变换在明场(BF)通道中检测液滴,并用红色圆圈标记每个液滴。比例尺:200 µm。(B)在每个液滴内,通过水平面上最亮的像素识别纳米颗粒 beadline,并对从液滴顶部到底部所有像素的荧光强度进行平均。此外,通过对整个液滴区域像素强度超过阈值(>0)的比例进行判断来识别细胞。比例尺:20 µm。(C)分析软件对每个单独液滴在所有测量时间点的 FITC、TRITC 和 Cy5 通道中,比较纳米颗粒上的荧光强度与液滴背景强度。图中显示的时间点为 0、4(120 分钟)和 9(240 分钟)。为手动检查液滴和细胞检测的准确性,同时显示 DAPI 和 BF 通道。请点击此处查看此图的放大版本。
7. 校准
注意:为了获得定量读数,需要对细胞因子浓度与荧光信号位移值之间的关系进行一次校准,因为不同实验设置之间可能存在差异。所有必要步骤已在前文引用的实验方案部分详细说明。
- 按照步骤2所述方法制备纳米颗粒。
- 根据制造商说明书重悬人IL-6、TNFα和IL-1β重组蛋白。
注意:确保冷冻分装的蛋白仅解冻一次,并立即使用。 - 使用完全培养基(10% FBS,1% 青霉素-链霉素,25 mM HEPES)将上述三种蛋白共同配制成2倍系列稀释液,起始浓度为80 nM,依次稀释至0.625 nM。
- 按照步骤4所述进行包封操作,第一水相使用功能化纳米颗粒,第二水相仅使用RPMI。该测量作为空白对照,其测得的标准差将在后续数据分析中使用。
- 等待5分钟后,按照步骤5所述对液滴成像。在相应的荧光通道中采集3张图像,每张图像的阵列大小为2 × 2。
- 按照从最低浓度到最高浓度的顺序,对所有已制备的校准溶液重复执行步骤7.4和7.5。
- 按照步骤6所述分析图像。DAPI通道不使用WD选项,并将追踪功能设为“否”。
- 分析结果将输出单张图像中每个被测液滴的荧光重定位值。提取每个荧光通道的中位数和标准差,并计算每个浓度下所有测量图像的中位数与标准差的平均值。
- 通过绘制各重组蛋白的平均中位数重定位值与其对应浓度的关系曲线,生成校准曲线。
- 采用单相关联模型拟合曲线:
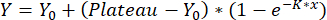 ,
其中Y表示在浓度x时的重定位值,Y0表示空白测量的重定位值,x表示所用浓度。所得校准曲线将用于步骤8中对重定位值的定量分析。
注意:仅拟合至最高测得的重定位值,排除更高浓度下测得重定位值降低的数据点。在较高浓度下测得重定位值下降是预期现象,由钩状效应(Hook effect)及纳米颗粒结合能力有限所致。
8. 数据分析
- 排除追踪移动值(TrackingMove)大于 10 的液滴,即在测量时间范围内移动超过 10 个像素的液滴。
- 通过筛选 DAPI_WD_PosPxlPercent_1 列中数值大于 0 的液滴,在第一个时间点识别含有染色细胞(DAPI 通道)的液滴。
- 通过以下三个标准对每个荧光通道(FluoChannel_BL_Ratio_t 列)的荧光重定位情况进行分析,以识别含有分泌细胞的液滴:
- 通过测量时间内的正斜率排序,识别重定位值呈上升趋势的液滴。
- 识别重定位值达到检测限(LOD)的液滴。当测量时间内最大荧光重定位值超过 LOD 时,该液滴被选中;LOD 的计算方法如下文所述25:
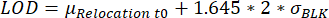 ,其中 μRelocation t0 表示时间点 0 时所有重定位值的中位数,σBLK 表示校准过程中测得的空白对照标准差,二者均为特定细胞因子参数。
- 通过验证重定位值的增加是否显著,判断其最大与最小测得荧光重定位值之间的差值是否大于:
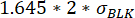 。
- 若多个荧光通道同时满足步骤 8.3 所述标准,则识别为共分泌细胞。
- 对不含细胞的液滴(DAPI_WD_PosPxlPercent_1 = 0)重复执行步骤 8.3,并利用这些液滴计算假阳性率。
- 通过随机选取 200–500 个液滴,并使用图像分析软件的“验证与分类”(Verify and sort)功能进行检查,确定测量的准确 λ 值。统计这些液滴中的细胞数量并计算:
λ = 计数的细胞数 / 分析的液滴数 - 通过以下公式计算测量中包封细胞的总数:
总细胞数 = λ × 分析的液滴数 - 使用确定的细胞计数计算分泌细胞的百分比。此外,计算每种细胞因子的假阳性率(通常占各通道真实阳性数的 3%–5%),并将其作为实验一致性和可重复性的内部对照。
- 为计算分泌的细胞因子浓度,使用步骤 7.10 中建立的校准方程将重定位值转换为浓度。
- 使用以下公式计算相邻时间点之间的分泌速率(SR):
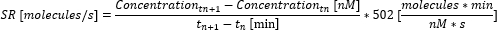
- 通过取各时间点间个体分泌速率的平均值,计算整个测量期间的平均分泌速率。若在测量结束前已达到最大可测重定位值,则将浓度设为最大可测浓度(该值为特定细胞因子参数,对应于步骤 6.10 中校准曲线所用的最大测量浓度),不再继续计算后续浓度;分泌速率及平均值仅计算至该时间点为止。
注:若某一荧光通道中检测到的分泌细胞少于 50 个,应通过“验证与分类”功能对液滴进行目视检查,并排除含有荧光或纳米颗粒聚集体的液滴。 - 为从每个单细胞的分泌曲线中提取更多参数,使用自定义 Python 脚本(可应要求提供)对每个细胞和细胞因子的浓度-时间曲线进行最小二乘拟合。拟合函数为符合以下公式的 S 形曲线(R2<0.95 的拟合结果在后续步骤中被排除):
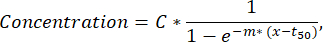
其中 C 表示浓度平台值 [nM],t50 表示半最大值偏移时间 [s],m 表示 Hill 斜率 [min-1]。基于这些参数,提取如下曲线特征参数:- Cmax [nM]:测得的最大浓度。
 :分泌起始时间,即拟合曲线达到 C 的 10% 时的时间。
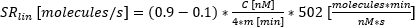 :分泌速率为浓度-时间曲线在 10% 至 90% 区间内的近似线性斜率。
结果
本研究所展示的功能性单细胞平台能够测量多个参数。首先,与标准技术类似,测量结束时分泌细胞的频率如图所示(图4A)。外周血单个核细胞(PBMC)经1 µg/mL脂多糖(LPS)刺激6小时后,5.81%的细胞分泌IL-6(n=1270),4.55%分泌TNFα(n=995),6.06%分泌IL-1β(n=1326)。
为了定量细胞因子的分泌,使用已知浓度的重组细胞因子生成标准曲线(图 4B)。这些标准曲线可用于随时间定量液滴内细胞因子的浓度。以典型结果为例,LPS 刺激的外周血单个核细胞(PBMC)在液滴内的平均 IL-6 浓度在 90 分钟后达到平台期,而液滴内平均 IL-1β 浓度则从 90 分钟起上升更为迅速,体现了该平台的动态分辨率以及分离分泌特定细胞因子的细胞亚群的可能性(图 4C)。由于测量时间点之间的浓度发生变化,因此可计算每种细胞因子的动态分泌速率。根据每种细胞因子的平均分泌速率(图 4D),分泌 IL-6 的细胞表现出平均分泌速率持续下降的趋势,而分泌 TNFα 和 IL-1β 的细胞均在 90 分钟测量时间后分泌速率上升,并在 150 分钟后出现第二次下降。
此外,可根据分泌和共分泌的细胞因子将细胞聚类为不同的亚群(图 4E)。其中,单独分泌 IL-6 和 TNFα 的细胞分别占分泌 IL-6 或 TNFα 细胞总数的 30.2% 和 26.4%,而单独分泌 IL-1β 的细胞占所有分泌 IL-1β 细胞的 68.8%。此外,还可解析共分泌对分泌浓度和分泌速率的影响(图 4F)。通过分析 IL-6 分泌细胞发现,当细胞同时产生 TNFα 或 IL-1β 时,IL-6 的分泌量存在差异。类似地,在整个测量过程中,仅分泌 IL-6 的细胞,以及同时分泌 IL-6 与 TNFα(分泌率较高)或 IL-6 与 IL-1β(IL-6 分泌率较低)的细胞,其平均分泌速率的分布具有统计学上的显著差异。
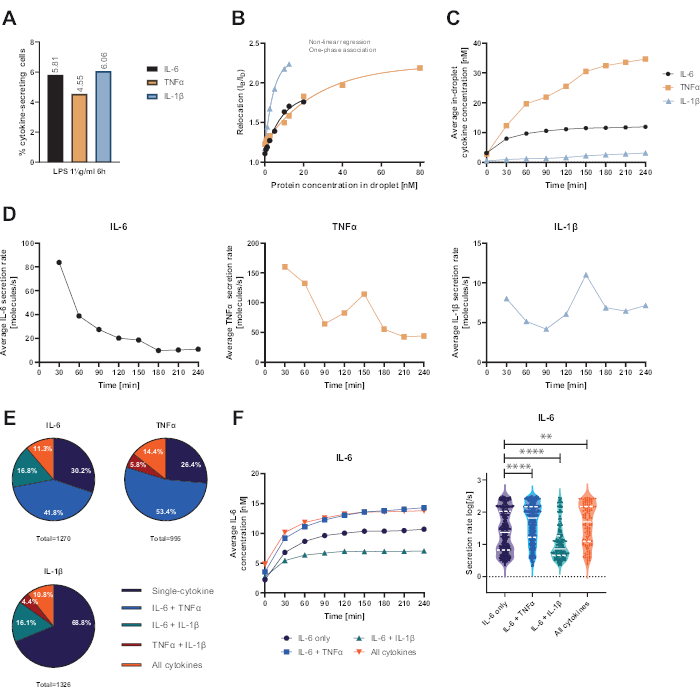
图 4:PBMC 经 1 µg/mL LPS 刺激 6 小时后分泌 IL-6、TNFα 和 IL-1β 的代表性结果。 (A)在 4 小时检测结束时分泌 IL-6、TNFα 和 IL-1β 的 PBMC 百分比。(B)使用已知浓度的重组细胞因子生成多重细胞因子标准曲线。这使得可通过重定位值计算液滴内细胞因子浓度,从而实现对细胞实验的定量。数据点采用非线性单相结合曲线拟合,r2=0.9926(IL-6)、0.9901(TNFα)、0.9990(IL-1β)。(C)在 4 小时检测时间内,分泌细胞释放的 IL-6、TNFα 和 IL-1β 的平均分泌浓度。(D)在 4 小时检测时间内,IL-6、TNFα 和 IL-1β 的平均分泌速率。(E)共分泌细胞中分泌 IL-6、TNFα 或 IL-1β 及其组合形式的相对百分比。归一化至每种细胞因子检测到的所有分泌细胞。(F)IL-6 分泌细胞在检测时间内的平均 IL-6 浓度及平均分泌速率(对数)分布,具有共分泌分辨能力(仅 IL-6 组 n=383,IL-6 + TNFα 组 n=531,IL-6 + IL-1β 组 n=213,IL-6+TNFα+IL-1β 组 n=143)。使用双侧、非配对、非参数 Kolmogorov-Smirnov 检验评估分泌速率分布的统计学差异(95% 置信度),p 值已标出。**(p <0.002)和 ****(p <0.0001)。实线表示中位数,虚线表示四分位数。n总细胞数 = 21 866。 请点击此处查看该图的高清版本。
为了在单细胞水平上提取更多信息,可将S形函数拟合到每个细胞和细胞因子的浓度-时间数据点上(图5)。图5A展示了一个细胞的典型浓度随时间变化的数据集及其相应的S形拟合曲线。在此,最小二乘法拟合过程得到以下参数:C,对应曲线的上限平台值;t50,表征曲线相对于零点的时间偏移;以及Hill斜率m,描述S形曲线上升段的陡峭程度,该段涵盖了测量过程中达到10%至90%浓度值的范围。根据这些拟合参数,可进一步提取出若干曲线特征参数,如步骤7.12所述,包括Cmax(数据中的最高浓度值)、tstart(分泌起始时间,定义为达到上限平台浓度值的10%时的时间点)和SRlin(曲线上升阶段的分泌速率)。
为了对细胞亚群进行分类,将从所有单细胞拟合中获得的曲线特征参数分别分为三类:Cmax 值分为低、中、高;tstart 分为早期、中期和晚期;SRlin 分为慢速、中速和快速分泌者。为说明该分类方法,展示了四个典型的单细胞分泌曲线及其相应的曲线特征参数(图5A-D),其中曲线A表现为早期、低分泌量、中等速率的分泌特征,曲线B为早期、慢速、高分泌量的分泌者,曲线C为早期、快速、高分泌量的分泌者,曲线D则表现为晚期、低分泌量的特征。需要注意的是,这些分类阈值取决于具体的细胞类型、细胞因子及实验参数,需根据每个具体的研究问题进行调整。此外,本研究仅考虑了外周血单个核细胞(PBMC)在1 µg/mL LPS刺激6小时后的IL-6分泌情况,结果显示大多数细胞为早期分泌者和高分泌者,分别占80%和79%(图5E-F)。在分泌速率方面,观察到一种双相响应,其中55%的IL-6分泌细胞为慢速分泌者,39%为快速分泌者(图5G)。
为进一步表征分泌行为,将每个细胞的曲线特征参数相互作图,并提取出不同的聚类群(图5H-J)。tstart 与 Cmax 之间未表现出明显相关性(图5H):其中两个最大的细胞群分别为早期低分泌细胞和与分泌起始时间无关的高分泌细胞。在分析 tstart 与 SRlin 的关系时(图5I),大多数细胞为早期慢速分泌细胞,同时存在一个明显的早期高速分泌细胞亚群,以及少量从慢速/中等速度到晚期才开始分泌的细胞。在 SRlin 与 Cmax 的相关性分析中(图5J),几乎不存在快速低至中等分泌的细胞,仅存在较多的快速低分泌细胞群体。此外,存在一个较大的快速分泌细胞群体,其分泌行为不依赖于测得的最大浓度;同时存在两个高分泌细胞亚群,分别表现为慢速或快速分泌。综上所述,通过分析单个细胞曲线特征参数之间的关系,可以获得更为细致的分泌特征,并有望从单细胞分泌测量数据中挖掘出新的生物学发现。
通过上述分析,我们提取了共分泌细胞的分泌动态(图6)。两条示例曲线显示了来自两个单细胞的IL-6与TNFα共分泌的不同动态:一条曲线显示两种细胞因子同时开始分泌(图6A),另一条则显示分泌起始呈顺序性,其中IL-6首先分泌(图6B)。为了对所有共分泌细胞进行分类,我们定义了60分钟的分泌延迟阈值:所有在此时间范围内开始分泌的细胞被归类为同时分泌者,而延迟更长的细胞则被归类为顺序分泌者。该分析还可用于判断哪种细胞因子首先分泌。对于IL-6和TNFα,76%的细胞主要表现为同时共分泌(图6C);而对于IL-6和IL-1β,86%的细胞表现为顺序共分泌,且大多数情况下IL-6是首先分泌的细胞因子(图6D)。
观察所有共分泌细胞中不同细胞因子分泌起始时间,实验中未发现分泌起始时间之间存在明显的相关性。对于IL-6与TNFα的共分泌(图6E),在0 min附近存在较大的纵向聚类,对应于共分泌细胞更倾向于以IL-6的分泌起始为主。对于IL-6与IL-1β的共分泌(图6F),大多数细胞在测量开始时即启动IL-6的分泌,而IL-1β则主要在后期分泌。综上所述,本文所呈现的分析方法能够识别出不同的分泌细胞亚群以及复杂的细胞因子共分泌动态。
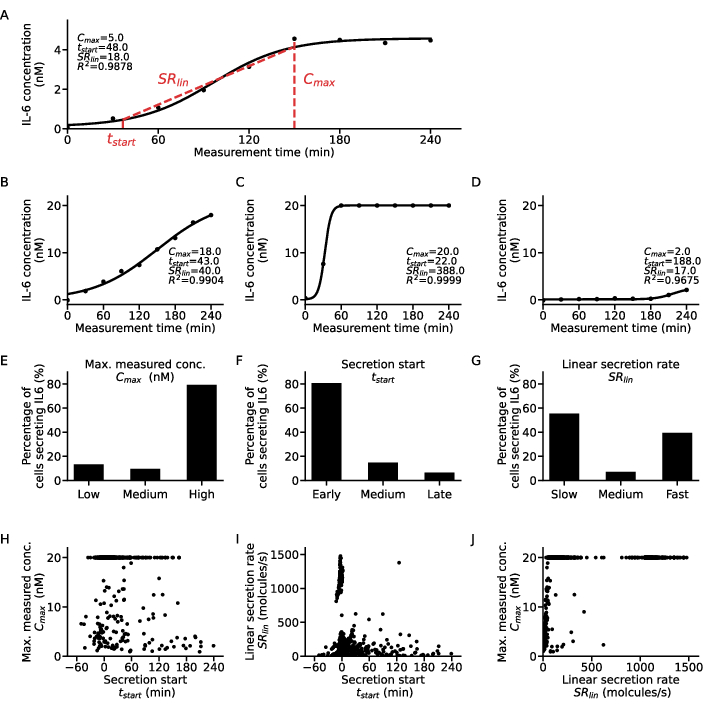
图5:单个IL-6分泌细胞曲线不同分泌动态模式的详细分析。(A)测量时间内代表性单细胞因子浓度数据,包含拟合的S型曲线及提取的参数。(B-D)LPS刺激后发现的三种不同类型IL-6分泌细胞的典型单细胞因子浓度曲线。(E-G)根据以下标准分类为不同类型分泌细胞的IL-6分泌细胞所占百分比(n=633):E. Cmax:低 <5 nM,高 >19.5 nM;F. tstart:早期 <30 min,晚期 >120 min;G. SRlin:慢 <250 分子/s,快 >750 分子/s。(H-J)每个单个细胞(n=633)的三种分泌曲线特征参数Cmax、tstart和SRlin之间的关系。Cmax=20 nM处的大峰群是由于达到检测方法的上限所致。请点击此处查看该图的放大版本。

图6:从单细胞浓度曲线中提取共分泌模式。 (A-B)单个细胞同时(A)和相继(B)共分泌 IL-6 和 TNFα 的代表性浓度曲线。 (C-D)共分泌 IL-6 和 TNFα(n=249)或 IL-6 和 IL-1β(n=72)的细胞百分比。相继分泌定义为两种细胞因子分泌起始时间之间的延迟超过60分钟。颜色表示哪种细胞因子首先开始分泌。 (E-F)每个分泌细胞中不同细胞因子分泌起始时间之间的关系(nIL6-TNFα=249,nIL6-IL1β=72)。 请点击此处查看该图的放大版本。
讨论
细胞因子的释放与分泌在免疫学和临床医学中经常被研究3细胞因子分泌失衡不仅会对感染性疾病患者产生有害影响,还可能对神经系统疾病、炎症或癌症患者造成不良后果。26,27,28尽管细胞因子及其分泌细胞在健康与疾病中的重要性已得到充分证实,但由于现有技术方法无法以时间分辨的方式准确检测和定量单个细胞来源的细胞因子,对它们的研究仍然具有挑战性。本实验流程采用既定的PBMC刺激方案,并检测其分泌的IL-6、TNF-α和IL-1β。选择使用PBMC而非单独纯化的亚群,是基于此前对细胞因子释放综合征(CRS)的研究应用。23一种以血浆中促炎细胞因子(包括 IL-6、TNF-α 和 IL-1β)浓度显著升高为特征的病症29由于CRS通常不仅与单一人群相关,我们使用了外周血单个核细胞(PBMCs),因为它们在体内存在 体内然而,如果科学问题需要,可以对细胞亚群进行纯化并分别评估。孵育时间、刺激条件和动态检测范围均已优化,以测量三种目标细胞因子的分泌。本文展示的工作流程和数据说明了如何建立、校准、定量、测量和分析多种细胞因子的时间分辨单细胞分泌。该方案为多因子分泌功能分析提供了蓝图,有助于揭示患者体内分泌细胞因子的广泛功能与动态多样性。
所述检测方案的多个关键方面实现了独特的生物学读出。首先,通过微流控液滴对单个细胞进行封装,可获取每个单独细胞的数据。多重细胞封装事件可通过图像分析被检测并根据研究问题选择性地纳入或排除。其次,通过在液滴内引入多个独立的荧光免疫检测,并结合功能化纳米颗粒的有序排列,可同时定量测量多达三种细胞因子的浓度。这种多重检测能力使得在单细胞水平上分析细胞因子共分泌模式成为可能。第三,液滴的固定化处理允许对每个分泌细胞的细胞因子分泌进行时间序列上的测量与关联分析,从而能够区分同时发生与顺序发生的分泌事件。该时间分辨率独特地提供了关于分泌模式以及不同类型分泌细胞亚群的信息。最后,通过并行化的图像分析,能够高效地从包含超过20,000个单细胞的实验数据中提取和追踪大量信息。对单个分泌曲线的进一步分析还使得发现表型亚群及其功能特性成为可能。
除了其独特的检测读数外,该检测方法相较于标准的细胞因子分析还具有技术上的优势。由于包裹单元的体积很小,约为60 pL,因此可以直接从生物来源检测分泌细胞因子的绝对量,其检测限与细胞分泌水平相匹配。该检测方法的微型化还减少了昂贵生物试剂的使用量。此外,实验装置对专用设备的需求极少,而这些设备通常已在生物学和生物工程实验室中具备。荧光显微镜广泛可用,而注射泵在生物工程实验室中也常被使用,或可相对低成本购得。如果已有细胞培养设施,运行实验所需的全套设备成本约为148,000欧元,其中大部分费用来自自动倒置荧光显微镜(130,000欧元)。然而,此类仪器在生物实验室中通常已有配备,其余成本则主要来自注射泵(13,000欧元,但存在更便宜的替代方案)以及一些小型设备。液滴芯片和观察室的制备方法已有非常详尽的描述17,可在具备必要基础设施(如大多数生物工程实验室都配备的烘箱和等离子清洗仪)的非洁净室环境中完成。此外,也有不同的供应商可为有需求的实验室提供液滴发生芯片。由于所需体积很小,该检测方法成本低廉且易于建立。
为了确保最高程度的可重复性,我们确定了该方案成功实施的一些关键步骤。初次使用者常见的问题是测量过程中液滴发生移动。尽管分析软件能够在一定程度上追踪单个液滴,但过度移动会导致丧失单细胞分辨率并产生不准确的结果。通过使用密封性良好的测量腔室、合适的液滴尺寸与腔室尺寸、在开始测量前进行短暂的平衡,以及适当的表面活性剂浓度,可以避免液滴移动。另一个关键步骤是在开始测量前进行准确的聚焦。聚焦不当会显著降低荧光重定位值,从而低估分泌细胞因子的量。最后,根据具体的研究问题和实验方案,各步骤之间的时间间隔控制对于可重复性至关重要。特别是填充腔室与开始测量之间的时间间隔应保持一致,否则可能错过分泌细胞因子的检测时间窗口。
该技术的局限性包括细胞包封后难以对其进行进一步操作。因此,目前尚无法在包封后添加或去除刺激物、抗体或其他试剂。此外,由于细胞被封装在独立的生物反应器中,在检测过程中细胞之间无法发生相互作用(包括接触依赖性作用或旁分泌信号传递)。这一限制可通过预先进行整体孵育在一定程度上得以克服。同时,也不能排除分泌的细胞因子可能产生增强的自分泌效应,且这些效应无法被准确量化或排除,因为仅能检测到抗体可识别的分泌型细胞因子。因此,对细胞因子分泌的独立观察结果必须始终结合具体的研究问题和应用场景进行解读。然而,这一局限性也可被用于对封装的多细胞聚集体(如双细胞、三细胞)进行深入研究(如有此需求),从而为探究细胞间接触或旁分泌相关问题提供有价值的实验体系。最后,该检测方法的动态范围也有限,需根据具体应用进行优化调整。本文中,我们已将检测的动态范围调整至与预期分泌的细胞因子量相匹配的水平。
为了进一步提升该检测方法的能力和适用性,未来可在生物学、技术及数据分析等方面进行若干改进。在生物学方面,可通过调整该检测方法,整合更多细胞因子、其他分泌蛋白、代谢物或细胞表面标志物的检测。此外,该检测方法还可与其他基于细胞的检测方法结合,纳入统一的工作流程,以拓展检测读数(例如流式细胞术染色或测序)。同时,该检测方法的可用性也可进一步简化,例如开发用于液滴生成与观察的一体化微流控芯片,从而有望在临床环境中实现非生物工程实验室的更广泛应用。在数据分析方面,可通过增强自动化并采用机器学习方法,进一步扩展从图像中提取和追踪信息的能力,例如在无需荧光标记的情况下识别每个液滴中细胞(或细胞群)及微珠链的存在与位置。此举将释放额外的荧光通道,可用于免疫检测,从而实现更多细胞因子的并行检测。
本文所述的检测方法及其相关方案和分析可应用于与细胞因子分泌动态相关的多种潜在场景。更具体而言,该检测方法有望解决一些基础免疫学问题,例如鉴定特定细胞类型和激活状态下的细胞因子分泌谱、分泌细胞因子细胞的多功能性,或细胞因子平衡的时间特性及其维持机制。此外,在临床应用中,该平台可能有助于揭示细胞因子在急性或慢性炎症反应中的作用,例如在 COVID-1930 中所观察到的现象,或为基于独特分子特征(如自身炎症反应31)对患者进行分层和个体化治疗提供工具。总之,对单个细胞细胞因子分泌进行定量、时间分辨的评估是一种亟需的方法,因为它能够阐明特定药物、感染、基因改变或体外(ex vivo)刺激如何诱导特定的免疫应答。
披露
细胞的珠线测量等特定方面已获得专利。
致谢
本项目得到了瑞士联邦理工学院(ETH)领域个性化健康与相关技术(PHRT)战略重点领域的资助(项目编号 #2021-349)、欧洲研究委员会启动资助(项目编号 #803,336)以及瑞士国家科学基金会(项目编号 #310030_197619)的支持。此外,我们感谢 Guilhem Chenon 和 Jean Baudry 在初始 DropMap 分析仪开发工作中所做出的贡献。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 008-FluoroSurfactant | RAN Biotechnologies | 008-FluoroSurfactant-10G | |
| 双流聚焦液滴生成器,30 µm喷嘴,PFOS疏水表面处理 | Wunderli 芯片 | ||
| Alexa Fluor 647 NHS 酯 | 赛默飞世尔科技 | A20006 | https://www.thermofisher.com/ch/en/home/references/protocols/cell-and-tissue-analysis/labeling-chemistry-protocols/fluorescent-amine-reactive-alexa-fluor-dye-labeling-of-igm-antibodies.html |
| 抗人IL-1β (小鼠单克隆),AF647 体内标记 | PeproTech | 500-M01B | |
| ARcare92524 双面胶带 | 粘附研究 | ARcare92524 | |
| Bio-Adembeads 链霉亲和素 plus 300 nm | Ademtech | 货号#03233 | |
| 生物素标记的山羊抗人IL-1β | PeproTech | 500-P21BGBT | |
| 牛血清白蛋白(BSA) | Sigma-Aldrich | A3059 | |
| 细胞刮刀 | TPP | 99002 | |
| CellTrace Violet 细胞增殖检测试剂盒 | Invitrogen | C34557 | 细胞染色液 |
| Chromafil Xtra PTFE-45/25 注射器滤器 | Macherey-Nagel | 729205 | |
| Costar 6孔透明平底超低吸附板 | 康宁 | 3471 | |
| Countess 细胞计数板载玻片 | Invitrogen | C10283 | |
| D-生物素 | Fluorochem | M02926 | |
| 不含钙、镁的DPBS | Gibco | 14196-094 | |
| epT.I.P.S. 标准 2-200 µl | Eppendorf | 30000889 | |
| 乙二胺四乙酸二钠盐溶液 | Sigma-Aldrich | 3690 | |
| EZ-LINK-NHS-PEG4-生物素 | ThermoFisher | A39259 | https://www.thermofisher.com/order/catalog/product/20217 |
| 人FcR封闭试剂 | Miltenyi Biotec | 130-059-901 | |
| 胎牛血清 | Gibco | 10270-106 | |
| 便捷洗洁精 | Migros | 5.01002×10¹¹ | |
| HEPES (1 M) | Gibco | 15630-080 | |
| HFE-7500 油 3M™ Novec | Fluorochem | B40045191 | |
| Idex F-120 手拧一体式接头,标准滚花,天然聚醚醚酮(PEEK),1/16" OD导管,10-32 锥形 | Cole-Parmer | GZ-02014-15 | |
| IL-6 单克隆抗体(MQ2-13A5 - 大鼠),FITC | 赛默飞世尔科技 | 11-7069-81 | |
| IL-6 单克隆抗体(MQ2-39C3),生物素标记 | 赛默飞世尔科技 | 13-7068-85 | |
| KnockOut血清替代物 | ThermoFisher | 10828-010 | |
| Loctite AA 3491 可紫外光固化的胶粘剂 | Henkel AG & Co | 3491 | |
| 显微镜载玻片(76×26×1 mm,透明白色) | 门策尔 Glä血清 | ||
| 轻质矿物油 | Sigma-Aldrich | 330779 | |
| NanoPort 无头组件,10-32 锥形,适用于 1/16" 光密度 | Idex | N-333 | |
| 钕铁硼磁铁 | K&J 磁性材料 | BZX082 | |
| Omnifix-F 注射器,1 ml,LS | 布劳恩 | 9161406V | |
| 青霉素-链霉素(10,000 U/mL) | Gibco | 15140-122 | |
| 磷酸盐缓冲液 | Sigma-Aldrich | P4417 | |
| Pluronic F-127, 0.2 µm 过滤(水中 10% 溶液) | 赛默飞世尔科技 | P6866 | |
| 精密擦拭纸 | Kimtech Science | 5511 | |
| PTFE 微型管 0.30 × 0.76 mm | FisherScientific | 1191-9445 | |
| PTFE 微型管 0.56 × 1.07 mm | FisherScientific | 1192-9445 | |
| 重组人 IL-1β | Peprotech | 货号#200-01B | |
| 重组人 IL-6 | Peprotech | 货号#200-06 | |
| 重组人血清白蛋白(HSA) | Sigma-Aldrich | A9731 | |
| 重组人TNF-α | Peprotech | 货号#300-01A | |
| 可重复使用的活检穿孔器,直径分别为 0.75 mm 和 6 mm | 施蒂费尔 | 504529 和 504532 | |
| RPMI 1640 培养基,无酚红 | Gibco | 11835-030 | |
| 标准LPS,大肠杆菌K12 | InvivoGen | tlrl-eklps | |
| 23 号 Sterican 针头,适用于 0.56 mm 直径的微管 | FisherScientific | 15351547 | |
| 27 号 Sterican 针头,适用于 0.30 mm 直径的微管 | FisherScientific | 15341557 | |
| TNF α 单克隆抗体(MAb11),PE标记 | ThermoFisher | 12-7349-81 | |
| TNF-α 单克隆抗体(MAb1),生物素化(实验室自制) | 赛默飞世尔科技 | 14-7348-85 | |
| 0.4% 台盼蓝染色液,用于 Countess 自动细胞计数仪 | Invitrogen | T10282 | |
| 真空过滤 "快速"-Filtermax | TPP | 99500 | |
| 设备 | |||
| Cameo 4 自动切割机 | 轮廓 | ||
| Cetoni Base 120 + 3台NEMESYS低压注射泵 | Cetoni | NEM-B101-03 A | |
| Countess II 自动细胞计数仪 | 赛默飞世尔科技 | ||
| 倒置落射荧光显微镜 Ti2 | 尼康 | ECLIPSE Ti2-E,Ti2-E/B*1 | |
| OKO Lab 笼式培养箱,黑色面板 | OKO Lab | ||
| ORCA-Fusion 数字 CMOS 相机 | 滨松 | C14440 | |
| SOLA 光源引擎 | Lumencor | sola 80-10247 |
参考文献
- Chen, L., et al. Inflammatory responses and inflammation-associated diseases in organs. Oncotarget. 9 (6), 7204-7218 (2017).
- Cicchese, J. M., et al. Dynamic balance of pro- and anti-inflammatory signals controls disease and limits pathology. Immunol Rev. 285 (1), 147-167 (2018).
- Liu, C., et al. Cytokines: From clinical significance to quantification. Adv Sci. 8 (15), e2004433(2021).
- Rojas, J. M., Avia, M., Martín, V., Sevilla, N. IL-10: A multifunctional cytokine in viral infections. J Immunol Res. 2017, 6104054(2017).
- Kohanawa, Y. M. A regulatory effect of the balance between TNF-α and IL-6 in the granulomatous and inflammatory response to Rhodococcus aurantiacus infection in mice. J Immunol. 177 (1), 642-650 (2006).
- Geginat, J., et al. Plasticity of human CD4 T cell subsets. Front Immunol. 5, 630(2014).
- Sallusto, F. Heterogeneity of human CD4+ T cells against microbes. Ann Rev Immunol. 34 (1), 317-334 (2016).
- Chetaille Nézondet, A. L., Poubelle, P. E., Pelletier, M. The evaluation of cytokines to help establish diagnosis and guide treatment of autoinflammatory and autoimmune diseases. J Leukocyte Biol. 108 (2), 647-657 (2020).
- Sims, J. T., et al. Characterization of the cytokine storm reflects hyperinflammatory endothelial dysfunction in COVID-19. J Allergy Clin Immunol. 147 (1), 107-111 (2021).
- Yasen, A., et al. Single-cell RNA sequencing reveals the heterogeneity of infiltrating immune cell profiles in the hepatic cystic echinococcosis microenvironment. Infection and Immunity. 89 (12), (2021).
- Jiang, Y., et al. Single-cell RNA sequencing highlights intratumor heterogeneity and intercellular network featured in adamantinomatous craniopharyngioma. Sci Adv. 9 (15), (2023).
- Tanguay, S., Killion, J. J. Direct comparison of ELISPOT and ELISA-based assays for detection of individual cytokine-secreting cells. Lymphokine Cytokine Res. 13 (4), 259-263 (1994).
- Bucheli, O. T. M., Sigvaldadóttir, I., Eyer, K. Measuring single-cell protein secretion in immunology: Technologies, advances, and applications. Eur J Immunol. 51 (6), 1334-1347 (2021).
- Brower, K. K., et al. Double emulsion flow cytometry with high-throughput single droplet isolation and nucleic acid recovery. Lab Chip. 20 (12), 2062-2074 (2020).
- Brower, K. K., et al. Double emulsion picoreactors for high-throughput single-cell encapsulation and phenotyping via FACS. Anal Chem. 92 (19), 13262-13270 (2020).
- Luo, X., Chen, J. Y., Ataei, M., Lee, A. Microfluidic compartmentalization platforms for single cell analysis. Biosensors. 12 (2), 58(2022).
- Bounab, Y., et al. Dynamic single-cell phenotyping of immune cells using the microfluidic platform DropMap. Nat Protoc. 15 (9), 2920-2955 (2020).
- Eyer, K., et al. Single-cell deep phenotyping of IgG-secreting cells for high-resolution immune monitoring. Nat Biotechnol. 35 (10), 977-982 (2017).
- Gaa, R., et al. Versatile and rapid microfluidics-assisted antibody discovery. mAbs. 13 (1), 198130(2021).
- Gerard, A., et al. High-throughput single-cell activity-based screening and sequencing of antibodies using droplet microfluidics. Nat Biotechnol. 38 (6), 715-721 (2020).
- De Jonghe, J., et al. spinDrop: a droplet microfluidic platform to maximise single-cell sequencing information content. Nat Comm. 14 (1), 4788(2023).
- Wheeler, M. A., et al. Droplet-based forward genetic screening of astrocyte-microglia cross-talk. Science. 379 (6636), 1023-1030 (2023).
- Portmann, K., Linder, A., Oelgarth, N., Eyer, K. Single-cell deep phenotyping of cytokine release unmasks stimulation-specific biological signatures and distinct secretion dynamics. Cell Rep Meth. 3 (7), 100502(2023).
- Portmann, K., Linder, A., Eyer, K. Stimulation-induced cytokine polyfunctionality as a dynamic concept. eLife. 12, 89781(2023).
- Armbruster, D. A., Pry, T. Limit of blank, limit of detection and limit of quantitation. Clin Biochem Rev. 29, S49-S52 (2008).
- Yang, J., et al. New insight into neurological degeneration: Inflammatory cytokines and blood-brain barrier. Front Mol Neurosci. 15, 1013933(2022).
- Kim, P. S., Ahmed, R. Features of responding T cells in cancer and chronic infection. Curr Opin Immunol. 22 (2), 223-230 (2010).
- Becher, B., Spath, S., Goverman, J. Cytokine networks in neuroinflammation. Nat Rev Immunol. 17 (1), 49-59 (2017).
- Cosenza, M., Sacchi, S., Pozzi, S. Cytokine release syndrome associated with T-cell-based therapies for hematological malignancies: Pathophysiology, clinical presentation, and treatment. Int J Mol Sci. 22 (14), 7652(2021).
- Hu, B., Huang, S., Yin, L. The cytokine storm and COVID-19. J Med Virol. 93 (1), 250-256 (2021).
- Marcuzzi, A., et al. Autoinflammatory diseases and cytokine storms-Imbalances of innate and adaptative immunity. Int J Mol Sci. 22 (20), 11241(2021).
重印与许可
