结合液相色谱-高分辨质谱法的13C6-葡萄糖标记方法具有广泛适用性,为今后研究药用植物中次生代谢物合成所涉及的主要器官和代谢途径,以及次生代谢物的综合利用奠定了基础。
本文内容
摘要
摘要
本文介绍了一种用于鉴定参与次生代谢物合成的主要器官的新型高效方法。作为最重要的次生代谢物之一, 重楼 变种 yunnanensis (Franch.) Hand.-Mzt. (PPY), 巴黎 皂苷(PS)具有多种药理活性,而原人参二醇(PPY)的需求日益增长。本研究建立了叶、根茎和茎维管束 13C6- 葡萄糖喂养与非喂养的四种处理,以精确定证所涉及的主要器官 巴黎 皂苷VII(PS VII)的合成。通过结合液相色谱-质谱联用技术(LC-MS), 13C/12叶片、根茎、茎和根在不同处理下的C比率被快速且准确地计算,并获得了四种PS同位素离子峰(M−)比值如下:(M+1) −/−,(M+2) −/−,(M+3) −/− 和(M+4) −/−结果显示,该比例 13C/12茎维管束和根茎取食处理中根茎的碳含量显著高于非取食处理。与非取食处理相比,PS VII分子(M+2)的比例 −/− 在叶片和茎维管束饲喂处理下,叶片中的含量显著增加。同时,与不饲喂处理相比,PS VII分子(M+2)的比例 −/− 在根茎处理下的叶片中未表现出显著差异。此外,PS VII分子(M+2)的比值 −/− 在茎、根和根茎中,四种处理之间的差异不显著。与非取食处理相比,其比值 巴黎 皂苷II(PS II)分子(M+2) −/− 在叶片取食处理下的叶片中未表现出显著差异,且(M+3) −/− 在叶片饲喂处理下,叶片中PS II分子的比例较低。该数据证实,合成PS VII的主要器官是叶片。这为今后鉴定药用植物中次生代谢物合成的主要器官及相关途径奠定了基础。
引言
植物次生代谢物的生物合成途径复杂多样,涉及高度特异且多样的积累器官1。目前,许多药用植物中次生代谢物的具体合成位点及其负责器官尚不明确。这种不确定性对旨在优化药材产量和质量的栽培技术的战略发展与实施构成了重大障碍。
分子生物学、生物化学和同位素标记技术被广泛用于解析药用植物中次生代谢物的合成途径及其合成位点2,3,4,5,这些方法各自具有独特的优点和局限性,例如在效率和准确性方面存在差异。分子生物学方法在精确定位生物合成途径中的位点方面具有高精度,但耗时较长。此外,对于缺乏公开可用基因组序列的物种,这些方法的应用受到限制,因而在此类情况下可行性较低6。相比之下,同位素标记技术利用3C/12C、2H/1H和18O/16O等同位素比值,为研究次生代谢物的合成、转运和储存机制提供了快速且可行的手段7,8。该技术可揭示有机化合物和稳定同位素在叶片中的空间分布,从而重建叶片在其生命周期中所经历的环境条件9。此外,通过施加外源性同位素标记物,如13C6-Glucose10和13C6-Phenylalanine11,可生成碳标记的次生代谢物,有助于加深对这些代谢物生成过程及其功能的理解。
传统的碳同位素标记技术由于次生代谢物生物合成途径和转运机制的高度物种特异性,难以准确定位负责其合成的具体器官。液相色谱-质谱联用技术(LC-MS)已成为该领域中一种关键的分析工具,为追踪药物化学合成中的外源性同位素以及研究体内的吸收、分布、代谢和排泄等过程提供了强有力的方法12。LC-MS 具有高灵敏度、操作简便和结果可靠等优势,是监测植物中次生代谢物生成的理想选择13。近年来,LC-MS 因其在外部同位素标记技术中的应用而日益受到青睐,该方法可实现对不同样本中标记效率的评估。这一技术为揭示药用植物中参与次生代谢物合成的主要器官提供了重要信息,是对用于鉴定这些化合物合成部位的生物学方法的有力补充14,15。因此,该方法不仅有助于比较不同样本间的标记效率,还能阐明参与植物次生代谢物生成的关键器官,从而加深我们对其生物合成过程的理解。
我们提出了一种将碳同位素标记与液相色谱-质谱(LC-MS)检测相结合的新方法,用于鉴定药用植物中合成次生代谢物的主要器官。Paris 皂苷(PS)具有多种药理活性,如抗肿瘤、免疫调节和抗炎作用16,且对滇重楼(PPY)的需求日益增长17。因此,我们以PPY幼苗为研究对象,结合13C6-葡萄糖标记与LC-MS方法,揭示了叶片是合成Paris 皂苷VII(PS VII)的主要器官(图1B)。该方法包括四种不同处理:向叶片、根茎和茎部维管束分别施用13C6-葡萄糖,以及设置不施用葡萄糖的对照组。选择13C6-葡萄糖具有策略性,因其可通过呼吸作用迅速代谢为乙酰辅酶A,从而促进PS的合成。利用13C的自然丰度,我们采用气相色谱-稳定同位素比值质谱联用系统(GC-IRMS),测定不同植物器官中的13C/12C比值,并分析PS VII和Paris 皂苷II(PS II)分子中同位素离子峰的比值(图1B)。本方法结合了13C标记的植物次生代谢物前体与先进的质谱技术,相较于传统的碳同位素标记方法更为简便且准确。这一新策略不仅加深了我们对药用植物中次生代谢物合成相关器官的理解,也为今后探索这些化合物的生物合成途径奠定了坚实基础。
方案
1. 实验准备
- 确保植物生长期间,温室相对湿度为75%,昼夜温度为20 °C/10 °C,光周期为12小时光照和12小时黑暗,光照强度为100 µmol·m⁻²·s⁻¹。-2·s-1通过发光二极管(LED)灯提供辐照度,保持LED灯与植物冠层之间30 cm的距离。
注意:光周期和光照强度根据云南生长季节的日照时数确定。光照强度通常使用量子传感器进行测量(参见 材料表)。根据药用植物的特性调整必要的环境参数。一旦依据植物特性和当地日照情况对这些环境条件进行了精确校准,就必须在整个实验过程中保持这些设置的一致性。在初始设定完成后,随意更改环境参数可能会影响实验的完整性及结果的可靠性。 - 采用水培方法18 为确保实验的准确性和特异性,将采自云南省文山(104°11′E,23°04′N)的经洗涤的2年生PPY幼苗浸入 1/4 使用霍格兰营养液标准浓度培养 3 天以进行适应。
- 制备霍格兰营养液(参见 材料表) 溶液,按照说明书操作;将1.26 g Hoagland粉末和0.945 g硝酸钙粉末加入4 L纯化水中。制备 13C6-葡萄糖(参见 材料表)溶液,具体操作参见标准手册;加入0.2 g 13C6将葡萄糖粉末加入100 mL纯化水或霍格兰营养液中。
- 准备水培箱和氧气泵(图2;参见 材料清单).
注意:在水培装置中,使用一种 13C6-用于标记的葡萄糖溶液可避免土壤微生物的影响,从而确保溶液直接促进药用植物次生代谢产物的快速合成。为优化吸收条件 13C6-植物吸收葡萄糖时,必须将氧气泵的流速控制在4至8 L/min之间。这种受控的流速对于防止幼苗漂浮于水面至关重要,因为漂浮会显著阻碍其吸收营养物质的能力 13C6-葡萄糖可被有效吸收。将幼苗保持在适当的浸没深度,有利于标记化合物的高效吸收,从而确保水培系统中代谢物合成过程的成功进行。
2. 碳标记实验操作
- 设置四种处理,追踪PS VII和PS II在PPY中的合成器官及合成途径,以证明叶片是合成PS的主要器官。
- 在处理1中,PPY幼苗不进行饲喂;在处理2中,向PPY幼苗叶片喷施0.2% 13C6-葡萄糖;在处理3中,向PPY幼苗根茎饲喂0.2% 13C6-葡萄糖;在处理4中,通过茎部切口向PPY幼苗饲喂0.2% 13C6-葡萄糖(图2A)。
注意:处理1设为对照组。处理2用于证明叶片能够合成PS。处理3和处理4用于证明根茎能够吸收13C6-葡萄糖。 - 在处理1和处理2中,将PPY幼苗培养于常规Hoagland营养液中。在处理2中,于早晨、下午和晚上各向叶片喷施一次5 mL的0.2% 13C6-葡萄糖溶液。
- 在处理3和处理4中,将PPY幼苗培养于含有0.2% 13C6-葡萄糖的Hoagland营养液中。在处理4中,使用手术刀(见材料表)从中间切断PPY幼苗的茎,但保留维管束相连。
- 每种处理标记3天,每1.5天更换一次营养液。采用随机区组设计进行实验,每种处理重复3次。
注意:喷施叶片时,应在叶片背面放置吸水纸,防止液滴落入下方营养液中,以免影响实验结果。茎部切口并非完全分离,而是保留肉眼可见的导管连接。
- 在处理1中,PPY幼苗不进行饲喂;在处理2中,向PPY幼苗叶片喷施0.2% 13C6-葡萄糖;在处理3中,向PPY幼苗根茎饲喂0.2% 13C6-葡萄糖;在处理4中,通过茎部切口向PPY幼苗饲喂0.2% 13C6-葡萄糖(图2A)。
3. 取样与制备方法
- 在为期3天的13C6-葡萄糖实验结束后,分别收集各处理组的叶片、茎、根茎和根。彻底清洗所采集的植物器官,以去除表面杂质。
注意:可通过液相色谱-质谱(LC-MS)分析洗涤液中是否含有13C丰度,若未检出则表明洗涤干净19。 - 使用电热恒温鼓风干燥箱(见材料表)烘干清洗后的植物器官。先在105 °C下干燥30分钟,然后调至60 °C直至恒重。使用全自动样品快速研磨仪(见材料表)将干燥后的植物器官研磨成粉末。
注意:所得粉末用于不同植物器官中PS VII、PS II以及13C/12C比值的定量分析。 - 使用电子分析天平(见材料表)准确称取每份样品30 mg粉末,置于2 mL 75%(v/v)乙醇-水溶液中。使用数控超声波清洗器(见材料表),在25 °C条件下以60 kHz频率进行超声提取20分钟,重复2次;合并提取液,并制备三个平行样品20。
注意:应尽量减少样品称量误差。 - 用氮气吹干提取液,然后用色谱级甲醇定容至1 mL。进样前使用0.22 µm有机相滤膜(见材料表)过滤(图2B)。
注意:氮气吹干时切勿将提取物完全吹干;提取液必须经过微孔滤膜过滤,以确保杂质干扰最小化。
4. 液相色谱-质谱联用仪的设置与操作
- 质谱仪设置
- 将真空泵的开关拨至开启位置以启动真空泵。打开氩气钢瓶的主阀门,然后调节分压阀,使压力达到约 0.3 MPa 的目标值。随后,确保氮气阀门也已打开。
- 启动质谱仪控制软件(见材料表)。在软件面板中点击加热电喷雾离子源(HESI 源),并输入参数,包括毛细管电压(负离子模式为 3.0 kV)、毛细管温度(350 °C)、鞘气(N2)流速(35 任意单位)、辅助气(N2)流速(15 任意单位),并基于聚苯乙烯(PS)的分子质量进行全扫描(扫描范围为 m/z 100–1,500)。点击应用按钮以激活离子源。
注意:至少等待 8 小时,以确保系统达到实验所需的足够真空度。在分析前检查氩气和氮气的气体压力是否充足。
- 液相色谱预运行
- 通过将 0.1% 甲酸与水混合制备流动相 A,并使用乙腈作为流动相 B(见材料表)。将两种流动相在超声波清洗器中超声脱气 15 分钟,以去除溶解的气体。然后,将流动相 A 连接到对应的流路通道,流动相 B 同样连接。最后,配制体积比为 1:9 的甲醇-水溶液作为冲洗液,并手动填充泵和进样器的溶剂瓶。
注意:超声波清洗器的频率为40 kHz。
- 通过将 0.1% 甲酸与水混合制备流动相 A,并使用乙腈作为流动相 B(见材料表)。将两种流动相在超声波清洗器中超声脱气 15 分钟,以去除溶解的气体。然后,将流动相 A 连接到对应的流路通道,流动相 B 同样连接。最后,配制体积比为 1:9 的甲醇-水溶液作为冲洗液,并手动填充泵和进样器的溶剂瓶。
- 液相色谱方法建立
- 点击"仪器设置"按钮,进入方法编辑窗口。
- 点击"新建"按钮,开始创建新的液相色谱-质谱联用仪方法。
- 设定液相色谱方法的总运行时间。然后,在方法编辑窗口中输入压力限值、总流速、流速梯度、样品温度、柱温以及就绪温度差等必要参数。
注意:液相色谱-质谱联用仪的方法设置需根据目标分析物及所用液相色谱柱类型进行调整。为获得最佳结果,建议使用 BEH C18 色谱柱,流速为0.3 mL/min,柱温维持在40 °C(见材料表)。梯度洗脱程序设置如下:起始为10% B,在 8 分钟内线性升至30% B,随后在 8 至 16 分钟内升至45% B,在 16 至 24 分钟内升至50% B,在 24 至 30 分钟内升至70% B。此后立即在 0.1 分钟内将梯度恢复至初始的10% B 条件,并保持 2.9 分钟。每次分析进样量为 5 µL。液相色谱-质谱联用仪的方法设置取决于待分析的具体物质及所用液相色谱柱的类型21。
- 质谱采集
- 在设置选项卡中,为质谱方法配置选择常规质谱或质谱n实验类型。输入必要的参数以设定采集时间、极性(正或负)、质量范围、分流阀编号及分流阀持续时间。完成输入后,点击"保存"按钮,将这些设置最终确定并保存为仪器方法。
注意:未连接色谱柱时的默认设置如下:采集时间为 2 分钟;极性为正或负;质量范围为 100 至 1,500。
- 在设置选项卡中,为质谱方法配置选择常规质谱或质谱n实验类型。输入必要的参数以设定采集时间、极性(正或负)、质量范围、分流阀编号及分流阀持续时间。完成输入后,点击"保存"按钮,将这些设置最终确定并保存为仪器方法。
- 根据常规方法进行多级质谱分析。
- 在多级质谱分析中,数据采集应始终采用数据依赖性采集(DDA)模式。在DDA 模式下,质谱仪在串联质谱的第一阶段每次扫描中识别出信号最强的五个离子,随后在第二阶段对这些离子进行碎裂和检测。
注意:所采集的 MS 和 MS/MS 数据可用于后续分析及数据库检索。
- 在多级质谱分析中,数据采集应始终采用数据依赖性采集(DDA)模式。在DDA 模式下,质谱仪在串联质谱的第一阶段每次扫描中识别出信号最强的五个离子,随后在第二阶段对这些离子进行碎裂和检测。
5. 手动数据采集、分析与计算
- 数据采集与分析
- 双击原始文件以打开质谱(MS)中的所有质谱图。手动计算离子与其相应碎片离子之间的质荷比(m/z)差值。
- 将对照组、样本处理组及空白组的原始数据文件导入质谱分析软件,通过精确计算磷脂酰丝氨酸(PS)的质量及其碎片来鉴定PS。
注意:PS VII 和 PS II 通过与标准品溶液的保留时间及共洗脱情况进行比对而确定。液相色谱-质谱(LC-MS)在分子离子峰位置检测到一系列小峰,各同位素离子峰系列的比值保持恒定。当外源性 13C同位素数据已提供,总计 13植物中碳的丰度增加,且植物次生代谢产物的同位素离子峰系列比值发生变化。 最大耐受量 的 质量误差 设定为 5 ppm. - 扫描质荷比(m/z)500–1,500 范围以确定基峰。根据目标分子的精确分子量和保留时间,确定其准确分子量至小数点后四位。查找系列同位素离子流的峰面积,并推导出 M 的值−,(M+1) −,(M+2) −,(M+3) −,以及(M+4) −当流动相含有甲酸时,负离子还包括 (M+COOH) −, (M+COOH+1) −, (M+COOH+2) −, (M+COOH+3) − 和(M+COOH+4) −.
注意:在 m/z 500–1,500 的质荷比范围内选择峰,可提高对 PS VII 和 PS II 分子离子峰鉴定的准确性。例如,PS VII(C51H82O21,1030.5349)主要以COOH形式电离− 甲酸-水混合物中的离子。观察到的同位素系列离子包括 1029.53−, 1030.54−, 1031.54−, 1032.55−, 1033.55−,延伸至1079.56−。
- 数据计算
- 为减少以下因素的影响 13C天然丰度,计算不同处理条件下各器官中标记与未标记离子流的比值,重点关注(M+1)比值−/ M−,(M+2)−/−,(M+3)−/ M− 和 (M+4)−/ M−. 为了准确评估标记同位素与天然存在同位素之间的差异 13C 同化,使用公式(计算 n = 1, 2, 3, 4 时的这些比值1).
比率 = A (M+2) −/ AM− (1)
PS: (M+2) − 包含(M+2+COOH) − 和 (M+2) −;M− 包括(M+COOH) - 和 M−.
注意:此处,M− 指(M+COOH)离子流的峰面积总和 − 和 M −,主要以COOH形式离子化− 在甲酸-水溶液中。 A 代表 峰面积例如,PS VII 比值的计算公式如下所示:
Ratio+1 = (A1030.54 + A1076.55) / (A1029.53 + A1075.55)
Ratio+2 = (A1031.54 + A1077.55) / (A1029.53 + A1075.55)
Ratio+3 = (A1032.55 + A1078.56) / (A1029.53 + A1075.55)
Ratio+4 = (A1033.55 + A1079.56) / (A1029.53 + A1075.55)
- 为减少以下因素的影响 13C天然丰度,计算不同处理条件下各器官中标记与未标记离子流的比值,重点关注(M+1)比值−/ M−,(M+2)−/−,(M+3)−/ M− 和 (M+4)−/ M−. 为了准确评估标记同位素与天然存在同位素之间的差异 13C 同化,使用公式(计算 n = 1, 2, 3, 4 时的这些比值1).
结果
为了确认13C6-葡萄糖在根状茎中的供给成功,我们进一步分析了根状茎中13C/12C同位素比值。处理组3和处理组4的13C/12C同位素比值明显高于处理组2(图1A)。结果表明,来自处理组3和处理组4的13C6-葡萄糖通过摄食进入了根状茎。
13C同位素峰的比值,例如(M+1)−/M−、(M+2)−/M−、(M+3)−/M−和(M+4)−/M−,通常保持恒定。使用外源添加的13C标记的化合物与其未标记的对应物具有相同的分子结构、相似的分子量、理化性质以及保留时间。然而,当这些标记化合物通过质谱分析时,其同位素离子峰的比值会发生变化。在本研究中,我们采用LC-MS检测了不同处理条件下PPY四种不同器官中的PS VII和PS II(图3)。与处理1相比,结果表明,经外源13C处理的PPY叶片中PS VII的(M+2)−/M−比值显著升高(图3B)。特别是在处理2中,当PPY叶片喷施13C6-葡萄糖后,合成了带有两个13C原子标记的PS VII。然而,在处理4中,叶片中PS VII分子的(M+2)−/M−比值在根茎与非饲喂处理之间无显著差异,且在所有四种处理中,茎、根茎和根组织中PS VII分子的(M+1)−/M−、(M+3)−/M−和(M+4)−/M−比值均无显著差异(图3A、C、D)。此外,处理2中PS II分子的(M+2)−/M−比值呈缓慢上升趋势(图3F)。在处理1与处理2之间,叶片中PS II分子的(M+1)−/M−和(M+4)−/M−比值无明显差异(图3E、H),而处理2中叶片PS II分子的(M+3)−/M−比值相较于处理1明显下降(图3G)。这些结果表明,PS VII确实在喷施13C6-葡萄糖的叶片中发生合成,这与已知的PS生物合成途径一致。
我们的研究结果表明,在PPY中,叶片是PS VII合成的主要器官,这与PS II的合成部位不同。值得注意的是,在对叶片施用13C6-葡萄糖后,根茎中未检测到13C标记的PS VII,表明PS VII从叶片向根茎的转运速度较慢。相比之下,在茎部维管束和根茎标记处理后,根茎中检测到了13C标记的PS II,提示该阶段可能存在根茎内的合成,因此需要进一步探究PS II的合成部位。在叶片中仅检测到PS VII分子的(M+2)−/M−比值,这与13C6-葡萄糖的代谢命运一致:葡萄糖被吸收后,通过糖酵解代谢生成含有两个13C同位素的乙酰辅酶A。考虑到PS属于萜类化合物,其从乙酰辅酶A出发的生物合成可通过甲羟戊酸(MVA)途径或2-C-甲基-D-赤藓糖醇-4-磷酸(MEP)途径进行(图4),从而形成(M+2)−/M−的PS VII。因此,本研究明确指出,叶片是PPY中PS VII合成的确定器官。

图1:四种处理下根茎中13C/12C同位素比值。(A)处理4和处理3根茎中13C/12C同位素比值显著高于处理1和处理2,表明13C6-葡萄糖通过根部饲喂已大量进入根茎。每根柱代表三个重复的平均值(± 标准误)。柱上不同字母表示四种处理间13C/12C同位素比值差异显著(p < 0.05)。缩写:PS = Paris 皂苷。(B)PS VII(C51H82O21,1030.5349)的高分辨质谱检测到其负离子,保留时间为16.83分钟。由于13C的天然丰度(精确分子量为13.003,而12C为12.000),在PS VII分子离子峰M−相同保留时间处出现一系列同位素峰,主要包括(M−)、(M+1)−、(M+2)−、(M+3)−和(M+4)−。这些峰主要由甲酸水中的COOH−电离产生。放大的柱状图突出显示了这些同位素峰。计算了(M+1)−/M−、(M+2)−/M−、(M+3)−/M−和(M+4)−/M−的离子流强度比值。通过分析这些比值的变化,可追踪并推断皂苷的生物合成过程。此处M−代表(M+COOH)−与M−离子流强度峰面积的总和。图1B改编自Wen等24。请点击此处查看该图的放大版本。

图2:13C6-葡萄糖标记及数据整合流程图。 将幼苗喷施并饲喂0.2% 13C6-葡萄糖,持续3天;随后,对各器官提取物通过液相色谱-质谱联用(LC/MS)和气相色谱-同位素比值质谱(GC/IRMS)进行同位素分析,并结合峰积分与数据处理,实现对不同器官中重楼皂苷(PS)合成的特异性分析。(A)展示在不同器官中饲喂葡萄糖的示意图。处理1-4分别为不饲喂、叶片饲喂、茎部维管束饲喂和根茎饲喂。(B)通过研磨和氮吹仪制备干燥的PPY组织提取液后,进行LC-MS分析的步骤。缩写:LC/MS = 液相色谱-质谱联用;PPY = Paris polyphylla var. yunnanensis (Franch.) Hand.-Mzt.;PS = 重楼皂苷(Paris saponin)。请点击此处查看该图的放大版本。
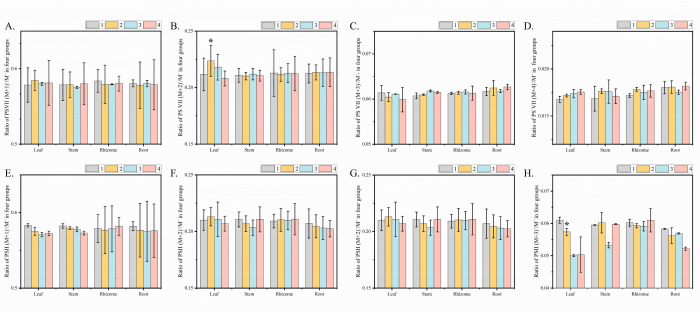
图3追踪重楼皂苷VII和重楼皂苷II的生物合成途径 13C6- 植物器官的葡萄糖供给。 (A-DPS VII 分子(M+1)的比率 −/−,(M+2) −/−,(M+3) −/−,(M+4) −/− 在四种处理的每个器官中,PS VII 分子(M+2)的比例 −/− 在处理2和处理3的叶片中显著增加。在茎、根和根茎中,PS VII分子(M+2)的比例 −/− 在四种处理之间未观察到明显差异。E-HPS VII 分子(M+1)的比率 −/−,(M+2) −/−,(M+3) −/−,(M+4) −/− 在四种处理的每个器官中。与处理1相比,PS II分子(M+2)的比率 −/ M− 在处理2下,叶片中没有差异。在处理2中,PS II分子(M+1)的比率 −/− 和(M+4) −/−与处理1相比,叶片无明显差异。PS II分子(M+3)的比率 −/− 与处理1相比,叶片中的含量有所降低。巴黎皂苷VII,PS VII。每根柱状图表示三个重复的平均值(± 标准误)。"*" 表示与不取食处理组存在显著差异(t-测试于 p < 0.01)。缩写:PS = 巴黎 皂苷 请点击此处以查看此图的放大版本。

图4外源性产生的PS VII的描述 13C6- 进入甲羟戊酸途径的葡萄糖 代谢的示意图 13C6-利用葡萄糖标记的乙酰辅酶A生成PS VII分子(M+2) −/− 通过MVA途径。标记的碳原子以红色表示;未标记的碳原子为灰色。在糖酵解作用下, 13C6- 葡萄糖裂解为两分子乙酰辅酶A(M+2),经甲羟戊酸(MVA)途径生成异戊烯基焦磷酸和二甲基丙烯基焦磷酸,随后在香叶基香叶基焦磷酸合酶、法尼基焦磷酸合酶、角鲨烯合酶、角鲨烯环氧化酶及环阿屯醇合酶的催化作用下生成环阿屯醇(cycloartenol),再经氧化、脱羧、还原及其他反应生成胆固醇;胆固醇通过一系列细胞色素P450酶、糖基转移酶以及呋甾皂苷26-O-β-葡萄糖苷酶对分子进行后期修饰,最终形成含有两个标记碳的PS VII分子(M+2)。 - 表明此时两个碳的COOH-已发生电离,可通过(M+2)推导出这两个碳的标记数量 −/−. 采用标准方案,分别鉴定同位素体,并对离子流进行分馏以获得同位素的标记数据。M的值− 是稳定的。缩写:PS = 巴黎 皂苷;PS VII = 重楼皂苷 VII;MVA = 甲羟戊酸途径;GPPS = 牻牛儿基牻牛儿基焦磷酸合酶;FPPS = 法呢基焦磷酸合酶;SQS = 角鲨烯合酶;SQE = 角鲨烯环氧化酶;CYPs = 细胞色素 P450 酶;UGTs = 葡糖醛酸转移酶;F26G = 呋喃甾烷型皂苷 26-O-β-葡萄糖苷酶。 请点击此处以查看此图的放大版本。
讨论
成功实施本方案的关键在于对植物生理特性、组织、器官及次生代谢产物进行系统深入的研究。本方案中所述的实验设计方法为探究植物次生代谢产物的生物合成途径奠定了坚实基础。本实验的关键因素包括:(1)确定多年生幼苗的生长年限;(2)选择合适的同位素标记与检测时机。药用植物可分为多年生和一年生两类,其次生代谢产物的合成与积累模式各不相同。本实验旨在通过分析这些代谢产物的合成速率,明确药用植物中次生代谢产物的主要合成器官。因此,必须谨慎选择与这些合成模式和速率相对应的生长年份和发育阶段。
PPY 是一种多年生药用植物,其PS含量逐年积累。然而,研究表明,PPY的PS合成速率与其它多年生植物相比并无差异22。同时,2年生幼苗相较于更年长的植株体型较小,便于进行水培实验。因此,本研究采用2年生PPY幼苗,以确保所选植株具有最高的次生代谢物合成速率。必须认识到,不同物种之间次生代谢物的合成与转运速率存在差异23,而标记-检测周期的最佳时长正是由这些速率决定的。研究显示,PPY叶片中糖类和PS的含量在3天内即开始下降24,表明由于PS分子量较大,其转运过程较为缓慢,不太可能在该时间内完成。若处理时间短于数小时,则可能导致标记PS的合成不足,进而难以检测5,25;相反,若处理时间超过3天,则存在PS从叶片向根茎转移的风险,可能干扰实验结果。因此,选择3天作为中间标记期,可最大限度减少器官间的相互干扰——特别是对于叶片喷施和根茎标记方法——从而确保实验结果更加准确。
先前对Nicotiana tabacum26,27和Brassica napus28的同位素标记研究表明,13C6-葡萄糖能够成功被吸收并整合到植物组织中。在本研究中,我们以水培条件下生长的2年生PPY幼苗为材料,对叶片、根茎和茎维管束分别实施13C6-葡萄糖饲喂处理,并设置未饲喂的对照处理。通过LC-MS检测发现,在标记后的第3天,经茎维管束饲喂和根茎饲喂处理的根茎中13C/12C比值显著高于未饲喂对照组,证实了13C6-葡萄糖的有效同化,表明我们的标记方法成功(图2)。在本研究中,我们同时分析了PPY四个不同器官中PS VII和PS II分子的四种同位素离子峰比值:(M+1)−/M−、(M+2)−/M−、(M+3)−/M−和(M+4)−/M−。重要的是,我们观察到在叶片标记处理中,叶片中PS VII分子的(M+2)−/M−比值明显高于未饲喂处理;而在根茎饲喂和未饲喂处理下,叶片中PS VII分子的(M+2)−/M− 比值无显著差异(图3B)。此外,与未饲喂处理相比,叶片饲喂处理下叶片中Paris saponins II(PS II)分子的(M+2)−/M−比值无显著差异,而(M+3)−/M−比值则较低(图3G)。茎维管束和根茎标记处理下,根茎中PS II分子的(M+1)−/M−和(M+4)−/M−比值与未饲喂处理相比表现出显著差异(图3E,H)。
在将本方法应用于其他药用植物时,必须根据该植物主要次生代谢物的前体物质,选择特异性的标记化合物,以确保标记的专一性。若目标化合物主要在茎中合成,则标记化合物应能够被有效运输至茎部并被代谢。如果未检测到预期的同位素比值(例如PS VII的(M+2)−/M−),需重新评估合成途径,以确认所用标记化合物的适用性。标记化合物在营养液中的浓度可能需要调整,以确保目标器官内有足够的吸收量并整合到目标化合物中。液相色谱-质谱(LC-MS)检测参数可能需要优化,以有效检测特定的标记代谢物。这可能包括调整质谱条件,例如电离模式,以提高对所研究植物种类及器官中特有化合物的检测灵敏度和特异性。若在茎维管束标记和根茎标记处理后的根茎中未能检测到13C/12C比值,应提高霍格兰营养液中13C6-葡萄糖的浓度或延长标记时间,直至可检测到信号。本研究建立的13C6-葡萄糖饲喂方法及分析技术,可为鉴定多种药用植物中次生代谢物合成器官的研究提供分析与结果解读的参考依据。
本实验中对叶片、根茎和茎部维管束采用的13C6-葡萄糖饲喂与非饲喂处理,相较于传统的碳同位素标记方法,在鉴定次生代谢物合成器官方面具有更高的特异性。然而,仍存在一些挑战。其中一个主要局限在于,目前尚无一种适用于所有药用植物的通用标记-检测时间框架。选择最佳的时间窗口可提高标记效率。此外,使用比值分析结果会增加对大型复杂异构体中官能团位置进行区分的难度。因此,在应用该方法之前,建议进行充分的文献调研和预实验。这一策略不仅有助于确保实验的准确性与效率,而且对植物生物学和药理学具有重要意义。将该方法与核磁共振波谱技术(分析有机化合物结构的领先技术)相结合,可精确定位13C标记的位置。该方法为探索植物次生代谢物的生物合成途径奠定了基础,为确定药用植物中次生代谢物合成的器官特异性提供了一种详尽且有效的研究路径。
披露
作者声明不存在竞争性财务利益。
致谢
本工作由国家自然科学基金青年项目(编号:82304670)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.1 % 甲酸水溶液 | 成都科龙化学试剂厂 | 44890 | |
| 13C6-葡萄糖粉末 | MERCK | 110187-42-3 | |
| 乙腈 | 成都科龙化学试剂厂 | 44890 | |
| 自动进样瓶 | 碧云天生物技术有限公司 | 44866 | |
| BEH C18 色谱柱 | Waters, Milfor, MA | 1.7μm, 2.1*100 mm | |
| CNC 超声波清洗机 | 昆山超声仪器有限公司 | KQ-600DE | |
| Compound DiscovererTM 软件 | Thermo Scientific, Fremont, CA | 3 | |
| Compound DiscovererTM 软件 | Thermo Scientific, Fremont, CA | 3 | |
| 电热恒温鼓风干燥箱 | DHG-9146A | ||
| 电子分析天平 | 赛多利斯科学仪器(北京)有限公司 | SOP | |
| 乙醇 | 成都科龙化学试剂厂 | 44955 | |
| 全自动样品快速研磨仪 | 上海净信科技 | Tissuelyser-48 | |
| 气相色谱-稳定同位素比质谱仪 | Thermo Fisher | Delta V Advantage | |
| 霍格兰营养液 | Sigma-Aldrich | H2295-1L | |
| 水培槽 | JRD | 1020421 | |
| Isodat 软件 | Thermo Fisher Scientific | 3 | |
| 液相色谱-高分辨质谱联用仪 | Agilent Technology | Agilent 1260 -6120 | |
| 氮气发生仪 | PEAK SCIENTIFIC | Genius SQ 24 | |
| 有机相滤膜 | 天津津腾实验设备有限公司 | 44890 | |
| 氧气泵 | 魔力龙 | MFL | |
| 量子传感器 | Highpoint | UPRtek | |
| 手术刀 | Handskit | 11-23 | |
| 喷壶 | CHUSHI | WJ-001 | |
| Xcalibur 软件 | Thermo Fisher Scientific | 4.2 |
参考文献
- Erb, M., Kliebenstein, D. J. Plant secondary metabolites as defenses, regulators, and primary metabolites: The blurred functional trichotomy. Plant Physiol. 184 (1), 39-52 (2020).
- Li, Y., Kong, D., Fu, Y., Sussman, M. R., Wu, H. The effect of developmental and environmental factors on secondary metabolites in medicinal plants. Plant Physiol Biochem. 148, 80-89 (2020).
- Liu, S., et al. Genetic and molecular dissection of ginseng (panax ginseng mey.) germplasm using high-density genic snp markers, secondary metabolites, and gene expressions. Front Plant Sci. 14, 1165349(2023).
- Chen, X., Wang, Y., Zhao, H., Fu, X., Fang, S. Localization and dynamic change of saponins in cyclocarya paliurus (batal.) iljinskaja. PloS One. 14 (10), e0223421(2019).
- Yuan, M., et al. Ex vivo and in vivo stable isotope labelling of central carbon metabolism and related pathways with analysis by lc-ms/ms. Nat Protoc. 14 (2), 313-330 (2019).
- Cavalli, F. M. G., Bourgon, R., Vaquerizas, J. M., Luscombe, N. M. Specond: A method to detect condition-specific gene expression. Genome Biol. 12 (10), 101(2011).
- Epron, D., et al. Pulse-labelling trees to study carbon allocation dynamics: A review of methods, current knowledge and future prospects. Tree Physiology. 32 (6), 776-798 (2012).
- Varman, A. M., He, L., You, L., Hollinshead, W., Tang, Y. J. Elucidation of intrinsic biosynthesis yields using 13c-based metabolism analysis. Microb Cell Fact. 13 (1), 42(2014).
- Meng-Meng, G., Zhen-Yu, Z., Yu, Z., Qiu-Lin, Y., Ying, W. Systematic extraction and stable isotope determination of different biomarkers from single leaf of reticulate vein plants. Journal of Shaanxi University of Science & Technology. 41 (01), 72-79 (2023).
- Zhang, H., et al. A convenient lc-ms method for assessment of glucose kinetics in vivo with d-[13c6]glucose as a tracer. Clin Chem. 55 (3), 527-532 (2009).
- Chassy, A. W., Adams, D. O., Waterhouse, A. L. Tracing phenolic metabolism in vitis vinifera berries with 13c6-phenylalanine: Implication of an unidentified intermediate reservoir. J Agric Food Chem. 62 (11), 2321-2326 (2014).
- Lozac'h, F., et al. Evaluation of cams for 14c microtracer adme studies: Opportunities to change the current drug development paradigm. Bioanalysis. 10 (5), 321-339 (2018).
- Sulyok, M., Stadler, D., Steiner, D., Krska, R. Validation of an lc-ms/ms-based dilute-and-shoot approach for the quantification of > 500 mycotoxins and other secondary metabolites in food crops: Challenges and solutions. Anal Bioanal Chem. 412 (11), 2607-2620 (2020).
- Serra, F., et al. Inter-laboratory comparison of elemental analysis and gas chromatography combustion isotope ratio mass spectrometry (gc-c-irms). Part i: Delta13c measurements of selected compounds for the development of an isotopic grob-test. J Mass Spectrom. 42 (3), 361-369 (2007).
- Jung, J. -Y., Oh, M. -K. Isotope labeling pattern study of central carbon metabolites using gc/ms. J Chromatogr B Analyt Technol Biomed Life Sci. 974, 101-108 (2015).
- Ding, Y. G., et al. The traditional uses, phytochemistry, and pharmacological properties of paris l. (liliaceae): A review. J Ethnopharmacol. 278, 114293(2021).
- Cunningham, A. B., et al. Paris in the spring: A review of the trade, conservation and opportunities in the shift from wild harvest to cultivation of paris polyphylla (trilliaceae). J Ethnopharmacol. 222, 208-216 (2018).
- Madikizela, L. M., Ncube, S., Chimuka, L. Uptake of pharmaceuticals by plants grown under hydroponic conditions and natural occurring plant species: A review. Sci Total Environ. 636, 477-486 (2018).
- Tagami, K., Uchida, S. Online stable carbon isotope ratio measurement in formic acid, acetic acid, methanol and ethanol in water by high performance liquid chromatography-isotope ratio mass spectrometry. Anal Chim Acta. 614 (2), 165-172 (2008).
- Li, Y., et al. The combination of red and blue light increases the biomass and steroidal saponin contents of paris polyphylla var. Yunnanensis. Ind Crops Prod. 194, 116311(2023).
- Wang, G., et al. Tissue distribution, metabolism and absorption of rhizoma paridis saponins in the rats. J Ethnopharmacoly. 273, 114038(2021).
- Peng, S., et al. Progress in the study of differences in the types and contents of steroidal saponins in paris. Polyphylla smith var. Chinensis (franch.) hara. Modernization of Traditional Chinese Medicine and Materia Medica-World Science and Technology. 24 (05), 2014-2025 (2022).
- Alami, M. M., et al. The current developments in medicinal plant genomics enabled the diversification of secondary metabolites' biosynthesis. Int J Mol Sci. 23 (24), 15932(2022).
- Wen, F., et al. The synthesis of paris saponin vii mainly occurs in leaves and is promoted by light intensity. Front Plant Sci. 14, 1199215(2023).
- Siadjeu, C., Pucker, B. Medicinal plant genomics. BMC Genomics. 24 (1), 429(2023).
- Tian, C., et al. Top-down phenomics of arabidopsis thaliana: Metabolic profiling by one- and two-dimensional nuclear magnetic resonance spectroscopy and transcriptome analysis of albino mutants. J Biol Chem. 282 (25), 18532-18541 (2007).
- Masakapalli, S. K., et al. Metabolic flux phenotype of tobacco hairy roots engineered for increased geraniol production. Phytochemistry. 99, 73-85 (2014).
- Schwender, J., Ohlrogge, J. B., Shachar-Hill, Y. A flux model of glycolysis and the oxidative pentosephosphate pathway in developing brassica napus embryos. J Biol Chem. 278 (32), 29442-29453 (2003).
重印与许可
标签
