基于全血的免疫分析法为诊断和研究目的分析抗原特异性免疫提供了简便且资源高效的工具。本文提供了一种经过优化的基于全血的实验方案,采用双重共刺激,可全面分析宿主对真菌和病毒病原体的免疫应答,包括适用于儿科患者和小型动物的低体积版本。
方法文章
通过双重共刺激的全血检测法用于抗原特异性分析宿主对真菌和病毒病原体的免疫应答
* These authors contributed equally
本文内容
摘要
摘要
快速且资源高效的样本处理、高通量和高稳健性对于先进抗原特异性免疫检测在科研和临床中的有效应用至关重要。传统上,此类免疫检测(尤其是通过流式细胞术或酶联免疫斑点法进行的抗原特异性T细胞分析)通常依赖于外周血单个核细胞的分离。该过程耗时较长,易受多种分析前干扰因素影响,并需要较大的血液体积。基于全血的检测方法则提供了一种简便的替代方案,具有更高的分析前稳健性和更低的采血量需求。此外,基于全血的检测能够保留细胞间的相互作用,而这些相互作用在使用分离细胞亚群的检测方法中往往无法被捕捉。近期已提出一种经过优化的全血免疫检测方法,通过联合使用抗CD28和抗CD49d共刺激抗体,可全面分析针对多种真菌和病毒抗原的抗原特异性T细胞功能及复杂的细胞间相互作用。本实验方案提供了刺激管制备、血液刺激以及后续用于流式细胞术、细胞因子分泌检测和转录分析的样本处理指导。其中包括一种经过验证且功能等效但此前未发表的低体积方案(250 µL),旨在使流式细胞术和基于细胞因子的T细胞监测更适用于儿科患者研究或小动物(如小鼠)的临床前研究。总体而言,这些方案为临床及转化研究中的复杂抗原特异性免疫分析提供了多功能的工具箱。
引言
抗原特异性免疫应答(尤其是特异性T细胞应答)的定量与表征,对于免疫生物学和疫苗研究以及某些诊断检测至关重要。传统上,抗原特异性免疫检测通常依赖于分离的外周血单个核细胞(PBMCs)。然而,这些细胞的分离过程耗时且资源消耗大,通常需要相对大量的血液样本。此外,为防止粒细胞在分析前储存期间被激活,进而干扰T细胞功能1,样本必须快速处理,这在临床实践中往往难以实现。这些限制因素阻碍了抗原特异性免疫检测在高通量研究场景和临床常规中的实际应用。因此,近年来发展出的简便且可能实现自动化的全血检测方法,为免疫检测的应用开辟了新的领域。然而,目前市面上的商用系统通常缺乏T细胞最佳的共刺激环境,且易受分析前延迟的影响。例如,一种广泛使用的全血干扰素-γ(IFN-γ)释放检测在分析前血液储存6小时后,阳性转阴性的逆转率高达19%2。为克服这些局限,已开发出采用双重抗-CD28和抗-CD49d共刺激的优化方案3,4,5,6。
本方案可利用极少量血液样本(即每个刺激管仅需500 µL血液),准确且可重复地定量和表征抗原特异性T细胞,评估抗原诱导的细胞因子反应,以及其他(流式细胞术或转录水平的)功能性免疫标志物。该方案的其他优势包括操作时间短、对分析前干扰因素具有较强的耐受性,以及在相对生理的ex vivo环境中保留细胞间的功能性相互作用。基于全血的流式细胞术抗原特异性 T细胞表征结果,此前已在针对霉菌特异性T细胞定量的研究中被证实与传统基于外周血单个核细胞(PBMC)的检测方法所得数据具有可比性6。此外,直接对受试者血液进行刺激,避免了在PBMC刺激过程中通常所需的自体、同种异体甚至异种血清的添加。省去细胞分离步骤还可减少剪切力和温度变化带来的应激,从而提高细胞活力。尤为重要的是,基于全血的检测方法保留了在密度梯度离心分离PBMC过程中会丢失的粒细胞群体7。因此,该检测体系能够维持并捕捉粒细胞与单个核细胞之间的功能性相互作用网络4。
值得注意的是,该方案仅需极少的修改即可适应不同的检测方式,甚至允许对同一刺激管中的细胞同时进行细胞因子释放和转录反应的双重分析。具体而言,在刺激后,细胞因子可从培养上清液中进行分析,而细胞沉淀则可用于RNA提取,进而开展转录组学分析。各种检测方式的总体工作流程详见图1。
近年来,基于全血的检测方法在病原体反应性免疫监测的研究和临床应用中日益增多,例如用于 结核分枝杆菌8,9, 百日咳鲍特菌3, 恙虫病东方体10,以及 SARS-CoV-25,11,12例如,一种先前已建立的系统已被用于多种抗原,包括 M. tuberculosis,流感A病毒和SARS-CoV-2,但未使用针对辅助性T细胞(Th细胞)刺激优化的共刺激因子13,14,15尽管这些检测所需的血量已经显著少于传统的基于外周血单个核细胞(PBMC)的检测或商业化的全血刺激试剂盒,但在儿科、新生儿科、重症监护病房(ICU)患者以及小型动物模型的临床前研究中,可能仍需要更小的样本量。例如,从小鼠进行终末采血(如心脏穿刺)通常最多仅能获得0.7–1 mL血液。因此,进一步缩小已建立的基于全血的免疫检测方案的样本用量具有重要意义。4,6 每次刺激管使用250 µL血液体积,用于精确定量和表征抗原反应性T细胞应答,已作为本方案的一部分进行评估。
方案
慕尼黑路德维希-马克西米利安大学伦理委员会(项目编号 21-0689)批准了人类血液样本的采集。此外,部分代表性数据集的生成依据 Corona-Register-Study 编号 20-426 进行,该研究亦经慕尼黑路德维希-马克西米利安大学伦理委员会批准。所有参与者均签署知情同意书。
1. 全血刺激管的制备
注意:此步骤改编自 Lauruschkat 等人4 和 Weis 等人6。 表 1 总结了详细的试剂浓度和体积。
- 在无菌条件(无菌工作台)下,准备不含抗凝剂的 2.7 mL 血液采集管,并加入抗原和共刺激抗体。向每支试管(包括阴性对照)中加入 1 µg/mL 的 α-CD28 和 1 µg/mL 的 α-CD49d。确定最终浓度时需考虑将要加入的全血体积(250 µL 或 500 µL)。为保持管腔几何结构和样本可及性,切勿将采血管的活塞拉出。
- 根据研究设计,确定阴性对照管应不添加任何额外刺激物(未刺激背景对照,如 表 1 所示),或使用研究队列中预期不含有或仅含极低水平抗原特异性 T 细胞的抗原(例如,在 HIV 血清阴性个体中使用 HIV 肽段混合物 16)。
- 对于抗原特异性刺激,应通过预实验中的梯度稀释优化抗原的最佳浓度。为获得下述代表性 数据,请使用以下优化后的抗原浓度:1.2 µg/mL HSV-1 裂解物、0.6 nM/肽段/mL CMV pp65、0.6 nM/肽段/mL SARS-CoV-2 Prot_S、50 µg/mL Aspergillus fumigatus 裂解物,以及 1 ng/mL CRX-527。
- 应设置阳性对照,尤其适用于淋巴细胞减少症患者或接受免疫抑制药物治疗的研究。使用 CPI 阳性对照溶液(0.6 nM/肽段/mL),其包含巨细胞病毒、副流感病毒和流感病毒的肽段。
注意:也可选用合成刺激物,如 PMA(10 µg/mL)± 离子霉素(1 µg/mL),但其诱导的反应生理相关性较低,且可能影响常用于流式细胞术群体标记的表面抗原表达(最显著的是 CD417)。请注意,大多数合成阳性对照刺激物无需共刺激抗体,且共刺激抗体可能反而对细胞活力和反应性产生负面影响。 - 为使所有刺激管中试剂体积一致,加入 RPMI 1640 培养基至以下总体积:用于流式细胞术的全量检测:50 µL;用于细胞因子分析和转录组学的全量检测:500 µL;用于流式细胞术的小量检测:25 µL;用于细胞因子分析和转录组学的小量检测:250 µL。
注意:若需制备多组刺激管,建议配制包含所有组分的主混合液,以降低污染风险,并避免共刺激因子和刺激物因体积过小而产生误差。 - 立即使用所制备的试管,或在 -20 °C 下冷冻保存。大多数试剂可保存长达 4 周;但对于新试剂/刺激物,应预先验证其最长保存期限。
2. 全血样本的刺激与孵育
- 在全血刺激前约30-60分钟,将预装刺激管解冻并置于室温下保存。
- 使用含锂肝素抗凝剂的采血管采集供体/患者的静脉血。确保采集的血量满足具体实验需求,即至少 750 µ小规模检测需要3个条件,包括阴性对照和阳性对照,共需L。对于 commercially acquired blood collection tubes(商品化采血管),应将其完全充满,以达到16 - 25 IU/mL血液的肝素工作浓度。
注意:用于生成代表性数据集的健康成年受试者的 demographics 数据如下所示 表 2. - 转移所需量的肝素抗凝全血(250 µ升或500 µ分别用移液器在无菌操作台中将 L 加入刺激管中,用于小规模或全规模检测。
注意:若无无菌操作台,或处理感染风险极低的样本(即经预先筛查的人类或动物血液)时,可使用无菌注射器将样本转移至刺激管中。该方法还可实现采血后立即在床旁进行样本处理,从而最大限度减少分析前储存时间及T细胞功能受损。在注入血液前,需用含醇消毒剂彻底消毒采血管和所有刺激管的橡胶密封塞,并静置至少1分钟使其完全干燥。 - 轻轻颠倒混匀刺激管5至10次。将刺激管置于37 °C 培养箱。注意,CO2 无需使用孵育箱。为防止中性粒细胞非特异性激活,血液采集管不得冷藏。
注意:本方案已验证可在室温下对全血样本进行长达8小时的分析前储存,以便样本运输。如条件允许,建议在采血现场将全血直接注入刺激管中,并将装有血液的刺激管运送至中心实验室,因为共刺激因子有助于提高淋巴细胞的存活率18,19. - 仅针对用于胞内染色流式细胞术检测的样本,加入布雷菲德林A(终浓度为10 µg/mL)。 µg/mL)加入到每个刺激管中,孵育 4 小时后。
- 在 RPMI 中配制 1 mg/mL 的布雷菲德菌素 A 溶液,并加入 1 µ每 100 升溶液中的升数 µL 样品体积(即预混刺激剂 + 全血体积)。在无菌操作台中打开管盖,用移液器加入布雷菲德菌素A。盖上管盖,将管子放回37 °37℃ C孵箱中继续孵育16-18小时 °C(总共20-22小时)。
- 对于细胞因子分泌检测或转录分析,不要添加布雷菲德菌素A,并将样品在37℃持续孵育 °37°C 下孵育 24–26 小时。
注意:Brefeldin A 抑制高尔基体,从而阻断细胞因子的分泌以及蛋白质向细胞表面的转运。由于分泌或表面表达最终会导致蛋白质丢失或再内化后的降解,因此在流式细胞术研究中,外排抑制剂对于细胞因子及某些活化标志物(如 CD154)在细胞内的积累和染色至关重要。然而,Brefeldin A 也会干扰转录组中可观察到的生理细胞过程,并使来自培养上清液的细胞因子分泌检测失效。20,21,因此需要使用两个独立的试管(一个加入布雷菲德林A,另一个不加)以平行进行这些检测。
3. 流式细胞术样品的制备
- 向每支刺激管中加入 500 µL 的 0.5 M EDTA 溶液,在室温下孵育样品 15 分钟,以使贴壁细胞从管壁上脱落。
- 将样品转移至新的 15 mL 离心管中。用 1 mL 红细胞裂解缓冲液冲洗刺激管,以收集残留的血细胞,然后将缓冲液和细胞一同加入同一支 15 mL 离心管中。
- 将 15 mL 离心管在 600 × g 条件下离心 7 分钟,小心弃去上清液。
- 用红细胞裂解缓冲液重悬血细胞沉淀(图 2A)。每 500 µL 全血使用 5 mL 红细胞裂解缓冲液,每 250 µL 全血使用 3 mL 红细胞裂解缓冲液。
注意:最佳红细胞裂解条件需根据所使用的特定缓冲液(自配或商用产品)预先评估。此处提供的操作步骤已针对材料表中所列的红细胞裂解缓冲液进行了优化。 - 在室温下孵育样品,直至样品变得透明(图 2B)。为防止粒细胞裂解和聚集,孵育时间不得超过 6 分钟。成功裂解红细胞的一个标志是能够透过液体清晰看到 15 mL 管上的数字和刻度(图 2C)。
- 将 15 mL 离心管在 600 × g 条件下离心 7 分钟,小心弃去上清液;若细胞沉淀仍明显呈红色,则重复步骤 3.4–3.5。
- 用 1 mL HBSS 重悬细胞沉淀,并将细胞转移至 2 mL 反应管中。
- 将 2 mL 反应管在 400 × g 条件下离心 5 分钟,小心弃去上清液。
- 根据所用胞内染色试剂盒及抗体的制造商说明书进行流式细胞术染色。
注意:用于生成代表性数据集的抗体组合详见表 3。
4. 细胞因子检测样品的制备
- 在步骤 2.6 之后,将刺激管中的稀释血液转移至 1.5 mL 离心管中。
- 将 1.5 mL 离心管在 2000 × g 条件下离心 20 分钟。小心吸取上清液至新的 1.5 mL 离心管中,并立即用于细胞因子分析,或在 -80 °C 下冻存上清液。
- 在分析前(尤其是解冻后),将上清液再次于 1.5 mL 离心管中以 ≥ 7000 × g 离心 5 分钟,以去除残留的细胞碎片。根据细胞因子检测方案,对样本进行预稀释。
- 将细胞沉淀重悬于 1 mL RNA 保护液中,并在 -80 °C 下冻存,用于后续 RNA 提取。或者,根据 RNA 提取试剂盒(或内部方案)的说明,将细胞沉淀直接重悬于裂解液中进行即时 RNA 提取。
注意:如有需要,根据后续 RNA 处理方案,在加入 RNA 保护液前可增加红细胞裂解步骤,操作类似于步骤 3.4–3.5。
结果
使用病原体相关抗原刺激全血后对抗原特异性免疫应答的多模态分析
为生成具有代表性的数据集,选择了一名对 HSV-1 和 CMV 血清学阳性的健康成年供者,该供者已接种 SARS-CoV-2 疫苗。除未刺激对照外,还使用了以下刺激物,具体如上所述:单纯疱疹病毒 1 型(HSV)裂解物(依据制造商推荐,未发表数据)、巨细胞病毒(CMV)pp6522、严重急性呼吸综合征冠状病毒 2(SARS-CoV-2)Prot_S5,23、Aspergillus fumigatus 裂解物(一种普遍存在的环境性病原体)4,24、CRX-527(一种基于脂多糖的 Toll 样受体 4 刺激物,本身不应激活 T 细胞)25,以及 CPI(由 CMV、副流感病毒和流感病毒肽组成的 CD4+ T 细胞激活阳性对照)26。流式细胞术数据及设门策略见图 3。通常建议在检测稀有细胞群体时尽可能检测更多的淋巴细胞(50,000 - 100,000 个淋巴细胞),因为测量的精确性和可靠性取决于总事件数27。未刺激样本用于各个细胞亚群的设门(例如 CD3+CD4+ 细胞)。记忆性 T 细胞表型分析中 CD45RO 和 CCR7 的设门应基于总的 CD3+CD4+ 群体设定,然后转移至激活标志物阳性群体,因为后者的事件数较低,常难以清晰区分不同细胞群。可能需要对个别设门进行轻微调整,例如以校正淋巴细胞活力的差异。CD154(或 CD40 配体)的上调已被描述为一种普遍、稳定且快速诱导的辅助性 T 细胞激活标志物28,29。IFN-γ 被认为是最显著且特异于 1 型的 T 细胞激活标志物之一30,31。重要的是,本实验已测试并发表过多种其他激活、耗竭及细胞因子标志物(见表 4 和24)。
未刺激样本中活化标志物阳性细胞群的频率代表非特异性背景值,需从抗原刺激后的频率中减去。减去非特异性背景后,该代表性供体中特异性CD154+/CD3+CD4+辅助T细胞的比例分别为:0.75%(HSV)、0.09%(CMV)、0.06%(SARS-CoV-2)、0.34%(A. fumigatus)、0.00%(CRX-527)和1.21%(CPI)。IFN-γ表达可采用类似方法分析,得到IFN-γ+/CD3+CD4+细胞的比例分别为:0.12%(HSV)、0.07%(CMV)、0.03%(SARS-CoV-2)、0.04%(A. fumigatus)、0%(CRX-527)和0.74%(CPI)。
T细胞群体可进一步细分为初始T细胞(TN,CD45RO-CCR7+)、中央记忆T细胞(TCM,CD45RO+CCR7+)、效应记忆T细胞(TEM,CD45RO+CCR7-)以及效应T细胞(和重新表达CD45RA的效应记忆T细胞,TE/TEMRA,CD45RO-CCR7-)。在全部CD3+CD4+ T细胞中,代表性供体的未刺激样本检测结果显示,TN占38.34%,TCM占38.33%,TEM占20.77%,TE/TEMRA占2.56%(图3A)。然而,在抗原特异性的反应性辅助T细胞(CD154+IFN-γ+)中,TCM和TEM是占绝对优势的亚群,其平均比例分别为22.14%和73.97%。
使用该方法学的其他白细胞群体数据此前已有发表24。所用抗体组合见表4,以供进一步参考。
此外,为了展示该方法的全部潜力,对另一组刺激后的样本(未添加布雷菲德菌素A)进行了干扰素-γ(IFN-γ)酶联免疫吸附测定(ELISA)。为避免超出IFN-γ ELISA试剂盒的检测范围,对CPI刺激样本的血浆预先稀释了1:4。以下测得的IFN-γ浓度均按受试者每毫升血液体积进行归一化处理,即校正了刺激管和ELISA前稀释步骤中的稀释倍数:0 pg/mL(未刺激)、69.4 pg/mL(HSV)、471 pg/mL(CMV)、17.8 pg/mL(SARS-CoV-2)、61.9 pg/mL(A. fumigatus)、34.0 pg/mL(CRX-527)和1958 pg/mL(CPI)。
最后,从相同的样本中分离RNA,结果一致。平均产量为719 ng,平均吸光度比值260 nm/280 nm为1.98。
总体而言,该数据集表明,本方案能够利用极小的血液体积(即总共8 mL)对多种刺激物和读出模式进行多维度的读出谱分析,并同时检测多种与感染相关的抗原。
用于转录分析以追踪疫苗接种反应的代表性数据集:基于抗原刺激的全血
作为对抗原刺激全血进行转录组学研究的概念验证,采集了9名健康成年受试者在接种BNT162b2(SARS-CoV-2 mRNA疫苗)第一剂加强针之前以及接种后1个月时的血液样本32,33 在完成初始两剂疫苗接种后的7-9个月。RNA的平均产量来自 500 µL 未刺激和Prot_S刺激的全血 1.1 µg 高纯度RNA,其平均260/280吸光度比值为1.99。经过nCounter分析后,RNA计数被标准化至该检测面板中的12个看家基因(取几何平均值)。随后,针对每位受试者及每个基因,计算Prot_S刺激样本与未刺激背景对照之间标准化mRNA计数的比值。进一步计算疫苗接种后与接种前测量值的中位数间比值,并使用下述所列软件包进行通路富集分析 材料表经典通路富集分析的显著性标准为绝对z值≥1.25,且经Benjamini-Hochberg法校正后的p值小于设定阈值 < 0.05。显著差异富集的通路总结如下 图4A,以及针对接种疫苗前后对Prot_S反应进行背景校正后的变化所简化的网络图如所示 图4B此外,加强免疫后,与抗原呈递细胞成熟及Prot_S诱导的T细胞活化相关的代表性基因在背景校正后的诱导作用更强,如(p < 0.01-0.03) 图4C最后,背景校正后的Prot_S特异性1型辅助性T细胞(CD69+IFN-γ+) 大多数供体在接种疫苗后的反应通过使用第二组刺激管的流式细胞术得以确认(p = 0.03, 图 4D).
全血为基础的免疫测定方案中全容量与小体积方法对病毒反应性T细胞应答的比较
接下来,采用全容量(500 µL,WB)和小体积(250 µL,WBS)全血抗原刺激方案,比较了健康志愿者中病毒反应性CD154+IFN-γ+辅助T细胞(CD3+CD4+细胞)的频率(图5)。如先前报道34,尽管采用了双重共刺激,两种方案下CD154+IFN-γ+细胞的非特异性背景频率均极低(WB和WBS的平均值分别为0.010%和0.011%)。值得注意的是,尽管非特异性背景反应会从抗原特异性反应中扣除,但其仍会导致检测精密度下降,如前所述27。升高的背景信号(即CD154+ Th细胞 >0.07–0.1%,或CD154+IFN-γ+细胞 >0.05%)可能提示样本污染、受试者存在急性感染,或与不恰当的分析前样本处理有关。
在HSV血清阳性供者(n = 5)中,WB和WBS系统检测到的平均HSV裂解物反应性T细胞频率分别为0.151%和0.107%,而在血清阴性供者(n = 4)中分别为0.012%和0.004%。使用CMV pp65肽库时,血清阳性供者(n = 4)的反应性T细胞频率为0.041%和0.049%,而血清阴性供者(n = 5)为0.001%和0.004%。HSV和CMV的Lin一致性相关系数分别为0.868和0.985,表明两种方法之间具有高度相关性(图5A)。值得注意的是,在无近期再激活事件的健康血清阳性个体中,CMV特异性T细胞检测结果可能为阴性。总CD3+CD4+辅助T细胞群体及抗原反应性辅助T细胞群体进一步根据CCR7和CD45RO的表达情况进行亚群分类(图5B)。令人放心的是,WB和WBS两种方案在总T细胞群体和抗原反应性T细胞群体中的检测结果具有可比性。如预期一致,在两种检测中,抗原反应性T细胞中分化程度更高的记忆性Th细胞(即效应记忆T细胞)比例均高于总Th细胞群体。同样如预期,仅有极少数初始T细胞被病毒刺激物激活(图5B)。
此外,在另一组实验中,通过IFN-γ ELISA分析了刺激后的培养上清液(图5C)。观察到极低的非特异性背景信号(WB和WBS方案中的平均值分别为1.29 pg/mL和2.18 pg/mL)。来自HSV血清阳性供体的血液样本在WB和WBS体系中经背景校正后的HSV诱导IFN-γ平均浓度分别为111 pg/mL和125 pg/mL。相比之下,在两种体系中,血清阴性样本的IFN-γ浓度均持续低于10 pg/mL(Lin组内相关系数 = 0.972,图5C)。同样,对CMV血清阳性供体血液进行pp65刺激后,在WB和WBS体系中测得的IFN-γ平均浓度分别为258 pg/mL和272 pg/mL;而在两种体系中,血清阴性样本几乎未检测到pp65诱导的IFN-γ分泌(Lin组内相关系数 = 0.953,图5C)。
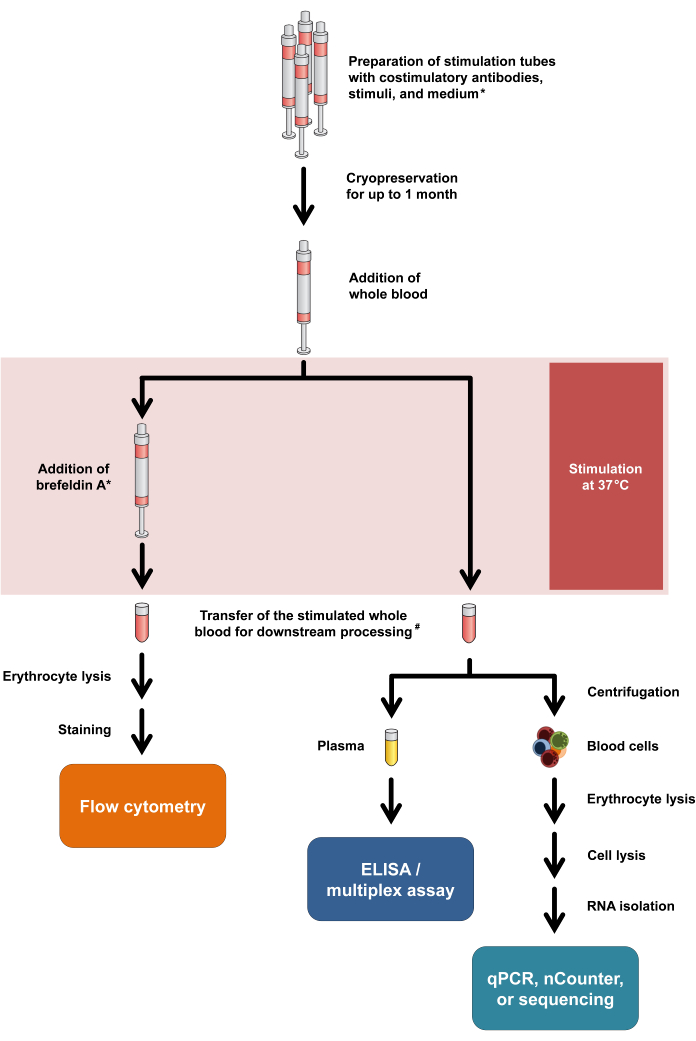
图1:实验流程与检测指标的流程图。 星号表示某些T细胞活化标志物(如CD154)和细胞内细胞因子染色需要使用布雷菲德菌素A。详见实验方案步骤2.5和2.6。#:用于流式细胞术的血液首先转移至15 mL离心管进行红细胞裂解,而用于细胞因子检测和转录组学分析的血液则转移至1.5 mL微量离心管。请点击此处查看该图的放大版本。
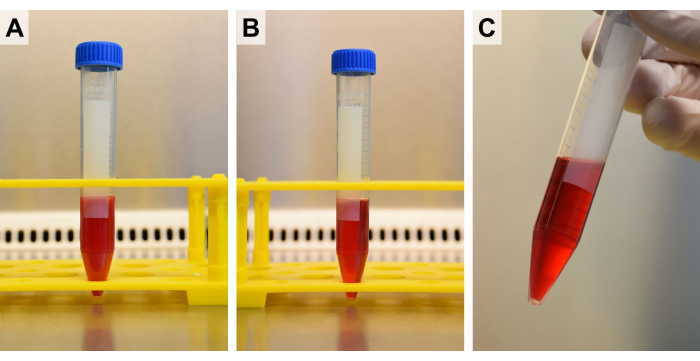
图 2:红细胞裂解。 刺激后的血液重悬于(A)红细胞裂解缓冲液后,孵育至(B)液体变得澄清,但孵育时间不得超过 6 分钟。(C) 使用刻度 15 mL 管时,随着样品逐渐变得透明,管上的刻度应能被清晰看见。请点击此处查看该图的放大版本。
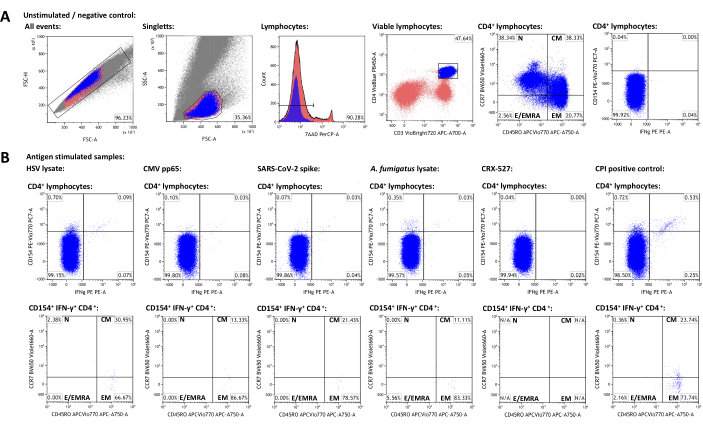
图 3:代表性数据集及流式细胞术设门示意图。(A)通过FSC-A和FSC-H特性识别单细胞事件。在单细胞中,利用FSC-A和SSC-A圈定淋巴细胞。将淋巴细胞进一步分为CD3+CD4+ 辅助性T细胞。通过CD45RO和CCR7的表达水平对记忆细胞和效应细胞群体进行表型鉴定。IFN-γ和CD154用作活化标志物。设门依据未刺激样本中IFN-γ-CD154-群体确定,并将该设门策略应用于刺激后的样本(B)。通过将CCR7/CD45RO象限门从CD3+CD4+群体转移至IFN-γ+CD154+CD3+CD4+群体,实现对活化T细胞中记忆亚群的表征。请点击此处查看该图的放大版本。
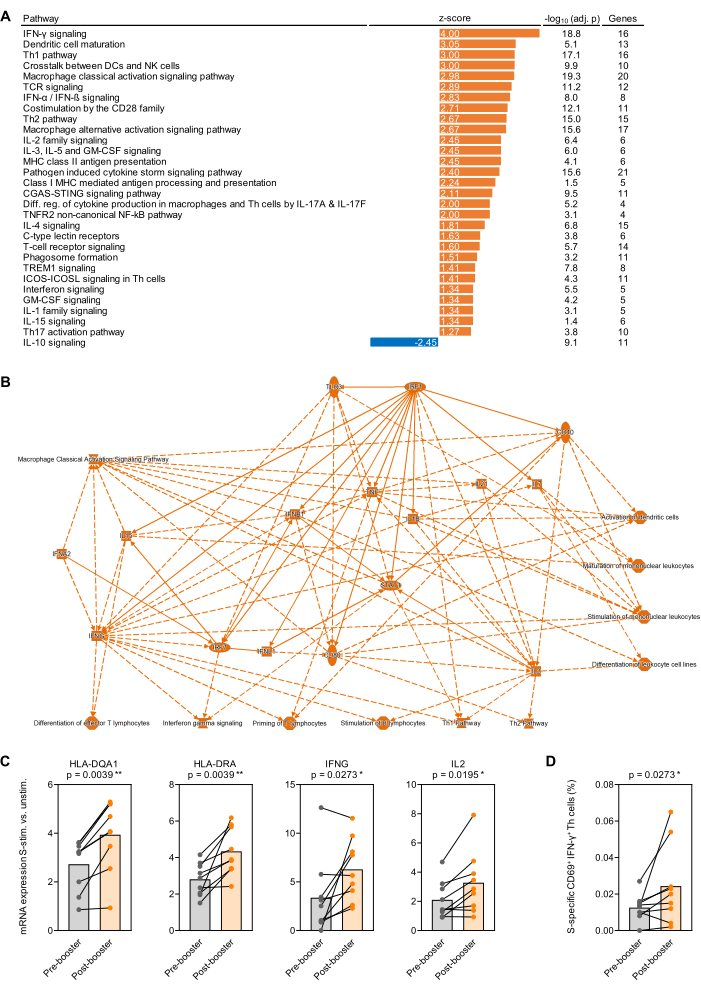
图 4:SARS-CoV-2 加强接种后抗原诱导的转录变化。(A)在9名健康成年受试者中,分析了接种第一剂 BNT162b2 mRNA 加强疫苗前后,SARS-CoV-2 刺突蛋白(Prot_S)刺激的全血中转录通路的背景校正富集情况。展示的是 Benjamini-Hochberg 校正(BH-adj.)p 值 <0.05(-log10[BH-adj. p] >1.3)且绝对 z 值 >1.25 的免疫相关经典通路。(B)简化网络图,总结了加强接种后相较于接种前,在S抗原刺激的全血中富集程度更高的基因与通路。(C)加强接种前后,Prot_S 刺激的全血中与抗原呈递和T细胞活化相关的代表性基因的背景校正表达水平。采用配对 Wilcoxon 检验。(D)加强接种前后,Prot_S 特异性 IFN-γ+CD69+ T 细胞的背景校正频率。采用配对 Wilcoxon 检验。请点击此处查看该图的放大版本。
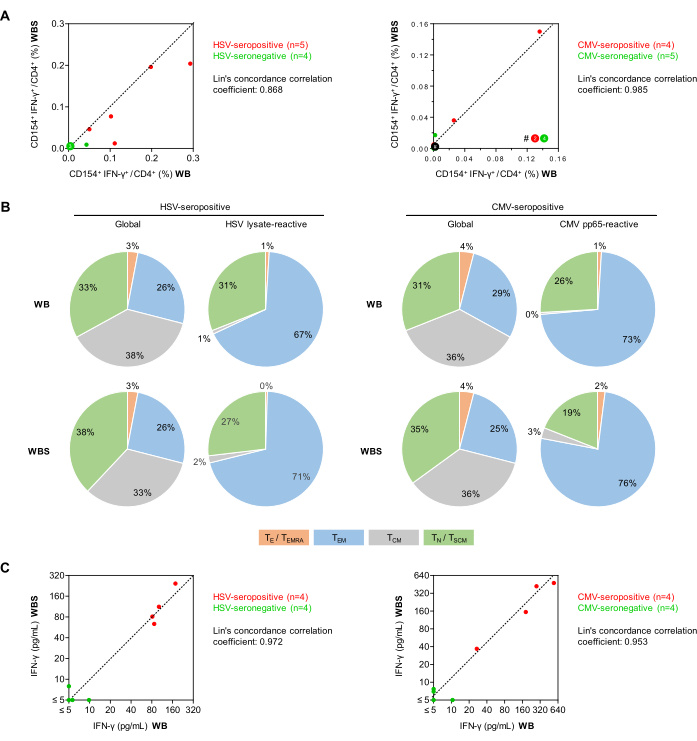
图5:流式细胞术与ELISA检测抗病毒T细胞反应性。(A)显示了通过常规全血法(WB)和小体积全血法(WBS)检测得到的经背景校正后的CD154+IFN-γ+/CD3+CD4+ T细胞频率(流式细胞术)之间的相关性图。绿色和红色圆点分别代表针对所检测病毒呈血清阴性和血清阳性的受试者。(B)通过流式细胞术分析CD45RO和CCR7的表达情况,确定了在HSV裂解物或CMV pp65抗原刺激后,总体CD3+CD4+ T细胞以及抗原反应性IFN-γ+CD154+CD3+CD4+ T细胞中的记忆/效应T细胞表型(使用血清阳性供体血液,n分别为5和4)。图中显示平均分布情况。绿色:初始T细胞(TN),CD45RO-CCR7+;灰色:中央记忆T细胞(TCM),CD45RO+CCR7+;蓝色:效应记忆T细胞(TEM),CD45RO+CCR7-;橙色:效应T细胞及重新表达CD45RA的效应记忆T细胞(TE/TEMRA),CD45RO-CCR7-。(C)WB和WBS方法检测的经背景校正后的IFN-γ释放量(ELISA)的相关性图。 请点击此处查看该图的放大版本。
表1:刺激管内容物。 刺激物和溶剂的储备浓度见下表。全血全量法(WB)使用500 µL锂肝素抗凝全血,而小量法(WBS)仅需250 µL血液。对于WBS,所有试剂体积均为WB体积的一半。请点击此处下载该表格。
表2:用于生成代表性数据集的健康成年受试者的人口统计学数据。 请点击此处下载该表格。
表3:T细胞分析的代表性流式细胞术检测方案。 本流式细胞术检测方案已用于生成代表性数据集。详细结果见图3。请点击此处下载该表格。
表4:先前已发表的流式细胞术检测组合。 使用这些抗体组合的数据此前已由 Tappe 等人发表24。请点击此处下载该表格。
讨论
抗原特异性免疫检测可揭示宿主与微生物之间的相互作用,在疫苗和免疫治疗研究中具有关键作用,并且 increasingly 被认为是机会性感染患者诊断和预后评估的重要手段35。本方案描述了一种简便的抗原刺激系统,仅需少量血液样本(每种抗原250–500 µL),即可实现对抗原特异性免疫反应的稳健且多模态的分析。与先前建立的500 µL方案相比,缩小至250 µL的方案在抗原特异性T细胞频率、表型及细胞因子产生方面均表现出极佳的相关性。尽管样本处理的某些步骤已有小体积解决方案36,但据作者所知,目前尚无任何商用系统能够可靠地支持从250–500 µL血液样本中进行抗原刺激,并通过流式细胞术、细胞因子释放检测以及转录组学对T细胞介导的功能性免疫反应开展多维度功能分析。目前应用最广泛的类似功能商用系统需使用1 mL血液样本,并在3 mL刺激环境中进行,与本方案相比,所需抗原量更多,成本显著更高13,14,15。
尽管基于全血的抗原特异性T细胞流式细胞术定量检测方案已持续优化6,37,38,但流式细胞术检测仍存在若干缺点。特别是该方法本质上仍较为耗时,且由于操作者间差异显著(例如主观的设门过程)、不同实验室之间的仪器配置、补偿方案和采集参数各异,难以实现标准化。尽管标准化报告39以及自动化分析和设门软件的应用可能有助于提高日益复杂的多色数据集的标准化程度和可比性40,41,但本文所述的刺激方案已被设计为可适配多种非流式细胞术的检测方式。
特别是,细胞因子释放实验所需的人工操作时间较短,且可使用相对廉价的设备完成,通常易于标准化,适用于常规临床应用。此外,如先前使用本方案的研究所示,借助现代多重检测技术,仅需微量样本即可同时检测多种细胞因子反应,从而可在科研环境中对复杂的细胞因子特征谱进行分析24,42。值得注意的是,本方案采用双重共刺激,能够对非淋巴细胞减少症患者(>800 个淋巴细胞/µL 血液)的抗原特异性细胞因子反应进行可靠定量,即使在接受医源性免疫抑制治疗的患者中亦可实现26,34。细胞因子释放实验的一个局限性在于,尤其是在白细胞减少患者中,无法将分泌的细胞因子追溯至特定的细胞亚群。在某些情况下,若存在细胞特异性刺激物,可通过其使用在一定程度上缓解该问题。然而,可能仍需结合其他检测方法的读数,和/或根据临床血液学参数(即含白细胞分类计数的全血细胞计数)对细胞因子反应结果进行调整。值得注意的是,本文所述方案允许从同一样本中同时获取细胞因子读数与转录特征谱,从而实现对明确定义的转录激活标志物的协同分析,以增强整体细胞因子特征谱的细胞背景信息与特异性。
实现完全标准化并进一步提高临床适用性的未来步骤,将是这些检测从样本处理到分析物读数的全流程自动化。尽管针对特定细胞亚群的精确自动化分离技术已成功建立43,44,抗原特异性T细胞分析仍需要实验人员进行间歇性的人工操作。然而,若能省去细胞分离步骤,避免对脆弱的外周血单个核细胞(PBMC)进行人工操作,并采用 commercially available、适用于自动化的刺激管,则有望推动基于全血的简单、全自动功能免疫检测流程的实施。
总之,基于全血的多功能实验方案(例如本文所述方案)具有广阔前景,可将抗原特异性功能免疫分析的应用拓展至新的患者群体和研究领域,包括小型动物的临床前研究。目前,在小鼠模型中开展抗原特异性功能免疫分析仍面临较大困难,通常需要合并多只动物的血液样本,和/或使用非标准化的细胞提取物(如脾细胞)。鉴于当前对免疫治疗干预措施(例如免疫检查点抑制剂、造血生长因子、细胞因子等)以增强宿主对机会性感染防御能力的兴趣日益增长,以及新型疫苗技术的快速发展,抗原特异性功能免疫分析预计将在临床前感染性疾病研究和不同人群的临床应用中发挥越来越重要的作用。本文所介绍的这一稳定、低成本、操作简便且所需样本量少的抗原刺激系统,有望推动抗原特异性免疫分析在尚未充分开发的领域中的广泛应用。此外,该简便方案在分析前阶段表现出的良好稳定性,可能为将免疫分析技术更有效地整合到临床常规实践中创造机会,使我们向基于生物标志物的个体化感染性疾病管理迈进重要一步。
披露
作者无任何利益冲突需要披露。
致谢
我们感谢奥格斯堡大学医院实验室医学与微生物学研究所的临床化学和感染血清学部门进行血清抗体检测。我们感谢弗里德里克·利舍-施塔尔内克博士(Dr. Friederike Liesche-Starnecker)以及奥格斯堡大学医院病理学与分子诊断研究所提供转录组学实验平台。我们感谢奥格斯堡大学医院的玛丽·弗赖塔格(Marie Freitag)在疫苗接种者后勤支持和样本采集方面提供的协助。我们感谢奥拉夫·克尼梅耶博士(Dr. Olaf Kniemeyer)以及德国耶拿的汉斯-克诺尔研究所(Hans-Knoell-Institute)提供烟曲霉(Aspergillus fumigatus)裂解物。本研究工作得到了巴伐利亚研究计划 Bay-VOC(资助编号 GE2-2452-200-D37666/2022)、德国巴伐利亚州科学与艺术部以及德国奥格斯堡大学的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 7-AAD 溶液 | Miltenyi Biotec | 130-111-568 | |
| 抗人IFN-γ-PE,REA600,100次检测 | Miltenyi Biotec | 130-113-498 | |
| 烟曲霉裂解物 | N/A | N/A | 由德国耶拿汉斯-克诺尔研究所友情提供 |
| Brilliant Violet 650 抗人 CD197(CCR7)抗体 | BioLegend | 353234 | |
| 缓冲液EL | Qiagen | 79217 | 红细胞裂解缓冲液 |
| CD154-PE-Vio770,人,REA238,100次检测 | Miltenyi Biotec | 130-113-614 | |
| CD279(PD1)-VioBright 515,人源,100次检测 | Miltenyi Biotec | 130-120-386 | |
| CD28 纯品,人源 - 功能级 | Miltenyi Biotec | 130-093-375 | |
| CD3-VioBright R720,人,REA613,100次检测 | Miltenyi Biotec | 130-127-377 | |
| CD45RO-APC-Vio770,人,REA611,100次检测 | Miltenyi Biotec | 130-113-557 | |
| CD49d 纯化,人源 | Miltenyi Biotec | 130-093-279 | |
| CD4-VioBlue,人源,REA623,100次检测 | Miltenyi Biotec | 130-114-534 | |
| CD69-PE-Vio615,人,REA824,100次检测 | Miltenyi Biotec | 130-112-617 | |
| CO2 培养箱 | PHCbi | MCO-170AICD-PE | |
| CPI 阳性对照溶液 | 免疫斑点 | CTL-CPI-001 | |
| CRX-527 | Invivogen | tlrl-crx527 | |
| CytExpert 采集与分析软件 | 贝克曼库尔特 | 版本 2.4 | 流式细胞仪操作软件 |
| CytoFlex S B2-R3-V4-Y4 | 贝克曼库尔特 | B75408 | 流式细胞仪 |
| GraphPad Prism | GraphPad | 版本 10.1.0 | |
| 单纯疱疹病毒1型裂解物 | AID Autoimmun Diagnostika | ELSP 5916K | |
| HU IFN G 未包被 ELISA 2X96T PLT | 赛默飞世尔科技 | 88-7316-22 | |
| HydroFLex 微孔板洗涤仪 | Tecan | 30220085 | |
| Infinite M Plex | Tecan | 30213614 | 多功能微孔板读板机 |
| Kaluza分析软件 | 贝克曼库尔特 | 版本 2.1.00003.20057 | 流式细胞术数据分析软件 |
| MACS 内部染色试剂盒 | Miltenyi Biotec | 130-090-477 | |
| Mastercycler X50l | Eppendorf | 6303000010 | |
| Nanodrop One | 赛默飞世尔科技 | ND-ONE-W | |
| nCounter Sprint 芯片 | Nanostring | 100078 | |
| nCounter Sprint 分析仪 | Nanostring | 100170 | |
| nCounter Sprint 试剂盒 | Nanostring | 100077 | |
| nSolver | Nanostring | 版本 4.0 | Nanostring nCounter 数据分析软件 |
| Octeniderm 无色 250 ml 瓶 | Schuelke | 118211 | |
| Omnifix F Solo,1 ml,无针头ü勒,三件套 | 布劳恩 | 9161406V | 注射器 |
| PepTivator CMV pp65,人源,60 nmol | Miltenyi Biotec | 130-093-435 | |
| PepTivator SARS-CoV-2 Prot_S,科研级,用于1次刺激×108 细胞 | Miltenyi Biotec | 130-126-700 | |
| QIAshredder | Qiagen | 79654 | |
| RNA保护剂 | Qiagen | 76526 | |
| RNeasy Plus Mini Kit | Qiagen | 74134 | |
| RPMI 1640 培养基,含 GlutaMAX 补充剂,含 HEPES | 赛默飞世尔科技 | 72400047 | |
| 安全型 2020 1.5 微生物安全柜 | 赛默飞世尔科技 | 51026959 | |
| S-Monovette 肝素锂,4.9 ml | Sarstedt | 04.1939.001 | 采血管 |
| S-Monovette 中性,2.7 ml | Sarstedt | 05.1729 | 刺激环境管 |
| Sterican 安全型针头 G 19 × 1 1/2″ 1.1 × 40 mm | 布劳恩 | 4670052S-01 | 针头 |
| 终止液,100 mL | 赛默飞世尔科技 | BMS409.0100 | |
| 20倍洗涤缓冲液,500 mL | 赛默飞世尔科技 | BMS408.0500 | |
| 水,1 l | 卡尔·罗斯 | 3478.1 | |
| XT Hs 耗竭 CSO | Nanostring | 115000466 | Nanostring免疫耗竭检测面板 |
参考文献
- Mckenna, K. C., Beatty, K. M., Vicetti Miguel, R., Bilonick, R. A. Delayed processing of blood increases the frequency of activated CD11b+ CD15+ granulocytes which inhibit t cell function. J Immunol Methods. 341 (1-2), 68-75 (2009).
- Doberne, D., Gaur, R. L., Banaei, N. Preanalytical delay reduces sensitivity of quantiferon-tb gold in-tube assay for detection of latent tuberculosis infection. J Clin Microbiol. 49 (8), 3061-3064 (2011).
- Corbiere, V., et al. A semi high-throughput whole blood-based flow cytometry assay to detect and monitor bordetella pertussis-specific th1, th2 and th17 responses. Front Immunol. 14, 1101366(2023).
- Lauruschkat, C. D., et al. Development of a simple and robust whole blood assay with dual co-stimulation to quantify the release of t-cellular signature cytokines in response to aspergillus fumigatus antigens. J Fungi (Basel). 7 (6), 462(2021).
- Riou, C., et al. simplified whole blood-based multiparameter assay to quantify and phenotype SARS-COV-2-specific T-cells. Eur Respir J. 59 (1), 2100285(2022).
- Weis, P., et al. Development and evaluation of a whole blood-based approach for flow cytometric quantification of CD154+ mould-reactive T cells. Med Mycol. 58 (2), 187-196 (2020).
- Boyum, A. Isolation of lymphocytes, granulocytes and macrophages. Scand J Immunol. 5, Suppl 5 9-15 (1976).
- Chen, G., Wang, H., Wang, Y. Clinical application of quantiferon-tb gold in-tube in the diagnosis and treatment of tuberculosis. Eur J Clin Microbiol Infect Dis. 39 (4), 607-612 (2020).
- Manuel, O., Kumar, D. Quantiferon-tb gold assay for the diagnosis of latent tuberculosis infection. Expert Rev Mol Diagn. 8 (3), 247-256 (2008).
- Inthawong, M., et al. A whole blood intracellular cytokine assay optimised for field site studies demonstrates polyfunctionality of CD4+ t cells in acute scrub typhus. PLoS Negl Trop Dis. 17 (3), e0010905(2023).
- Johnson, S. A., et al. Evaluation of quantiferon SARS-COV-2 interferon-gamma release assay following SARS-COV-2 infection and vaccination. Clin Exp Immunol. 212 (3), 249-261 (2023).
- Kruttgen, A., et al. Evaluation of the quantiferon SARS-COV-2 interferon-ɣ release assay in mrna-1273 vaccinated health care workers. J Virol Methods. 298, 114295(2021).
- Duffy, D., et al. Standardized whole blood stimulation improves immunomonitoring of induced immune responses in multi-center study. Clin Immunol. 183, 325-335 (2017).
- Duffy, D., et al. Functional analysis via standardized whole-blood stimulation systems defines the boundaries of a healthy immune response to complex stimuli. Immunity. 40 (3), 436-450 (2014).
- Smith, N., et al. Defective activation and regulation of type i interferon immunity is associated with increasing COVID-19 severity. Nat Commun. 13 (1), 7254(2022).
- Lauruschkat, C. D., et al. CD4+ T cells are the major predictor of hcmv control in allogeneic stem cell transplant recipients on letermovir prophylaxis. Front Immunol. 14, 1148841(2023).
- Pelchen-Matthews, A., Parsons, I. J., Marsh, M. Phorbol ester-induced downregulation of cd4 is a multistep process involving dissociation from p56lck, increased association with clathrin-coated pits, and altered endosomal sorting. J Exp Med. 178 (4), 1209-1222 (1993).
- Boise, L. H., et al. CD28 costimulation can promote t cell survival by enhancing the expression of bcl-xl. Immunity. 3 (1), 87-98 (1995).
- Udagawa, T., Woodside, D. G., Mcintyre, B. W. Alpha 4 beta 1 (CD49d/CD29) integrin costimulation of human t cells enhances transcription factor and cytokine induction in the absence of altered sensitivity to anti-cd3 stimulation. J Immunol. 157 (5), 1965-1972 (1996).
- Baumann, J., et al. Golgi stress-induced transcriptional changes mediated by mapk signaling and three ets transcription factors regulate mcl1 splicing. Mol Biol Cell. 29 (1), 42-52 (2018).
- Miller, S. G., Carnell, L., Moore, H. H. Post-golgi membrane traffic: Brefeldin a inhibits export from distal golgi compartments to the cell surface but not recycling. J Cell Biol. 118 (2), 267-283 (1992).
- Zandvliet, M. L., et al. Co-ordinated isolation of CD8(+) and CD4(+) t cells recognizing a broad repertoire of cytomegalovirus pp65 and ie1 epitopes for highly specific adoptive immunotherapy. Cytotherapy. 12 (7), 933-944 (2010).
- Kramer, K. J., et al. Single-cell profiling of the antigen-specific response to bnt162b2 sars-cov-2 rna vaccine. Nat Commun. 13 (1), 3466(2022).
- Tappe, B., et al. COVID-19 patients share common, corticosteroid-independent features of impaired host immunity to pathogenic molds. Front Immunol. 13, 954985(2022).
- Stover, A. G., et al. Structure-activity relationship of synthetic toll-like receptor 4 agonists. J Biol Chem. 279 (6), 4440-4449 (2004).
- Page, L., et al. Impact of immunosuppressive and antifungal drugs on pbmc- and whole blood-based flow cytometric CD154(+) Aspergillus fumigatus specific t-cell quantification. Med Microbiol Immunol. 209 (5), 579-592 (2020).
- Hedley, B. D., Keeney, M. Technical issues: Flow cytometry and rare event analysis. Int J Lab Hematol. 35 (3), 344-350 (2013).
- Bacher, P., Scheffold, A. Flow-cytometric analysis of rare antigen-specific T cells. Cytometry A. 83 (8), 692-701 (2013).
- Frentsch, M., et al. Direct access to CD4+ t cells specific for defined antigens according to cd154 expression. Nat Med. 11 (10), 1118-1124 (2005).
- Osum, K. C., Jenkins, M. K. Toward a general model of CD4(+) t cell subset specification and memory cell formation. Immunity. 56 (3), 475-484 (2023).
- Lighvani, A. A., et al. T-bet is rapidly induced by interferon-gamma in lymphoid and myeloid cells. Proc Natl Acad Sci U S A. 98 (26), 15137-15142 (2001).
- Lamb, Y. N. Bnt162b2 mrna COVID-19 vaccine: First approval. Drugs. 81 (4), 495-501 (2021).
- Arbel, R., et al. Bnt162b2 vaccine booster and mortality due to COVID-19. N Engl J Med. 385 (26), 2413-2420 (2021).
- Lauruschkat, C. D., et al. T-cell immune surveillance in allogenic stem cell transplant recipients: Are whole blood-based assays ready to challenge elispot. Open Forum Infect Dis. 8 (1), 547(2021).
- Albert-Vega, C., et al. Immune functional assays, from custom to standardized tests for precision medicine. Front Immunol. 9, 2367(2018).
- Biolegend. , Available from: https://www.biolegend.com/de-de/products/dry-human-aim-assay-cocktail-kit-23591?GroupID=GROUP28 (2024).
- Lauruschkat, C. D., et al. Susceptibility of a. Fumigatus-specific t-cell assays to pre-analytic blood storage and pbmc cryopreservation greatly depends on readout platform and analytes. Mycoses. 61 (8), 549-560 (2018).
- Wurster, S., et al. Quantification of a. Fumigatus-specific cd154+ t-cells-preanalytic considerations. Med Mycol. 55 (2), 223-227 (2017).
- Britten, C. M., et al. T cell assays and miata: The essential minimum for maximum impact. Immunity. 37 (1), 1-2 (2012).
- Cossarizza, A., et al. Guidelines for the use of flow cytometry and cell sorting in immunological studies (third edition). Eur J Immunol. 51 (12), 2708-3145 (2021).
- Le Lann, L., et al. Standardization procedure for flow cytometry data harmonization in prospective multicenter studies. Sci Rep. 10 (1), 11567(2020).
- Lauruschkat, C. D., et al. Chronic occupational mold exposure drives expansion of aspergillus-reactive type 1 and type 2 t-helper cell responses. J Fungi (Basel). 7 (9), 698(2021).
- Pascual-Garcia, M., et al. Lif regulates cxcl9 in tumor-associated macrophages and prevents cd8(+) t cell tumor-infiltration impairing anti-pd1 therapy. Nat Commun. 10 (1), 2416(2019).
- Paull, D., et al. Automated, high-throughput derivation, characterization and differentiation of induced pluripotent stem cells. Nat Meth. 12 (9), 885-892 (2015).
重印与许可
