肺器官芯片模型通过模拟气液界面和内皮细胞灌注,实现了对肺生理学研究至关重要的血流和营养交换过程,从而超越了传统的二维培养方法。这提高了肺部研究的相关性,提供了一个动态且符合生理特征的环境,有助于深入理解并治疗呼吸系统感染。
本文内容
摘要
摘要
我们介绍一种先进的免疫活性肺芯片模型,旨在模拟人类肺泡的结构与功能。该创新模型采用一种微流控灌注式生物芯片,可支持气液界面,模拟人体肺泡内的微环境。通过组织工程技术整合关键细胞成分,包括内皮细胞、巨噬细胞和上皮细胞,构建出具有代表性的肺泡组织模型。该模型有助于深入研究黏膜免疫系统对多种病原体(包括病毒、细菌和真菌)的免疫应答,从而推动对肺部免疫机制的理解。本实验方案的主要目标是提供建立该肺泡芯片模型的详细步骤,以作为一种可靠的 体外 用于感染研究的平台,使研究人员能够密切观察和分析病原体与宿主免疫系统在肺部环境中的复杂相互作用。该平台通过应用基于微流控的技术,模拟人肺泡的关键生理条件,包括血流和对内皮细胞的生物力学刺激,同时维持气-液界面,以实现上皮细胞对空气的真实暴露。该模型系统可兼容多种标准化检测方法,如免疫荧光染色、细胞因子谱分析以及菌落形成单位(CFU)/蚀斑分析,从而全面揭示感染过程中免疫动态变化。肺泡芯片由多种关键细胞类型组成,包括由多孔聚对苯二甲酸乙二醇酯(PET)膜分隔的人类远端肺上皮细胞(H441)和人脐静脉内皮细胞(HUVECs),并在上皮层与内皮层之间战略性地置入原代单核细胞来源的巨噬细胞。该组织模型显著增强了对肺部免疫反应中复杂因素进行解析和分析的能力 体外作为一种有价值的工具,它应有助于推动肺部研究的进步,提供更准确、更动态的 体外 用于研究呼吸道感染的发病机制及评估潜在治疗干预措施的模型。
引言
人类肺部在呼吸和免疫防御中具有重要作用,肺泡黏膜的免疫反应之间存在复杂的相互作用1。肺泡产生有效免疫反应的能力对于预防肺部感染和维持肺部健康至关重要。由于肺部持续暴露于多种潜在风险之下,包括细菌、病毒、真菌、过敏原和颗粒物, 深入理解肺泡黏膜免疫反应的复杂性,对于揭示呼吸道感染和炎症性疾病的机制以及治疗肺部疾病具有重要意义1。
研究呼吸道感染和炎症相关过程 体外需要能够真实模拟肺泡微环境及免疫反应的模型。二维细胞培养和动物模型已被用作肺部免疫反应生物医学研究的必要工具数十年,但它们在向人类实际情况转化时往往存在局限性。器官芯片模型有助于弥补传统模型与人类生理之间的差距。 体外 和 体内 模型,并为研究人类特异性免疫反应提供了一种新方法2,3肺芯片模型可模拟气液界面,该界面是肺细胞重现呼吸道生理条件并构建更精确、更稳健的组织模型所必需的。这种培养技术能够精确地检测细胞分化、功能及其对药物或疾病相关刺激的反应。 体外2.
本研究中,我们提出了一种基于微流控技术的人肺泡模型,该模型通过灌注模拟血流、对内皮细胞施加生物力学刺激,并结合气液界面使上皮细胞暴露于气相环境中,从而有效重现人体肺泡微环境4。我们开发了一种微流控灌注式“肺泡芯片”模型,可模拟人肺泡的物理结构和生物学相互作用,尤其关注气液界面的构建。该界面在呼吸上皮细胞的分化过程中发挥关键作用,对于精确模拟肺部微环境至关重要。该模型采用人远端肺上皮细胞(H441)和人脐静脉内皮细胞(HUVECs),两者之间由多孔聚对苯二甲酸乙二醇酯(PET)膜隔开,而在细胞层之间置入人原代单核细胞来源的巨噬细胞。该结构重现了肺泡复杂的细胞排列方式,对于准确模拟气液界面至关重要,而气液界面是肺组织生理功能的重要影响因素。
开发该模型的原理在于整合循环免疫细胞和组织驻留免疫细胞。这一方法旨在精确模拟人体对呼吸道感染的炎症宿主反应,为研究病原体与宿主之间的相互作用提供一个动态环境。巨噬细胞的存在使得研究人员能够观察即时的免疫应答及其与病原体的相互作用,从而反映抵御呼吸道感染的第一道防线。此外,该生物芯片平台的设计便于对生物物理和生化信号进行便捷而精确的调控,这对于模拟肺泡功能至关重要。 体外这种灵活性对于剖析人类感染的促成因素至关重要,使研究人员能够调节条件以模拟不同的疾病状态,或测试潜在的治疗干预措施。该平台可与多种检测技术兼容,包括高级显微镜、微生物学分析和生化出流物分析,从而增强了其应用价值。这些功能支持对组织感染反应进行全面评估,包括细胞行为、病原体增殖以及免疫应答有效性的分析。
我们介绍了一种详细的方案和技术,用于构建和使用人肺泡芯片模型,该模型重点模拟气液界面,并整合免疫细胞,以在体外研究人类感染。
方案
人脐静脉内皮细胞(HUVEC)从脐带中分离获得,使用代数不超过第4代。初代单核细胞从健康供体的全血中分离获得。本研究经德国耶拿大学医院伦理委员会批准(3939-12/13)。根据《赫尔辛基宣言》,所有为本研究捐献细胞的个体均签署了知情同意书。
1. 第1天:生物芯片的准备
- 生物芯片有多种尺寸和型号可供选择。本实验使用型号为 BC002 的芯片。将芯片置于玻璃培养皿中,向培养皿中加入无菌 70% 乙醇(EthOH),并冲洗所有腔室。室温孵育 45 分钟。随后用无菌 ddH2O 冲洗腔室两次,并移除 ddH2O。
- 通过使用带蓝色吸头的 1,000 µL 移液器,将无菌 IV 型胶原溶液(0.5 mg/mL 溶于 0.5 mM 乙酸;使用含镁和钙的杜氏磷酸盐缓冲液 PBS (+/+) 以 1:100 稀释)轻柔地冲洗两个腔室,从而对芯片膜的上下腔室进行包被。在 37 °C 和 5% CO2 条件下孵育 15 分钟。
注意:在整个实验流程中,建议使用带蓝色滤芯吸头的 1,000 µL 移液器(P1000)。滤芯吸头的开口直径可完全覆盖连接通道的端口开口,从而避免将气泡引入芯片中。 - 孵育 30 分钟后,用无菌 PBS (+/+) 冲洗上腔室和下腔室各两次,以去除残留的胶原和乙酸。
- 通过加入 1:100(v/v)青霉素/链霉素溶液(10,000 U/mL),配制 EC 培养基。向上腔室每腔加入 250 µL EC 培养基,向下腔室每腔加入 150 µL EC 培养基。
- 从融合的 T25 培养瓶中收集 HUVEC 细胞:用 5 mL 不含镁和钙的杜氏磷酸盐缓冲液 PBS (-/-) 洗涤细胞,加入 1 mL 含 0.25% 胰蛋白酶和 1 mM EDTA 的 PBS (-/-) 溶液,在 37 °C 下孵育 3 分钟。加入 5 mL PBS (+/+) + 5% FCS 终止胰酶反应,并在 50 mL 锥形管中于室温(RT)以 350 × g 离心 5 分钟。弃去上清液,将细胞沉淀重悬于 1 mL EC 培养基中。
- 进行细胞计数时采用 1:10 的连续稀释法。取 10 µL 重悬的细胞悬液加入 90 µL 细胞培养基中。小心混匀样品。取 10 µL 台盼蓝染液加入微量离心管中,再将细胞悬液与台盼蓝按 1:1 比例稀释后滴加至细胞计数板。使用血球计数板(Neubauer Chamber)手动计数或使用自动细胞计数仪进行计数。确定细胞数量,并调整浓度至每 200 µL 含 0.4 × 10⁶ 个细胞。
- 将芯片上腔室中的内皮细胞培养基更换为含悬浮 HUVEC 细胞的 EC 培养基 200 µL。轻柔移液,避免在通道或腔室内产生气泡。将装有芯片的玻璃培养皿置于 37 °C 和 5% CO2. 条件下培养。
2. 第2天:检测细胞层
- 在第2天,目视检查上腔中HUVEC细胞层的融合度。用300 µL内皮细胞培养基(EC medium)更换上腔培养基。 吹打时动作轻柔,避免细胞从膜上脱落。此后每24小时进行一次培养基更换。将装有生物芯片的玻璃培养皿放回37 °C、5% CO2培养箱中。
3. 第3天:下腔室的准备
- 观察内皮细胞层的融合度。此时应确认是否存在融合的细胞层以及铺路石样的形态特征(图1)。在上腔中加入300 µL内皮细胞培养基,进行换液。
- 接下来,准备用于接种形成上皮层细胞的下腔。用150 µL RPMI培养基(添加1:100(v/v)青霉素/链霉素(10,000 U/mL)、5%胎牛血清、1 µM地塞米松)轻轻冲洗下腔。
- 对于下腔,每孔接种0.5 × 10⁶个悬浮于200 µL RPMI培养基(RPMI)中的H441细胞。
- 收获H441细胞
- 用5 mL不含钙镁离子的磷酸盐缓冲液(PBS (-/-))洗涤细胞一次。加入2 mL含0.25%胰蛋白酶和1 mM EDTA的PBS (-/-) 溶液。
- 在37 °C、5% CO2条件下孵育5分钟。孵育时间根据细胞层的融合程度而有所变化。通常在5–7分钟内细胞应完全脱落。
- 加入10 mL含5% FBS的PBS (+/+) 终止胰酶活性,收集细胞,并在200 × g 条件下离心4分钟。
- 离心后弃去上清液,将沉淀重悬于1 mL RPMI培养基中,进行细胞计数。
- 每腔接种0.5 × 10⁶个细胞 ,将细胞悬液轻柔地通过移液加入下腔。关闭所有端口并将生物芯片倒置,使细胞能够附着在PET膜上。保持芯片倒置状态,在37 °C、5% CO2的细胞培养孵箱中过夜孵育。
第4天至第7天:细胞维持与单核细胞收获
- 每天对上腔和下腔进行培养基更换。对于上腔,使用300 µL 的 EC 培养基。
- 使用 200 µL of RPMI+(RPMI 培养基添加 1:100(v/v)青霉素/链霉素(10,000 U/mL)、10 ng/mL GM-CSF、10% 自体人血清、1 µM 地塞米松)加入下腔。第7天,用RPMI+冲洗下腔,以准备接种单核细胞的腔室。
- 接种 0.1 × 10⁶ 200微升悬浮的单核细胞 µ下室加入 L RPMI+。
- 单核细胞的收获
- 用 1 mL PBS (-/-) 洗涤细胞,并在 37℃ 下孵育 7 分钟 °37℃下,在预热的含4 mg/mL利多卡因和5 mM EDTA的PBS(-/-)中 °C 和 5% CO2.
- 收集细胞,在 350 x g 7分钟,将细胞重悬于1 mL RPMI+培养基中并计数。将生物芯片的端口朝下放置,以使细胞附着于膜上。
5. 第8天:生物芯片灌注
- 此时,确保生物芯片已准备好连接至流路并进行灌注。在开始灌注前,准备一个空的培养箱,并将蠕动泵放置其中。
- 生物芯片的灌注
- 在将已灭菌的管路连接至生物芯片之前,先用 200 µL 的 PBS (+/+) 冲洗管路,随后用 200 µL 的 EC 培养基冲洗。该管路内径为 0.5 mm,由两个蠕动泵夹具分为较长(20 cm)和较短(12 cm)两段。将管路放置一旁,并准备培养基储液槽。
- 通过分别用新鲜配制的细胞培养基冲洗上、下腔室,完成培养基更换。
- 将储液槽插入生物芯片的出口侧,并用管路将储液槽连接至生物芯片的入口(图 2)。连接管路与储液槽及生物芯片,使培养基在储液槽与生物芯片之间形成循环灌注。
- 所有部件连接至端口后,在储液槽中加入 500 µL EC 培养基。将生物芯片通过管路以 21 µL/min 的流速进行灌注(图 2)。在灌注开始的前 15 分钟内密切观察是否有气泡进入。每天在两个腔室中进行一次培养基更换。
第9天至第11天:建立气液界面
- 停止灌注,排空储液槽,并在无菌安全柜中重新加入新配制的培养基。用移液器向储液槽中加入 500 µL EC 培养基,并用 200 µL RPMI+ 轻柔冲洗下腔室。以 21 µL/min 的灌注速率重新启动灌注。
- 气液界面(ALI)
- 从第 12 天开始建立气液界面,直至实验结束(第 14 天)。在气液界面培养期间,使上皮细胞暴露于空气中。
- 为建立气液界面培养,配制新的血管培养基 EC(加入 1:100(v/v)青霉素/链霉素(10,000 U/mL)、10 ng/mL GM-CSF、20% 自体人血清、1 µM 地塞米松),以维持芯片中所有细胞类型。此时培养基中含有较高浓度的 AS(20%)。
- 在无菌安全柜中打开下腔室的塞子,小心吸去培养基,直至观察到气泡,如图 3所示。确保通道和腔室中的液体完全去除,并小心关闭端口。
- 向储液槽中加入 EC (-/-) 培养基,并以 21 µL/min 的流速继续灌注培养。仅在上腔室更换培养基至第 14 天,同时保持下腔室中的上皮细胞仅暴露于空气。
7. 第14天:组织收获与分析
- 将生物芯片与流体系统断开。拔出管路,并在显微镜下检查细胞汇合度。由于下层腔室中存在空气,细胞层可能显得模糊,难以观察。此时,模型已准备好进行后续实验。
- 生物芯片中组织的固定与染色
- 用 PBS (+/+) 冲洗腔室以去除细胞培养基。用移液器加入 300 µL 4% 多聚甲醛(PFA)溶于 PBS(-/-)中,加入上室,以及 200 µ下室中加入 L,室温孵育 10 分钟。
注意:使用PFA等固定剂时,应在通风橱中操作。妥善收集并处理废弃物。 - 用 PBS (+/+) 清洗腔室 3 次。固定后,将生物芯片置于 4℃ 保存。 °C 或直接用于细胞的免疫荧光染色。
- 用于透化,用移液器加入 300 µPBS(+/+)中0.25% Triton X-100溶液,每孔加入适量体积,室温孵育30分钟。
- 孵育后,用 PBS (+/+) 清洗两个腔室,并用移液器加入 300 µ在两个腔室中加入含3%牛血清白蛋白(BSA)的PBS(+/+),每腔室加入量为L。室温孵育1小时。
- 同时,准备免疫荧光染色用的抗体组合。为配制免疫荧光染色用的抗体组合,取一管含有足量3% BSA的溶液用于稀释抗体。使用50 µ每张膜使用 L 抗体稀释液。一抗抗体组采用 1:100 的稀释比例,二抗抗体组采用 1:200 的稀释比例。此外,对于二抗抗体组,将 DAPI 配置为 1:2,000 的稀释比例。对应抗体详见 (表1).
- 为直接接触生物芯片内的细胞,需移除密封膜。打开微流控腔室时,应沿腔室外侧精确切割,并移除密封膜。使用手术刀切除与生物芯片密封边缘相连的膜片,将膜取出。
注意:此步骤需精确且准确地操作,避免因手术刀锋利而造成膜的损伤或破损。 - 将膜从生物芯片上取下后,将其分割成两片。用镊子夹取膜片并置于显微镜载玻片上进行染色。
- 移液 50 µ每膜片加入 L 抗体溶液,4 ℃孵育过夜 ˚避光,4°C 保存。
- 孵育后,将膜置于500 µL PBS(-/-)加入24孔板中,用PBS(+/+)洗涤膜3次,每次5分钟。洗涤后,用移液器吸取50 µ加入二抗溶液,于避光条件下室温孵育1小时。
- 用 PBS (+/+) 洗涤膜,每次 5 分钟,共洗 3 次。同时,为实验准备并标记显微镜载玻片。在载玻片上滴加一滴封片剂,然后将相应的膜放置其上。对所有膜重复此步骤。最后,在膜的上方再滴加一滴封片剂,并加盖盖玻片。4 ℃ 保存 ˚C.
- 用 PBS (+/+) 冲洗腔室以去除细胞培养基。用移液器加入 300 µL 4% 多聚甲醛(PFA)溶于 PBS(-/-)中,加入上室,以及 200 µ下室中加入 L,室温孵育 10 分钟。
结果
通过免疫荧光染色可检测形态学改变及标志蛋白的表达。共培养14天后,分别分析血管侧和上皮侧各自细胞标志物的表达情况。该方法有助于研究血管与上皮组分之间的相互作用及其完整性,对于感染相关功能生物学读数的疾病建模具有重要意义。免疫荧光染色可结合定量分析、形态学评估以及功能检测进行验证,包括细胞因子释放、乳酸脱氢酶(LDH)释放等细胞死亡标志物的流出液分析,以及细胞形态计量学的变化。5在血管侧,可通过研究内皮细胞连接蛋白(如VE-cadherin)的完整性和形态,以评估细胞汇合度及内皮屏障的形成情况6 (图 4A灌注后,内皮细胞层应达到融合状态,且在内皮细胞边界处可见结构清晰的VE-cadherin表达。膜的底部可进行免疫染色,以检测上皮标志物,如E-cadherin和表面活性蛋白A(SP-A)。7肺表面活性物质相关蛋白A(SP-A)是肺表面活性物质的关键组分,后者为脂质与蛋白质的复杂混合物,可降低上皮气-液界面的表面张力,从而防止 体内 呼气期间肺泡的塌陷以及维持正常的肺功能和气体交换6,8在我们的模型中,上皮细胞在ALI处理后表达SP-A,可通过免疫荧光染色观察到(图4B)。可通过E-cadherin的免疫荧光染色来确认上皮细胞层的融合度和完整性,E-cadherin是肺泡上皮细胞重要的上皮连接标志物图4C可通过针对巨噬细胞标志蛋白 CD68 的免疫荧光染色来确认巨噬细胞的存在6 (图4C)。如需研究病毒、细菌或真菌感染,请参见 Deinhardt-Emmer 等人提供的感染模型相关细节。6,Schicke 等7,Hoang 等人9.
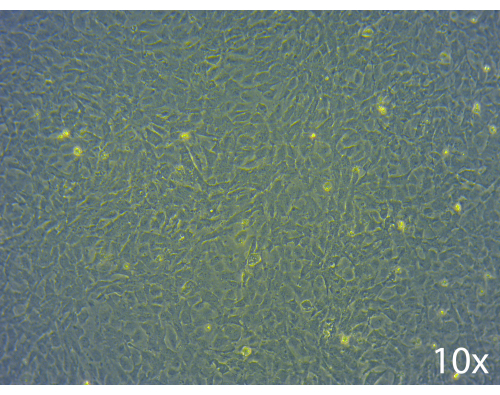
图1:生物芯片上第3天汇合的HUVECs层的代表性图像。图像显示了10倍放大的明场显微镜结果。请点击此处查看该图的放大版本。

图2:肺泡芯片模型及气液界面诱导装置示意图。 (A)肺泡芯片模型灌注系统的代表性图像;(B)通过吸除培养基并向细胞引入空气,在腔室内建立气液界面的代表性图像。腔室内气泡的形成表明细胞已暴露于空气中。请点击此处查看该图的放大版本。

图3:肺泡芯片的示意图。 为期14天的培养详细方案标明了在生物芯片内接种和培养细胞的关键步骤。请点击此处查看该图的放大版本。

图4:内皮细胞和上皮细胞层的免疫荧光染色。 (A)表达VE-cadherin(橙色)的HUVEC内皮细胞;(B-C)表达(B)SP-A(红色)和(C)E-cadherin(橙色)、SP-A(红色)以及CD68(绿色)的H441上皮细胞。DAPI(蓝色)用于染色DNA,以显示细胞核。比例尺为50 µm。请点击此处查看该图的放大版本。
| 腔室 | 细胞 |
| 上腔室 | 内皮细胞 (0.4 x 10⁶) |
| 下腔室 | 上皮细胞 (0.5x10⁶H441 + 1x10⁵ 单核细胞) |
表1: 生物芯片中细胞接种的概述。
讨论
肺泡芯片模型代表了一种多层结构的人肺泡组织模型,该模型整合了下呼吸道的关键细胞类型,包括肺上皮细胞、内皮细胞和巨噬细胞,并在气液界面(ALI)条件下以培养基灌注内皮层的方式进行类器官排列培养。不同层次的细胞表达特定的细胞标志物蛋白,例如E-钙黏蛋白(E-cadherin),这是一种肺上皮细胞中依赖钙离子的黏附分子,在形成上皮细胞间屏障过程中起核心作用5,10。E-钙黏蛋白不仅构成物理屏障元件,还调控机体对环境中有害病原体和物质的免疫应答10,11。H441上皮细胞进一步表达表面活性蛋白A(surfactant protein A),该蛋白在宿主抵御感染的第一道防线中至关重要,可通过介导免疫调节和抗菌活性发挥保护作用8。在肺泡模型中引入免疫细胞可提高其细胞复杂性,从而更真实地模拟感染等炎症刺激下的免疫应答。在此背景下,该模型已被用于研究甲型流感病毒与人类机会性病原体Staphylococcus aureus(S. aureus)的共感染机制5。在该研究中,揭示了一种肺炎中共感染的作用机制:上皮细胞的病毒感染会引发显著的炎症反应,进而对内皮细胞造成严重损伤,导致屏障功能丧失。在另一项研究中,该模型被用于证明S. aureus感染会降低肺中表面活性蛋白A(SP-A)的细胞外水平——SP-A是肺部重要的免疫防御成分,其减少可能与细菌分泌的蛋白酶有关6。尽管S. aureus或甲型流感病毒本身并不直接影响SP-A的表达,但TNF-α(一种在细菌感染尤其是存在巨噬细胞时大量产生的细胞因子)可显著下调SP-A的表达。这些结果表明,细菌的单一感染或继发性感染均可能降低肺部SP-A水平,从而加重细菌性肺炎的病情进展6。此外,肺泡模型还被用于研究烟曲霉(Aspergillus fumigatus)引起的肺泡真菌感染以及抗真菌药物的疗效,结合高分辨率显微镜、基于算法的图像分析以及分子生物学检测方法(如免疫荧光染色和细胞因子谱分析)进行综合评估7。在肺泡芯片上模拟侵袭性肺曲霉病的研究揭示了人源巨噬细胞的关键功能,其可部分抑制真菌生长。巨噬细胞在释放促炎性细胞因子和趋化因子方面发挥核心作用,且这些因子的释放水平与侵袭性真菌菌丝数量增加相关。此外,研究证实抑菌药物卡泊芬净(caspofungin)能有效抑制真菌生长并诱导真菌结构发生形态学改变,这一结果与其他研究发现一致。上述研究证实了该模型平台在识别感染相关的细胞靶点以及在临床相关浓度下进行药物测试方面的巨大潜力。
在构建肺泡芯片模型时,需要考虑多个方面。精确的细胞接种对于实现均匀的细胞分布和细胞层形成至关重要。务必以适当的细胞密度进行接种,以达到融合状态,同时避免细胞过度生长而相互干扰,否则可能影响细胞层的完整性和功能。在建立气液界面(ALI)的过程中,应小心移除顶端侧的培养基,并关闭端口以防止污染。维持最佳的共培养条件(如温度、CO2 水平和培养基成分)对于内皮细胞和上皮细胞的存活及其相互作用至关重要。进行培养基更换时务必谨慎,避免扰动细胞层或引入气泡。移液操作应轻柔,并确保所有使用的设备均处于无菌状态,以最大限度降低污染风险。为防止产生气泡,应在更换培养基时缓慢移液,并倾斜芯片以使气泡得以逸出。操作应在洁净、无菌且受控的环境中进行,以减少污染的可能性。在利用该模型开展后续实验时,需充分考虑建立和维持这一三维模型所需的复杂性与精确性。若发现细胞层未能正常形成,可考虑优化细胞接种密度及细胞批次,因为细胞生长情况可能因供体来源和批次不同而存在差异。
尽管该模型相较于现有方法具有显著改进,但仍需认识到其存在一些局限性。其中之一是微流控装置操作的复杂性和成本问题。运行类器官芯片模型需要专门的设备以及微流控技术方面的专业知识,才能采用肺泡芯片模型。此外,尽管该模型能够成功模拟肺泡环境中的许多关键特征,但尚无法完全复制所有细胞间相互作用及机械力环境 体内例如,该模型缺乏完整的人体免疫系统以及人类肺部的全部细胞类型,这可能会影响病原体-宿主相互作用研究的准确性。
尽管存在这些局限性,与传统的二维细胞培养系统(如Transwell系统)相比,肺芯片模型仍取得了进步。该模型在动态灌注环境中构建了包含气液界面、内皮细胞、上皮细胞以及免疫组分的多层组织结构,为研究肺部生理、疾病机制及治疗反应提供了更接近生理状态的研究方法。 体外这对于推进我们对人类呼吸道感染的理解以及开发更有效的治疗方法至关重要。该模型能够精确调控生物物理和生化信号,这一特性对于解析疾病进展机制和药物作用机制具有重要意义。使用人类细胞材料可进一步减少动物实验中常见的种间差异。整合多种生物标志物分析还能进一步提升单次实验所获取数据的深度与广度,有助于降低体外实验的成本。尽管存在局限性,器官芯片肺模型仍是呼吸系统疾病研究的重要进步,为传统研究方法提供了一种更为准确、伦理可接受且高效的替代方案。
披露
K.R. 是 Dynamic42 GmbH 的首席执行官,并持有该公司股权。A.S.M. 是 Dynamic42 GmbH 的科学顾问,并持有该公司股权。其余所有作者均无利益冲突。
致谢
H.K. 和 A.S.M. 感谢来自莱布尼茨感染光学耶拿科学园(Leibniz Science-Campus InfectoOptics Jena)的资助,该资助由莱布尼茨协会的战略合作资助计划提供。M.A. 和 A.S.M. 的研究得到了德国联邦经济和能源部根据德国联邦议院决议资助的IGF项目IMPROVE的支持。A.S.M. 还感谢“微生物组卓越集群”(Cluster of Excellence Balance of the Microverse)在德国卓越战略框架下提供的财政支持——卓越集群项目编号 EXC 2051,项目ID 690 390713860。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 耗材 | |||
| 细胞计数板(Countess) | Invitrogen | C10283 | |
| 细胞培养多孔板,24孔,无菌 | Greiner Bio-One | 662 160 | |
| 细胞培养多孔板,6孔,无菌 | Greiner Bio-One | 657 160 | |
| 盖玻片(24×40 mm;#1.5) | Menzel-Gläser | 15747592 | |
| Eco擦拭纸 | Dr. Schuhmacher | 00-915-REW10003-01 | |
| Eppendorf管 2.0 mL | Sarstedt | 72.691 | |
| Eppendorf管 0.5 mL | Sarstedt | 72.699 | |
| Eppendorf管 1.5 mL | Sarstedt | 72.690.001 | |
| 离心管 15 mL | Greiner Bio-One | 188 271-TRI | |
| 离心管 50 mL | Greiner Bio-One | 227 261-TRI | |
| 纱布敷料 | Noba | PZN 2417767 | |
| 丁腈手套 Nitril 3000 | Meditrade | 1280 | |
| 显微镜载玻片 | Menzel-Gläser | AAAA000001##12E | |
| 多孔板 24孔,无菌 | Greiner Bio-One | 662 160 | |
| 巴斯德移液管(玻璃)150 mm | Assistent | 40567001 | |
| 巴斯德移液管(玻璃)230 mm | Assistent | 40567002 | |
| 圆底离心管(聚苯乙烯,5 mL) | Falcon | 352052 | |
| 安全多功能采血针套件,20G,200 mm | Sarstedt | 85.1637.235 | |
| 手术刀片 | Dahlhausen | 11.000.00.715 | |
| 血清移液管 10 mL | Greiner Bio-One | 607 160-TRI | |
| 血清移液管 25 mL | Greiner Bio-One | 760 160-TRI | |
| 血清移液管 2 mL | Greiner Bio-One | 710 160-TRI | |
| 血清移液管 50 mL | Greiner Bio-One | 768 160-TRI | |
| 血清移液管 5 mL | Greiner Bio-One | 606 160-TRI | |
| S-Monovette,7.5 mL Z-凝胶 | Sarstedt | 1.1602 | |
| S-Monovette,9.0 mL K3E | Sarstedt | 02.1066.001 | |
| Softasept N | Braun | 3887138 | |
| T25培养瓶 | Greiner Bio-One | 690 960 | |
| 无菌吸头 10µL | Greiner Bio-One | 771 261 | |
| 无菌吸头 1250µL | Greiner Bio-One | 750 261 | |
| 无菌吸头 300µL | Greiner Bio-One | 738 261 | |
| 非无菌吸头 10µL | Greiner Bio-One | 765 290 | |
| 非无菌吸头 1000µL | Greiner Bio-One | 739 291 | |
| 非无菌吸头 200µL | Greiner Bio-One | 686 290 | |
| 镊子(Präzisionspinzette DUMONT 弯头,Inox08,5/45,0.06 mm) | Roth | K343.1 | |
| 化学试剂 | |||
| Descosept AF | Dr. Schuhmacher | N-20338 | |
| 乙醇 96% | Nordbrand-Nordhausen | 410 | |
| 异硫氰酸荧光素(FITC)-葡聚糖(3–5 kDa) | Sigma Aldrich | FD4-100MG | |
| 荧光封片剂 | Dako | S3023 | |
| 甲醇 | VWR | 20847.295 | |
| 皂苷 | Fluka | 47036 | |
| Tergazyme | Alconox | 1304-1 | |
| 细胞培养 | |||
| IV型胶原蛋白 | Sigma-Aldrich | C5533-5MG | |
| 地塞米松 | Sigma-Aldrich | D4902 | |
| DPBS (-/-) | Lonza | BE17-516F | |
| DPBS (+/+) | Lonza | BE17-513F | |
| EDTA溶液 | Sigma-Aldrich | E788S | |
| 内皮细胞生长培养基 | Promocell | C-22020 | |
| 内皮细胞生长培养基添加剂混合液 | Promocell | C-39225 | |
| 胎牛血清 | Sigma-Aldrich | E2129-10g | |
| H441 | ATCC | ||
| 人重组GM-CSF | Peprotech | 300-30 | |
| 利多卡因 | Sigma-Aldrich | L5647-15G | |
| 青霉素-链霉素(10,000 U/mL) | Gibco | 15140-122 /-163 | |
| RPMI培养基 | Gibco | 72400047 | |
| 台盼蓝染色液 0.4% | Invitrogen | T10282 | |
| 胰蛋白酶 | Gibco | 15090-046 | |
| 一抗 | |||
| Cadherin-5 / VE-Cadherin(山羊来源) | BD | 610252 | |
| CD68(兔来源) | CellSignaling | 76437 | |
| E-Cadherin(山羊来源) | R&D | AF748 | |
| SP-A(小鼠来源) | Abcam | ab51891 | |
| 二抗 | |||
| AF488(驴抗小鼠) | Invitrogen | R37114 | |
| AF647(驴抗小鼠) | invitrogen | A31571 | |
| AF647(驴抗兔) | Invitrogen | A31573 | |
| Cy3(驴抗山羊) | jackson research | 705-165-147 | |
| 微流控 | |||
| 芯片 | Dynamic 42 | BC002 | |
| 公鲁尔锁接头(小型) | ChipShop | 09-0503-0270-09 | |
| 微型公鲁尔堵头,四联排,聚丙烯,绿色 | Microfluidic chipshop | 09-0558-0336-11 | |
| 微型公鲁尔堵头,四联排,聚丙烯,不透明 | Microfluidic chipshop | 09-0556-0336-09 | |
| 微型公鲁尔堵头,四联排,聚丙烯,红色 | Microfluidic chipshop | 09-0557-0336-10 | |
| 堵头 | Cole Parmer | GZ-45555-56 | |
| 储液池 4.5 mL | ChipShop | 16-0613-0233-09 | |
| 管路 | Dynamic 42 | ST001 | |
| 设备 | |||
| 高压灭菌器 | Tuttnauer | 5075 ELV | |
| 离心机 | Eppendorf | 5424 | |
| CO₂培养箱 | Heracell | 150i | |
| Countess全自动细胞计数仪 | Invitrogen | C10227 | |
| 流式细胞仪 | BD | FACS Canto II | |
| 冷冻柜(-20 °C) | Liebherr | LCexv 4010 | |
| 冷冻柜(-80 °C) | Heraeus | Herafreeze HFU 686 | |
| 冰箱 | Liebherr | LCexv 4010 | |
| Heraeus多功能离心机 | Thermo Scientific | X3R | |
| 显微镜 | Leica | DM IL LED | |
| 轨道摇床 | Heidolph | Reax2000 | |
| 蠕动泵 | REGLO Digital MS-4/12 | ISM597D | |
| 移液器 10µL | Eppendorf Research plus | 3123000020 | |
| 移液器 100µL | Eppendorf Research plus | 3123000047 | |
| 移液器 1000µL | Eppendorf Research plus | 3123000063 | |
| 移液器 2.5µL | Eppendorf Research plus | 3123000012 | |
| 移液器 20µL | Eppendorf Research plus | 3123000039 | |
| 移液器 200µL | Eppendorf Research plus | 3123000055 | |
| 天平 | Sartorius | 6101 | |
| 天平 | Sartorius | TE1245 | |
| 超净工作台 | Kojair | Biowizard SL-130 | |
| 水浴锅 | Julabo | SW-20C | |
| 荧光显微镜系统 | |||
| Apotome.2 | Zeiss | ||
| 照明装置 | Zeiss | HXP 120 C | |
| 显微镜 | Zeiss | Axio Observer 5 | |
| 光学切片系统 | Zeiss | ApoTome | |
| 显微镜电源 | Zeiss | Eplax Vp232 | |
| 软件 | |||
| ZEN Blue Edition | Zeiss |
参考文献
- Mettelman, R. C., Allen, E. K., Thomas, P. G. Mucosal immune responses to infection and vaccination in the respiratory tract. Immunity. 55 (5), 749-780 (2022).
- Artzy-Schnirman, A., et al. Advanced in vitro lung-on-chip platforms for inhalation assays: From prospect to pipeline. Eur J Pharma Biopharma. 144, 11-17 (2019).
- Huh, D., et al. Reconstituting organ-level lung functions on a chip. Science. 328 (5986), 1662-1668 (2010).
- Benam, K. H., et al. Small airway-on-a-chip enables analysis of human lung inflammation and drug responses in vitro. Nat Meth. 13 (2), 151-157 (2016).
- Ronaldson-Bouchard, K., et al. A multi-organ chip with matured tissue niches linked by vascular flow. Nat Biomed Eng. 6 (4), 351(2022).
- Deinhardt-Emmer, S., et al. Co-infection with staphylococcus aureus after primary influenza virus infection leads to damage of the endothelium in a human alveolus-on-a-chip model. Biofabrication. 12 (2), 025012(2020).
- Schicke, E., et al. Staphylococcus aureus lung infection results in down-regulation of surfactant protein-a mainly caused by pro-inflammatory macrophages. Microorganisms. 8 (4), 577(2020).
- King, S. D., Chen, S. Y. Recent progress on surfactant protein a: Cellular function in lung and kidney disease development. Am J Physiol Cell Physiol. 319 (2), C316-C320 (2020).
- Hoang, T. N. M., et al. Invasive aspergillosis-on-chip: A quantitative treatment study of human aspergillus fumigatus infection. Biomaterials. 283, 121420(2022).
- Yuksel, H., Ocalan, M., Yilmaz, O. E-cadherin: An important functional molecule at respiratory barrier between defence and dysfunction. Front Physiol. 12, 720227(2021).
- Van Roy, F., Berx, G. The cell-cell adhesion molecule e-cadherin. Cell Mol Life Sci. 65 (23), 3756-3788 (2008).
重印与许可
标签
