胰腺癌仍然是最难治疗的癌症之一。因此,用于评估治疗效果的临床前模型必须具有可重复性和临床相关性,这一点至关重要。本方案描述了一种简单的共培养方法,用于生成可重复且具有临床相关性的纤维化球状体。
本文内容
摘要
摘要
胰腺导管腺癌(PDAC)是最致命的癌症之一,其5年生存率<12%。治疗该疾病的最大障碍是围绕肿瘤形成的致密纤维化间质,即所谓的间质纤维增生(desmoplasia),其会显著减少肿瘤的血管化。尽管已尝试多种药物组合和剂型治疗该癌症,其中许多在临床前研究中显示出疗效,但在临床试验中却未能成功。因此,建立一种具有临床相关性的模型以预测肿瘤对治疗的反应显得尤为重要。该模型此前已通过切除的临床肿瘤组织进行了验证。本文介绍了一种简单的三维(3D)共培养类球体培养方案,可自然形成稳定的细胞外基质(ECM),且无需任何外源性基质或支架材料支持其生长。
将人胰腺星状细胞(HPaSteC)和PANC-1细胞按1:2的比例混合,制备成细胞悬液。将细胞接种于经多聚HEMA包被的96孔低吸附U型底培养板中。通过离心使细胞聚集形成初始细胞团。将培养板置于37 °C、含5% CO2的培养箱中孵育,每3天更换一次培养基。可在指定时间点对培养板进行成像,以测定类球体体积。培养14天后,可形成成熟的纤维化类球体(即平均体积为0.048 ± 0.012 mm3 (451 µm × 462.84 µm)),可用于实验性治疗评估。成熟的细胞外基质成分包括I型胶原、透明质酸、纤连蛋白和层粘连蛋白。
引言
胰腺癌预后不良的原因多种多样,其中一个重要原因是缺乏易于检测的生物标志物,导致诊断延迟。另一个主要原因是肿瘤周围存在致密的间质,导致血液供应减少。大量细胞外基质(ECM)的沉积、细胞间相互作用、内皮细胞、多种免疫细胞、周细胞、增殖的肌成纤维细胞和成纤维细胞群体,以及非肿瘤性细胞的存在(共同构成促结缔组织增生反应)1,共同形成了致密的间质结构,这是胰腺导管腺癌(PDAC)对化疗和放疗产生耐药性的主要原因2。肿瘤细胞与间质细胞之间存在复杂、动态且双向的相互作用。尽管某些因素可能抑制或加速疾病进展,但大多数过程在肿瘤发展过程中具有适应性1。这种微环境富含生长因子、促血管生成因子、蛋白酶和黏附分子,这些因子促进血管生成、细胞增殖、转移和侵袭3,4。这些因素共同为肿瘤提供了免疫豁免和药物庇护的微环境,从而导致耐药性的产生。
硬膜增生是一种复杂的混合物,由多种细胞外基质(ECM)蛋白以及免疫细胞和胰腺星状细胞(PSC)组成。这些成分共同倾向于形成支持细胞生长的支架结构。PSC是间质区室中最大的组分之一5。它们能够产生基质金属蛋白酶(MMP)、基质金属蛋白酶组织抑制剂(TIMP)以及癌症相关成纤维细胞(CAF)6 ,表明其在硬膜增生反应的发展中可能发挥关键作用。细胞外基质(ECM)、癌症相关成纤维细胞(CAF)和脉管系统是胰腺导管腺癌(PDAC)的核心特征。在CAF中,肌成纤维细胞和炎症性CAF被认为参与了介导促肿瘤特性的活跃相互作用7。肿瘤中成纤维细胞结构越广泛,预后越差8,9,10。
通过已建立的细胞系进行单层细胞培养仍然是分析药物毒性的有用工具,也是概念验证和发现研究的良好起点。然而,已建立的细胞系缺乏生殖系DNA和临床相关性11. 由于它们在平坦表面培养,会经历不同的 体外 与在肿瘤中时相比,其选择标准发生变化,分裂异常并失去分化表型12总体而言,单细胞培养限制了肿瘤的异质性,因而丧失了临床相关性。它们无法准确模拟肿瘤微环境的复杂性(例如细胞外基质,ECM)。三维培养则能更贴近地再现复杂的肿瘤微环境。
20世纪70年代首次引入了健康细胞及其肿瘤对应物的三维培养技术13。已有多种技术被用于通过球状体研究恶性组织的形态与结构14。与基质细胞的共培养可模拟肿瘤微环境(TME)中的信号。当细胞与星状细胞共培养时,观察到上皮-间质转化(EMT)标志物的上调15。通过与细胞外基质(ECM)成分共培养,可建立胰腺导管腺癌(PDAC)球状体及其与基质相互作用的模型。已有报道表明,特别是与胰腺星状细胞(PSCs)共培养可产生具有临床相关性的药物细胞毒性数据16,17,18。PSCs还通过多种旁分泌因子帮助癌细胞逃避免疫凋亡、促进其增殖19 ,并诱导EMT转化,从而增强药物耐药性。因此,在评估药物或药物递送系统疗效的标准中,从早期阶段纳入PSCs显得至关重要。在免疫缺陷小鼠中进行两种细胞系皮下侧腹注射的体内实验也观察到,与单独的胰腺癌细胞相比,PSCs在联合培养中能够增强细胞增殖并支持更快的生长in vivo20。
在培养共培养类球体时,还需考虑细胞类型与细胞外基质(ECM)组分相互作用的能力。已有报道称,BxPC-3 和 PANC-1 在结合胶原蛋白方面具有相似的亲和力。这两种细胞系对层粘连蛋白的结合能力也基本相当,尽管有文献报道 BxPC-3 的结合能力更强21,22,23,24,25。在迁移能力方面,Stahle 等人26 发现 PANC-1 细胞的运动速度比 BxPC-3 细胞快 5 倍。此外,PANC-1 细胞主要以单细胞形式迁移,而 BxPC-3 细胞则以紧密堆积的细胞片层形式迁移。细胞系的选择还会影响肿瘤的大小25。研究表明,BxPC-3 形成的肿瘤通常比 PANC-1 形成的肿瘤更大27,28 ,但也有研究得出了相反的结果29 。尽管这两种细胞在大小和运动能力上存在差异,但均有报道指出它们在小鼠体内形成肿瘤均需要较长的潜伏期。对于 BxPC-3,这一潜伏期尤其长,可从 4 周持续至 4 个月25。然而,也有文献报道 BxPC-328 或 BxPC-3 肿瘤干细胞30 能够更快地形成可见肿瘤,提示肿瘤生长周期可能存在变异。因此,此处所述的时间仅可作为肿瘤生长速率的初步参考。
BxPC-3 细胞形成的球体表面有松散的细胞,核心较致密,而据报道 PANC-1 细胞既能形成多孔但结构稳定的球体31,也能形成致密的球体。此外,PANC-1 细胞还被报道分化程度较低且更具侵袭性32。鉴于其较强的侵袭性32,并结合 PANC-1 细胞更高的运动能力、形成致密球体的能力以及与细胞外基质(ECM)成分相互作用的能力,本研究选择 PANC-1 细胞用于球体相关实验。
近年来,相比于二维(2D)培养,类球体培养在体现其临床相关性方面的优势已取得诸多成功。该技术已被广泛应用于替代动物实验,并更深入地理解肿瘤生物学特性。类球体的临床相关性,尤其是在与胰腺星状细胞(PSC)共培养时,使其可用于研究类球体的多种功能,例如刚度33,TGF-β的表达34,35,36,37,38E-钙黏蛋白,F-肌动蛋白18,34,36,37α-SMA34,35,37,38乳酸脱氢酶(LDHA)32HIF-1α35,39,耐药性16,37,40细胞迁移41细胞侵袭37纤维化35辐射抗性42,表型变化18,异质性36细胞水平的相互作用39 并展示细胞外基质成分37,38,39许多用于获取上述数据的实验方案依赖于Matrigel、悬滴法、打印模具或其他支架,以支持球状体和细胞外基质(ECM)的生长。这些研究通常使用非人类的成纤维细胞或从患者体内新近分离的星状细胞。尽管使用星状细胞对于使肿瘤模型更接近真实肿瘤至关重要 体内 条件相同时,新鲜提取物带来的患者间差异使得这些研究难以重复。
本方案旨在建立一种易于构建、可重复、具有临床相关性且无需支架材料的模型,完全依赖共培养细胞自身自然生成细胞外基质(ECM)的能力。为此,选择了一种简单的共培养方法,将PANC-1细胞(因其具有以单细胞形式迁移的天然倾向)与人胰腺星状细胞(HPaSteC)混合培养,后者具有类似干细胞的行为特征且对药物高度耐受。在Durymanov等人的研究38基础上,进一步优化了细胞比例和换液间隔时间等参数,建立了如下详细实验方案。本方案所获得的球形细胞聚集体可作为新药候选物评价的模型系统40。
此外,对于不熟悉类球体培养的用户,Peirsman 等人43关于 MISpheroID 知识库开发的研究可能具有参考价值。该研究建立了一些最低信息标准,有助于应对不同实验室方案之间的异质性问题。尽管存在一定的局限性,该研究证明了培养基的选择、细胞系、类球体形成方法以及最终类球体的大小在决定类球体表型特性方面至关重要。
方案
1. 二维细胞培养
- 在无菌条件下,使用添加10%胎牛血清(FBS)的杜尔贝科改良伊格尔培养基(DMEM)培养PANC-1细胞。传代前培养至70%–80%汇合度,且使用代数不超过第20代。th 传代。请参考步骤 4.2.1 中描述的过程。
注意:作为参考点,1 x 106 20 mL 培养基中的细胞需要约 2-3 天达到 70-80% 汇合度。 - 在多聚-L-赖氨酸包被的培养瓶中,使用生产商提供的试剂盒,在无菌条件下,将HPaSteC细胞培养于添加了2% FBS、1%青霉素-链霉素(PenStrep)和1%星状细胞生长补充剂(SteCGS)的星状细胞培养基中。按照生产商说明书进行培养(部分修改),具体操作见步骤4.2.2。
- 在胰蛋白酶消化过程中,由于使用了胰蛋白酶中和液(TNS),可省略制造商说明书中的FBS中和步骤。按照步骤4.2.2.2所述,用总体积为10 mL的TNS中和细胞悬液。
注意:作为参考点,0.5 x 106 细胞和 1 x 10⁶ 细胞在20 mL培养基中分别需要3天和2天达到90%汇合度。 - 在细胞融合度达到90%时收获。请勿使用传代次数超过第7代的细胞。
- 在胰蛋白酶消化过程中,由于使用了胰蛋白酶中和液(TNS),可省略制造商说明书中的FBS中和步骤。按照步骤4.2.2.2所述,用总体积为10 mL的TNS中和细胞悬液。
- 维持细胞培养于 37 °C,置于5% CO₂环境中2, 在相对湿度为90%-95%的无菌培养箱中进行。所有细胞培养实验均在T-75培养瓶中操作。
2. 96孔板的聚(2-羟乙基甲基丙烯酸酯)(poly-HEMA)溶液包被
- 使用95%乙醇配制5 mg/mL的聚羟基乙基甲基丙烯酸酯(poly-HEMA)溶液,并在37 °C下用加热搅拌器搅拌过夜。(例如,500 mL溶液需要2.5 g poly-HEMA)
- 加入搅拌子前标记初始体积位置。次日如有溶液损失,用95%乙醇补足。
- 在无菌操作台中使用0.22 µm滤器过滤最终溶液,并于4 °C冰箱中保存。
注意:poly-HEMA可用于增加表面的疏水性,从而阻止细胞贴壁。由于本研究要求细胞不贴附于孔板表面并以单层形式生长,因此使用poly-HEMA作为额外的防贴壁手段,进一步增强培养板本身固有的低贴附特性,使其成为超低贴附孔板。 - 在细胞培养操作台内,向96孔圆底聚苯乙烯微孔板的每孔中加入50 µL冷溶液,以完成孔板的包被。
- 将盖上盖子的孔板置于37 °C热风烘箱中孵育3天,确保孔板完全干燥。
- 在接种细胞前,于细胞培养操作台中对孔板进行30分钟的紫外灭菌。长期储存时应将孔板放入密封严实的自封袋中,并在使用前重新灭菌。
3. 二维细胞培养规划
- 安排实验时间,使PANC-1细胞在HPaSteC细胞达到90%汇合度的当天处于70%–80%的汇合状态。
注意:若将含有约100万个PANC-1或HPaSteC细胞的冻存管于同一天从液氮中复苏,在存在一定差异的情况下,通常需要PANC-1培养8天,HPaSteC培养6–7天,才能使两种细胞系在同一天达到可用状态。
4. 三维培养生长
- 开始操作前,请参考图1中整个流程的概述。
注意:PANC-1 和 HPaSteC 均来源于生物材料。操作 PANC-1(癌细胞系)时需格外小心。 - 胰酶消化与细胞计数
- 对 PANC-1 细胞进行胰酶消化并计数:
- 弃去上清液,并用 9 mL HBSS 分三次(每次 3 mL)洗涤 PANC-1 细胞。在生物安全柜中将使用过的试剂弃入含 20–25% V/V 次氯酸钠溶液的废液容器中,以确保所有活细胞或可存活材料被彻底灭活。
- 用 2 mL 胰酶消化细胞。约 10 分钟后(可能需要更长时间),待所有细胞脱落,加入 10 mL DMEM + 10% FBS 中和消化液。先加入 3 mL,随后进行 7 次洗涤,每次 1 mL,以最大程度回收胰酶消化后的细胞。
- 将每次中和后的细胞悬液合并至同一个 15 mL 离心管中。最终体积约为 12 mL(约 2 mL 胰酶被 10 mL 培养基中和)。
- 将中和后的细胞悬液在 700 × g 条件下离心 2 分 30 秒。弃去上清液,将沉淀重悬于 1 mL DMEM + 10% FBS 中。取部分悬液用于细胞计数,并将此步骤获得的数值标记为“计数 A”。
- 对 HPaSteC 细胞进行胰酶消化并计数。
- 弃去上清液,并用 9 mL HBSS 分三次(每次 3 mL)洗涤 HPaSteC 细胞。
- 用 2 mL 胰酶消化细胞。约 10 分钟后,待所有细胞脱落,加入 10 mL 胰酶中和液进行中和。先加入 3 mL,随后进行 7 次洗涤,每次 1 mL,以最大程度回收胰酶消化后的细胞。
- 将每次中和后的细胞悬液合并至同一个 15 mL 离心管中。最终体积约为 12 mL(约 2 mL 胰酶被 10 mL 中和液中和)。
- 将中和后的细胞悬液在 700 × g 条件下离心 2 分 30 秒。弃去上清液,将沉淀重悬于 1 mL 添加了补充成分的星状细胞培养基中。取部分悬液用于细胞计数,并将此步骤获得的数值标记为“计数 B”。
- 对 PANC-1 细胞进行胰酶消化并计数:
- 稀释初始细胞悬液
- 在获得计数 A 和计数 B 后,或在完成 PANC-1 和 HPaSteC 的胰酶消化与中和后,可根据需要暂停此步骤(不超过 0.5 小时)。未使用的培养基应保持在 37 °C,细胞悬液则置于室温(RT;25 ± 2 °C)。
- 根据先前获得的计数 A 和计数 B,分别取适量细胞悬液并进行稀释(置于不同离心管中),使最终体积为 1 mL(稀释液:两种细胞均使用 DMEM + 10% FBS),每种细胞的最终数量在 110,000–140,000 个之间。完成稀释后,验证每种稀释液的细胞数量,分别记为计数 C(PANC-1)和计数 D(HPaSteC)。
- 在获得计数 C 和计数 D 后,可根据需要暂停此步骤(不超过 15–30 分钟)。一旦完成第 4.3.3.2 步的最终稀释,不得再中断实验,以避免细胞沉降。未使用的培养基保持在 37 °C,细胞悬液保持在室温(25 ± 2 °C)。
- 每孔所需最终细胞数量按 HPaSteC : PANC-1 = 60 : 120 设置。计算时使用 110 孔以预留余量。以每孔 100 µL 细胞悬液为基础(总悬液体积为 11 mL,对应 110 孔,细胞比例为 HPaSteC : PANC-1 = 60 : 120)。为便于混匀,将该悬液配制于无菌的 50 mL 离心管中。
- 根据计数 C 和计数 D,向 DMEM + 10% FBS 溶液中加入足量细胞悬液,使最终体积为 11 mL,细胞比例为 HPaSteC : PANC-1 = 60 : 120(即 11 mL 中含 6,600 个 HPaSteC 细胞和 13,200 个 PANC-1 细胞)。使用 1 mL 移液器通过搅拌和反复吹打充分混匀溶液。避免产生气泡。
- 接种
- 使用 200 µL 或 100 µL 移液器,在每孔加入 100 µL 悬液前,均需轻轻混匀最终细胞悬液(通过移动移液枪头并反复吹打进行搅拌)。将 100 µL 悬液沿孔壁角落轻柔加入。
- 除非枪头脱落,否则可在多个孔之间重复使用同一枪头。在加入每孔悬液之间来回吹打并默数 10 或 15 次(非秒数),适用于前半部分(约前 43 孔)。由于后半部分(剩余 43 孔)悬液体积减少,每孔之间的吹打次数可降低至 5–10 次。
- 请勿使用重复移液器,因为疏水性的聚HEMA涂层会导致悬液从孔板表面弹开,造成分布不均。
- 所有孔加样完成后,弃去多余的细胞悬液。
- 使用 200 µL 或 100 µL 移液器,在每孔加入 100 µL 悬液前,均需轻轻混匀最终细胞悬液(通过移动移液枪头并反复吹打进行搅拌)。将 100 µL 悬液沿孔壁角落轻柔加入。
- 离心
- 将含有细胞悬液的最终孔板进行离心,使所有细胞聚集形成沉淀。小心地用封口膜沿孔板边缘包裹,防止此过程中污染。封膜后,将孔板与配平物一起在 1000 × g 条件下离心 2 分钟。
- 将孔板移回细胞培养生物安全柜(操作时佩戴经乙醇喷洒的手套),去除封口膜,并将孔板置于 37 °C、5% CO2 的培养箱中。切勿在任何阶段使用乙醇-水混合液喷洒孔板。
- 培养维护
- 第 3 天起,在 4x–5x 放大倍数的光学显微镜下观察细胞聚集形成类球体的情况。按照以下描述进行培养维护。
- 第 3 天,量取 5–6 mL DMEM + 10% FBS,沿孔壁向每孔加入 50 µL。
- 加样过程中不得搅动或震荡培养基,以免损伤类球体或导致其意外脱落。每孔最终体积约为 150 µL。
- 第 3 天之后,参考图2,熟悉孔的结构以及培养基表面可见的光反射区域(位于孔的圆柱段与弧形段交界处),该区域称为“晕环”(halo)。操作时应谨慎靠近晕环,确保类球体不受损伤。
- 第 6 天,量取 10–11 mL DMEM + 10% FBS。使用 1 mL 移液器从多个孔中批量吸出培养基,吸至晕环处为止。对整块孔板完成此操作后,进行培养基更换。可批量收集上清液后弃去,或在吸出时直接弃去。
- 通过沿每孔孔壁加入 100 µL 新鲜培养基来替换已弃去的培养基。每孔最终体积约为 200 µL。
- 切勿将培养基吸出超过晕环范围,否则可能意外吸出类球体。
- 第 10/11 天,量取 10–11 mL DMEM + 10% FBS。使用 1 mL 移液器从多个孔中批量吸出培养基,吸至晕环处为止。对整块孔板完成此操作后,进行培养基更换。可批量收集上清液后弃去,或在吸出时直接弃去。
- 通过沿每孔孔壁加入 100 µL 新鲜培养基来替换已弃去的培养基。每孔最终体积约为 200 µL。
- 第 3 天,量取 5–6 mL DMEM + 10% FBS,沿孔壁向每孔加入 50 µL。
- 第 3 天起,在 4x–5x 放大倍数的光学显微镜下观察细胞聚集形成类球体的情况。按照以下描述进行培养维护。
- 最终日评估
- 第 14 天对类球体进行药物处理。处理前使用倒置明场显微镜在 4x 物镜下拍摄类球体图像,以确定其初始体积。使用以下公式计算体积(V):
V = 0.5 × L × W2 - 上述公式用于计算类球体体积。其中 L 为长轴长度,W 为宽度(垂直于长轴的最长直线)。将原始单位从微米转换为毫米,以获得立方毫米为单位的体积。
- 由于蒸发作用,第 14 天每孔的起始体积在 150–200 µL 之间。进行药物处理时,从每孔吸出培养基至晕环处,然后加入 100 µL 浓度为 2x 的药物溶液,并进行轻柔混匀(每孔之间轻柔吹打并默数 2 次)。
- 使用 2x 浓度的药物溶液,可使最终药物浓度为 1x,同时避免完全移除旧培养基而扰动类球体。类球体应在该时间点后 3 天内使用。
- 第 14 天对类球体进行药物处理。处理前使用倒置明场显微镜在 4x 物镜下拍摄类球体图像,以确定其初始体积。使用以下公式计算体积(V):
- 类球体收集
- 在收集前,按照步骤 4.7.2 所述方法测量类球体体积。
- 根据实验需求,在第 14 天或第 17 天收集类球体,方法为将每孔培养基吸出至晕环处。
- 使用 1 mL 移液器吸出培养基,并将上清液收集至 15 mL 圆锥形离心管中(来自多个孔)。
- 当所有孔的培养基均降至晕环水平后,将 1 mL 移液器的设定体积调至 200–300 µL。
- 将孔板置于生物安全柜背景或深色背景(如试管架)前,以便观察沉降在孔底的类球体。
- 将移液枪头轻轻插入类球体附近(深入晕环以下),反复吹打少量培养基(例如目测约 50 µL),以扰动类球体。切勿将枪头直接对准类球体上方,以免破坏其结构。
- 此步骤中切勿将孔内所有培养基完全吸出。应牢固控制移液器活塞的拇指操作。
- 持续移动培养基,直至类球体不再居中并可在背景中观察到移动。吸入足够体积的液体以吸取类球体,并将其转移至目标位置(例如,将其与其他同组处理的类球体合并至同一孔中)。
- 废弃物处理
- 所有液体样品应按照各实验室环境与健康安全部门的规程,用次氯酸钠中和后弃去。所有使用过的移液器和培养瓶应与生物危害废物一同高压灭菌后丢弃。

图1:三维促结缔组织增生性胰腺癌类球体培养流程概览(使用 BioRender 生成)。该图概述了基本操作流程,包括细胞胰酶消化、根据初始细胞计数制备稀释的细胞悬液、利用稀释后的细胞悬液制备共培养体系、将细胞悬液加入各孔、孵育培养物、进行培养基维护,以及预期在第14天形成最终的类球体。请点击此处查看该图的放大版本。
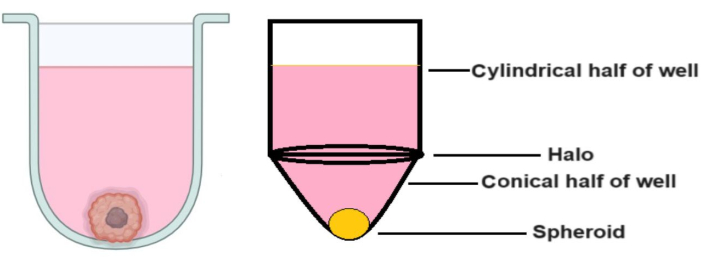
图2:U型底孔板的结构。 右侧图像为夸张绘制的形状,用于展示孔板中的“晕状”区域。该图旨在明确孔板中“晕状”区域的位置,因为在晕状区域上方操作对于类球体的培养以及避免意外丢失至关重要。 请点击此处查看此图的放大版本。
5. 细胞外基质成分的评估与共聚焦显微镜观察
- 根据 Durymanov 等人描述的方案38,采用免疫染色评估细胞外基质(ECM)对药物治疗的反应。
- 将类球体合并在一起,用 100 µL PBS 洗涤两次。置于最佳切割温度(OCT)组织包埋介质中,冷冻后于 -80 °C 保存。
- 将冷冻的肿瘤组织块切成 10 µm 的切片,用丙酮-甲醇(1:1)混合液固定 15 分钟,并在室温下自然干燥。
- 为确定细胞外基质成分,使用兔单克隆抗纤维连接蛋白一抗、兔多克隆抗I型胶原抗体、兔多克隆抗层粘连蛋白抗体以及羊多克隆抗透明质酸抗体对冷冻切片进行免疫染色。
- 二抗选用 Alexa Fluor 488 标记的山羊抗兔 IgG 或 Alexa Fluor 568 标记的驴抗羊 IgG。
注意:一抗和二抗的稀释比例分别为 1:200 和 1:300。 - 使用配备 20x/0.45 物镜的共聚焦激光扫描显微镜获取所有类球体切片的图像。
结果
类球体培养过程中最关键的三个步骤包括初始细胞计数、接种类球体时的混匀操作,以及及时更换培养基以促进类球体生长(图1)。此外,熟悉图2 中关于第3天后培养基更换的说明至关重要,因为每孔的培养基体积增加,需据此进行有效的换液操作。当严格按照所述步骤操作时,类球体(图3)的平均体积可生长至0.048 ± 0.012 mm3 (451 µm × 462.84 µm)(图4)。在某些情况下,细胞生长状态更佳,可能导致第14天时初始平均体积更大,达到0.096 ± 0.014 mm3(611 µm × 560 µm)。类球体初始体积较大的原因可能有多种,例如培养箱的温度和湿度控制良好,或使用了代数较早的细胞,其活力略优于高代数细胞。
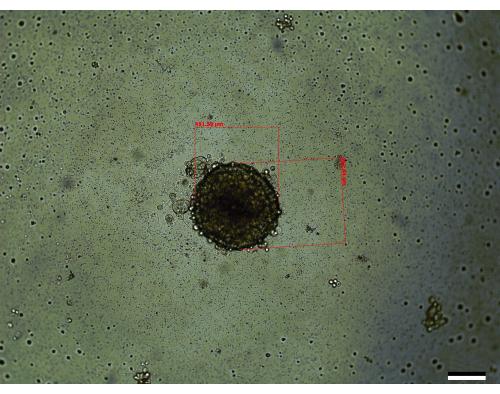
图3:第14天观察到的一个代表性类球体(尺寸:451.59 μm × 462.84 μm)。 比例尺 = 200 µm。每个类球体分别沿其最长轴和最短轴进行测量,并采用方法部分所述公式计算体积。 请点击此处查看该图的放大版本。
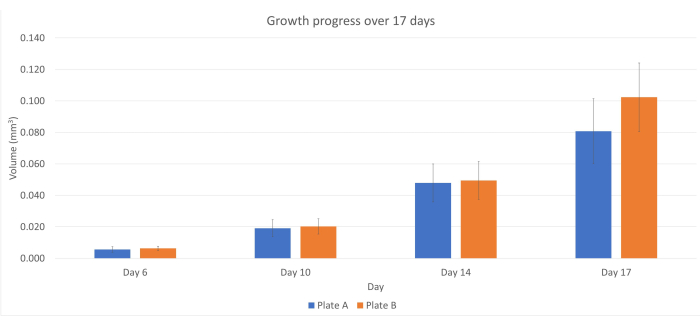
图4:类球体在17天内的生长进程。 1号板和2号板为重复实验。误差线表示标准差。该图可用于大致估算第6、10、14和17天可能观察到的类球体体积。请点击此处查看该图的放大版本。
然而,如果细胞计数不准确、细胞悬液未充分混匀、最终培养物未定期维护,或出现上述错误的组合情况,则可能导致形成较小的类球体或发育不完全的类球体。在初始优化实验中,若仅在第3天向培养板边缘孔中补充培养基,而非整板加液,也会观察到外观相似的类球体(图5)。另外,若细胞混匀不充分,或初始计数/稀释错误导致每孔接种细胞数超过推荐量,则可能出现每孔多个类球体的情况。当PANC-1:HPaSteC细胞以240:120的比例使用时,也观察到了类似现象(图6)。在按照说明书培养类球体时,偶尔也可能出现此情况,但数量较少(例如,96孔中有4孔每孔含有两个类球体而非一个)。当遇到多个类球体的情况时,可选择避免使用含多个类球体的孔,或在处理这些类球体时记录体积变化。若换液操作不当,移液器吸头深入至光环下方(图1),也可能导致类球体意外丢失。
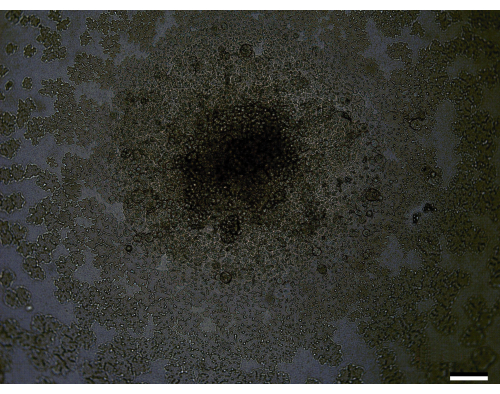
图 5:第14天生长不良的类球体代表性图像。 比例尺 = 200 µm。在此图像中,细胞未能良好聚集,因此难以测量类球体的长度和宽度。请点击此处查看该图的放大版本。
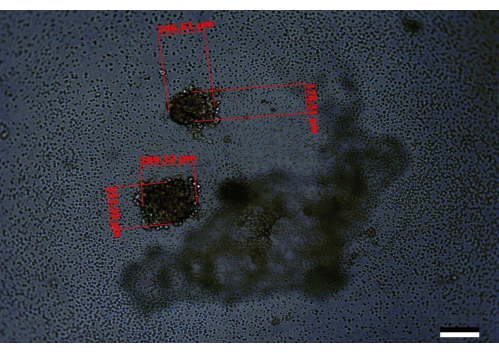
图6:第14天观察到的一个含有两个生长不良类球体的培养孔的代表性图像。 比例尺 = 200 µm。此处,一个类球体的大小为246.61 µm × 178.31 µm,另一个为289.13 µm × 252.35 µm。此例中,可能是初始稀释操作或用于启动实验的细胞质量存在问题。请点击此处查看该图的放大版本。
这些类球体还能形成包含四种主要细胞外基质成分的细胞外基质:I型胶原、层粘连蛋白、透明质酸和纤连蛋白。本实验室此前发表的研究表明,与单独培养PANC-1细胞相比,共培养具有优势,表现为同源PANC-1类球体中胶原分布弥散、无纤连蛋白,且透明质酸沉积较少。

图7:未处理类球体在第17天观察到的四种主要细胞外基质成分的代表性图像:胶原蛋白I、层粘连蛋白、透明质酸和纤连蛋白。 这些图像来自类球体冷冻切片免疫染色后的结果。图像亮度已统一增强,以帮助突出显示外观差异。在进行强度测量时,必须对组织受损或缺失的区域进行校正。比例尺 = 100 µm。 请点击此处查看该图的放大版本。
讨论
用于培养类球体的持续时间及细胞比例是基于先前报道的研究结果确定的38。在尝试通过用NIH3T3细胞替代HPaSteC细胞来优化这些研究时,发现当PANC-1与HPaSteC的细胞比例为120:60时,类球体的体积和凋亡模式与已报道的优化参数(PANC-1: NIH3T3 = 120:12)非常相似。尽管这些研究仅检测至第14天的凋亡情况,但本方案中所述的实验流程仍持续使用类球体至第17天,因为在第14天至第17天之间未观察到碎片形成的明显增加。作为对照,所有在第17天评估的类球体均始终包含未经处理的对照组,以作为类球体体积和凋亡自然增长的基线参考。
接种和培养球状体的过程包含三个关键步骤:准确计数、加细胞前的充分混匀以及培养过程中的维护。由于该过程依赖于使用少量的PANC-1和HPaSteC细胞,因此准确的细胞计数和正确的稀释倍数至关重要。这一点对于HPaSteC细胞尤为关键,因为这些细胞比PANC-1细胞更小,容易低估细胞数量。因此,必须仔细进行细胞计数。低估细胞数量会导致形成多个球状体,而高估则可能导致球状体结构发育不良。
在所有步骤中充分混匀悬浮液也至关重要。预先考虑到细胞可能会发生沉降,有助于避免混匀不足,并确保细胞分布均匀。当为多个培养板(例如两个板)制备类球体时,建议在每个孔之间进行至少20次来回吹打(步骤4.4.1)。当第一个板完成一半时,可减少至15次,开始第二个板时减少至10次,当接近第二个板的后半段时进一步减少至5次。在进行来回吹打的同时,用移液枪沿平行方向做搅拌动作,有助于提高混匀程度。可以考虑在制备两个板时安排第二位人员协助,以提高操作速度和混匀效率。在此情况下,两人可同时在生物安全柜内操作,各自使用独立的细胞悬液和培养板,并分别位于安全柜的对角区域进行工作。
维持细胞培养对于确保类球体始终获得充足的营养供应至关重要。在第3天和第6天添加培养基补充物尤为关键,因为此时细胞正处于生长阶段,需要充分的营养供给。第6天以及第10/11天的换液操作也可能较为困难,因为需要收集部分上清液以去除旧的培养基。此步骤必须谨慎进行,应轻轻吸出培养基,直至到达"晕圈"处,切勿超过该范围。这样做有助于避免因吸液位置过于接近类球体而导致培养基被过度抽吸,从而防止在换液过程中意外丢失类球体。
该方法具有显著优势,即易于重复,且无需使用任何模具或支架材料,而此前引用的方法则需要32,34,35,36,37,39。此外,所用培养基为标准细胞培养基,成本相对较低,相比之下,EGM-2培养基39、星状细胞培养基混合物以及DMEM-FBS35或根据细胞类型选用的上述任一培养基则更为昂贵34。这一优势在不同实验室之间的可重复性以及实验建立的便捷性方面尤为关键。该过程还可扩展至多块培养板,但可能需要每两块培养板配备一名操作人员。所形成的类球体结构稳定,因而可在搅拌条件下进行评估。此步骤在涉及类球体的细胞药代动力学或药物释放与吸收研究中尤为有用。
尽管该方法具有诸多优势,但其局限性在于接种步骤中需要进行非常彻底的混合,这可能耗时较长且体力消耗较大。一种可能的解决方案是使用经过充分灭菌的磁力搅拌子,以在接种过程中维持持续搅拌的条件。收集球状体的过程也较为困难,需要一定的操作经验。此外,球状体需要一定时间生长,因此必须仔细规划,以确保人员和培养基更换所需物资的及时供应。
综上所述,已开发出一种简单且可重复的方法,用于生成具有临床相关性的富含间质的三维球状体。这些球状体结构稳定,能够产生细胞外基质成分:I型胶原蛋白、层粘连蛋白、透明质酸和纤连蛋白。生成这些球状体的过程简便,具有独特优势,即易于重复并易于适应变化,例如引入第三种细胞系。该模型的另一独特优势在于其对治疗具有抗性40。这有助于提高其临床相关性,并确保只有最有效的药物才能被筛选出来,用于胰腺癌的治疗。此外,这些球状体可被收集并移植到小鼠体内,以形成可重复的富含间质的肿瘤,用于体内分析38,也可用于检测不同大小纳米颗粒的穿透能力44,如前所述。
披露
作者无任何利益冲突需要披露。
致谢
本研究所述工作得到了南达科他州州长经济发展办公室、南达科他州校董会竞争性研究资助计划(SD-BOR-CRGP)以及南达科他州立大学药学科学系的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Axio Observer 倒置显微镜 | 卡尔·蔡司 | 0450-354 | |
| Cellometer Auto T4 | Nexcelom Bioscience LLC | Auto-T4 | |
| DMEM,粉末,高糖 | Gibco | 12100046 | |
| 与Alexa Fluor 568偶联的驴抗羊抗体 | Abcam | ab175712 | |
| 胎牛血清 | Cytiva | SH3091003HI | |
| Alexa Fluor 488 标记的山羊抗兔 IgG | Abcam | ab150077 | |
| Hanks平衡盐溶液(HBSS) | Gibco | 14175145 | |
| 人胰腺星状细胞(HPaSteC) | ScienCell | 3830 | |
| 尼康显微镜 | 尼康 | Eclipse Ts 100 | |
| Nunc 96孔聚苯乙烯圆底微量培养板 | 赛默飞世尔科技 | 12-565-331 | |
| 奥林巴斯Fluoview FV1200共聚焦激光显微镜 | Olympus | N/A | 已停产产品 |
| PANC-1 | ATCC | CRL-1469 | |
| 聚羟基乙酸酯 | Sigma | P3932 | |
| 兔多克隆抗层粘连蛋白抗体 | Abcam | ab11575 | |
| 兔多克隆I型胶原抗体 | Abcam | ab34710 | |
| 羊多克隆抗透明质酸抗体 | Abcam | ab53842 | |
| 星状细胞完全培养基套装 | ScienCell | 5301 | |
| 胰蛋白酶 | MP Biomedicals, LLC | 153571 | 根据制造商方案配制的胰蛋白酶溶液,使用浓度为0.25%(w/v) |
| 胰蛋白酶中和液(TNS) | ScienCell | 103 |
参考文献
- Hingorani, S. R. Epithelial and stromal co-evolution and complicity in pancreatic cancer. Nat Rev Cancer. 23 (2), 57-77 (2023).
- Laklai, H., et al. Genotype tunes pancreatic ductal adenocarcinoma tissue tension to induce matricellular fibrosis and tumor progression. Nat Med. 22 (5), 497-505 (2016).
- Binker, M. G., Binker-Cosen, M. J., Binker-Cosen, A. A., Cosen-Binker, L. I. Microenvironmental factors and extracellular matrix degradation in pancreatic cancer. J Pancreas. 15 (4), 280-285 (2014).
- Spano, D., Zollo, M. Tumor microenvironment: a main actor in the metastasis process. Clin Exp Metastasis. 29 (4), 381-395 (2012).
- Ware, M. J., et al. Generation of an in vitro 3D PDAC stroma rich spheroid model. Biomaterials. 108, 129-142 (2016).
- Sunami, Y., Häußler, J., Kleeff, J. Cellular heterogeneity of pancreatic stellate cells, mesenchymal stem cells, and cancer-associated fibroblasts in pancreatic cancer. Cancers. 12 (12), 3770(2020).
- Öhlund, D., et al. Distinct populations of inflammatory fibroblasts and myofibroblasts in pancreatic cancer. J Exp Med. 214 (3), 579-596 (2017).
- Pandol, S., Edderkaoui, M., Gukovsky, I., Lugea, A., Gukovskaya, A. Desmoplasia of pancreatic ductal adenocarcinoma. Clin Gastroenterol Hepatol. 7 (11), S44-S47 (2009).
- Watanabe, I., et al. Advanced pancreatic ductal cancer: fibrotic focus and β-catenin expression correlate with outcome. Pancreas. 26 (4), 326-333 (2003).
- Hu, G., et al. Tumor-infiltrating podoplanin+ fibroblasts predict worse outcome in solid tumors. Cell Physiol Biochem. 51 (3), 1041-1050 (2018).
- Kapałczyńska, M., et al. 2D and 3D cell cultures-a comparison of different types of cancer cell cultures. Arch Med Sci. 14 (4), 910-919 (2018).
- Monberg, M. E., et al. Occult polyclonality of preclinical pancreatic cancer models drives in vitro evolution. Nat Commun. 13 (1), 3652(2022).
- Emerman, J. T., Pitelka, D. R. Maintenance and induction of morphological differentiation in dissociated mammary epithelium on floating collagen membranes. In Vitro. 13 (5), 316-328 (1977).
- Kelm, J. M., Timmins, N. E., Brown, C. J., Fussenegger, M., Nielsen, L. K. Method for generation of homogeneous multicellular tumor spheroids applicable to a wide variety of cell types. Biotechnol Bioeng. 83 (2), 173-180 (2003).
- Kikuta, K., et al. Pancreatic stellate cells promote epithelial-mesenchymal transition in pancreatic cancer cells. Biochem Biophys Res Commun. 403 (3-4), 380-384 (2010).
- Lee, J. -H., et al. Microfluidic co-culture of pancreatic tumor spheroids with stellate cells as a novel 3D model for investigation of stroma-mediated cell motility and drug resistance. J Exp Clin Cancer Res. 37 (1), 4(2018).
- Wong, C. -W., Han, H. -W., Tien, Y. -W., Hsu, S. -H. Biomaterial substrate-derived compact cellular spheroids mimicking the behavior of pancreatic cancer and microenvironment. Biomaterials. 213, 119202(2019).
- Liu, X., et al. 3D heterospecies spheroids of pancreatic stroma and cancer cells demonstrate key phenotypes of pancreatic ductal adenocarcinoma. Transl Oncol. 14 (7), 101107(2021).
- Vonlaufen, A., et al. Pancreatic stellate cells: partners in crime with pancreatic cancer cells. Cancer Res. 68 (7), 2085-2093 (2008).
- Bachem, M. G., et al. Pancreatic carcinoma cells induce fibrosis by stimulating proliferation and matrix synthesis of stellate cells. Gastroenterology. 128 (4), 907-921 (2005).
- Greco, E., et al. Pancreatic cancer cells invasiveness is mainly affected by interleukin-1β not by transforming growth factor-β1. Int J Biol Markers. 20 (4), 235-241 (2005).
- Arao, S., Masumoto, A., Otsuki, M. β1 integrins play an essential role in adhesion and invasion of pancreatic carcinoma cells. Pancreas. 20 (2), 129-137 (2000).
- Sawai, H., Yamamoto, M., Okada, Y., Sato, M., Akamo, Y., Takeyama, H., Manabe, T. Alteration of integrins by Interleukin-1alpha in human pancreatic cancer cells. Pancreas. 23 (4), 399-405 (2001).
- Chen, J., et al. Expression and function of the epidermal growth factor receptor in physiology and disease. Physiol Rev. 96 (3), 1025-1069 (2016).
- Deer, E. L., et al. Phenotype and genotype of pancreatic cancer cell lines. Pancreas. 39 (4), 425(2010).
- Stahle, M., et al. Mechanisms in LPA-induced tumor cell migration: critical role of phosphorylated ERK. J Cell Sci. 116, Pt 18 3835-3846 (2003).
- Aubert, M., et al. Decrease of human pancreatic cancer cell tumorigenicity by α1, 3galactosyltransferase gene transfer. Int J Cancer. 107 (6), 910-918 (2003).
- Miknyoczki, S. J., Chang, H., Klein-Szanto, A., Dionne, C. A., Ruggeri, B. A. The Trk tyrosine kinase inhibitor CEP-701 (KT-5555) exhibits significant antitumor efficacy in preclinical xenograft modelsof human pancreatic ductal adenocarcinoma. Clin Cancer Res. 5 (8), 2205-2212 (1999).
- Fukasawa, M., Korc, M. Vascular endothelial growth factor-trap suppresses tumorigenicity of multiple pancreatic cancer cell lines. Clin Cancer Res. 10 (10), 3327-3332 (2004).
- Hernández-Camarero, P., et al. Pancreatic (pro) enzymes treatment suppresses BXPC-3 pancreatic Cancer Stem Cell subpopulation and impairs tumour engrafting. Sci Rep. 9 (1), 11359(2019).
- Ware, M. J., et al. Generation of homogenous three-dimensional pancreatic cancer cell spheroids using an improved hanging drop technique. Tissue Eng Part C Methods. 22 (4), 312-321 (2016).
- Longati, P., et al. 3D pancreatic carcinoma spheroids induce a matrix-rich, chemoresistant phenotype offering a better model for drug testing. BMC Cancer. 13, 95(2013).
- Kpeglo, D., et al. Modeling the mechanical stiffness of pancreatic ductal adenocarcinoma. Matrix Biol Plus. 14, 100109(2022).
- Jang, S. -D., et al. Anti-cancer activity profiling of chemotherapeutic agents in 3D co-cultures of pancreatic tumor spheroids with cancer-associated fibroblasts and macrophages. Cancers. 13 (23), 5955(2021).
- Pednekar, K. P., Heinrich, M. A., van Baarlen, J., Prakash, J. Novel 3D µtissues mimicking the fibrotic stroma in pancreatic cancer to study cellular interactions and stroma-modulating therapeutics. Cancers. 13 (19), 5006(2021).
- Kim, S. -K., et al. Phenotypic heterogeneity and plasticity of cancer cell migration in a pancreatic tumor three-dimensional culture model. Cancers. 12 (5), 1305(2020).
- Hwang, H. J., Oh, M. -S., Lee, D. W., Kuh, H. -J. Multiplex quantitative analysis of stroma-mediated cancer cell invasion, matrix remodeling, and drug response in a 3D co-culture model of pancreatic tumor spheroids and stellate cells. J Exp Clin Cancer Res. 38 (1), 258(2019).
- Durymanov, M., et al. Subcutaneous inoculation of 3D pancreatic cancer spheroids results in development of reproducible stroma-rich tumors. Transl Oncol. 12 (1), 180-189 (2019).
- Giustarini, G., Teng, G., Pavesi, A., Adriani, G. Characterization of 3D heterocellular spheroids of pancreatic ductal adenocarcinoma for the study of cell interactions in the tumor immune microenvironment. Front Oncol. 13, 1156769(2023).
- Alseud, K., et al. Synthesis and biological activity of 11-oxygenated and heterocyclic estrone analogs in pancreatic cancer monolayers and 3D spheroids. Bioorg Med Chem. , (2024).
- Fitzgerald, A. A., et al. Fibroblast activation protein regulates natural killer cell migration, extravasation and tumor infiltration. bioRxiv. , 429622(2021).
- Wishart, G., Gupta, P., Schettino, G., Nisbet, A., Velliou, E. 3D tissue models as tools for radiotherapy screening for pancreatic cancer. Br J Radiol. 94 (1120), 20201397(2021).
- Peirsman, A., et al. MISpheroID: a knowledgebase and transparency tool for minimum information in spheroid identity. Nat Methods. 18 (11), 1294-1303 (2021).
- Durymanov, M., Kroll, C., Permyakova, A., Reineke, J. Role of endocytosis in nanoparticle penetration of 3D pancreatic cancer spheroids. Mol Pharm. 16 (3), 1074-1082 (2019).
重印与许可
