细菌会定植于氧气和铁生物可利用性各异的宿主组织中,然而目前大多数研究细菌的方法均采用通气充足、营养丰富的培养基。本方案描述了培养人类病原菌的方法 假结核耶尔森菌 在不同铁浓度和氧张力条件下,测定其活性 耶尔森菌 III型分泌系统,是一种重要的毒力因子。
本文内容
摘要
摘要
许多革兰氏阴性病原体的关键毒力机制是III型分泌系统(T3SS),这是一种针状附属结构,可将细胞毒性或免疫调节效应蛋白转运至宿主细胞内。由于T3SS暴露于胞外环境,且在非致病菌中基本不存在,因此成为抗菌药物研发的重要靶点。近期研究表明,Yersinia 和 Salmonella 的T3SS受到对铁和氧响应的因子调控,而铁和氧是在哺乳动物感染过程中所遇到的重要微环境特异性信号。本文描述了一种对 Yersinia pseudotuberculosis 进行铁饥饿处理的方法,并可选择性地补充无机铁。为评估氧气可利用性的影响,该铁饥饿过程在有氧和无氧条件下均进行了演示。最后,将菌液在哺乳动物宿主体温37 °C下培养,以诱导T3SS表达,并通过检测分泌至培养上清中的效应蛋白来定量分析 Yersinia T3SS的活性。该方法相较于仅使用铁螯合剂而不进行铁饥饿处理具有优势,因为后者不足以有效诱导强烈的铁饥饿状态,推测是由于 Yersinia 具有高效的铁摄取与 scavenging 系统。此外,本文详细说明了实验室玻璃器皿的酸洗步骤,以彻底去除残留铁,这对于实现充分的铁饥饿至关重要。同时,还介绍了使用螯合剂去除培养基中残余铁的方法,以及在无铁条件下连续传代培养细菌以耗尽其体内铁储备的操作。通过结合三氯乙酸诱导的蛋白沉淀、SDS-PAGE 和银染等标准实验流程,本方法展示了检测T3SS活性的可行手段。尽管该方案针对 Y. pseudotuberculosis 优化,但也可为具有类似高效铁摄取系统的其他病原体研究提供通用框架。在抗生素耐药性日益严峻的时代,这些方法可进一步拓展用于评估靶向T3SS的抗菌化合物在模拟宿主条件下的有效性。
引言
许多具有重要临床意义的革兰氏阴性病原体,如 耶尔森菌, 弧菌属,埃希氏菌属, 假单胞菌属 和 志贺氏菌 编码 III型分泌系统(T3SS)将效应蛋白注入宿主细胞1在许多细菌物种中,III 型分泌系统(T3SS)受到严格的调控控制。2例如,易位的 耶尔森菌 将T3SS效应蛋白注入靶标宿主细胞对于破坏宿主防御机制以及实现细菌在宿主组织中的定植至关重要。然而 耶尔森菌 T3SS 活性具有较高的代谢负担,并可触发宿主免疫受体的识别3因此,能够感知特定环境信号的调控因子控制着多种细菌中Ⅲ型分泌系统(T3SS)基因的表达。例如病原菌 耶尔森菌 在感染周期中,细菌病原体会经历影响关键毒力因子表达的环境变化,因此有必要建立能够模拟细菌病原体所占据宿主微环境显著特征的实验室条件。具体而言,氧张力和铁的可利用性在不同组织部位以时空特异性的方式存在差异,并影响毒力基因(如Ⅲ型分泌系统,T3SS)的表达。4,5,6因此,本方法的目的是评估氧气和铁对基因表达的影响 耶尔森菌 T3SS。这将有助于深入了解宿主与病原体相互作用的动态过程。
本文所述方法详细介绍了如何在有氧和无氧条件下培养Yersinia pseudotuberculosis,以及如何在有氧或无氧生长过程中耗尽Yersinia的铁储备。在这些不同条件下成功培养细菌时,有几个关键因素需要特别注意。首先,无氧培养需要额外补充葡萄糖,这一修改已在培养基配方中注明。其次,由于Y. pseudotuberculosis具有铁载体及其他铁摄取系统,能够高效地从环境中获取铁,因此必须特别注意确保培养基和实验玻璃器皿尽可能不含铁7。以往研究曾使用如二吡啶等铁螯合剂从富含营养的培养基中去除铁,以模拟铁饥饿状态8,9。然而,要真正耗尽Yersinia体内的铁储备以诱导铁饥饿,还需清除玻璃器皿和培养基中的残留铁,并在无铁条件下进行多代培养。本实验方案详细说明了如何通过酸洗玻璃器皿和螯合培养基以去除残留铁,同时通过多代培养确保实现充分的铁饥饿。可通过检测已知铁响应基因在不同条件下的相对转录水平来验证铁饥饿是否成功,本文以yfeA和bfd为例进行了演示。
本实验方案的最终步骤展示了如何通过三氯乙酸(TCA)处理培养上清液,从上述每种条件下沉淀分泌的T3SS效应蛋白,并通过SDS-PAGE可视化分泌蛋白。最后,通过银染检测分泌蛋白并定量T3SS效应蛋白的相对水平,以评估相对T3SS活性,这些效应蛋白被称为Yersinia外膜蛋白(Yops)10。
III型分泌系统(T3SS)活性检测通常利用特异性抗体来检测培养上清液中T3SS效应蛋白的水平。然而,针对T3SS效应蛋白的Western印迹抗体往往无法商业化获得。因此,本方法在最终可视化T3SS活性时特别避免了对特异性抗体的依赖,转而采用银染技术,从而实现对所有分泌蛋白的可视化检测。尽管该方法是针对Y. pseudotuberculosis专门设计和优化的,但也可适用于其他细菌种类,只是具体的培养基条件和孵育时间会有所不同。
方案
试剂、培养基成分、引物序列和设备的详细信息见材料表。图1展示了整体实验流程。
1. 酸洗玻璃器皿和螯合M9培养基的制备
注意:在开始之前,请参考材料部分以获取将使用的精确试剂和配方。M9 培养基首次用于 Cheng 等人11中的 Yersinia T3SS 检测。
- 将 100 mL 的 6 N HCl 倒入 250 mL 玻璃烧瓶中。
注意:HCl 具有极高危险性;操作该物质时务必采取适当的防护措施。 - 用玻璃塞密封玻璃容器瓶口,轻轻旋转摇动烧瓶 1 分钟,使 HCl 充分分布,期间偶尔改变摇动方向。
- 妥善处理 6 N HCl 溶液。
- 通过向玻璃容器中加入 100 mL 去离子 H2O,密封瓶口,振荡 20 秒,然后倒掉水,对容器进行冲洗。
- 重复冲洗步骤,共进行 3 次。
- 让其自然风干。通过高压灭菌进行灭菌处理。
- 为制备螯合培养基,将 M9 成分与螯合试剂混合,在室温下用磁力搅拌子搅拌约 18 小时。过滤灭菌后,加入 MgSO4 至终浓度为 1 mM。
2. 在不同铁浓度和氧张力条件下培养假结核耶尔森菌(Y. pseudotuberculosis)
- 划线 Y. pseudotuberculosis (本研究使用菌株 IP2666pIB1)在LB(Lysogeny Broth)琼脂平板上划线,于室温下培养。
注意:孵育 耶尔森菌 在37 °C、尤其是低钙培养基中,会导致T3SS活性、生长停滞,并最终选择性地造成质粒丢失 耶尔森菌 vi毒力(pYV),编码III型分泌系统(T3SS)12因此,本方案采用26 °C培养 耶尔森菌 直到需要测量T3SS活性时。 - 48 小时后,待可见菌落形成,接种于 4 mL 含 0.2% 葡萄糖和 1 mg/L FeSO₄ 的 M9 培养基中4.7H2O,并添加酪蛋白氨基酸(以下简称M9培养基),从单个分离菌落接种后,在26 °C、250 rpm振荡通气条件下过夜培养约18 h。
注意:从以下步骤开始及后续操作,均需使用经酸洗的玻璃器皿。 - 按照以下步骤将菌种转接到螯合的M9培养基中。
注意:后续所有步骤均使用含0.9%葡萄糖的M9培养基,而非标准的含0.2%葡萄糖的M9培养基。- 使用分光光度计测量光密度(OD600过夜培养物的)
- 将过夜培养物稀释至 OD600 0.1,总体积为14 mL的无菌螯合M9培养基,含0.9%葡萄糖且不含FeSO4.7H2在250 mL酸洗过的烧瓶中,不添加铁。
- 26 °C、250 rpm 条件下振荡培养 8 小时。
- 平行接种至需氧和厌氧培养体系中进行传代培养。
- 测量 OD600 培养物的生长情况。
- 为持续进行有氧培养,将生长中的培养物传代至 OD600 0.1,溶于14 mL无菌螯合M9培养基中,含0.9%葡萄糖且不含FeSO4.7H2在250 mL经酸洗的烧瓶中,于26 °C有氧培养12 h,不添加铁。
- 对于厌氧培养,转接至 OD600 在14 mL无菌螯合M9培养基中加入0.1的值,分装至两支酸洗过的玻璃管中。向第一支试管中加入经滤膜除菌(使用0.22 µm聚醚砜膜)的FeSO4.7H2O,终浓度为 1 mg/L(称为 "高铁")。在第二个试管中,加入 FeSO4.7H2O,终浓度为 0.01 mg/L(以下简称 "低铁")。这可以通过使用 10 mg/mL FeSO4.7H2O 储备液。将两个试管置于厌氧箱中,室温下厌氧孵育 12 小时。
注意:1 mg/L FeSO4.7H2O提供铁充足条件以实现稳健生长 耶尔森菌 生长。相反,仅添加0.01 mg/L FeSO4.7H2在厌氧条件下培养时,提供O可确保细菌在厌氧环境中充分生长,同时仍能诱导铁饥饿反应;而需氧培养则在不添加任何铁的情况下培养12小时,以在激活III型分泌系统(T3SS)活性之前诱导铁饥饿反应。
- 诱导III型分泌系统活性。
- 将厌氧培养物转移至37 °C,继续厌氧培养4小时以诱导T3SS表达。
- 测量 OD600 好氧培养物的
- 将好氧培养的菌液分别接种到两个经酸洗的锥形瓶中,使菌液浓度达到 OD600 0.2 的值加入到 14 mL 无菌螯合 M9 培养基中。向第一个烧瓶中加入经滤膜除菌的 FeSO4.7H2O,使其终浓度为1 mg/L。向第二个烧瓶中加入FeSO4.7H2O,使其终浓度为0.01 mg/L。将两个烧瓶在26 °C、250 rpm条件下有氧振荡培养2 h。
- 2小时后,将需氧培养物转移至37 °C,在250 rpm条件下通气培养,孵育4小时以诱导T3SS。
3. T3SS 效应蛋白的三氯乙酸(TCA)沉淀
- 厌氧培养完成后,测定OD值600 的培养物。
- 将所有厌氧样品归一化以达到相同的细胞质量(参见提供的示例) 表1)。对于厌氧培养,通常预期 OD600 铁饥饿培养物的值约为0.5,铁充足培养物的值约为1。在此情况下,使用6 mL铁饥饿培养物和3 mL铁充足培养物。
注意:剩余的培养物可用于其他用途,例如提取总RNA,并通过定量PCR检测目标mRNA的稳态水平(本文未描述)。 - 将各培养物的标准化体积转移至15 mL离心管中。
- 为控制分泌蛋白沉淀的效率,向每根试管中加入4 µL浓度为0.5 mg/mL的牛血清白蛋白(BSA)。
- 3200 × 转速下的细胞悬滴培养 g 4 °C 下离心 15 分钟。
- 将0.22 µm PVDF滤膜连接至10 mL注射器,过滤每份沉淀培养物的上清液至新的15 mL离心管中。
注意:此过滤步骤可最大限度减少完整细菌细胞的转移,避免样本中混入不需要的胞质蛋白。 - 向每个样品中加入相当于上清液体积10%的6.1 N TCA。
- 剧烈涡旋1分钟。将离心管置于冰上,在4 ˚C冰箱中孵育过夜。
注意:孵育时间可根据需要进行优化。在分泌能力强的条件或菌株中,短至1小时的孵育也可能有效。 - 4小时孵育结束后,对需氧培养物重复进行沉淀收集和三氯乙酸(TCA)沉淀步骤。
注意:通过沉淀具有相等细胞质量的培养物体积来标准化好氧培养物。 - 将每种样品各2 mL加入新的2 mL离心管中,在21,000 x g 4 °C下离心15分钟。
- 使用真空装置吸除上清液,注意不要接触管底或管壁。
注意:沉淀物可能难以观察,可能呈现为沿管壁分布的雾状物。 - 重复步骤 3.10 和 3.11,直至每个沉淀反应中的全部内容物均转移至同一个 2 mL 离心管中。该过程可能需要进行三到四次连续的离心步骤,但可实现将每个样品中分泌的所有蛋白质浓缩至一个 2 mL 离心管中。
- 为清洗沉淀物,轻轻向每支试管中加入1 mL预冷的100%丙酮。为避免样品损失,请勿重悬沉淀,且勿接触试管管壁。
- 以 21,000 x g 离心样品 g 4 °C下离心15分钟。
- 吸去上清液,注意不要接触管底或管壁。
- 重复步骤3.13和3.14的冰冻丙酮洗涤操作。
- 最后一次吸去上清液后,打开离心管,将沉淀在实验台上完全干燥,约需1小时。
- 向每个干燥样品中加入 50 µL FSB:DTT 溶液。为避免蛋白质损失,不要重悬。
- 充分涡旋振荡每个样品1分钟,确保FSB:DTT溶液覆盖整个管壁。可通过使用可同时固定多个管子的涡旋振荡附件来优化此步骤。
- 将样品在95 °C下煮沸15分钟。
- 在室温下以最大速度短暂离心样品30秒。
- -80 °C 保存,以备后续使用。
4. 通过SDS-PAGE和银染法观察T3SS效应蛋白
- 将每种厌氧样品各15 µL和每种好氧样品各10 µL,以及3 µL市售的未染色标准品(作为分子量标记),上样至12.5% SDS-PAGE凝胶中。
- 在100 V电压下电泳约90分钟。具体条件可根据所使用的设备进行调整。
- 按照生产商说明书进行银染染色,所得凝胶如图2所示。
5. 定量相对T3SS活性
- 将凝胶放入成像系统中,确保所有需要进行定量的条带均位于图像范围内。
注:BSA 的分子量约为 66 kDa,而 III 型分泌系统效应蛋白 YopE 的分子量约为 23 kDa。 - 在软件中,选择所有泳道中的 YopE 条带。
- 将参考 YopE 条带设置为适当的样品。
- 导出软件计算得到的所有 YopE 条带的相对定量值。
- 返回软件,选择所有泳道中的 BSA 条带。
- 设置参考 BSA 条带,确保其来自与参考 YopE 条带相同的样品。
- 导出软件计算得到的所有 BSA 条带的相对定量值。
- 为计算相对 YopE 表达水平,将每个样品的 YopE 相对定量值除以相应的 BSA 相对定量值。
结果
该方法可用于在不同实验条件下,相对于特定参考条件对分泌的Yops进行相对比较。整体实验流程如图1所示。Table 1展示了在每种细胞培养条件下进行细胞培养归一化的典型方式,以及添加至各上清液的三氯乙酸(TCA)体积。此处展示的结果以野生型(WT)Y. pseudotuberculosis IP2666pIB1及两个同源突变株ΔyscNU和ΔyopE为代表。其中,ΔyopE突变株作为缺失YopE的对照,而ΔyscNU突变株则作为完全缺乏III型分泌系统(T3SS)功能的阴性对照,因其无法组装出有功能的T3SS13,14。代表性结果如图2所示,为经银染的12.5% SDS-PAGE凝胶图像,其中包含分泌的蛋白质。如上所述,每个样品中均加入了外源BSA,以作为蛋白质沉淀效率的对照。在数据分析时,应将厌氧和需氧条件下的数据集视为独立的数据集,因为二者是分别进行归一化的。在厌氧样品中,低铁条件下YopE的含量约为高铁条件下的38倍,与先前研究结果一致15,16。在需氧样品中,低铁与高铁条件下的分泌YopE量相似,亦与先前研究结果相符16。通常,每种条件至少需进行三次生物学重复实验,以确保统计学显著性。
为了确认该方案能够有效诱导铁饥饿状态,我们在所有条件下对野生型菌株中铁响应基因 yfeA 和 bfd 进行了qPCR分析。YfeA是ABC转运系统中的周质结合蛋白,负责铁的转运;而Bfd是一种与细菌铁蛋白相关的铁氧还蛋白,参与铁储存的动员17,18,19,20。RNA的提取如前所述21,结果如预期所示,在铁耗尽条件下,无论是有氧还是无氧环境,yfeA 和 bfd 的表达均显著高于铁充足条件下的表达水平(见图3)。此外,我们通过qPCR检测了 yopE mRNA的稳态水平,以确认在蛋白水平上观察到的YopE相对表达量变化与 yopE 转录水平一致(见图3)。
最后,由于细菌在应激培养条件下容易发生裂解,因此有必要证明本实验方案中的步骤不会导致细菌裂解,从而避免对实验结果造成干扰。为验证这一点,对经三氯乙酸(TCA)沉淀的上清样品进行蛋白质印迹分析,并使用YopE和RpoA抗体进行杂交检测;其中RpoA是RNA聚合酶的一个亚基,属于胞质蛋白。如图4所示,YopE的表达模式与图3中一致,但在各样品上清中均未检测到RpoA的存在,表明未发生可观察到的细菌裂解,即没有胞质内的RpoA释放到上清液中。
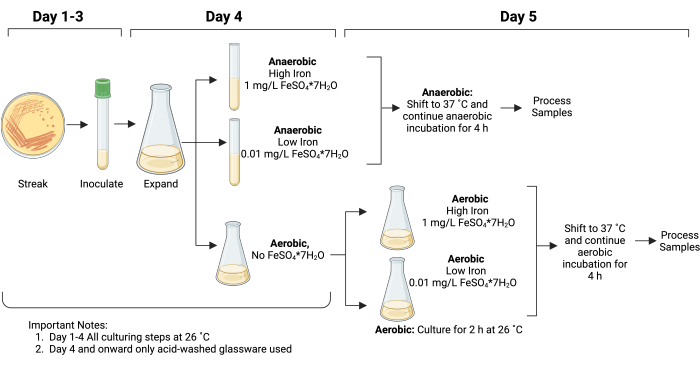
图1:在不同铁和氧可利用条件下培养Yersinia pseudotuberculosis的实验流程。培养步骤的图示。请注意,从第4天开始必须使用酸洗玻璃器皿。请点击此处查看该图的放大版本。
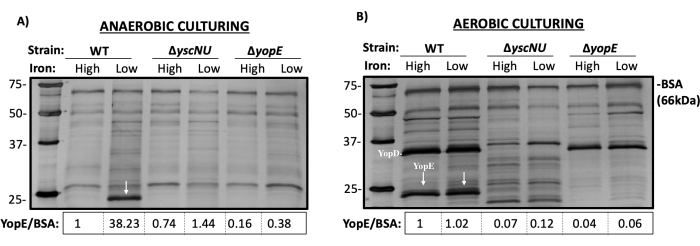
图 2:培养上清液经 TCA 沉淀后蛋白质的 12.5% SDS-PAGE 银染结果。 将沉淀后的培养上清液上样至 12.5% SDS-PAGE 凝胶并进行银染。(A) 野生型(WT)、ΔyscNU 和 ΔyopE 菌株在厌氧条件下生长的分泌谱。YopE 的代表性相对值以厌氧条件下野生型富铁样本为基准进行归一化。(B) 野生型(WT)、ΔyscNU 和 ΔyopE 菌株在需氧条件下生长的分泌谱。YopE 的代表性相对值以需氧条件下野生型富铁样本为基准进行归一化。白色箭头指示 YopE(约 23 kDa)。请点击此处查看该图的放大版本。
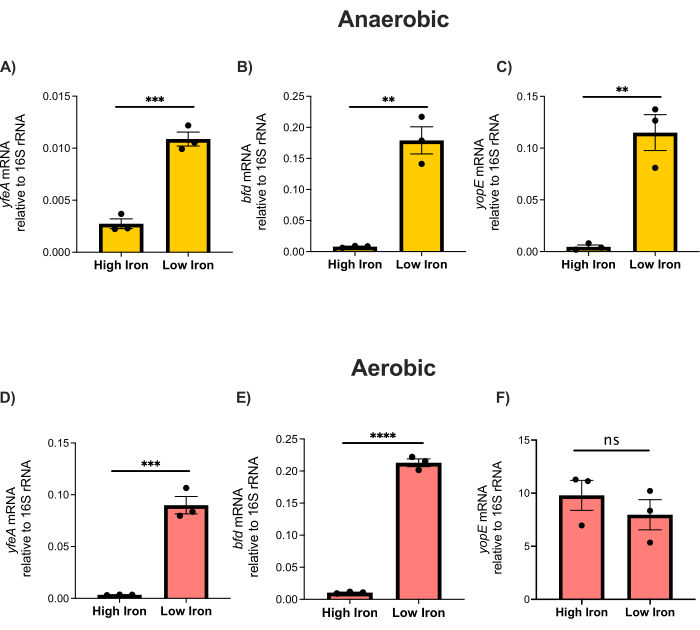
图3:铁响应基因的相对mRNA水平显示铁饥饿状态。 从在图1所述条件下培养的野生型Y. pseudotuberculosis中提取RNA。采用qPCR检测yfeA、bfd和yopE的相对表达水平,并以16S rRNA为标准化参照,在厌氧(A–C)和需氧(D–F)条件下进行比较。p < 0.0001,由非配对t检验确定。 请点击此处查看该图的放大版本。
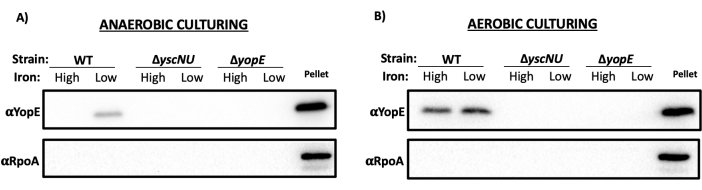
图4:上清液样品中缺乏胞质RpoA蛋白,表明培养条件下无细胞裂解。 将图3中(A)厌氧和(B)需氧条件下的沉淀上清液各5 µL,与菌体沉淀对照一同在12.5% SDS-PAGE凝胶上电泳。随后将蛋白转移至PVDF膜进行Western印迹分析。将膜切开,上半部分使用抗RpoA抗体检测RpoA,下半部分使用抗YopE抗体检测YopE。请点击此处查看该图的放大版本。
| (A) | |||
| 厌氧条件 | |||
| 条件 | OD | 收集体积 (mL) | 加入上清液的 6.1 N TCA 体积 (mL) |
| WT 低铁 | 0.5 | 6 | 0.6 |
| WT 高铁 | 1 | 3 | 0.3 |
| (B) | |||
| 有氧条件 | |||
| 条件 | OD | 收集体积 (mL) | 加入上清液的 6.1 N TCA 体积 (mL) |
| WT 低铁 | 0.9 | 6 | 0.6 |
| WT 高铁 | 1.4 | 3.857 | 0.386 |
表1:代表性样品采集流程。 第5天,(A)厌氧样品在37 °C孵育4 h后,取OD600值最低的样品6 mL,并相应归一化其余样品体积。过滤上清液后,加入6.1 N TCA。(B)有氧孵育(26 °C孵育2 h和37 °C孵育4 h)完成后,取OD600值最低的样品6 mL,并相应归一化其余样品体积。过滤上清液后,加入6.1 N TCA。
讨论
III型分泌系统(T3SS)是多种致病菌中的重要毒力因子;因此,建立用于研究其调控机制的实验技术,对于理解致病过程以及开发潜在治疗手段具有重要意义1铁和氧气是已知的重要宿主信号,可被细菌病原体感知以调控III型分泌系统(T3SS)的表达。5因此,该方法提供了一种培养策略 Y. pseudotuberculosis 在厌氧或需氧条件下,以及铁饥饿或铁补充条件下进行实验,并通过检测分泌的YopE T3SS效应蛋白的相对含量,展示如何定量不同条件下T3SS的相对活性。
尽管本实验的操作流程相对简单,但仍有一些关键点需要仔细考虑,以优化实验结果。在TCA介导的蛋白质沉淀步骤中,应避免吸出蛋白质沉淀,因为沉淀可能难以观察。特别需要注意的是,切勿让移液器吸头接触离心管的管壁或管底。此外,当处理T3SS活性较低的突变菌株时,建议收集更大的样品量进行处理。最后,如果样品处理并染色后凝胶电泳条带出现弥散而非清晰条带,可能是由于培养过程中发生细胞裂解,或沉淀中的完整细菌被带入上清液所致。此时应重复实验,并在去除上清液时更加小心,避免吸取沉淀。需要注意的是,本方案的灵敏度可能不足以检测极低量分泌的蛋白质,在这种情况下可能需要采用其他检测方法。另外,由于许多螯合剂会从培养基中去除除铁和镁以外的二价阳离子,因此可在螯合处理后向培养基中补充其他二价阳离子,以评估其对分泌的影响。
在这些实验中需要考虑的另一个重要问题是M9培养基中的盐类容易发生沉淀,从而导致不同实验批次之间的差异。为 为缓解这一问题,可添加经滤膜除菌的 MgSO₄4 立即加入培养基中 培养前
总体而言,这些方法通过检测蛋白质水平,为定量分析鼠疫耶尔森菌(Yersinia)III型分泌系统(T3SS)的相对活性提供了可靠的框架。结合旨在评估T3SS表达的平行方法,本文所介绍的技术有助于全面理解T3SS在宿主相关环境信号刺激下的动态变化。本实验方案也可适用于其他可在无铁定义培养基中生长的细菌,以及研究问题涉及分泌蛋白检测的其他应用场景。
披露
作者声明不存在竞争性经济利益。
致谢
使用 BioRender.com 创建的示意图。本研究由美国国立卫生研究院(www.NIH.gov)资助,项目编号 R01AI119082。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 mL 鲁尔锁扣式针筒 | BD | 301029 | |
| 10x SDS 电泳缓冲液 | 自制 | 0.25 M Tris 碱,1.92 M 甘氨酸,1% SDS,定容至 1 L | |
| 12.5% SDS-聚丙烯酰胺凝胶电泳凝胶 | 自制 | ||
| 15 mL 培养管 | Falcon | 352059 | 用于初始过夜培养 |
| 15 mL Falcon 管 | Falcom | 352196 | 用于上清液收集 |
| 250 mL 培养瓶 | Belco | 251000250 | |
| 500 mL 过滤系统 | 康宁 | 431097 | |
| 6 N 盐酸溶液 | Fisher Scientific | 7732185 | |
| 丙酮 | Fisher Chemical | A949-4 | 4 L |
| Bio Rad ChemiDoc MP 成像系统 | 伯乐(Bio-Rad) | 型号:Universal Hood III | |
| 硼硅酸盐玻璃培养管 | Fisherbrand | 14-961-34 | 用于厌氧培养 |
| Chelex 100 树脂 | 伯乐(Bio Rad) | 142-1253 | |
| Chelex M9 +0.9% 葡萄糖培养基 | 自制 | 6 g/L Na2HPO4,3 g/L KH2PO4,0.5 g/L NaCl,1 g/L NH4Cl,1% 酪蛋白氨基酸 <强>0.9%葡萄糖,0.0005% 硫胺素,5 g/L Chelex 100 树脂。室温下搅拌培养基 18 小时,使用 500 mL Corning 过滤装置过滤,然后加入 MgSO4 对于 1 mM MgSO₄4 终溶液 | |
| 终末样品缓冲液(FSB) | 自制 | 0.1 M Tris-HCl,4% SDS,20% 甘油,0.2% 溴酚蓝 | |
| FSB:DTT 溶液 | 自制 | FSB + 0.2 M DTT | |
| Image Lab 软件 | 伯乐(Bio-Rad) | https://www.bio-rad.com/zh-cn/product/image-lab-software?ID=KRE6P5E8Z | 软件 |
| Isotemp 加热块 | Fisher Scientific | 88860021 | |
| LB 琼脂平板 | 自制 | 10 g 胰蛋白胨,5 g 酵母提取物,10 g NaCl,15 g 琼脂,定容至 1 L。高压灭菌 | |
| M9 + 0.2% 葡萄糖培养基 | 自制 | 6 g/L Na2HPO4,3 g/L KH₂PO₄2PO4,0.5 g/L NaCl,1 g/L NH₄Cl4Cl,1 mM MgSO₄4,1 mg/L FeSO47H2O,1% 氨基酸混合物 <强>0.2% 葡萄糖0.0005% 硫胺素 | |
| Millex-GP PES 0.22 μm 滤器,用于注射器连接 | Millipore | SLGPR33RS | 用于 FeSO4·7H2O 的过滤 |
| Millex-GV PVDF 0.22 μm 滤器,用于注射器连接 | Millipore | SLGVR33RS | 用于上清液过滤 |
| Precision Plus Protein 未染色标准蛋白 | 伯乐(Bio Rad) | 1610363 | |
| SDS-PAGE 凝胶电泳装置 | 伯乐(Bio-Rad) | 型号:Mini PROTEAN Tetra Cell | |
| SilverXpress 银染试剂盒 | Invitrogen | LC6100 | |
| The BellyDancer 摇床 | IBI Scientific | BDRAA1155 | |
| 6.1 N 三氯乙酸溶液 | Sigma Aldrich | T0699 | |
| 乙烯厌氧培养箱 | Coy 实验室产品 | https://coylab.com/products/anaerobic-chambers/vinyl-anaerobic-chambers/#details | |
| <强>qPCR 引物序列 | |||
| yfeA 正向引物 - CAC AGT CAG CAG ACC TTA TCT T | |||
| yfeA 反向引物 - GGC AGA CGG GAC ATC TTT AAT A | |||
| bfd 前向 - ccagcatcagccccatacag | |||
| bfd 反向 - tggcttgtcggatgcacttc | |||
| yopE 正向引物 - CCATAAACCGGTGGTGAC | |||
| yopE 反向引物 - CTTGGCATTGAGTGATACTG |
参考文献
- Deng, W., et al. Assembly, structure, function regulation of type III secretion systems. Nat Rev Microbiol. 15 (6), 323-337 (2017).
- Springer International Publishing. Bacterial Type III Protein Secretion Systems. 427, Springer International Publishing. Cham. (2020).
- Schubert, K. A., Xu, Y., Shao, F., Auerbuch, V. The Yersinia type III secretion system as a tool for studying cytosolic innate immune surveillance. Annu Rev Microbiol. 74, 221-245 (2020).
- Cassat, J. E., Skaar, E. P. Iron in infection and immunity. Cell Host Microbe. 13 (5), 509-519 (2013).
- Singhal, R., Shah, Y. M. Oxygen battle in the gut: Hypoxia and hypoxia-inducible factors in metabolic and inflammatory responses in the intestine. J Biol Chem. 295 (30), 10493-10505 (2020).
- Marteyn, B., et al. Modulation of Shigella virulence in response to available oxygen in vivo. Nature. 465 (7296), 355-358 (2010).
- Rakin, A., Schneider, L., Podladchikova, O. Hunger for iron: the alternative siderophore iron scavenging systems in highly virulent Yersinia. Front Cell Infect Microbiol. 2, (2012).
- Lesic, B., Carniel, E. Horizontal Transfer of the high-pathogenicity island of Yersinia pseudotuberculosis. J Bacteriol. 187 (10), 3352-3358 (2005).
- Green, E. R., et al. Fis is essential for Yersinia pseudotuberculosis virulence and protects against reactive oxygen species produced by phagocytic cells during infection. PLOS Pathog. 12 (9), e1005898(2016).
- Cornelis, G. R. The Yersinia Ysc-Yop "Type III" weaponry. Nat Rev Mol Cell Biol. 3 (10), 742-753 (2002).
- Cheng, L. W., Anderson, D. M., Schneewind, O. Two independent type III secretion mechanisms for YopE in Yersinia enterocolitica. Mol Microbiol. 24 (4), 757-765 (1997).
- Straley, S. C. The low-Ca2+ response virulence regulon of human-pathogenic yersiniae. Microbial Pathog. 10 (2), 87-91 (1991).
- Balada-Llasat, J. -M., Mecsas, J. Yersinia has a tropism for B and T cell zones of lymph nodes that is independent of the type III secretion system. PLoS Pathog. 2 (9), e86(2006).
- Adams, W., Morgan, J., Kwuan, L., Auerbuch, V. Yersinia pseudotuberculosis YopD mutants that genetically separate effector protein translocation from host membrane disruption: YopD central region promotes Yop translocation. Mol Microbiol. 96 (4), 764-778 (2015).
- Hooker-Romero, D., et al. Iron availability and oxygen tension regulate the Yersinia Ysc type III secretion system to enable disseminated infection. PLOS Pathog. 15 (12), e1008001(2019).
- Balderas, D., et al. Genome scale analysis reveals IscR directly and indirectly regulates virulence factor genes in pathogenic Yersinia. mBio. 12 (3), e00633-00721 (2021).
- Bearden, S. W., Perry, R. D. The Yfe system of Yersinia pestis transports iron and manganese and is required for full virulence of plague. Mol Microbiol. 32 (2), 403-414 (1999).
- Zhou, D., et al. Global analysis of iron assimilation and fur regulation in Yersinia pestis: Global analysis of iron assimilation and fur regulation in Yersinia pestis. FEMS Microbiol Lett. 258 (1), 9-17 (2006).
- Wijerathne, H., et al. a new class of [2Fe-2S] protein that functions in bacterial iron homeostasis, requires a structural anion binding site. Biochemistry. 57 (38), 5533-5543 (2018).
- Bearden, S. W., Staggs, T. M., Perry, R. D. An ABC transporter system of Yersinia pestis allows utilization of chelated iron by Escherichia coli SAB11. J Bacteriol. 180 (5), 1135-1147 (1998).
- Miller, H. K., et al. IscR is essential for Yersinia pseudotuberculosis type III secretion and virulence. PLoS Pathog. 10 (6), e1004194(2014).
重印与许可
