超氧阴离子的生成对于血小板的活化至关重要,若调控失常,则在血栓性疾病中具有关键作用。本文介绍了三种选择性检测超氧阴离子及研究氧化还原依赖性血小板调控的方法。
本文内容
摘要
摘要
活性氧(ROS)是一类高度不稳定的含氧分子。其化学不稳定性使其具有极强的反应活性,能够与蛋白质、核酸和脂质等重要的生物分子发生反应。超氧阴离子是通过分子氧还原(即获得一个电子)产生的重要活性氧。尽管最初认为其仅参与衰老、退行性疾病和致病过程,但近年来发现其在多种重要生理反应中也发挥着作用。在血管系统中,超氧阴离子已被证实可调节血管平滑肌细胞的分化与功能、血管内皮细胞在血管生成过程中的增殖与迁移、免疫反应以及止血过程中血小板的活化。超氧阴离子在血小板功能失调及多种疾病状态(包括癌症、感染、炎症、糖尿病和肥胖)相关的心血管并发症中具有尤为重要的作用。因此,在心血管研究中,能够有效检测人血小板中 超氧阴离子的生成 ,理解调控止血与血栓形成之间平衡的氧化还原依赖性机制,并最终 发现可用于调节血小板反应、预防血栓形成及心血管并发症的新型药理学工具,已成为极为重要的研究方向。本研究介绍了三种已成功用于检测血小板中超氧阴离子以及研究调控止血与血栓形成的氧化还原依赖性机制的实验方案:1)基于二氢乙啶(DHE)的流式细胞术检测超氧阴离子;2)基于DHE的单个血小板成像对超氧阴离子进行可视化观察与分析;3)基于自旋探针的电子顺磁共振(EPR)法对血小板中超氧阴离子产量进行定量测定。
引言
超氧阴离子(O2•-)是血小板中产生的最具功能相关性的活性氧(ROS)1。O2•- 是分子氧还原的产物,也是多种不同活性氧的前体2。O2•- 的歧化反应可通过水溶液中的自发反应或超氧化物歧化酶(SODs3)催化的反应生成过氧化氢(H2O2)。尽管已有研究提示多种酶促来源(如黄嘌呤氧化酶4、脂氧合酶5、环氧化酶6, 和一氧化氮合酶7),但线粒体呼吸8,9 和烟酰胺腺嘌呤二核苷酸磷酸氧化酶(NOXs10)是真核细胞中超氧阴离子最主要的来源。在血小板中似乎也是如此,已有研究指出线粒体呼吸过程中电子泄漏11,12 以及 NOXs 的酶活性13,14 是超氧阴离子生成的主要贡献因素。
尽管已有若干研究聚焦于超氧阴离子(O2•-)对血小板的调控作用,但其分子机制尚无定论。已有研究提出,可通过直接氧化和二硫键形成来调节多种血小板表面受体的活性。活性氧(ROS)可通过直接氧化半胱氨酸残基从而正向调控整合素αIIbβ3的功能15,16,17。类似地,由于血小板对胶原的反应依赖于二硫键依赖性的糖蛋白VI(GPVI)二聚化18,因此也提出了ROS依赖性氧化增强受体活性的机制19,但该机制尚未在实验中完全证实。最后,有研究表明,活性氧诱导的糖蛋白Ib(GPIb)巯基氧化可促进炎症过程中的血小板黏附及血小板-白细胞相互作用20。相反,还原性条件可能通过减少巯基氧化及受体激活,导致GPVI和GPIb胞外域的脱落减少 21。
也有研究提出,活性氧(ROS)可通过不直接氧化血小板表面受体的其他作用机制发挥作用。例如,超氧阴离子(O2•-)已被证明可通过抑制含 Src 同源性 2 区域的蛋白酪氨酸磷酸酶 2(SHP-2)的活性,从而正向调节胶原受体 GPVI,而 SHP-2 通常对该受体的信号级联起负向调控作用22。此外,O2•- 可通过与一氧化氮(NO)快速反应生成过氧亚硝酸根(ONOO- ,即过氧亚硝酸盐),而 NO 通常通过 NO 敏感性鸟苷酸环化酶(NO-GC)产生环磷酸鸟苷(cGMP)这一负性血小板调节因子,从而抑制血小板活性23,24。因此,NO 水平的降低可能导致血小板功能增强。另一种机制是,由 NOX2 产生的 O2•- 可能促进脂质过氧化和异前列腺素的形成,这对血小板的活化与黏附至关重要25。最后,细胞外信号调节激酶 5(ERK5),即丝裂原活化蛋白激酶(MAPK)家族的一员,被认为是一种血小板内氧化还原应激感受器26,可被 O2•- 激活,并诱导血小板呈现促凝表型(通过基于流式细胞术检测磷脂酰丝氨酸外翻程度进行评估)27。
血小板中O2•-及其他活性氧(ROS)生成的失调与过度的止血反应相关,进而导致动脉粥样硬化、糖尿病、高血压、肥胖和癌症等疾病中血栓性心血管并发症的发生28,29。在这些病理状态下,血小板产生的ROS增加,从而增强其黏附和聚集反应。除了对血小板自身功能的影响外,血小板释放的自由基还可能影响其他血细胞和血管结构,这一领域在心血管健康研究中尚缺乏充分认识和深入探索30。尽管目前对氧化应激与血栓性疾病之间分子机制的理解仍有限,但抗氧化剂在预防心血管疾病方面的临床意义已受到广泛关注。研究表明,血浆抗氧化剂水平与心血管疾病发病风险呈负相关,膳食抗氧化剂的摄入可对冠状动脉疾病起到保护作用31,32 。因此,膳食抗氧化剂的使用被认为是一种有前景的心血管疾病预防策略33,34,35。在ROS对血小板产生的多种效应中,细胞凋亡的增加可能具有重要的病理生理学意义36,37。总体而言,可靠检测和定量血小板O2•-生成的方法在心血管研究中正变得日益重要。
目前,用于检测活性氧(ROS)的技术在特异性和可靠性方面均存在重要局限性:特异性方面,所检测氧化剂分子的化学性质不明确;可靠性方面,与生物分子及实验试剂的非预期相互作用会导致偏离生理状态的偏差结果38,39。在血小板中检测ROS最常用的方法基于使用二氯二氢荧光素二乙酸酯(DCFDA),该物质被细胞内酯酶转化为二氯二氢荧光素(DCFH),随后被包括羟基自由基和过氧化物酶-H2O2中间体在内的细胞氧化剂进一步氧化为高度荧光的二氯荧光素(DCF)40,41。尽管该方法被广泛使用,但其在检测细胞内ROS时的可靠性已受到严重质疑38。事实上,DCFH向DCF的氧化反应可由过渡金属离子(如Fe2+)或含血红素的酶(如细胞色素)引发,而非ROS所致42。此外,DCFDA可被细胞过氧化物酶转化为其半醌自由基形式(DCF•-),后者通过与分子氧(O2)反应被进一步氧化为DCF,同时释放超氧阴离子(O2•-),从而人为放大氧化应答信号41,43,44。因此,使用DCFDA检测细胞内ROS虽有助于获得初步信息,但需谨慎解读结果,并辅以充分的实验对照38,39。
本研究介绍了三种用于检测和测定血小板功能关键调控因子O2•-1的替代技术。第一种技术是利用DHE和流式细胞术进行检测,相较于DCFDA,该方法具有更高的可靠性和特异性。第二种技术同样使用DHE,但检测方法为活血小板荧光成像,可对血小板信号转导过程中快速动力学和单细胞分辨率下的O2•- 生成进行研究。最后,基于在电子顺磁共振(EPR)实验中使用羟胺自旋探针1-羟基-3-甲氧羰基-2,2,5,5-四甲基吡咯啉(CMH)的实验方案,可定量测定血小板生成O2•-的速率,并在不同条件下进行比较。
方案
采集经知情同意的志愿者外周血样本已获得当地伦理委员会和英国国家医疗服务体系健康研究管理局的批准(伦理审查委员会编号:21/SC/0215;IRAS编号:283854)。
方法1:使用DHE通过流式细胞术检测超氧阴离子
- 将柠檬酸钠溶液(4% w/v)预热至 37 °C,并在静脉穿刺采血时以 1:7 的比例直接加入血液中作为抗凝剂(终浓度为 0.5% w/v)。
- 通过肘正中静脉穿刺从健康志愿者采集外周人血。
- 通过初始离心步骤(200 × g,20 分钟)从全血中获取富血小板血浆(PRP)。
- 在可逆性血小板抑制剂吲哚美辛(10 µM)和 PGE1(40 ng/mL)存在下,将 PRP 以 500 × g 离心 10 分钟。
- 将所得血小板沉淀重悬于改良 Tyrode 缓冲液(145 mM NaCl,2.9 mM KCl,10 mM 4-(2-羟乙基)-1-哌嗪乙磺酸(HEPES), 1 mM MgCl2,5 mM 葡萄糖,pH 7.3)中,于 37 °C 下调整血小板密度至 2 × 10⁸ 个/mL。
- 分离后,在 37 °C 下静置血小板 30 分钟。
- 用二甲基亚砜(DMSO)配制 DHE 储存液,浓度为 5 mM。
- 将 DHE 加入血小板悬液中,使其终浓度为 5 µM(将储存液稀释 1000 倍,终浓度 DMSO 为 0.1% v/v),37 °C 孵育 15 分钟。
- 在使用特定生理刺激物(如 0.1 单位/mL 凝血酶或 3 µg/mL 胶原蛋白)刺激前,先用药物处理剂和/或活性氧清除剂处理血小板 15 分钟。
- 刺激后,用预冷的改良 HEPES 缓冲液将血小板悬液稀释 10 倍。
- 进行流式细胞术检测时,将侧向散射(SSC)和前向散射(FSC)增益分别设为 40 mV 和 220 mV,使用对数尺度散点图观察悬液中颗粒群体(示例见图 1A)。
- (可选)使用抗 CD41 抗体对一份血小板悬液进行免疫染色,以鉴定对应于血小板的事件群(示例见图 1B)。
- 采用 405 nm(紫色激光)激发、580 nm 发射波长进行流式细胞术分析,特异性检测超氧阴离子特异性产物 2-羟基乙锭(2OH-Et+)(图 2)。
注意:不建议使用多聚甲醛固定或长期储存样品。
2. 方法2:利用DHE通过单血小板荧光成像检测超氧阴离子
- 在实验当天,用来自马肌腱的0.1 mg/mL纤维状I型胶原(Horm胶原)、0.2 mg/mL纤维蛋白原或1 mg/mL聚-L-赖氨酸(PLL)溶于改良Tyrode缓冲液中,在37 °C条件下孵育2小时,包被8孔µ载片。
- 用改良Tyrode缓冲液洗涤两次(每次10分钟)。
- 通过在含5 mg/mL牛血清白蛋白(BSA)的改良Tyrode缓冲液中孵育至少30分钟(或直至实验开始),封闭非特异性黏附。
- 预先将柠檬酸钠溶液(4% w/v)在37 °C温育,并在静脉穿刺采血时以1:7的比例直接加入血液中作为抗凝剂(终浓度为0.5% w/v)。
- 通过肘正中静脉穿刺采集健康志愿者的外周人血。
- 将全血在200 x g离心20分钟,初步获得富血小板血浆(PRP)。
- 在可逆性血小板抑制剂吲哚美辛(10 µM)和PGE1(40 ng/mL)存在下,将PRP在500 x g离心10分钟。
- 将所得血小板沉淀重悬于改良Tyrode 缓冲液(145 mM NaCl, 2.9 mM KCl, 10 mM HEPES, 1 mM MgCl2, 5 mM葡萄糖, pH 7.3)中,调整至37 °C,血小板密度为4 x 10⁷ 个/mL。
- 分离后,在37 °C静置血小板30分钟。
- 将DHE溶于二甲基亚砜(DMSO)中,配制成10 mM的储存液。
- 向血小板悬液中加入DHE至终浓度10 µM(将储存液稀释1000倍,终浓度DMSO为0.1% v/v),37 °C孵育1分钟。
- 与DHE孵育1分钟后,移除选定孔中的封闭液,将µ载片置于显微镜载物台上准备成像,并轻柔地加入血小板悬液。
- 使用倒置共聚焦显微镜监测DHE转化为2OH-Et+的过程,激发/发射波长为405/580 nm,持续成像10分钟,每10秒采集一次图像,使用40倍油镜。
- (可选)对于PLL包被的孔,在加入血小板10分钟后,加入可溶性激动剂(如0.1单位/mL凝血酶或3 µg/mL胶原),继续荧光成像10分钟,监测超氧阴离子的生成,具体操作如步骤2.13所述。
- (可选)如需,可在实验过程中轻柔地将超氧阴离子清除剂或选择性抑制剂(如NOX抑制剂)加入孔的侧壁,随后继续按步骤2.13所述采集荧光图像10分钟。
- 通过在图像分析软件ImageJ 1.53t中选择包含代表性单个血小板的感兴趣区域(ROI),并使用测量工具分析不同帧中的荧光强度,进行单细胞荧光定量分析。
3. 方法三:使用电子顺磁共振(EPR)检测血小板中的超氧阴离子
- 将柠檬酸钠溶液(4% w/v)预热至 37 °C,并在静脉穿刺时以 1:7 的比例(终浓度为 0.5% w/v)直接加入血液中作为抗凝剂。
- 通过肘正中静脉穿刺采集健康志愿者的外周人血。
- 通过初始离心步骤(200 × g,20 分钟)从全血中获取富血小板血浆(PRP)。
- 在可逆性血小板抑制剂吲哚美辛(10 µM)和前列腺素 E1(PGE1,40 ng/mL)存在下,将 PRP 以 500 × g 离心 10 分钟。
- 将所得血小板沉淀重悬于改良 Tyrode's 缓冲液(145 mM NaCl、2.9 mM KCl、10 mM HEPES、1 mM MgCl2、5 mM 葡萄糖,pH 7.3)中,调整温度至 37 °C,血小板密度为 2 × 10⁸ 个/mL。
- 分离后,在 37 °C 下静置血小板 30 分钟。
- 向血小板悬液中加入 5 µM 二乙基二硫代氨基甲酸盐(DETC)和 25 µM 去铁胺。
- 无需孵育,立即加入 200 µM 1-羟基-3-甲氧羰基-2,2,5,5-四甲基吡咯烷(CMH)。
- 将样品装入聚集仪的比浊杯中(包括涂有聚四氟乙烯的搅拌磁珠)。
- 1 分钟后,加入所需浓度的刺激物(例如 1 单位/mL 凝血酶或 3 µg/mL 胶原蛋白),孵育 10 分钟。
- (可选)在所需时间点,进行步骤 3.12 以测定不同时间点的超氧阴离子生成量。
- 将血小板悬液从聚集比浊杯转移至微量离心管中,迅速以 6,000 × g 离心 10 秒。
- 取 50 µL 上清液加入毛细管微量移液管中,并用 EPR 封蜡密封。
- 将样品转移至 EPR 扫描仪中。
- 设置 EPR 扫描仪参数如下:中心磁场 3,492.5 G,扫描范围 60 G,调制幅度 2 G,扫描时间 10 秒,扫描次数 10 次,微波频率 9.39 GHz,微波功率 20 mW,转换时间 327.68 ms,时间常数 5242.88 ms。
- 根据上述参数记录的 EPR 峰值曲线下的面积(AUC),估算 CMH 氧化为 CM● 的程度。
- 绘制标准曲线:以步骤 3.16 中测得的 EPR 强度为纵坐标,以市售 CM● 的浓度为横坐标(例如 0、0.3、1、3、10 和 30 µM) 。
- 根据样品中 CM● 的浓度,利用“代表性结果”部分所述公式计算血小板在样品中生成的超氧阴离子量。
结果
在使用流式细胞术检测DHE荧光时,我们展示了静息状态(图3A)或经0.1单位/mL凝血酶刺激后(图3B)血小板的代表性结果。超氧阴离子(O2•-)的生成量以血小板平均荧光强度(MFI)进行量化,如经0.1单位/mL凝血酶刺激(图3C)或3 µg/mL胶原相关肽(CRP)刺激后所示(图3D)。血小板经刺激后,DHE染色信号增强了两至三倍。为确认检测的是O2•-,我们建议使用细胞通透性的O2•-清除剂聚乙二醇化超氧化物歧化酶(PEG-SOD,100单位/mL);为鉴定O2•-的来源,我们使用了NOX抑制剂VAS2870(10 µM)。对于胶原和凝血酶刺激,PEG-SOD和VAS2870均消除了血小板活化引起的DHE荧光增强,证实该检测方法对O2•-具有特异性,且在此条件下其来源为NOX酶类。
为了通过成像检测DHE荧光,我们展示了实验数据,这些数据用于评估血小板在黏附于胶原或纤维蛋白原的瞬间及其后10分钟内O2•-的生成情况(图4A),以及评估先前黏附于多聚-L-赖氨酸(PLL)的血小板在凝血酶刺激下产生O2•-的情况(图4B)。正如预期,黏附于PLL不会触发显著的O2•-生成,最可能的原因是这种黏附依赖于静电相互作用,不引发任何信号转导反应45,因此该方法适用于测量在加入可溶性激动剂后O2•-的释放。为确认本方案能够检测到O2•-,可使用清除剂或特异性抑制剂。我们在先前的研究中已证明,N-乙酰半胱氨酸(NAC)可清除O2•-,并在此类实验中完全消除血小板的荧光信号46。本文中,我们显示特异性NOX抑制剂VAS2870可有效且迅速地抑制血小板在黏附于胶原或纤维蛋白原时(图4A)或响应凝血酶刺激时(图4B)的荧光信号。这表明在这些实验条件下,NOX是O2•-的主要来源。针对血小板黏附于胶原或纤维蛋白原,以及黏附于PLL的血小板被凝血酶刺激后DHE荧光(405 nm激发)的代表性视频分别作为补充文件1、补充文件2和补充文件3提供。值得注意的是,聚乙二醇修饰的超氧化物歧化酶(PEG-SOD)在其他实验体系中已被成功用作O2•-清除剂,但在本实验类型中无效。目前我们尚无明确解释,可推测PEG-SOD进入细胞内O2•-诱导荧光增强的区室时效率较低或动力学较慢。未来可能需要更深入的针对性研究来阐明这一问题。
我们在先前发表的多项研究中1,13,47,48,49,50,应用了电子顺磁共振(EPR)法测定血小板中O2•-的含量。该技术的关键步骤是使用市售的CM●制备标准曲线(即自旋探针CMH与O2•-反应的产物,也是EPR检测到的共振物种)。CMH与O2•-的反应如图5A所示,不同浓度CM●诱导的EPR信号的代表性示例如图5B所示。利用不同浓度CM●的数据建立了一条标准曲线,描述样品中氧化型CMH的量与EPR信号强度之间的线性关系(图5C)。以下方程描述了CM●浓度与EPR信号强度之间的相关性,也是本研究实验中标准曲线计算的起点(公式1):

由于CM●的浓度及其对应的EPR强度均为实验测得,因此可计算校准曲线的斜率和Y轴截距。如图5C所示的例子中,斜率 = 1,002,169,截距 = 596,383。因此,校准曲线的方程可重写为:
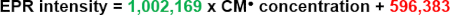
通过重新整理上述方程,可以根据不同样品的电子顺磁共振(EPR)强度值计算 CM● 浓度(方程 2):

一旦已知样品中CM●的浓度,即可利用以下公式(公式3)计算其每血小板单位时间内的生成速率:
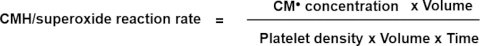
利用公式2,公式3可重写为(公式4):
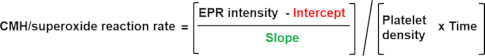
如图5C所示的示例中,可重写为:
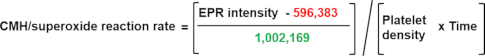
CMH 氧化速率将以 CMH 的阿摩尔数(attomoles)表示● 每分钟每个血小板产生的量。该数值可用于比较 O2•- 不同实验与供体之间的生成速率,这是使用DHE(或DCFDA)等荧光探针无法实现的。荧光探针通常仅能对不同条件下O₂⁻生成水平的变化提供粗略估计。2•- 通过同一实验中荧光强度的变化来检测活性氧的生成。对于本文所述的所有技术,均使用活性氧清除剂(如 PEG-SOD、NAC)或选择性抑制超氧阴离子生成酶的抑制剂(如用于抑制 NOXs 的 VAS2870)验证检测的特异性。本文展示了血小板刺激的相关数据图6) 与凝血酶(thrombin)图6A,C,E)或胶原蛋白(图6B,D,F)。对于这两种激动剂,均使用 PEG-SOD 来证实 O₂⁻ 的作用2•- 可被检测到,而聚乙二醇化过氧化氢酶(PEG-Cat.)无此效应,表明该技术无法检测过氧化氢(图6C,D,分别)。VAS2870 消除了凝血酶诱导的(图6E) 和胶原诱导的(图6FEPR 信号,表明 NOXs 是血小板 O₂⁻ 的主要来源2•- 对这两种激动剂均有反应。
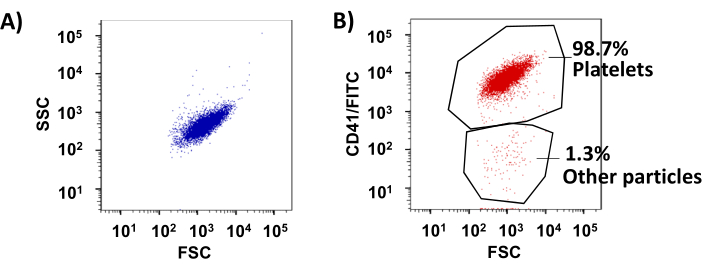
图1血小板悬液的流式细胞术分析 (A) 分离血小板的前向散射(FSC)和侧向散射(SSC)图的典型展示。B血小板悬液经抗CD41抗体免疫染色证实 >制备物中98%的颗粒为血小板。 请点击此处以查看此图的放大版本。
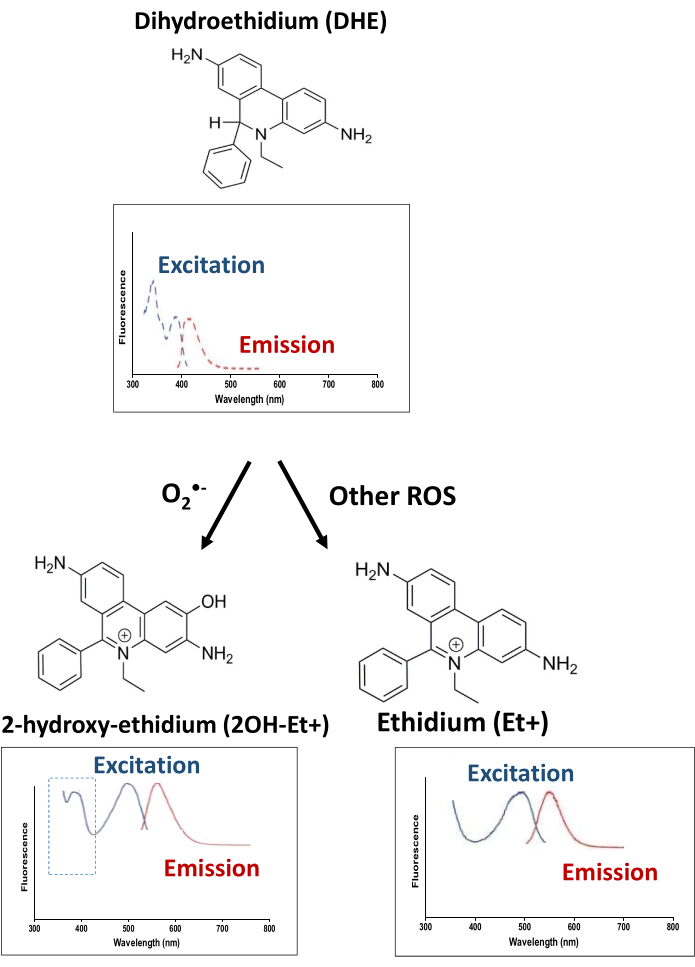
图2:DHE与超氧阴离子及其他活性氧的化学反应及其产物的光谱特性。 DHE及其两种氧化产物的结构与光谱特性:2-羟基乙啶(2OH-Et+),由与超氧阴离子反应生成;乙啶(Et+),由与其他类型的活性氧(如羟基自由基和过氧化氢)反应生成。图中用蓝色虚线矩形标出的405 nm处的激发峰为2OH-Et+特有,因此可用于检测/测量O2•-。请点击此处查看该图的放大版本。
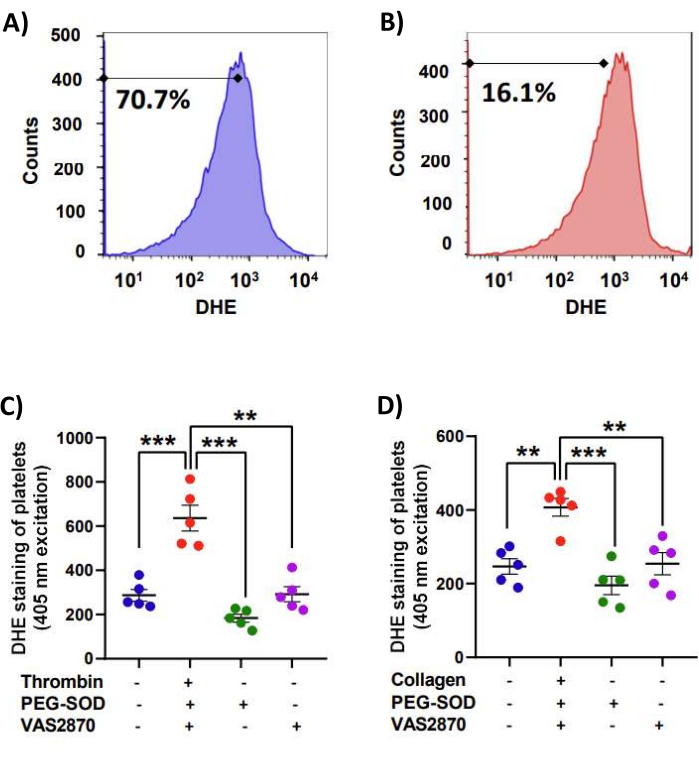
图 3:通过 DHE 和流式细胞术检测凝血酶和胶原蛋白依赖性超氧阴离子生成。 DHE 染色的代表性直方图显示:(A) 静息状态血小板和 (B) 凝血酶刺激后血小板。条形图指示 DHE 染色值低于 500 的比例,在静息和凝血酶刺激的血小板中分别为 70.7% 和 16.1%。该技术用于评估 (C) 0.1 unit/mL 凝血酶和 (D) 3 µg/mL 胶原蛋白刺激的血小板中超氧阴离子的生成。使用 PEG-SOD(100 unit/mL)验证本实验检测的是超氧阴离子,而使用 10 µM VAS2870 确认 NOX 酶是超氧阴离子的来源。每个数据点均基于 50,000 个血小板计算的平均荧光强度(MFI),每项实验独立重复五次(n = 5),图中显示均值 ± 标准误(SEM)。统计学显著性通过单因素方差分析(one-way ANOVA)结合 Tukey 多重比较检验进行评估(** = p < 0.01,*** = p < 0.001)。请点击此处查看该图的放大版本。
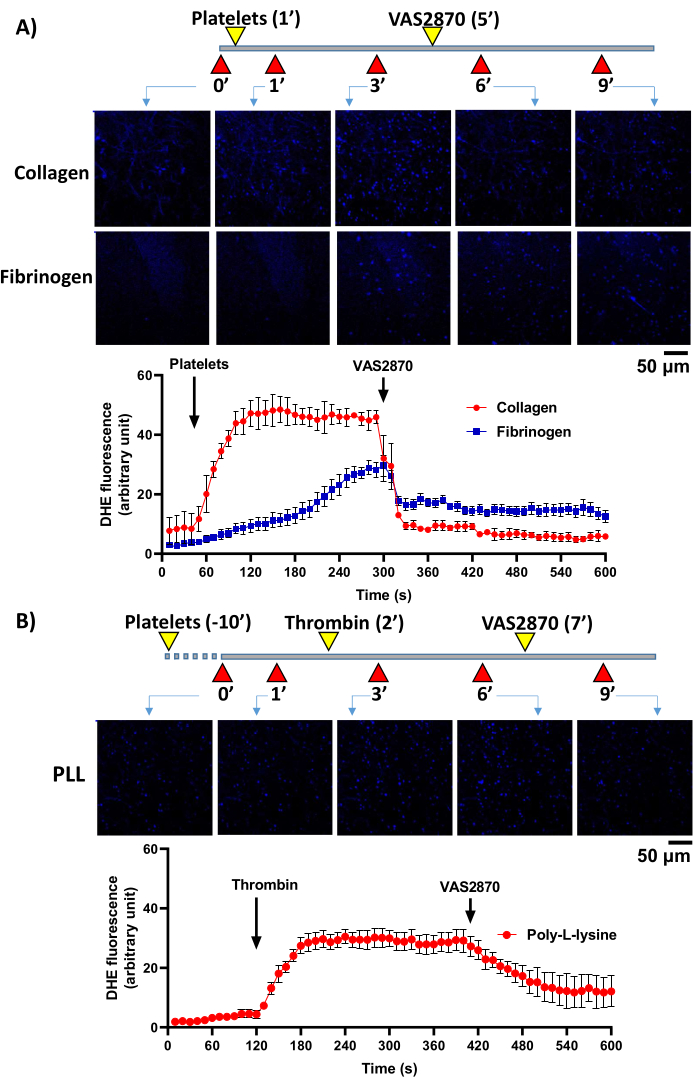
图4:通过DHE荧光成像检测胶原蛋白、纤维蛋白原和凝血酶依赖性的超氧阴离子生成。 (A)评估血小板在胶原或纤维蛋白原包被表面黏附后超氧阴离子的生成动力学。在成像开始1分钟后将血小板加入包被的µ载玻片中,而在图像采集开始5分钟后加入10 µM VAS2870。(B)血小板经凝血酶刺激后超氧阴离子生成的动力学。血小板先在PLL包被的µ载玻片上黏附10分钟,随后开始图像采集。2分钟后加入0.1单位/mL凝血酶,再过5分钟后加入10 µM VAS2870(即成像开始后7分钟)。实验设计示意图位于各图上方,代表性图像显示在图中部,分别为0分钟、1分钟、3分钟、6分钟和9分钟时的图像。单个血小板DHE荧光强度的定量分析显示在图下方,通过ImageJ软件进行荧光强度分析获得。数据来自4次独立实验,每组条件包含8–12个血小板,以均值±标准误表示。 请点击此处查看该图的放大版本。
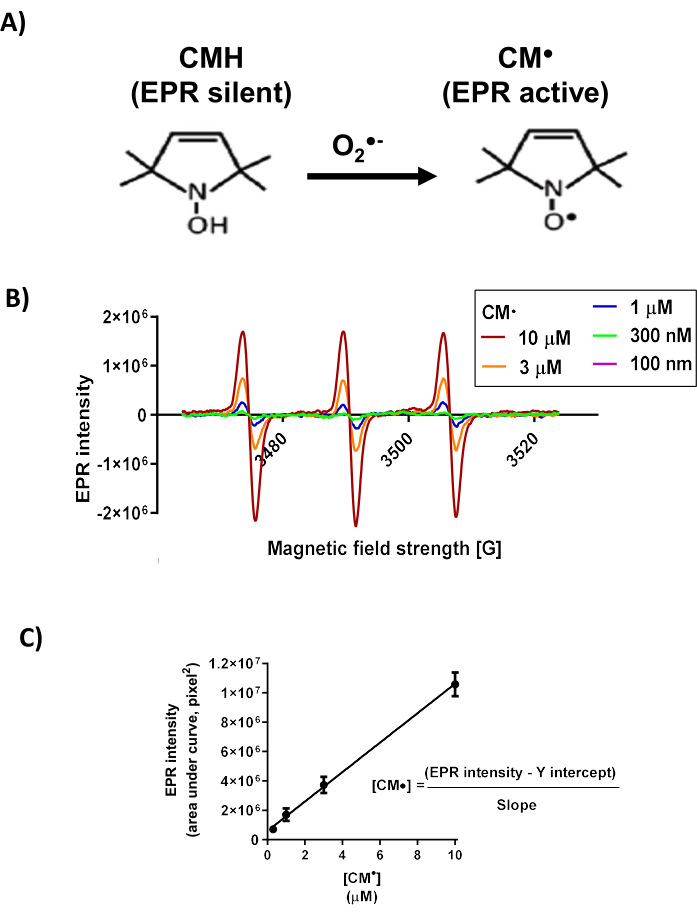
图5标准曲线与CMH氧化速率计算 (ACMH 与 CM 的化学结构及电子顺磁共振特性●. (B不同浓度 CM 的 EPR 数据代表性示例● (100 nM 至 10 µM). (C) EPR 强度的校准曲线 与 CM● 浓度 请点击此处以查看此图的放大版本。
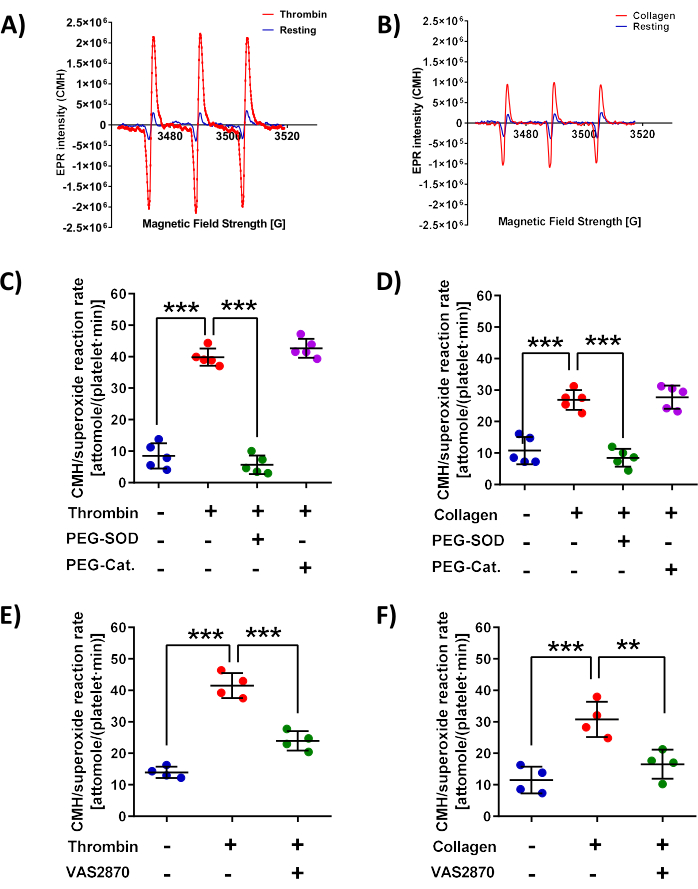
图6:血小板在凝血酶或胶原蛋白刺激下超氧阴离子生成的检测。 采用电子顺磁共振(EPR)结合自旋探针CMH检测经0.1单位/mL凝血酶(A)或3 µg/mL胶原蛋白(B)刺激的血小板中超氧阴离子的释放。在两种激动剂的实验条件下,均加入了100单位/mL的超氧阴离子清除剂聚乙二醇化超氧化物歧化酶(PEG-SOD)或100单位/mL的过氧化氢清除剂聚乙二醇化过氧化氢酶(PEG-Cat.)(C、D)。通过与NADPH氧化酶抑制剂VAS2870(10 µM)共孵育,探究超氧阴离子的来源。结果显示,凝血酶(E)和胶原蛋白(F)诱导的超氧阴离子生成均依赖于NADPH氧化酶(NOX)的活性。在整个图中,CMH与超氧阴离子的反应速率根据手稿中描述的方法从EPR谱线计算得出(公式4)。数据为5次独立实验(C、D)和4次独立实验(E、F)的均值±标准误。统计学显著性通过单因素方差分析(one-way ANOVA)结合Tukey多重比较检验进行评估(** = p < 0.01,*** = p < 0.001)。请点击此处查看该图的放大版本。
补充文件 1:胶原黏附诱导 DHE 荧光(405 nm 激发)的代表性视频。请点击此处下载该文件。
补充文件 2:纤维蛋白原黏附诱导 DHE 荧光(405 nm 激发)的代表性视频。请点击此处下载该文件
补充文件 3:聚赖氨酸(PLL)上黏附的血小板在凝血酶刺激下 DHE 荧光(405 nm 激发)的代表性视频。请点击此处下载该文件。
讨论
在本文中,我们介绍了三种不同的技术,这些技术有望通过选择性检测超氧阴离子(O2•-)来提升研究血小板功能中氧化还原依赖性调控的能力。前两种方法在现有技术基础上有所改进,主要体现在所使用的氧化还原探针上(采用DHE而非更常用但可靠性较低的DCFDA)。因此,这些方法具有较高的可及性,大多数实验室无需额外的设备投入或专门培训即可有效采用。第三种技术则基于电子顺磁共振(EPR)分析自旋探针CMH的氧化过程,需要配备专用仪器和试剂,并对实验人员进行专门培训。因此,该技术更适合专门致力于研究血小板(或其他细胞)中氧化还原相关事件的实验室使用。
对于使用DHE的技术,激发波长的选择至关重要,以实现对O2•-的特异性检测。DHE与O2•-反应生成的2-羟基乙锭(2OH-Et+)在405 nm处被激发,而DHE与活性氧(如羟基自由基和过氧化氢)发生非特异性反应生成的乙锭(Et+)在约520 nm处有激发峰,但在405 nm处无激发信号(图1)51。与DCFDA相比,使用DHE可避免该探针与过氧化物酶、其他含血红素的酶以及金属离子还原剂等细胞成分直接反应所导致的假象42,43,44。已有研究建议将DHE作为细胞氧化还原状态研究中更为可靠的工具38,39。本文中,我们提出将DHE结合两种不同的检测技术使用:1)流式细胞术和2)荧光成像。
流式细胞术通常是一种允许同时处理多个样本且通量较低至中等的技术52。然而,本研究中所采用的方法无法对样本进行固定。尽管使用冰冻的改良Tyrode缓冲液稀释样本可在长达30分钟内稳定样本中的荧光信号,但所有样本的分析必须在此时间范围内完成。这显著限制了每次实验可处理的样本数量。尽管可以在同一天内、使用同一批血小板制备物进行多次内部对照的实验运行,但结果应归一化至对照组,而不能视为独立的实验。本论文作者已使用该技术揭示了氧化还原依赖性血小板调节在应对不同激动剂和调节剂时的作用46,50。该方法还可通过采用一种化学修饰的DHE衍生物(即Mitosox)进行改进,以实现对线粒体的特异性靶向53,该探针已被用于聚焦NOX2的血小板研究54。这是一个颇具前景的方向,但目前尚未被我们的实验室开展。
本研究提出的利用DHE进行荧光成像的技术具有优势,可测定血小板在黏附(激动剂吸附于成像孔板表面)或刺激(激动剂处于悬浮状态)过程中O2•-生成的时间进程。该方法有助于解析血小板活化过程中不同阶段之间的相互作用,并评估不同O2•-来源(例如不同的活性氧生成酶,如NOXs)的贡献。目前尚无其他技术能够实现此类研究。但该方法在检测通量方面存在一定局限性,每个测试条件需耗时30分钟(包括µ型载片的设置、聚焦与视野选择、成像及数据保存)。因此,该技术每天可测试的条件数量有限(即少于10个)。尽管本文展示的数据使用共聚焦显微镜获得,但我们已证实,使用具备405 nm激发能力的落射荧光显微镜也可获得同样良好的结果。这降低了对昂贵共聚焦显微系统的依赖,使该技术更具经济可行性。
电子顺磁共振(EPR)方案的建立基于先前在不同类型细胞中的研究55。该技术被广泛认为是研究细胞内活性氧(ROS)生成以及氧化还原相关事件最可靠的工具38。除了由于羟胺类自旋探针与无氧自由基反应具有高度特异性,使其可靠性优于其他技术56之外,EPR还能够定量测定O2•-的生成速率,并可在不同个体和不同实验之间进行比较。而基于荧光的技术则无法实现这一点,后者仅能在单次实验和单次血小板制备中评估特定条件对荧光强度的影响。尽管该EPR方案最初是作为与血小板聚集实验联用的技术而开发,以实现对血小板活化和O2•-生成的同步监测1,但这些实验也可在不同时进行聚集分析的情况下独立开展。即使不同时检测血小板聚集,我们仍建议在聚集仪中进行孵育,以确保有效的血小板刺激,因为持续搅拌所提供的剪切应力是必要的。如果实验必须在未搅拌的1.5 mL微量离心管中进行,则O2•-的生成水平会显著降低。因此,若采用此种实验方式,我们建议将CMH孵育置于旋转摇床上进行,并使用更高浓度的血小板(即1 × 10⁹/mL),以获得足够强的信号供EPR波谱仪检测。
总之,本文介绍了三种经过验证的检测O的方法2•- 在血小板中。这些方法具有不同的优势,可根据实验目的和优先级进行选择。第一种技术基于流式细胞术使用DHE,操作最简便且耗时最少,因此可作为入门级分析方法。第二种技术基于荧光显微镜使用DHE,能够观察O₂⁻生成的快速动力学过程2•- 生成并研究不同信号级联通路如何在秒级时间尺度上影响氧化应答(而其他技术仅能对刺激后数分钟内发生的事件进行终点检测)。最后,EPR 可实现对 O2•- 生成速率及其在不同实验和个体间的比较。因此,后一种技术特别适用于旨在表征不同个体血小板氧化反应的临床研究(例如患者之间的比较,或患者与健康对照之间的比较)。 与 健康对照组)。总体而言,这三种技术相较于 现有方法,并显著提升了我们研究血小板中氧化还原依赖性事件的实验工具。
披露
作者无任何利益冲突需要披露。
致谢
本工作由英国心脏基金会(PG/15/40/31522)、阿尔茨海默病研究英国分会(ARUK-PG2017A-3)以及欧洲研究理事会(#10102507)向 G. Pula 提供的资助支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1-羟基-3-甲氧羰基-2,2,5,5-四甲基吡咯啉(CMH) | Noxygen Science Transfer and Diagnostics GmbH | NOX-02.1-50mg | EPR(自旋探针)试剂 |
| BD FACSAria III | BD Biosciences | NA | 流式细胞仪 |
| 牛血清白蛋白 | 默克/西格玛 | A7030 | 对于 μ- 载玻片包被 |
| 布鲁克 E-scan M(Noxyscan) | Noxygen Science Transfer and Diagnostics GmbH | NOX-E.11-BES | EPR波谱仪 |
| 过氧化氢酶–聚乙二醇(PEG-Cat.) | 默克/西格玛 | C4963 | 过氧化氢清除剂(特异性对照) |
| ChronoLog Model 490+4 | Labmedics/Chronolog | NA | 血小板聚集仪 |
| CM自由基 | Noxygen Science Transfer and Diagnostics GmbH | NOX-20.1-100mg | EPR 试剂(校准对照) |
| 去铁胺 | Noxygen Science Transfer and Diagnostics GmbH | NOX-09.1-100mg | EPR试剂 |
| 二乙基二硫代氨基甲酸盐(DETC) | Noxygen Science Transfer and Diagnostics GmbH | NOX-10.1-1g | EPR试剂 |
| 二氢乙啶 | 赛默飞世尔科技 | D11347 | 超氧阴离子探针 |
| 二甲基亚砜 | 默克/西格玛 | 34869 | 用于储备液的配制 |
| EPR 密封蜡板 | Noxygen Science Transfer and Diagnostics GmbH | NOX-A.3-VPM | EPR 耗材 |
| EPR级水 | Noxygen Science Transfer and Diagnostics GmbH | NOX-07.7.1-0.5L | EPR试剂 |
| 人血浆纤维蛋白原 | 默克/西格玛 | F4883 | 对于 μ- 载玻片包被 |
| FITC 抗人 CD41 抗体 | BioLegend | 303704 | 血小板特异性染色用于流式细胞术 |
| 玻璃比色皿 | Labmedics/Chronolog | P/N 312 | 血小板聚集仪孵育用耗材 |
| 激素胶原蛋白 | Labmedics/Chronolog | P/N 385 | 用于血小板刺激 |
| ImageJ | 美国国立卫生研究院(NIH) | NA | ImageJ 1.53t(Wayne Rasband) |
| 吲哚美辛 | 默克/西格玛 | I7378 | 用于血小板分离 |
| DURAN 50 微量移液器µl | Noxygen Science Transfer and Diagnostics GmbH | NOX-G.6.1-50µL | EPR 耗材 |
| 聚-L-赖氨酸盐酸盐 | 默克/西格玛 | P2658 | 对于 μ-载玻片包被 |
| 前列腺素E1(PGE1) | 默克/西格玛 | P5515 | 用于血小板分离 |
| 柠檬酸钠(4% w/v 溶液) | 默克/西格玛 | S5770 | 用于血小板分离 |
| 搅拌子(聚四氟乙烯涂层) | Labmedics/Chronolog | P/N 313 | 血小板聚集仪孵育用耗材 |
| 超氧化物歧化酶–聚乙二醇(PEG-SOD) | 默克/西格玛 | S9549 | 超氧阴离子清除剂(特异性对照) |
| 人血浆凝血酶 | 默克/西格玛 | T6884 | 用于血小板刺激和 μ- 载玻片涂覆 |
| VAS2870 | Enzo Life Science | BML-EI395 | NOX抑制剂 |
| 蔡司510 LSM共聚焦显微镜 | Zeiss | NA | 共聚焦显微镜 |
参考文献
- Vara, D., Cifuentes-Pagano, E., Pagano, P. J., Pula, G. A novel combinatorial technique for simultaneous quantification of oxygen radicals and aggregation reveals unexpected redox patterns in the activation of platelets by different physiopathological stimuli. Haematologica. 104 (9), 1879-1891 (2019).
- Fridovich, I. Superoxide radical: An endogenous toxicant. Annu Rev Pharmacol Toxicol. 23, 239-257 (1983).
- Keele, B. B., Mccord, J. M., Fridovich, I. Superoxide dismutase from Escherichia coli B. A new manganese-containing enzyme. J Biol Chem. 245 (22), 6176-6181 (1970).
- Berry, C. E., Hare, J. M. Xanthine oxidoreductase and cardiovascular disease: Molecular mechanisms and pathophysiological implications. J Physiol. 555, Pt 3 589-606 (2004).
- Kim, C., Kim, J. Y., Kim, J. H. Cytosolic phospholipase a(2), lipoxygenase metabolites, and reactive oxygen species. BMB Rep. 41 (2), 555-559 (2008).
- Armstead, W. M., Mirro, R., Busija, D. W., Leffler, C. W. Postischemic generation of superoxide anion by newborn pig brain. Am J Physiol. 255 (2), Pt 2 H401-H403 (1988).
- Mayer, B., et al. Nitric oxide synthase-catalyzed activation of oxygen and reduction of cytochromes: Reaction mechanisms and possible physiological implications. J Cardiovasc Pharmacol. 20, Suppl 12 S54-S56 (1992).
- Du, G., Mouithys-Mickalad, A., Sluse, F. E. Generation of superoxide anion by mitochondria and impairment of their functions during anoxia and reoxygenation in vitro. Free Radic Biol Med. 25 (9), 1066-1074 (1998).
- Turrens, J. F. Mitochondrial formation of reactive oxygen species. J Physiol. 552, Pt 2 335-344 (2003).
- Jiang, F., Zhang, Y., Dusting, G. J. Nadph oxidase-mediated redox signaling: Roles in cellular stress response, stress tolerance, and tissue repair. Pharmacol Rev. 63 (1), 218-242 (2011).
- Wang, Z., et al. The role of mitochondria-derived reactive oxygen species in hyperthermia-induced platelet apoptosis. PLoS One. 8 (9), e75044(2013).
- Wachowicz, B., Olas, B., Zbikowska, H. M., Buczynski, A. Generation of reactive oxygen species in blood platelets. Platelets. 13 (3), 175-182 (2002).
- Vara, D., et al. Nadph oxidases are required for full platelet activation in vitro and thrombosis in vivo but dispensable for plasma coagulation and hemostasis. Arterioscler Thromb Vasc Biol. 41 (2), 683-697 (2021).
- Violi, F., Pignatelli, P. Platelet nox, a novel target for anti-thrombotic treatment. Thromb Haemost. 111 (5), 817-823 (2014).
- Begonja, A. J., et al. Platelet NAD(P)H-oxidase-generated ros production regulates alphaiibbeta3-integrin activation independent of the NO/CGMP pathway. Blood. 106 (8), 2757-2760 (2005).
- Vara, D. S., et al. Autocrine amplification of integrin αIIbβ3 activation and platelet adhesive responses by deoxyribose-1-phosphate. Thromb Haemost. 109 (6), 1108-1119 (2013).
- Essex, D. W. The role of thiols and disulfides in platelet function. Antioxid Redox Signal. 6 (4), 736-746 (2004).
- Arthur, J. F., et al. Ligand binding rapidly induces disulfide-dependent dimerization of glycoprotein vi on the platelet plasma membrane. J Biol Chem. 282 (42), 30434-30441 (2007).
- Arthur, J. F., Gardiner, E. E., Kenny, D., Andrews, R. K., Berndt, M. C. Platelet receptor redox regulation. Platelets. 19 (1), 1-8 (2008).
- Kim, K., Li, J., Tseng, A., Andrews, R. K., Cho, J. Nox2 is critical for heterotypic neutrophil-platelet interactions during vascular inflammation. Blood. 126 (16), 1952-1964 (2015).
- Hosseini, E., Solouki, A., Roudsari, Z. O., Kargar, F., Ghasemzadeh, M. Reducing state attenuates ectodomain shedding of GPVI while restoring adhesion capacities of stored platelets: Evidence addressing the controversy around the effects of redox condition on thrombosis. J Thromb Thrombolysis. 50 (1), 123-134 (2020).
- Jang, J. Y., et al. Reactive oxygen species play a critical role in collagen-induced platelet activation via SHP-2 oxidation. Antioxid Redox Signal. 20 (16), 2528-2540 (2014).
- Beckman, J. S., Koppenol, W. H. Nitric oxide, superoxide, and peroxynitrite: The good, the bad, and ugly. Am J Physiol. 271 (5), Pt 1 C1424-C1437 (1996).
- Koppenol, W. H., Kissner, R., Beckman, J. S. Syntheses of peroxynitrite: To go with the flow or on solid grounds. Methods Enzymol. 269, 296-302 (1996).
- Cammisotto, V., et al. Nox2-mediated platelet activation by glycoprotein (GP) VI: Effect of rivaroxaban alone and in combination with aspirin. Biochem Pharmacol. 163, 111-118 (2019).
- Yang, M., et al. Platelet CD36 promotes thrombosis by activating redox sensor ERK5 in hyperlipidemic conditions. Blood. 129 (21), 2917-2927 (2017).
- Yang, M., et al. Platelet CD36 signaling through ERK5 promotes caspase-dependent procoagulant activity and fibrin deposition in vivo. Blood Adv. 2 (21), 2848-2861 (2018).
- Freedman, J. E. Oxidative stress and platelets. Arterioscler Thromb Vasc Biol. 28 (3), s11-s16 (2008).
- Masselli, E., et al. ROS in platelet biology: Functional aspects and methodological insights. Int J Mol Sci. 21 (14), 4866(2020).
- Madamanchi, N. R., Vendrov, A., Runge, M. S. Oxidative stress and vascular disease. Arterioscler Thromb Vasc Biol. 25 (1), 29-38 (2005).
- Riemersma, R. A., et al. Risk of angina pectoris and plasma concentrations of vitamins a, c, and e and carotene. Lancet. 337 (8732), 1-5 (1991).
- Rimm, E. B., et al. Vitamin E consumption and the risk of coronary heart disease in men. N Engl J Med. 328 (20), 1450-1456 (1993).
- Zhang, W., Zheng, Y., Yan, F., Dong, M., Ren, Y. Research progress of quercetin in cardiovascular disease. Front Cardiovasc Med. 10, 1203713(2023).
- Russell, C., Keshavamurthy, S., Saha, S. Nutraceuticals in the management of cardiovascular risk factors: Where is the evidence. Cardiovasc Hematol Disord Drug Targets. 21 (3), 150-161 (2021).
- Rotariu, D., et al. Oxidative stress - complex pathological issues concerning the hallmark of cardiovascular and metabolic disorders. Biomed Pharmacother. 152, 113238(2022).
- Hosseini, E., Ghasemzadeh, M., Atashibarg, M., Haghshenas, M. R. O. S. scavenger, n-acetyl-l-cysteine and NOX specific inhibitor, VAS2870 reduce platelets apoptosis while enhancing their viability during storage. Transfusion. 59 (4), 1333-1343 (2019).
- Hosseini, E., Nodeh, F. K., Ghasemzadeh, M. Gamma irradiation induces a pro-apoptotic state in longer stored platelets, without progressing to an overt apoptosis by day 7 of storage. Apoptosis. 28 (7-8), 1141-1153 (2023).
- Griendling, K. K., et al. Measurement of reactive oxygen species, reactive nitrogen species, and redox-dependent signaling in the cardiovascular system: A scientific statement from the American heart association. Circ Res. 119 (5), e39-e75 (2016).
- Murphy, M. P., et al. Guidelines for measuring reactive oxygen species and oxidative damage in cells and in vivo. Nat Metab. 4 (6), 651-662 (2022).
- Hempel, S. L., Buettner, G. R., O'malley, Y. Q., Wessels, D. A., Flaherty, D. M. Dihydrofluorescein diacetate is superior for detecting intracellular oxidants: Comparison with 2',7'-dichlorodihydrofluorescein diacetate, 5(and 6)-carboxy-2',7'-dichlorodihydrofluorescein diacetate, and dihydrorhodamine 123. Free Radic Biol Med. 27 (1-2), 146-159 (1999).
- Kalyanaraman, B., et al. Measuring reactive oxygen and nitrogen species with fluorescent probes: Challenges and limitations. Free Radic Biol Med. 52 (1), 1-6 (2012).
- Burkitt, M. J., Wardman, P. Cytochrome c is a potent catalyst of dichlorofluorescin oxidation: Implications for the role of reactive oxygen species in apoptosis. Biochem Biophys Res Commun. 282 (1), 329-333 (2001).
- Rota, C., Fann, Y. C., Mason, R. P. Phenoxyl free radical formation during the oxidation of the fluorescent dye 2',7'-dichlorofluorescein by horseradish peroxidase. Possible consequences for oxidative stress measurements. J Biol Chem. 274 (40), 28161-28168 (1999).
- Rota, C., Chignell, C. F., Mason, R. P. Evidence for free radical formation during the oxidation of 2'-7'-dichlorofluorescin to the fluorescent dye 2'-7'-dichlorofluorescein by horseradish peroxidase: Possible implications for oxidative stress measurements. Free Radic Biol Med. 27 (7-8), 873-881 (1999).
- Rodig, S. J. Attaching suspension cells to slides for staining. Cold Spring Harb Protoc. 2020 (12), (2020).
- Abubaker, A. A., Vara, D., Eggleston, I., Canobbio, I., Pula, G. A novel flow cytometry assay using dihydroethidium as redox-sensitive probe reveals NADPH oxidase-dependent generation of superoxide anion in human platelets exposed to amyloid peptide beta. Platelets. 30 (2), 181-189 (2019).
- Gaspar, R. S., et al. Protein disulphide isomerase and NADPH oxidase 1 cooperate to control platelet function and are associated with cardiometabolic disease risk factors. Antioxidants (Basel). 10 (3), 497(2021).
- Gaspar, R. S., Ferreira, P. M., Mitchell, J. L., Pula, G., Gibbins, J. M. Platelet-derived extracellular vesicles express NADPH oxidase-1 (NOX-1), generate superoxide and modulate platelet function. Free Radic Biol Med. 165, 395-400 (2021).
- Vara, D., et al. NADPH oxidase 1 is a novel pharmacological target for the development of an antiplatelet drug without bleeding side effects. FASEB J. 34 (10), 13959-13977 (2020).
- Lopes-Pires, M. E., et al. Zinc regulates reactive oxygen species generation in platelets. Platelets. 32 (3), 368-377 (2021).
- Zielonka, J., Kalyanaraman, B. Hydroethidine- and mitoSOX-derived red fluorescence is not a reliable indicator of intracellular superoxide formation: Another inconvenient truth. Free Radic Biol Med. 48 (8), 983-1001 (2010).
- Linden, M. D. Platelet flow cytometry. Methods Mol Biol. 992, 241-262 (2013).
- Kauffman, M. E., et al. MitoSOX-based flow cytometry for detecting mitochondrial ROS. React Oxyg Species (Apex). 2 (5), 361-370 (2016).
- Sonkar, V. K., et al. NOX2 NADPH oxidase is dispensable for platelet activation or arterial thrombosis in mice. Blood Adv. 3 (8), 1272-1284 (2019).
- Dikalov, S. I., Kirilyuk, I. A., Voinov, M., Grigor'ev, I. A. EPR detection of cellular and mitochondrial superoxide using cyclic hydroxylamines. Free Radic Res. 45 (4), 417-430 (2011).
- Dikalov, S. I., Polienko, Y. F., Kirilyuk, I. Electron paramagnetic resonance measurements of reactive oxygen species by cyclic hydroxylamine spin probes. Antioxid Redox Signal. 28 (15), 1433-1443 (2018).
重印与许可
