本文介绍了基于重组酶的等温扩增反应和基于成簇规律间隔短回文重复序列(CRISPR)反应的预混、冻干试剂的逐步制备方法,可用于检测传染病病原体的核酸生物标志物或其他感兴趣的遗传标志物。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
基于成簇规律间隔短回文重复序列(CRISPR)的分子诊断技术具有高诊断准确性,且具备适用于现场即时检测(point-of-care)的特点,例如结果周转时间短、读取方式简便直观,且无需复杂仪器。然而,由于该检测反应组分较多且需手动操作步骤繁杂,限制了其在即时检测场景中的便捷应用。本文提供了一种经过优化的、分步操作的实验方案,用于实现对疾病病原体和遗传标志物的稳定检测,该方案结合了基于重组酶的等温扩增技术和预混并冻干处理的CRISPR检测试剂,试剂以即用型、易储存的形式制备。预混并冻干的试剂可直接加水复溶后立即使用,并保持高效的扩增与检测性能。同时,我们还针对CRISPR诊断中预混冻干试剂在制备与使用过程中常见问题提供了故障排查指南,以提升该检测平台在更广泛的诊断与基因检测领域的可及性。
引言
基于CRISPR的核酸检测技术于2017年首次被报道,用于检测核酸生物标志物1,2,3,4,此后已在多个国家被证实为新一代诊断技术,并已有获得美国食品药品监督管理局(FDA)批准的检测方法,尤其适用于严重急性呼吸综合征冠状病毒2(SARS-CoV-2)RNA的检测5,6,7,8。除2019冠状病毒病(COVID-19)外,该技术还被证明可有效检测多种病毒和细菌9,10,11,12,13,以及遗传性疾病相关的突变和缺失,并可通过工程化手段用于检测蛋白质和小分子生物标志物2,12。基于CRISPR的诊断技术通常将等温扩增方法——如重组酶聚合酶扩增(RPA)或环介导等温扩增(LAMP)14,15——与基于CRISPR的检测相结合,后者利用RNA引导的CRISPR相关(Cas)酶在识别靶标后产生“附带”内切核酸酶活性3。等温扩增与基于CRISPR的检测双重结合赋予了该技术多项理想特性,尤其是诊断准确性接近作为金标准的聚合酶链式反应(PCR),并具备多重检测能力,可识别微小序列差异,包括单核苷酸多态性1,9。
然而,最精确的基于CRISPR的诊断方法包含多个组分和步骤,对于非专业人员或在即时检测(POC)条件下操作可能较为复杂。为解决将高精度CRISPR诊断技术推广至POC场景的挑战,我们开发了预混、冻干、基于重组酶的等温扩增与基于CRISPR的检测反应体系的制备方案,这些方案易于使用和储存7。这些方案可作为现有优秀CRISPR诊断方案的补充14,后者包含了CRISPR诊断所需生化组分的制备方法7、设计指南1,以及采用其他等温扩增技术2,14,15,16和不同Cas酶12的配方。最终,我们希望基于CRISPR的诊断技术能够在需要便携式且无需仪器分析的场景中,实现快速、低成本且高灵敏度的核酸检测1,9,17。
在我们的实验方案中,主要采用重组酶聚合酶扩增(RPA)与基于Cas13的检测相结合的方法。RPA在接近环境温度(37–42 °C)下进行,因此对能量和设备的要求较低。其他等温扩增反应则需要更高的温度(环介导等温扩增(LAMP),60–65 °C;链置换扩增(SDA),60 °C;指数扩增反应(EXPAR),55 °C;解旋酶依赖性扩增(HDA),65 °C)2。与LAMP引物不同,RPA引物的设计并不复杂,并可扩展用于多重扩增7,9,14。尽管在实际操作中,RPA实现两个以上目标的多重扩增较为困难,但已有明确的指导原则,可用于设计多重RPA引物以最大限度减少相互干扰18。
尽管扩增产物残留污染在两步法工作流程中仍是一个严重问题,但RPA产生的扩增片段较小,相较于LAMP产生的大片段串联重复扩增子,引起残留污染的可能性更低14。RPA引物的设计可遵循标准指南14:通常长度为25-35个核苷酸,熔解温度在54至67 °C之间。扩增片段的大小应小于200个碱基对。可在RPA中加入逆转录酶(RT),以实现对RNA模板的扩增;在逆转录-RPA(RT-RPA)中,通常还需添加少量核糖核酸酶H(RNase H),以帮助解离形成的RNA:DNA杂合链,促进扩增反应的进行5,19。为了实现基于Cas13检测的T7转录,可将T7 RNA聚合酶启动子序列置于正向RPA引物的5'端。
RPA 扩增产物生成后,可通过 crRNA 编程的 Cas 酶进行检测。在可用于扩增产物检测的多种 Cas 酶中,我们倾向于选择靶向 RNA 的 Cas13 变体,因其具有较高的切割活性1以及明确表征的多核苷酸切割偏好性7,9,后者可用于实现多重检测。Cas13 的 crRNA 序列设计为与扩增出的 RNA 目标位点互补(反向互补),包含间隔序列和直接重复序列(DR)。crRNA 序列与 RPA 引物不应重叠,以避免 Cas 酶对非目标扩增产物的非特异性检测,从而降低背景信号和假阳性结果14。
基于Cas的检测依赖于不同的检测方式来监测报告核酸分子的切割(基于Cas13的反应中为RNA报告分子)1,2,14不同的检测方式包括比色法、电化学读出、荧光、测序读出以及侧向流动试纸条2我们重点关注多种荧光染料和报告分子(如氰基5(Cy5)、罗丹明X(ROX)和羧基荧光素(FAM))的荧光信号输出,这些荧光分子可被单一蓝色LED光源有效激发,并通过酶标仪或实时荧光定量PCR仪检测其荧光信号。7,14此外,荧光检测信号易于设置,可实现连续监测,从而进行实时定量。多重RPA预扩增与基于Cas酶的多重Cas13检测可结合多色荧光读出,实现对多个遗传靶标的同步检测2,7.
在本实验方案中,我们首先通过将RNA样本加入冻干形式的RT-RPA试剂中进行等温扩增(图1)。在RT-RPA过程中,生成的双链DNA扩增子会接入T7启动子。随后,将RPA产物转移至含有T7 RNA聚合酶的冻干Cas13检测体系中。该检测反应利用T7 RNA聚合酶将DNA扩增子转录为RNA,进而可通过crRNA编程的Cas13进行检测。当Cas13被靶标激活后,会切割报告分子并产生可检测的荧光信号2,7,14。尽管本方案中所描述的检测基于Leptotrichia wadei(LwaCas13a),但也可扩展为利用正交的Cas13和Cas12酶实现最多四种靶标的同步多重检测7,9。RPA扩增与基于Cas的检测反应亦可合并于单管中进行,但灵敏度会有所降低14。
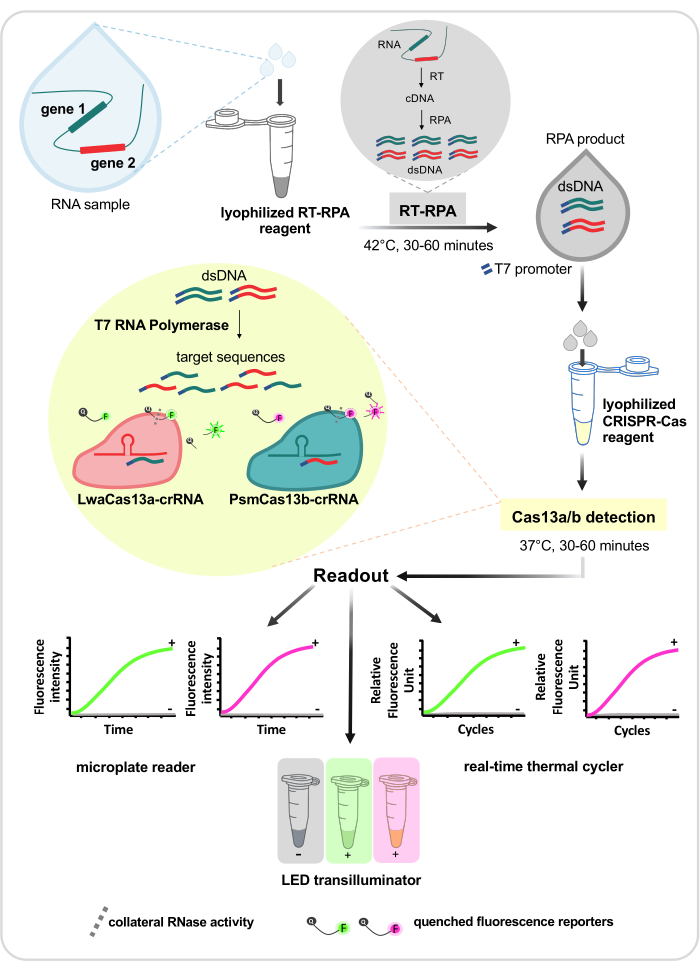
图1:基于CRISPR的检测流程。该流程展示了对两个目标基因的检测过程。首先,利用RPA对DNA目标中的感兴趣区域进行等温扩增;当检测RNA目标时,可采用逆转录(RT-RPA)反应。随后,T7转录将双链DNA扩增子转化为RNA,这些RNA可被Cas13-crRNA复合物识别,一旦结合目标序列,即可激活其附带的RNase活性。淬灭型荧光报告分子的切割将产生荧光信号,可通过酶标仪监测、LED透射仪观察,或在实时荧光定量PCR仪中使用。缩略语:CRISPR = 成簇规律间隔短回文重复序列;RT = 逆转录;RPA = 重组酶聚合酶扩增;Cas = CRISPR相关蛋白;LED = 发光二极管。 请点击此处查看此图的放大版本。
本文所介绍方案的关键特征在于冻干用预混制剂的配方设计。预混可简化反应使用过程并提高可重复性,但RPA和基于Cas的检测体系中的许多组分——特别是逆转录组分以及某些不稳定的辅因子(如ATP)——在溶液状态下并不稳定。因此,我们设计的预混溶液可进行冷冻干燥,以便长期保存、便于运输和现场部署1,9,20。预混并冻干的试剂还有助于提高检测灵敏度,因为可通过加入更大体积的样本(从而增加DNA/RNA投入量)来复溶反应体系10。在我们的配方中,主要使用海藻糖21作为冻干RPA和基于Cas的检测反应中的冷冻保护剂7。除了保护试剂稳定性外,海藻糖还能通过增强酶的稳定性16,22,23,24以及降低双链DNA的熔解温度23来促进反应进行。除海藻糖外,对其他稳定剂5,7,21,25,26的进一步探索,可能为不同应用场景开发出更优的配方。
访问受限。请登录或开始试用以查看此内容。
方案
1. 冻干RT-RPA预混试剂的制备
- 设备准备
- 准备一个液氮杜瓦瓶或托盘,用于反应体系的速冻。向杜瓦瓶或托盘中加入液氮。
- 冷冻干燥机
- 检查排水管和腔体内部是否有冷凝水;如有需要,请清除水分。
- 使用RNase去污染溶液清洁腔体内部及1.5 mL微量离心管金属架,随后用70%乙醇擦拭。
- 关闭腔体门和真空释放阀。
- 开启冷冻干燥机。
- 手动将搁板温度设置为-30 °C。
- 分子生物学设备
- 使用RNase去污染溶液清洁以下物品:移液器、移液器吸头架、涡旋混合器、小型离心机和永久性记号笔。
- 使用自来水清洁以下物品,然后用擦拭纸擦干:微量离心管塑料架和用于盛放冰的泡沫盒。
- 准备一个加热块(用于溶解/再溶解三甘氨酸溶液),先用RNase去污染溶液和70%乙醇清洁,然后打开并设定温度为60 °C。
- 预混RPA反应体系的制备
注意:此配方适用于10个反应(使用三个RPA冻干颗粒)。- 使用前检查三甘氨酸溶液中是否存在沉淀。若存在沉淀,请在60 °C孵育并充分混匀以溶解沉淀。在加入其他热敏感试剂前,需先将三甘氨酸溶液冷却。
注意:若试管长时间置于室温下,容易形成沉淀。 - 从冰箱中取出三管RPA冻干颗粒条带;轻轻敲击条带管,使其紧贴实验台面,以使白色颗粒脱落。
- 将三个颗粒全部转移至一个1.5 mL微量离心管A中。
- 用25 µL无核酸酶水冲洗条带管中残留的RPA粉末,并将冲洗液转移至一个新的1.5 mL微量离心管B中。
- 向主混合液管B中加入10 µL的0.57 M三甘氨酸溶液和10 µL引物混合液(各10 µM)。
- 涡旋混匀管B,然后短暂离心并置于冰上。
- 向主混合液管B中加入28.4 µL的5x RPA缓冲液(由500 µL 50% (w/v) PEG20000、250 µL 1 M Tris pH 7.4和100 µL 100 mM二硫苏糖醇(DTT)配制而成),并通过多次剧烈轻敲或振荡充分混匀。
注意:我们采用这种方式配制溶液,以便在加入所有成分溶解RPA颗粒之前,有助于稀释/降低主混合液管中PEG的黏度。 - 将步骤1.2.3中收集于管A的颗粒转移至主混合液管B中,然后反复倒置主混合液管以混匀。观察溶液是否呈现均一、单相状态(溶液会略显浑浊),随后将管子置于冰上。
注意:若混匀不充分,PEG可能导致溶液/悬浮液发生相分离。 - 向主混合液管中加入0.71 µL的200 Unit/µL逆转录酶(RT)和2.84 µL的5 Unit/µL RNase H。轻柔地多次轻敲或上下倒置主混合液管。短暂离心后置于冰上。
注意:由于RT和RNase H对剪切力敏感,因此我们在前期剧烈混匀步骤之后才加入这些酶;加入RT/RNase H后不再进行涡旋混匀。 - 将主混合液分装至10个预冷的1.5 mL离心管中,每管8.4 µL,并将这些管子置于冰上。操作时,将移液器吸头插入主混合液中,缓慢而稳定地吸取液体,以防止气泡产生并确保体积准确。将主混合液分配至预冷的1.5 mL离心管中。
注意:根据经验,当分装8.4 µL后,主混合液管中通常会残留约1–2 µL悬浮液。实验人员可略微调低分装体积,以确保所有10个反应均有足够的试剂。处理黏稠溶液时应采用正确的移液技术。 - 完成分装后,将离心管放入浸没于液氮中的金属架中,准备进行冻干。让离心管在液氮中浸没5分钟。
注意:由于冻干可去除多余液体,使我们能够加入更多的DNA/RNA样本,从而提高检测灵敏度。冻干后的预混RPA反应体系可在-20 °C保存8个月。若同一实验使用同一批次制备的RPA主混合液,冻干有助于提高实验重复性,因此制备较大批次也有益处。
- 使用前检查三甘氨酸溶液中是否存在沉淀。若存在沉淀,请在60 °C孵育并充分混匀以溶解沉淀。在加入其他热敏感试剂前,需先将三甘氨酸溶液冷却。
- 冻干
- 在冷冻干燥机上检查冷阱和搁板温度。如有必要,请等待至冷阱温度达到-75 ± 5 °C,搁板温度达到-30 ± 1 °C。
- 用一张擦拭纸覆盖金属架上的开口离心管,将金属架连同开口管一起放入冷冻干燥机的搁板上,并关闭搁板门。
- 选择表1所示程序并按下开始。在二次干燥步骤(20 °C,<0.1 mbar;通过将该步骤时间设为"无限"使温度无限维持)进行30分钟后,按下停止程序。
注意:我们让离心管在冷冻干燥机内自然升温,以防止水分冷凝。 - 通过打开真空释放阀释放压力,然后从搁板上取出金属架。立即盖紧管盖,并将冻干反应物在-20 °C保存。
注意:冻干的RPA和CRISPR-Cas13a预混反应体系可在-20 °C保存8个月。
2. 冻干CRISPR-Cas13a预混检测试剂的制备
注意:按照步骤 1.1 进行设备准备。
- CRISPR-Cas13a 预混反应体系的制备(10 个反应)
- 从储存条件中取出以下物品并置于冰上:10 µL LwaCas13a(实验室自制7,8,14)(2 mg/mL)、Cas 储存缓冲液、10 ng/µL(225 nM)crRNA、25 mM rNTP、50 单位/µL T7 RNA 聚合酶、2 µM FAM 荧光报告探针。
- 将 10 µL 浓度为 2 mg/mL 的 LwaCas13a 加入 148.8 µL Cas 储存缓冲液(50 mM Tris-HCl pH 7.4,0.6 M NaCl,5% 甘油,2 mM DTT)中,配制成终浓度为 126 µg/mL(900 nM)的 LwaCas13a 工作液。
- 按如下组分配制 CRISPR-Cas13a 主混合液:71 µL 无 RNase 水、20 µL 400 mM Tris pH 7.4、20 µL 60%(w/v)海藻糖、10 µL 10 ng/µL(225 nM)crRNA(此处靶向 SARS-CoV-2 的 s 和 n 基因)、8 µL 100 mM rNTP 混合液(每种 25 mM)、6 µL 50 单位/µL T7 RNA 聚合酶、25 µL 2 µM FAM 荧光报告探针,以及 10 µL 126 µg/mL(900 nM)LwaCas13a。通过反复倒置混匀主混合液管,随后离心收集。
- 将 17 µL 主混合液分装至 10 个置于冰上的 1.5 mL 离心管中。将离心管放入置于液氮中的试管架内,使离心管在液氮中浸没冷冻 5 分钟。
- 冻干处理
- 在冷冻干燥机上检查冷凝器和搁板温度,待冷凝器温度降至 -75 ± 5 °C,搁板温度降至 -30 ± 1 °C 后开始操作。
- 将离心管放入冷冻干燥机中。选择 表 1 所示程序并点击 开始。在二次干燥阶段(25 °C,<0.1 mbar;通过将该步骤时间设为 "infinite" 使温度无限维持)进行 30 分钟后,点击 停止 程序。
- 打开真空释放阀释放压力,并将试管架从搁板上取出。立即盖紧管盖,并将冻干后的反应体系于 -20 °C 保存。
注:冻干后的 RPA 和 CRISPR-Cas13a 预混试剂可在 -20 °C 下保存 8 个月。
3. RT-RPA 核酸扩增
注意:为防止交叉污染,应将工作区域和移液器分别用于扩增前、加样和扩增后操作。我们建议使用带滤芯的移液器吸头。
- 将温控振荡孵育器预热至 42 °C。
- 向含有冻干预混 RT-RPA 反应颗粒(来自第 1 部分)的离心管管壁加入 1 µL 醋酸镁(Mg(OAc)2)和醋酸钾(KOAc)溶液混合液(含 196 mM Mg(OAc)2 和 1.5 M KOAc)。
注意:添加 Mg(OAc)2 和 KOAc 混合液的小技巧:将液滴加至离心管约 1 mL 刻度线处。此处液滴清晰可见,且在关闭管盖或其他操作时不易丢失。通过短暂离心使液滴沉降至管底后,扩增反应即开始。若同时处理多个反应,可同时启动扩增。 - 加入 12.4 µL RNA 样本(或对照样本)以重悬 RT-RPA 反应颗粒。
注意:加样顺序应为阴性样本/阴性对照、待测 RNA/DNA、阳性样本/阳性对照。 - 为启动 RT-RPA 反应,使用台式小型离心机在室温下短暂离心 3 秒,使步骤 3.2 和 3.3 中加入的溶液沉降至管底。
- 轻轻敲击离心管以混匀,再进行一次短暂离心,持续 3 秒。
- 将反应体系置于预热的加热模块或温控振荡孵育器中,在 42 °C 下孵育 60 分钟。
- 反应结束后,取出反应管并立即置于冰上,随后进行 CRISPR-Cas 检测步骤(第 4 部分)。
注意:RPA 扩增产物可立即用于检测反应,也可在 4 °C 下保存数天,或在 -20 °C 下保存数月。
4. CRISPR-Cas13 核酸检测
- 开启荧光酶标仪,将加热温度设置并预热至 37 °C,并选择 表 2 中所示的程序。
- 将一块 384 孔板置于冰上。
- 向冻干的 CRISPR-Cas 预混检测反应液(来自第 2 节)中加入 17 µL 的 8 mM 氯化镁溶液,重悬反应液;通过轻轻敲击管壁混匀,然后短暂离心 3 秒,并将管子放回冰上。
- 将 18 µL 重悬后的反应混合液转移至冰上预冷的 384 孔板的每个孔中。
- 向每个反应孔中加入 2 µL 在第 3 节中制备的 RPA 产物。
- 将孔板从冰上取出,迅速放入预热的荧光酶标仪中,并按下 开始 按钮。
注意:将 384 孔板置于冰上,是为了在将其转移至预热的荧光酶标仪时,能够同步启动各孔的反应。
访问受限。请登录或开始试用以查看此内容。
结果
我们重点展示了针对SARS-CoV-2的s基因和n基因联合检测时FAM荧光信号生成的动力学特征,并阐述如何利用这些信息确定冻干预混反应体系的最佳条件。在所有实验中,我们均包含了Ct值明显低于测定检测限(LoD)的样本(Ct ~31–33),以及Ct值处于检测限的样本(Ct ~35–37)7,以区分不同方案的灵敏度差异。
对于冻干预混的逆转录重组酶介导的扩增(RT-RPA)反应,我们发现预混体系中加入KOAc会降低反应的灵敏度(图2A)。因此,我们从预混反应体系中省略了KOAc,并在加入RNA样本后,随反应引发剂Mg(OAc)2一同添加。我们还采用类似的检测方法确定了保护剂海藻糖的最佳浓度(图2B),以及三甘氨酸7在冻干RT-R...
访问受限。请登录或开始试用以查看此内容。
讨论
本实验方案中存在若干关键步骤。在区域划分方面,建议将核酸提取、预混液配制(扩增前区域)、加样以及扩增产物检测(扩增后区域)分别在独立的空间进行。每个区域应配备独立的工具和设备。严禁将某一区域的工具带入另一区域,尤其是禁止将扩增后区域的工具带入扩增前区域。工作区域的清洁至关重要:应使用RNase/DNase去污染溶液或3%次氯酸钠溶液,随后用70%乙醇或经高压灭菌的去离子水清洁工作台面、移液器、涡旋振荡器以及永久性记号笔。需清洗基础实验耗材及仪器的可拆卸部件,例如1.5 mL离心管塑料架和微型离心机的转子适配器。无核酸酶水既用作阴性对照,也作为反应组分,因此是一种易受污染的敏感试剂,若操作不当可能导致污染。因此,我们建议将无核酸酶水分装为小份,每份仅使用一次。
始终使用检测引物运行阴性对照反应,以检查是否存在污染。此外,为避免污染问题,我们建议在扩增前区域而非样品添加室中,通过加入无核酸酶水来制备阴性对照反应。乙酸镁-乙酸钾混合液应分装为小体积(约 20 µL/管),每管仅使用一次,以避免试剂被残留扩增产物污染。向冻干的RPA预混液中添加乙酸镁-乙酸钾混合液时,建议每次更换移液器吸头...
访问受限。请登录或开始试用以查看此内容。
披露
M.P. 和 C.U. 已在泰国就用于SARS-CoV-2 RNA多重检测的配方提交了专利申请。R.K. 宣布不存在利益冲突。
致谢
C.U. 感谢泰国科学、研究与创新部(Thailand Science Research and Innovation, TSRI)基础基金(2024 财年)以及 VISTEC-Siriraj 前沿研究中心(由暹罗商业银行资助)提供的经费支持,资助编号 FRB670026/0457。 R.K. 和 M.P. 分别获得 VISTEC 提供的研究生奖学金和研究助理基金支持。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 材料 | |||
| 甜菜碱溶液 | Sigma-Aldrich | B0300-1VL | |
| DEPC处理水 | Invitrogen | AM9915G | |
| 二硫苏糖醇(DTT) | Merck | 3870-25GM | |
| EpiScript逆转录酶 | Lucigen | ERT12925K | |
| Gly-Gly-Gly | Sigma-Aldrich | SIA-50239-1G | |
| LwaCas13a | 实验室自制 | 菌株名称:Leptotrichia wadei,缩写:Lwa,蛋白名称:LwaCas13a | |
| 氯化镁溶液,1M | Sigma-Aldrich | M1028-10X1ML | |
| NxGenT7 RNA聚合酶 | Lucigen | 30223-2 | |
| 聚乙二醇 | Sigma-Aldrich | 81300-1KG | |
| 乙酸钾溶液,5M | Sigma-Aldrich | 95843-100ML-F | |
| 核糖核苷酸溶液混合物 | NEB | N0466L | |
| 核糖核酸酶H | NEB | M0297L | |
| 蔗糖 | TCI | TCI-S0111-500G | |
| 海藻糖二水合物 | Sigma-Aldrich | SIA-90210-50G | |
| 三(羟甲基)氨基甲烷盐酸盐溶液,1M,pH 7.4 | Sigma-Aldrich | T2194-100ML | |
| TwistAmp Basic试剂盒 | TwistDx | TABAS03KIT | |
| 设备 | |||
| BluPAD双LED蓝光/白光透射仪 | Bio-Helix | BP001CU | |
| 双模块干浴器 | ELITE | 4-2-EL-02-220 | 型号:EL-02 |
| 荧光微孔板读板仪 | Tecan | 30050303 | 型号:Infinite 200 Pro |
| 冷冻干燥机 | LABCONCO | 794001030 | FreeZone Triad台式冷冻干燥机 |
| 384孔微孔板 | Greiner | GDE0784076 | F型底,小体积,Hibase,中等结合力,黑色 |
| 实时荧光定量热循环仪(CFX Connect Real-Time PCR系统) | Bio-Rad | 185-5201 | 型号:CFX Connect光学模块 |
| 寡核苷酸 | |||
| s基因正向RPA引物 | IDT | GAAATTAATACGACTCAC TATAGGGAGGTTTCAAAC TTTACTTGCTTTACATAGA | |
| s基因反向RPA引物 | IDT | TCCTAGGTTGAAGA TAACCCACATAATAAG | |
| n基因正向RPA引物 | IDT | GAAATTAATACGACTC ACTATAGGAACTTCTC CTGCTAGAATGGCTG | |
| n基因反向RPA引物 | IDT | CAGACATTTTGCTCTC AAGCTGGTTCAATC | |
| 靶向s基因的LwaCas13a-crRNA | Synthego | GAUUUAGACUACCCCAAAAAC GAAGGGGACUAAAACGCAGCA CCAGCUGUCCAACCUGAAGAAG | |
| 靶向n基因的LwaCas13a-crRNA | Synthego | GAUUUAGACUACCCCAAAAACG AAGGGGACUAAAACAAAGCAAG AGCAGCAUCACCGCCAUUGC | |
| FAM-polyU-IABkFQ报告探针 | IDT | 56-FAM/rUrUrUrUrU/3IABkFQ | |
| O-hannah_cytb_F RPA引物 | IDT | GAAATTAATACGACTCACTA TAGGGTACGGATGAACCATA CAAAACCTTCACGCAATCG | |
| O-hannah_cytb_R RPA引物 | IDT | AAGATCCATAGTAGATTC CTCGTGCGATGTGGATA | |
| synT7crRNA13a_ O_hannah | IDT | GCGCATCCATATTCTTCAT CTGCATTTAGTTTTAGTCC CCTTCGTTTTTGGGGTA GTCTAAATCCCCTATAGT GAGTCGTATTAATTTC |
参考文献
- Gootenberg, J. S., et al. Nucleic acid detection with CRISPR-Cas13a/C2c2. Science. 356 (6336), 438-442 (2017).
- Kaminski, M. M., Abudayyeh, O. O., Gootenberg, J. S., Zhang, F., Collins, J. J. CRISPR-based diagnostics. Nat Biomed Eng. 5 (7), 643-656 (2021).
- Makarova, K. S., Koonin, E. V. Annotation and classification of CRISPR-Cas systems. Methods Mol Biol. (1311), 47-75 (2015).
- Chen, J. S., et al. CRISPR-Cas12a target binding unleashes indiscriminate single-stranded DNase activity. Science. 360 (6387), 436-439 (2018).
- Arizti-Sanz, J., et al. Simplified Cas13-based assays for the fast identification of SARS-CoV-2 and its variants. Nat Biomed Eng. 6 (8), 932-943 (2022).
- Broughton, J. P., et al. CRISPR-Cas12-based detection of SARS-CoV-2. Nat Biotechnol. 38 (7), 870-874 (2020).
- Patchsung, M., et al. A multiplexed Cas13-based assay with point-of-care attributes for simultaneous COVID-19 diagnosis and variant surveillance. CRISPR J. 6 (2), 99-115 (2023).
- Patchsung, M., et al. Clinical validation of a Cas13-based assay for the detection of SARS-CoV-2 RNA. Nat Biomed Eng. 4 (12), 1140-1149 (2020).
- Gootenberg, J. S., et al. Multiplexed and portable nucleic acid detection platform with Cas13, Cas12a, and Csm6. Science. 360 (6387), 439-444 (2018).
- Lee, R. A., et al. Ultrasensitive CRISPR-based diagnostic for field-applicable detection of Plasmodium species in symptomatic and asymptomatic malaria. Proc Natl Acad Sci U S A. 117 (41), 25722-25731 (2020).
- Myhrvold, C., et al. Field-deployable viral diagnostics using CRISPR-Cas13. Science. 360 (6387), 444-448 (2018).
- Wu, H., et al. Versatile detection with CRISPR/Cas system from applications to challenges. Trends Analyt Chem. 135, 116150(2021).
- Yao, R., et al. CRISPR-Cas13a-based detection for bovine viral diarrhea virus. Front Vet Sci. 8, 603919(2021).
- Kellner, M. J., Koob, J. G., Gootenberg, J. S., Abudayyeh, O. O., Zhang, F. SHERLOCK: nucleic acid detection with CRISPR nucleases. Nat Protoc. 14 (10), 2986-3012 (2019).
- Selvam, K., et al. RT-LAMP CRISPR-Cas12/13-based SARS-CoV-2 detection methods. Diagnostics (Basel). 11 (9), 1646(2021).
- Carter, C., Akrami, K., Hall, D., Smith, D., Aronoff-Spencer, E. Lyophilized visually readable loop-mediated isothermal reverse transcriptase nucleic acid amplification test for detection Ebola Zaire RNA. J Virol Methods. 244, 32-38 (2017).
- Bhardwaj, P., Kant, R., Behera, S. P., Dwivedi, G. R., Singh, R. Next-generation diagnostic with CRISPR/Cas: Beyond nucleic acid detection. Int J Mol Sci. 23 (11), 6052(2022).
- Twistamp. Twistamp® assay design manual. , (2023).
- Qian, J., et al. An enhanced isothermal amplification assay for viral detection. Nat Commun. 11 (1), 5920(2020).
- Ghouneimy, A., Mahas, A., Marsic, T., Aman, R., Mahfouz, M. CRISPR-based diagnostics: Challenges and toward point-of-care applications. ACSSynth Biol. 12 (1), 1-16 (2023).
- Jones, K. L., Drane, D., Gowans, E. J. Long-term storage of DNA-free RNA for use in vaccine studies. Biotechniques. 43 (5), 675-681 (2007).
- Fang, X., et al. Real-time monitoring of strand-displacement DNA amplification by a contactless electrochemical microsystem using interdigitated electrodes. Lab Chip. 12 (17), 3190-3196 (2012).
- Mok, E., Wee, E., Wang, Y., Trau, M. Comprehensive evaluation of molecular enhancers of the isothermal exponential amplification reaction. Sci Rep. 6 (1), 37837(2016).
- Wan, J., et al. Development of a test kit for visual loop-mediated isothermal amplification of Salmonella in spiked ready-to-eat fruits and vegetables. J Microbiol Methods. 169, 105830(2020).
- Curti, L. A., et al. Evaluation of a lyophilized CRISPR-Cas12 assay for a ensitive, specific, and rapid detection of SARS-CoV-2. Viruses. 13 (3), 420(2021).
- Joung, J., et al. Detection of SARS-CoV-2 with SHERLOCK one-pot testing. N Engl J Med. 383 (15), 1492-1494 (2020).
访问受限。请登录或开始试用以查看此内容。
重印与许可
