本方案描述了一种转染方法 Naegleria gruberi 滋养体携带一种在连续传代过程中保持稳定的构建体 体外以及通过包囊化和脱囊过程。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
所有Naegleria滋养体的核糖体基因均维持在一个闭合环状的染色体外核糖体DNA(rDNA)包含元件(CERE)中。尽管目前对CERE了解甚少,但对三种Naegleria物种进行的完整基因组序列分析明确表明,其核基因组中不存在rDNA顺反子。此外,在N. gruberi的CERE中已定位到单一的DNA复制起点,支持了CERE独立于核基因组进行复制的假说。这一CERE特性提示,有可能利用工程化CERE将外源蛋白导入Naegleria滋养体中。作为探索CERE在Naegleria中作为载体应用的第一步,我们建立了一种将克隆至pGEM7zf+载体中的N. gruberi CERE分子克隆(pGRUB)转染N. gruberi的实验方案。转染后,pGRUB在N. gruberi滋养体中至少连续传代七次仍可被检测到,并且能够通过包囊和脱囊过程稳定存在。作为对照,将不含N. gruberi序列的骨架载体pGEM7zf+(pGEM)转染滋养体。转染进入N. gruberi后,pGEM在第一次传代后即无法检测到,表明其不能在真核生物中复制。这些研究描述了一种针对Naegleria滋养体的转染方案,并证明pGRUB中的细菌质粒序列并不影响转染后CERE克隆在细胞内的成功转染与复制。此外,该转染方案对于确定驱动CERE在滋养体中复制所需的最小序列,以及鉴定非核糖体序列(NRS)中的调控区域将至关重要。
引言
Naegleria 属包含超过 45 个物种,尽管目前可能尚未鉴定出该属的所有成员1。Naegleria 可以以不同形态存在:滋养体(阿米巴)、鞭毛体,或在资源严重受限时以包囊形式存在1,2,3,4。Naegleria 属因其一个特别危险的物种——Naegleria fowleri 而广为人知,该物种被称为“食脑阿米巴”(综述见1,2,3,4,5,6,7),是几乎无一幸免的原发性阿米巴脑膜脑炎的致病原因。
Naegleria 将其核糖体DNA(rDNA)编码在位于核仁中的CERE上。对三种Naegleria物种基因组的完整测序证实,其核基因组中不存在rDNA8,9,10,11。根据目前有限的全长CERE序列数据,CERE的长度范围约为10 kbp至18 kbp。每种Naegleria物种的每个细胞约含有4,000个CERE,每个CERE携带一个rDNA顺反子(包含5.8S、18S和28S核糖体DNA)12,13,14。除rDNA外,每个CERE还含有一段较长的非rDNA序列(NRS)。不同物种间的CERE大小存在差异,这种差异主要源于NRS长度的变化,而rDNA序列在该属中高度保守1,15,16,17,18,19,20。N. gruberi CERE的NRS区域内已定位到单一的DNA复制起点21,这为Naegleria CERE独立于核基因组进行复制的假说提供了有力支持。
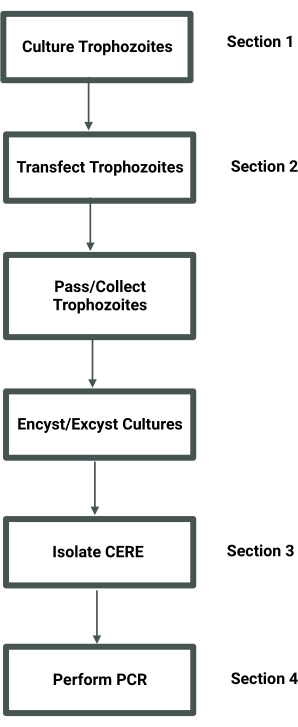
N. gruberi 是一种常用于研究的非致病性阿米巴 纳格里虫 生物学。我们开发了一种用于转化的实验方法 N. gruberi 同一物种的CERE克隆滋养体,以验证该假设 纳格里虫 阿米巴原虫在滋养体内容忍并独立复制CERE。这是通过转化实现的 N. gruberi 全长克隆 N. gruberi 将CERE转化为滋养体,并通过聚合酶链式反应(PCR)追踪供体CERE克隆的命运。该方案的总体概述如下所示: 图1本文展示的数据表明,供体克隆在组织培养中至少可检测到连续七次传代,并能通过包囊和脱囊过程得以维持。这些研究为解析CERE复制机制以及探索其作为转染载体的应用提供了基础。 纳格里虫.
访问受限。请登录或开始试用以查看此内容。
方案
本研究中使用的物种、试剂和设备的详细信息列在材料表中。17,004个碱基对的pGRUB构建体序列见补充文件1。
1. 滋养体培养
- 将冻存的 N. gruberi 滋养体在 37 °C 下解冻 3 分钟。
- 将滋养体接种至 T25 培养瓶中,使用含 10% 胎牛血清的改良蛋白胨/酵母提取物/核酸/叶酸/血红素(PYNFH)培养基,并添加 2% 缓冲液(磷酸氢二钠、磷酸二氢钾)。
- 在 25 °C 下培养滋养体,直至汇合度达约 80%,此时细胞呈现阿米巴样形态(图 2A)。
注意:初次从冻存状态复苏滋养体培养物时,T25 培养瓶可能需要 5–7 天才能达到完全汇合。每 3–4 天倾去培养基,并更换新鲜培养基。 - 将汇合的培养瓶置于冰上 5–10 分钟,以使贴壁的滋养体从塑料表面脱落。轻轻摇晃培养瓶,使残留的贴壁细胞松动。此时滋养体呈现“圆缩”形态(图 2B)。
- 按 1:2 至 1:4 的比例将培养物传代至新的组织培养瓶中。
- 去除 PYNFH 培养基,更换为无菌包囊培养基(120 mM 氯化钠、0.03 mM 氯化镁、1 mM 磷酸氢二钠、1 mM 磷酸二氢钾、0.03 mM 氯化钙、0.02 mM 氯化铁,pH 6.8)22,以诱导 N. gruberi 形成包囊。
注意:大多数滋养体在 72 小时内完成包囊(图 2C)。脱囊过程应在 72 小时内完成。 - 从培养瓶中收集包囊,在 20 °C 下以 600 × g 离心 10 分钟,然后将包囊重悬于含 10% 胎牛血清的 PYNFH 培养基中,以诱导细胞脱囊。在 25 °C 下孵育 24 小时,直至滋养体开始出现。
2. 转染滋养体
- 将滋养体接种于6孔平底组织培养板中(每孔1 mL,浓度为1 × 10⁶ 个滋养体/mL),在25 °C条件下培养。
- 当细胞生长至70%–80%汇合度时(6孔板中约为10.4 × 10⁴ 个细胞/cm2)进行转染。使用前将转染试剂恢复至室温。
- 按如下方法配制质粒-转染试剂混合物:在200 µL不含FBS的PYNFH培养基中加入75 ng质粒DNA和0.225 µL转染试剂。为保证重复实验,需配制足够的质粒-转染试剂混合物以进行双份转染。
注:本研究使用含有N. gruberi CERE全长克隆的细菌质粒(pGRUB)。空质粒(pGEM)作为阴性对照(图3)。 - 将质粒-转染试剂混合物于室温孵育10分钟。
- 转染前,从滋养体单层中移除约800 µL培养基。
- 将质粒-转染试剂混合物加入滋养体中。
- 每隔15分钟轻轻摇动培养板,防止培养基在板边缘聚集。
- 在25 °C孵育1小时后,用2 mL生长培养基洗涤单层细胞一次。
- 加入含10 U DNase的1 mL 10倍浓度DNase缓冲液,在37 °C处理15分钟以去除残留质粒DNA,随后用生长培养基洗涤一次,加入2 mL新鲜培养基,并置于25°C培养24–36小时。
- 将培养板置于冰上10分钟,以释放细胞。
- 将一个孔的细胞按1:2比例传代至两个 新孔中。
- 收集其余孔中的滋养体用于后续实验。
注:所有培养均设双重复。每种条件下,一个孔用于传代,另一个孔用于CERE分离。
3. 从 Naegleria中分离CERE
- 通过台盼蓝排斥染色法和血细胞计数板计算用于CERE分离的每个孔中滋养体的数量23.
- 将滋养体置于 2.0 mL 离心管中。
- 用 100 mM 氯化钠(pH 7.5)洗涤滋养体一次 通过 离心(600 × g) g,10 分钟,4 °C)
注意:氯化钠可防止滋养体黏附在试管壁上。 - 移除上清液,并将细胞沉淀重悬于 100 µ100 mM EDTA(pH 7.5)的 L
- 将试管置于98℃的加热块中,持续15分钟 °C 以裂解细胞并灭活滋养体中的酶。
注意:此步骤可灭活大量存在的DNase 纳格里虫 滋养体。DNase 可能会干扰在第 4 步中对天然 CERE 及其分子克隆的检测。当细胞数量超过约 3 × 10⁶ 时,DNA 产量会降低。6 第3.4步中使用细胞。 - 将离心管以最高速度(16,000 x g) 在 4 °C离心10分钟以沉淀碎片。
- 将上清液转移至新的离心管中。
- 用0.5体积的7.5 M醋酸铵(pH 7.5)、3体积的无水乙醇和1体积的……对上清液进行乙醇沉淀 µ10 mg/mL 糖原溶液,用作载体。
- 将试管颠倒数次,然后将试管置于 -80 °C,至少持续1 小时或过夜。
- 将样品 warming 至室温。
- 在室温下以16,000 x g离心试管10分钟 g.
- 移去上清液,加入70%乙醇重悬沉淀,于16,000 x g离心5分钟 g (室温下)
- 去除乙醇,将沉淀物在空气中干燥5分钟。
- 将干燥的沉淀重悬于无菌去离子水(DI 水)中。调整体积至每微升含 10,000 个滋养体, µL.
- -80 保存 °C,直至用于 PCR。
4. 转化滋养体的PCR检测
- 使用 20,000 个细胞当量的 DNA、600 nM 引物(表 1)以及 Taq 聚合酶进行 PCR24。
注:用于区分天然 CERE 与克隆 CERE 的引物列于 表 1,PCR 条件亦列于其中。图 3 显示了引物在构建体上的位置。PCR 需根据所用引物及特定的 PCR 混合液进行优化。 - 将 0.8% 琼脂糖溶于 1×Tris-乙酸-EDTA(TAE)缓冲液中,微波加热至琼脂糖完全溶解。
- 将琼脂糖溶液在室温下冷却至约 50 °C。
- 将溶液倒入含有梳子的凝胶制备槽中,形成加样孔。
- 让凝胶在室温下静置至完全凝固。
- 将凝胶放入电泳装置中。
- 向电泳槽中倾入 1×TAE 缓冲液,直至完全浸没凝胶。
- 移去梳子。
- 向样品中加入 6×上样染料(0.25% 溴酚蓝、0.25% 茜素蓝、30% 甘油),混匀后上样。使用 DNA 分子量标记物确定 PCR 产物的大小。
- 连接电极,开启电源,以 80 V 电压电泳约 1.5–2 小时。
- 关闭电源,取出凝胶。
- 将凝胶置于 100 mL 去离子水中,加入 DNA 染料(例如 10 mg/mL 溴化乙锭 10 µL)染色 10 分钟。
- 用去离子水脱色 20 分钟。
- 在紫外(UV)成像系统下观察凝胶并记录结果。
访问受限。请登录或开始试用以查看此内容。
结果
对转染了pGRUB质粒的滋养体进行PCR检测表明,转染的CERE在滋养体连续传代至少七代的过程中均能被检测到,且在包囊和脱囊过程中也保持存在(图4)。PCR所用引物针对pGEM载体和CERE序列进行设计,从而确保PCR不会扩增出内源性CERE。将pGEM转染滋养体后进行PCR检测显示结果为阴性(图4),表明空质粒未被阿米巴保留。图4显示,pGEM在第一代传代后即已丢失,后续各代、包囊及脱囊过程的检测结果均为阴性。
访问受限。请登录或开始试用以查看此内容。
讨论
本文所述方案非常直接,但每种构建体可能都需要一定程度的优化,特别是DNA与转染试剂的比例,这取决于构建体的性质以及所用Naegleria的物种。我们仅使用了一种市售的转染试剂对该方案进行了测试,但很可能其他多种试剂也有效。由于使用了包含功能性复制起点并因此能够自主复制的CERE全长克隆,该构建体具备所有必要的真核复制机制。如果将部分克隆插入pGEM载体,则预测转染后的克隆在转染后很快就会丢失,除非其含有功能性真核复制起点,这一点与空pGEM载体类似(图2B)。此外,这些数据表明,原核DNA的存在不会干扰分子克隆被滋养体保留的能力。
尽管已有研究报道过对N. gruberi滋养体进行转染的案例25,但本研究所使用的插入片段明显更大(约17 kbp),远大于先前研究中转染的片段(<1 kbp)。目前尚不清楚Naegleria能够耐受的最大质粒大小,但我们实验室的未发表数据显示,另一属(Willaertia
访问受限。请登录或开始试用以查看此内容。
披露
未声明任何财务利益冲突。
致谢
这些研究部分由克瑞顿大学George F. Haddix基金(KMD)资助。图1在biorender.com中生成,图3在benchling.com中生成。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 琼脂糖 | Bio Rad | 161-3102 | |
| 乙酸铵 | Sigma Aldrich | A-7330 | |
| 氯化钙 | Sigma Aldrich | C-4901 | |
| 碎冰 | |||
| 培养瓶,T-75 | Thermo Scientific | 130190 | |
| 培养板,6孔 | Corning | 3506 | |
| DNase | Sigma Aldrich | D-4527 | |
| EDTA,0.5 M | Affymetrix | 15694 | |
| 电泳凝胶装置 | Amersham Biosciences | 80-6052-45 | |
| Eppendorf 管,1.5 mL | Fisher Scientific | 05-408-129 | |
| Eppendorf 管,2 mL | Fisher Scientific | 05-408-138 | |
| 乙醇,100% | Decon Laboratories | 2716 | |
| 溴化乙锭 | Sigma Aldrich | E-8751 | |
| 胎牛血清 | Gibco | 26140 | |
| 叶酸 | Sigma Aldrich | F7876-25G | |
| GeneRuler 1 kb Plus DNA Ladder | Thermo Scientific | SM1331 | |
| 冰醋酸 | Fisher Scientific | UN2789 | |
| GoTaq Green PCR Master Mix | Promega | M7122 | |
| 加热金属块 | Thermo Scientific | 88871001 | |
| 血细胞计数板 | Hausser Scientific | 1483 | |
| 血红素 | Sigma Aldrich | 51280 | |
| 氯化铁 | Sigma Aldrich | 372870-256 | |
| 连接酶 | NEB | M2200S | |
| 氯化镁 | Fisher Scientific | M33-500 | |
| 微量离心机 | Thermo Scientific | MySpin 12 | |
| 显微镜 | Nikon | TMS | |
| N. gruberi | ATCC | 30224 | |
| 核酸 | Chem Impex Int’l | #01625 | |
| 蛋白胨 | Gibco | 211677 | |
| pGEM | Promega | P2251 | |
| 磷酸钾 | Sigma Aldrich | P0662-500G | |
| PowerPac HC 电泳电源装置 | Bio Rad | 1645052 | |
| 氯化钠 | MCB Reagents | SX0420 | |
| 磷酸氢二钠 | Sigma Aldrich | S2554 | |
| 台式离心机 | eppendorf | 5415R | |
| Tris 碱 | Sigma Aldrich | T1503-1KG | |
| 台盼蓝,0.4% | Gibco | 15250-061 | |
| ViaFect 转染试剂 | Promega | E4981 | |
| 电子天平 | Denver Instruments | APX-60 | |
| 酵母提取物 | Gibco | 212750 |
参考文献
- De Jonckheere, J. F. What do we know by now about the genus Naegleria. Exp Parasitol. 145, Suppl S2-S9 (2014).
- De Jonckheere, J. F. A century of research on the Amoeboflagellate genus Naegleria. Acta Protozool. 41, 309-342 (2002).
- Fulton, C. Cell differentiation in Naegleria gruberi. Annu Rev Microbiol. 31, 597-629 (1977).
- Grace, E., Asbill, S., Virga, K. Naegleria fowleri: Pathogenesis, diagnosis, and treatment options. AAC. 59 (11), 6677-6681 (2015).
- Moseman, E. A. Battling brain-eating amoeba: enigmas surrounding immunity to Naegleria fowleri. PLOS Pathog. 16 (4), e1008406(2020).
- Marciano-Cabral, F. Biology of Naegleria spp. Microbiol Rev. 52 (1), 114-133 (1988).
- Piñero, J. E., Omaña-Molina, M., Chávez-Munguía, B., Lorenzo-Morales, J. Naegleria fowleri. Trends Parasitol. 35 (10), 848-849 (2019).
- Zysset-Burri, D. C., et al. Genome-wide identification of pathogenicity factors of the free-living amoeba Naegleria fowleri. BMC Genomics. 15, 496-510 (2014).
- Liechti, N., Schürch, N., Bruggmann, R., Wittwer, M. The genome of Naegleria lovaniensis, the basis for a comparative approach to unravel pathogenicity factors of the human pathogenic amoeba N. fowleri. BMC Genom. 19, 654-665 (2018).
- Liechti, N., Schürch, N., Bruggmann, R., Wittwer, M. Nanopore sequencing improves the draft genome of the human pathogenic amoeba Naegleria fowleri. Sci Reports. 9, 16040-16049 (2019).
- Fritz-Laylin, L. K., Ginger, M. L., Walsh, C., Dawson, S. C., Fulton, C. The Naegleria genome: A free-living microbial eukaryote lends unique insights into core eukaryotic cell biology. Res Microbiol. 162, 607-618 (2011).
- Clark, C. G., Cross, G. A. M. rRNA genes of Naegleria gruberi are carried exclusively on a 14-kilobase-pair plasmid. Mol Cell Biol. 7 (9), 3027-3031 (1987).
- Clark, C. G., Cross, G. A. M. Circular ribosomal RNA genes are a general feature of schizopyrenid amoebae. J Protozool. 35 (2), 326-329 (1988).
- Dao, F. Y., et al. Identify origin of replication in Saccharomyces cerevisiae using two-step feature selection technique. Bioinformatics. 35 (12), 2075-2083 (2019).
- Mullican, J. C., Chapman, N. M., Tracy, S. Complete genome sequence of the circular extrachromosomal element of Naegleria gruberi strain EGB ribosomal DNA. Genome Announc. 6 (6), e00020-e00021 (2018).
- Mullican, J. C., Drescher, K. M., Chapman, N. M., Tracy, S. Complete genome sequence of the Naegleria fowleri (strain LEE) closed circular extrachromosomal ribosomal DNA element. Microbiol Resource Announce. 9 (49), e01055(2020).
- Nguyen, B. T., Chapman, N. M., Tracy, S., Drescher, K. M. The extrachromosomal elements of the Naegleria amoebae: How little we know. Plasmid. 115, 102567(2021).
- Nguyen, B. T., et al. Complete sequence of the closed circular extrachromosomal element (CERE) of Naegleria australiensis De Jonckheere (strain PP 397). Microbiol Resource Announce. 12, e0032123(2023).
- Nguyen, B. T., Chapman, N. M., Stessman, H. A. F., Tracy, S., Drescher, K. M. Complete sequence of the closed circular extrachromosomal element of Naegleria jadini Willaert and Ray (Strain ITMAP400). Microbiol Resource Announce. 12 (4), 0006123(2023).
- Nguyen, B. T., et al. Complete sequence of the closed circular extrachromosomal element (CERE) of Naegleria pringsheimi De Jonckheere (strain Singh). Microbiol Resource Announce. 13 (4), (2024).
- Mullican, J. C., Chapman, N. M., Tracy, S. Mapping the single origin of replication in the Naegleria gruberi extrachromosomal DNA element. Protist. 170, 141-152 (2019).
- Sohn, H. J., et al. Efficient liquid media for encystation of pathogenic free-living amoebae. Korean J Parasitol. 55 (3), 233-238 (2017).
- Strober, W. Trypan blue exclusion test of cell viability. Curr Protoc Immunol. 111, 1-3 (2001).
- Lorenz, T. C. Polymerase Chain Reaction: Basic protocol plus troubleshooting and optimization strategies. J Vis Exp. (63), e3998(2012).
- Jeong, S. R., et al. Expression of the nfa1 gene cloned from pathogenic Naegleria fowleri in non-pathogenic N. gruberi enhances cytotoxicity against CHO target cells in vitro. Infect Immun. 73 (7), 4098-4105 (2005).
- Clark, C. G., Cross, G. A. M., De Jonckheere, J. F. Evaluation of evolutionary divergence in the genus Naegleria by analysis of ribosomal DNA plasmid restriction patterns. Mol Biochem Parasitol. 34 (3), 281-296 (1989).
- De Jonckheere, J. F. Sequence variation in the ribosomal internal transcribed spacers, including the 5.8S rDNA, of Naegleria spp. Protist. 149 (3), 221-228 (1998).
- Rawal, P., et al. Genome-wide prediction of G4 DNA as regulatory motifs: Role in Escherichia coli global regulation. Genome Res. 16 (5), 644-655 (2006).
- Yadav, V. K., Abraham, J. K., Mani, P., Kulshrestha, R., Chowdhury, S. QuadBase: Genome-wide database of G4 DNA - occurrence and conservation in human, chimpanzee, mouse and rat promoters and 146 microbes. Nucleic Acids Res. 36, D381-D385 (2007).
访问受限。请登录或开始试用以查看此内容。
重印与许可
