我们介绍一种从两亲性DNA纳米星的组成DNA寡核苷酸出发,制备合成生物分子凝聚体的实验方案。该凝聚体可由单一纳米星组分或两种组分生成,并可进行修饰以维持 体外 从嵌入式DNA模板转录RNA
本文内容
摘要
摘要
合成液滴和凝聚体正日益成为先进仿生系统和合成细胞中的常见组分,可用于实现区室化并维持类生命响应。合成DNA纳米结构因其可编程的形状、化学功能化能力以及自组装特性,已展现出作为凝聚体形成构件的巨大潜力。我们近期研究表明,通过将疏水基团标记到DNA连接点上所获得的两亲性DNA“纳米星”(nanostars),是一种尤为稳健且多功能的解决方案。由此产生的两亲性DNA凝聚体可被编程以呈现复杂的多区室内部结构,对外部多种刺激产生结构响应,合成大分子,捕获并释放有效载荷,经历形态转变,并与活细胞相互作用。本文中,我们演示了从组成性DNA寡核苷酸出发制备两亲性DNA凝聚体的实验方案。我们将介绍以下三类系统:(i)形成均一凝聚体的单组分系统,(ii)形成核-壳结构凝聚体的双组分系统,以及(iii)对凝聚体进行修饰以支持特定功能的系统 体外 RNA纳米结构的转录
引言
合成细胞是微米尺度(10-50 µm) 通过自下而上构建的装置,以模拟现存生物细胞的功能与结构1,2合成细胞通常由脂质双层囊泡构成的膜所包裹3,4,5,6,7,聚合物囊泡8,9或蛋白体10,11,也可用于建立内部区室化12,13. 受到已知在活细胞中维持多种功能的无膜细胞器的启发14聚合物凝聚体、生物分子凝聚物和水凝胶等结构正逐渐成为构建合成细胞内外区室化的多功能且稳定的替代方案15,16,17,18.
利用DNA纳米技术的多功能工具包19,研究人员已开发出多种策略,通过人工DNA纳米结构的自组装来构建合成液滴和凝聚体,其尺寸、形状、功能、价态及相互作用均可被精确编程20。DNA液滴或凝聚体具有良好的生物相容性,可作为合成细胞和细胞器的支架,用于容纳化学和生物分子反应21、执行信息计算22,23、捕获与释放 cargo 分子24,25,以及维持结构响应26。
在多种可形成冷凝相的DNA纳米结构设计中,两亲性DNA纳米星(被称为C-stars -)已被证明具有良好的稳定性和多功能性27。C-stars是一类简单的分支结构,由一个固定的DNA连接点(通常为四向连接)构成,从该连接点延伸出双链(ds)DNA臂28。这些DNA臂末端连接疏水基团(通常为胆固醇),从而使纳米结构具备两亲性,并能够在简单的单管退火过程中自发发生冷凝。C-stars形成的冷凝相具有精确的结构与功能可编程性,包括构建多区室结构29,30、响应DNA和阳离子刺激而发生结构变化31、合成大分子29、负载物的捕获与释放32,以及与活细胞相互作用33。下文将描述并讨论从组成该结构的寡核苷酸出发制备C-star冷凝相的实验方案。
本实验方案总结了利用三种不同C-star结构(图1)制备单组分(单组分)和双组分(双组分)凝聚体的方法,分别为“非响应型”、“TMSD响应型”和“RNA模板型”。 “非响应型”C-star(图A)由四条具有不同序列的“核心链”组成,形成四向连接结构;四个相同的胆固醇修饰寡核苷酸连接在该连接点上,确保每条臂末端均含有一个胆固醇分子。非响应型C-star作为构建单组分和双组分凝聚体的简单且惰性的支架结构。在“TMSD响应型”C-star(图B)中,胆固醇修饰链与连接点之间通过一条“趾桥”(Toeholding bridge)链连接,该链含有一段游离的单链DNA(ssDNA)“趾区”(toehold)结构域;当存在具有互补趾区结构域的入侵DNA链时,可触发趾区介导的链置换反应34,使入侵链取代趾桥链,从而切断连接点与疏水基团之间的连接,导致DNA网络解体32。最后,“RNA模板型”C-star(图C)包含一种与“桥”链互补的“底物”(Base)修饰结构,后者连接可转录的ssDNA模板,用于生成Broccoli适配体29。上述三种C-star结构所用寡核苷酸组分的序列详情见补充表1以及先前的研究文献29,30,32。

图 1.三种不同设计的两亲性 DNA 纳米星(C-stars)示意图。 本文所述各种 C-stars 的寡核苷酸序列见补充表 1。(A) 设计用于形成非响应性凝聚体的 C-star 示意图,其组分寡核苷酸链包括“Core 1”、“Core 2”、“Core 3”、“Core 4”(以不同深浅的粉红色表示)和“Terminal cholesterol”(以蓝色表示)。每种独特颜色代表一条具有独特序列的寡核苷酸链。“Core 1”和“Core 3”各自部分互补于“Core 2”和“Core 4”,但彼此之间不互补。(B) 一种设计为在加入入侵链后通过趾部介导的链置换(toehold-mediated strand displacement)而解组装的 C-star 示意图,如先前研究32所述。该 C-star 由“Core”和“Terminal cholesterol”链(以灰色表示)、“Terminal complement”(以橙色表示)以及“Toeholding bridge”链(以深蓝绿色表示)组成。后者包含一个六核苷酸突出端,可与设计合适的入侵链结合,随后完全置换“Toeholding bridge”链,从而导致中心纳米星连接结构(由“Core 1, 2, 3, 和 4”组成)与由“Terminal complement”和“Terminal cholesterol”链组成的双链区解离。(C) 一种功能化修饰了 RNA 适体的 DNA 模板的 C-star 示意图。该结构同样包含“Terminal cholesterol”链以及“Core 2, 3, 和 4”(均以灰色表示),此外还包括延长版的“Core 1”链(以粉红色表示)、“Base”链(棕色)、“Bridge”链(黄色)以及“Aptamer template”(绿色)。后两条链组成的 DNA 双链构成 T7 聚合酶启动子区域,标志着转录起始位点。请点击此处查看此图的放大版本。
C-star凝聚体通过组成寡核苷酸的热退火形成,本文所述方案中,该过程在具有高长宽比矩形截面的密封玻璃毛细管内进行。此类容器具有多个关键优势:i)密封可完全防止在(有时较慢的)退火过程中发生蒸发;ii)毛细管的光学质量平底可实现对自组装(或解离)瞬态过程的成像;iii)毛细管的高长宽比确保了较重的凝聚体在宽而平坦的区域沉降,减少了在楔形容器(如微量离心管)中自组装瞬态后期易发生的融合与聚集,从而产生相对单分散的凝聚体群体;iv)在细长玻璃毛细管中进行退火可最大程度减少样品暴露于疏水界面(空气、塑料或油),这些界面已被发现会通过招募两亲性胆固醇修饰的寡核苷酸而干扰自组装过程。一旦组装程序完成,可从玻璃毛细管中提取凝聚体,用于涉及其他试剂的后续实验。
方案
注意:本实验方案分为三个部分。第1部分描述了先决步骤,包括DNA寡核苷酸和玻璃毛细管的制备。第2部分描述了多种设计的C-star凝聚体(包括单组分和双组分设计)的制备,以及从玻璃毛细管中提取C-star凝聚体的方法。第3部分描述了利用单组分RNA模板化C-star凝聚体合成RNA适配体的应用。实验过程中,操作者必须遵循良好的实验室规范,确保完成所有必要的风险评估并采取相应的防护措施,并佩戴适当的一次性个人防护装备(PPE),包括手套、护目镜和实验服。清洗玻璃毛细管需依次在表面活性剂溶液和异丙醇或乙醇中进行超声处理。从毛细管中提取C-star凝聚体时,需使用金刚石刻划笔对玻璃进行划痕并折断,此操作存在被玻璃碎片划伤的风险。关键材料、仪器和试剂详见材料表。大多数未修饰的寡核苷酸由供应商采用标准脱盐法纯化,但“延长型Core 1”和“Aptamer模板”链需订购时选择聚丙烯酰胺凝胶电泳(PAGE)纯化。胆固醇修饰的寡核苷酸则由供应商采用反相高效液相色谱(HPLC)进行纯化。
1. 先决条件
注意:以下溶液应使用超纯(一级)水配制,并用 0.22 µm 注射器滤器过滤:Tris-EDTA(TE)缓冲液,含 10 mM Tris、1 mM EDTA,pH 约为 8.0;含 2 M NaCl 的 TE 缓冲液;以及含 0.3 M NaCl 的 TE 缓冲液。缓冲液应在配制后 2 周内使用,不使用时应于 4 °C 保存。此外,将使用含 1 vol% 碱性光学清洁剂的超纯水溶液清洗玻璃毛细管。
- 从冻干状态制备DNA寡核苷酸
- 短暂离心(2000 × g,10–30 秒)冻干DNA寡核苷酸管,以确保冻干粉沉淀完全沉降至管底。
注意:离心在室温(RT)下进行,持续10–30秒。此处使用的微型离心机默认转速为2000 × g(6000 rpm)。 - 加入适量TE缓冲液,将每种寡核苷酸重悬至100 µM。充分涡旋以确保完全溶解,然后按步骤1.1.1离心收集管壁上的全部液体。
- 对每种储存液,在260 nm处测定吸光度,并利用待测寡核苷酸序列的消光系数计算最终浓度。
注意:特定寡核苷酸序列的消光系数通常可在供应商提供的数据表中找到,也可使用在线工具基于最近邻模型35或单个核苷酸消光系数的列表值36进行计算。 - 重悬后的寡核苷酸可短期储存于4 °C(不超过1周),或长期储存于-20 °C(最长6个月)。
- 短暂离心(2000 × g,10–30 秒)冻干DNA寡核苷酸管,以确保冻干粉沉淀完全沉降至管底。
- 玻璃毛细管的清洗
- 在去离子水中使用1%碱性光学元件清洗剂进行超声处理。
- 取所需数量的待清洗玻璃毛细管,放入一个高而窄的容器中(例如烧杯或15/50 mL离心管),确保毛细管不平放在容器底部。
- 向容器中加入清洗剂,液面略高于毛细管顶部。确保毛细管内部无残留气泡——必要时轻敲容器以去除。松散覆盖容器(例如用锡箔纸或离心管盖,确保未完全密封)。
- 将超声水浴设定为40 °C,将覆盖好的容器直立放入水浴中,超声30分钟。若使用锡箔纸,确保其不与超声水浴中的水接触。
注意:本研究中使用的超声水浴默认超声频率为60 Hz,功率为150 W。
警告:切勿在超声水浴运行时添加或取出物品;操作前必须先暂停程序。 - 超声完成后,关闭超声水浴的加热元件,然后用去离子水或超纯水彻底冲洗容器中的毛细管,至少冲洗五次,每次冲洗后弃去废液。
- 在去离子水中使用1%碱性光学元件清洗剂进行超声处理。
- 在异丙醇或乙醇中进行超声处理。
- 向清洗容器中的玻璃毛细管加入异丙醇或乙醇(浓度不低于70%),液面略高于毛细管顶部。与步骤1.2.1.2相同,确保毛细管内无残留气泡,并松散覆盖容器。
- 将容器直立放入超声水浴中,超声15–30分钟。
警告:异丙醇和乙醇为易燃液体,闪点低于室温。应选择合适尺寸的容器以减少清洗过程中溶剂用量,确保容器松散覆盖,且此阶段不得无人看管超声水浴。 - 超声完成后,妥善处理异丙醇或乙醇废液,并用氮气吹干毛细管,操作时使用无尘纸巾夹持。
2. C-star凝聚物的制备与提取(图2)
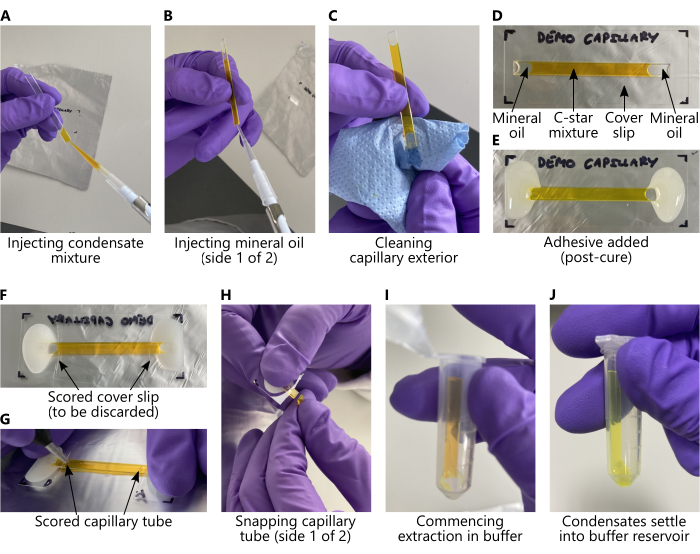
图 2:玻璃毛细管中C-star混合物的加载及凝聚物的提取。 所有图示中均使用25 mM荧光素水溶液替代C-star混合物以增强可见性。(A-E) 退火前需依次执行的关键步骤,对应方案第2.1和2.2节。(F-J) 退火后需依次执行的关键步骤,对应方案第2.3节。在提取过程中(图(I-J)),只要将微量离心管垂直存放,DNA凝聚物便会从毛细管沉降到缓冲液储液池中。凝聚物肉眼不可见。 请点击此处查看该图的放大版本。
- 单组分凝聚体制备C-star混合物
注意:各种单个组件设计的序列细节可在 补充表1 以及以往的研究成果29,30,32. 步骤 2.1.9 和 2.2.2 中定义的慢速退火程序旨在确保纳米星网络弛豫为致密的形貌,因为纳米星网络的流变性能对温度具有强烈依赖性37.- 寡核苷酸和缓冲液组分将根据所需的 C-star 结构设计而有所不同。准备一个 60 µL 单组分C星凝聚体的混合物在 5 µM 非响应型四臂C-star、TMSD响应型C-star或RNA模板型C-star的浓度。
- 针对每种设计,用移液器吸取相应列出的组分 补充表2 转移到另一支微量离心管中,用移液器充分混匀。
注意:所有寡核苷酸储备液均假设处于 100 µM TE 中的浓度 - 抽出全部 60 µL C-star 溶液,并用移液管小心地将混合物注入已清洗并干燥的玻璃毛细管中,如图所示 图 2A,注意避免引入气泡。
- 使用移液器注入约 9-12 µL 在毛细管两端各加入矿物油,封住样品,确保C-star溶液与空气之间无自由界面(参见 图2B)。然后,用纸巾小心擦干毛细管,确保其外表面无油。图 2C),注意不要将矿物油或C-star溶液从毛细管中吸出。最终结果如图所示。 图 2D.
- 准备少量双组分环氧树脂胶,将毛细管两端平整面朝下粘附于玻璃盖玻片上。确保管口完全被胶覆盖,形成连续密封,如图所示 图 2E.
- 静置固化,至少3小时,最好过夜。
- 约30分钟固化后,检查胶层是否存在因气泡导致的密封缝隙。若存在此类缝隙,应使用少量胶水将其密封。
- 将粘附在盖玻片上的毛细管用锡箔纸包裹,确保锡箔纸在盖玻片底面保持平整。锡箔可确保盖玻片与PCR仪加热元件之间具有良好的热接触(见下一步)。
- 将包裹好的样品放入热循环仪中,并按照以下程序进行退火:保持在 95 °C 30 分钟,然后冷却 85 °C 到 50 °C 在 -0.04 °C·min-1,然后从高温冷却 50 °C 至室温,-0.5 °C·min-1.
- 将退火后的 C-star 凝聚物储存于 4 °C 或在室温下长期(数月)保存,只要毛细管保持密封即可,因为热退火能有效灭菌并使核酸酶失活。储存和操作期间应将毛细管平放,以防止冷凝液向一端沉积并聚集。
- 用于二元凝聚体的 C-star 混合物的制备
注意:为指导双星系统中C星族成员的选择,可参考Malouf等人的研究工作., 描述二元C星型凝聚体的设计规则及预期相行为30.- 为制备二元缩合物,将 30 µL 步骤2.1中所述C-star混合物的体积,加至总体积 60 µL,充分混匀,装入毛细管,然后按照步骤 2.1.4–2.1.8 操作。
- 将包裹好的样品放入热循环仪中,并按照以下程序进行退火:保持在 95 °C 30 分钟,然后冷却 85 °C 至 40 °C 在 -0.01 °C·min-1,然后冷却 40 °C 至室温(-0.1 °C·分钟-1.
- 从毛细管中提取C-star凝聚物
- 准备一个大容量(1.5 mL 或 2.0 mL)微量离心管,其中含有 60 µL 在TE缓冲液中含0.3 M NaCl。
- 拆开毛细管样品,使用金刚石刻划笔在粘合区域每个内端对应的盖玻片底面进行划痕图2F在此区域折断盖玻片,并妥善丢弃。
- 用乙醇彻底清洗毛细管并干燥。
- 用金刚石刻划笔在毛细管两端的底面先进行划痕图2G),然后将离心管翻转并标记为“正立”。
- 确保刻度线不与油水界面重叠,必须位于水相区域内,以防止油相残留在提取的样品中。
- 折断毛细管两端图2H),保留管子的中央部分,弃去其余部分。将切割好的毛细管放入步骤2.3.1中准备好的微量离心管中,确保毛细管底部与缓冲液接触(图2I).
- 凝聚体会在重力作用下从离心管沉降到缓冲液储液槽中;此过程至少持续10 min。图 2J)。移除切割后的毛细管并妥善丢弃。这种温和的提取方法可降低冷凝物聚集的风险。
3. 从RNA模板C-star凝聚体转录RNA适体
注意:在制备 Broccoli RNA 适配体时,需要使用二氟-4-羟基亚苄基咪唑啉酮(DFHBI)溶液——首先将 DFHBI 粉末溶于二甲基亚砜(DMSO)中配制成 10 mM 的储存液,然后用无 RNase 和 DNase 的水稀释至 600 µM。
- 洗涤RNA模板化C-star凝聚体
注意:RNA模板化C-star凝聚体需洗涤三次,以确保去除未结合的模板寡核苷酸。- 让提取的凝聚体溶液静置至少5分钟,然后移除约一半体积的上清液。
- 对于60 µL体积的提取凝聚体,移除25–30 µL上清液。
- 从液面顶部进行移液,以尽量减少此步骤中移除的凝聚体数量。
- 加入与移除上清液体积相等的0.3 M NaCl TE缓冲液,并通过移液混匀。
- 重复前两步操作,共完成三个循环。
- 让提取的凝聚体溶液静置至少5分钟,然后移除约一半体积的上清液。
- T7转录混合物的制备
注意:T7转录混合物使用CellScript T7-FlashScribe转录试剂盒制备。步骤3.2.2对制造商提供的操作流程进行了修改,原始流程可在此处查阅38。本文描述的是Broccoli RNA适体的转录过程,该适体在结合DFHBI后可诱导荧光。对于其他发光适体,请将步骤3.2.2中所述DFHBI的体积替换为相应的荧光原。对于其他转录产物,请完全省略该组分。- 配制10 mM DFHBI的DMSO储备液,然后取适量用无RNase和DNase的水稀释至终浓度为600 µM。
- 将转录试剂盒组分在冰上解冻,随后使用无菌移液器吸头在室温下将以下组分加入已灭菌的微量离心管中:2 µL 10x T7转录缓冲液(试剂盒提供)、1.8 µL 100 mM ATP、1.8 µL 100 mM CTP、1.8 µL 100 mM UTP、1.8 µL 100 mM GTP、2 µL 100 mM DTT、2 µL 600 µM DFHBI、0.5 µL RNase抑制剂、2 µL T7酶溶液(试剂盒提供)。
- 通过移液轻轻混匀溶液。
- 制备完成后立即用于步骤3.3(RNA转录本合成)。
- RNA转录本的合成
- 向适合显微成像的腔室中加入3.3 µL经洗涤的RNA模板化C-star凝聚体,并加入先前制备的全部体积的转录混合物。
- 在向凝聚体中加入转录混合物后立即开始采集显微图像,持续18小时。
注意:显微镜设置将取决于所使用的系统。请确保为样品中的任何荧光染料选择适当的激发和发射参数,并设置不会导致信号饱和的曝光时间。与所有延时成像一样,应在足够高的激光或LED功率以获得良好信号与尽量减少光漂白风险之间取得平衡。相较于基于激光的系统,基于LED的系统在长时间成像过程中可显著减少光漂白现象。建议成像时间间隔:前2小时每20分钟一次,之后每30分钟一次。
结果
退火后,C-star 凝聚物可直接在毛细管中成像,或在提取后成像,以确认其形成。对于所有 C-star 设计变体,应观察到直径约为 10–50 µm 的明显球形或多面体状凝聚物,后者在发生结晶时形成28,32。对于单组分凝聚物,其外观应为离散且均一,可能呈现多面体形(图 3A)或球形(图 3B、C),具体形态取决于所使用的 C-star 设计。双组分凝聚物的形态则取决于所用 C-star 群体的性质,如前所述30。图 3D 显示了预期出现相分离的双组分凝聚物,可在明场成像中观察到。毛细管中的气泡也可能干扰凝聚物的自组装,常导致凝聚物在气液界面附近聚集(图 4A、B)。配制不当的混合物(例如缺少寡核苷酸组分或化学计量比失衡的混合物)可能导致完全无法形成凝聚物,或形成非球形的连接网络或聚集体,如 图 4C 所示。类似地,配制不当的双组分凝聚物也可能出现聚集和网络结构,并可能不表现出可观察到的相分离,如 图 4D 所示。
对于RNA发光适体的转录,可通过监测荧光染料随时间推移的荧光强度增加情况来观察实验是否成功,例如通过显微镜(图5)或分光光度法。
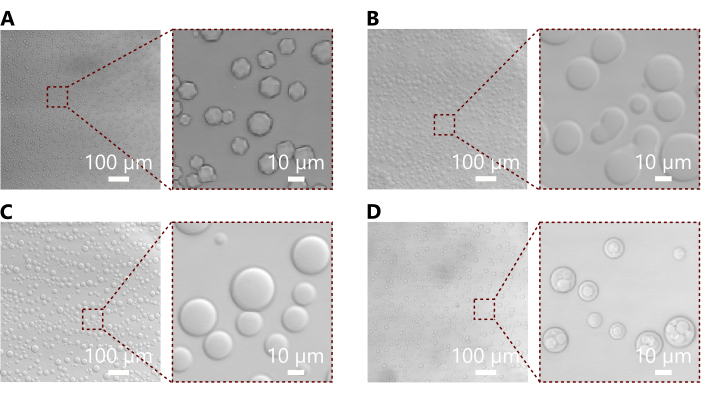
图 3:显示退火后 C-star 缔合相凝聚体的代表性显微图像。(A)明场显微图像及插图,显示由臂长为 28 个碱基对的非响应性 C-star 形成的凝聚体。此处可见多面体形态,反映了较小 C-star 的晶体有序结构32。(B)明场显微图像及插图,显示由 TMSD 响应性 C-star(臂长为 50 个碱基对)形成的凝聚体。这些凝聚体总体呈球形,但许多表现出更不规则的形态,表明多个凝聚体正在融合,这与倾向于更流体状态的较大 C-star 预期一致32。(C)明场显微图像及插图,显示由臂长为 35 个碱基对的非响应性 C-star 形成的凝聚体。这些凝聚体呈球形,但此前研究的小角 X 射线散射数据表明其微观结构为晶体32。(D)明场显微图像及插图,显示由(B)和(C)图中所用 C-star 种群组合形成的二元凝聚体。这两种种群的组合导致形成具有明显相分离的凝聚体,无需荧光标记即可观察到。其他组合可能不表现出相分离,如先前研究中所述30。请点击此处查看该图的放大版本。
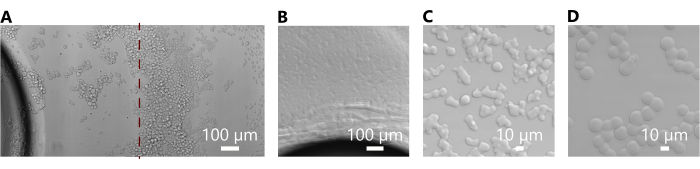
图 4:显示因缩合物制备不当而常遇到的问题的显微图像。(A)明场显微图像,显示由臂长为 28 个碱基对的非响应性 C-star(在 图 3A 中成功形成)在毛细管中存在气泡时形成的缩合物。该图由两条在红色虚线处拼接的显微图像组成,显示缩合物在气液界面附近发生聚集。(B)明场显微图像,显示由臂长为 50 个碱基对的 TMSD 响应性 C-star(在 图 3B 中成功形成)在毛细管中存在气泡时形成的缩合物。此处,由于由较大 C-star 结构单元组成的缩合物流动性更强,缩合物已融合形成连续的互连网络32。(C)明场显微图像,显示由臂长为 35 个碱基对的非响应性 C-star(在 图 3C 中成功形成)形成的缩合物。其形态不规则且呈棱角状,表明制备过程中存在错误,可能为化学计量比失衡所致。(D)由如图 3D 所示的两种 C-star 群体组合形成的二元缩合物的明场显微图像。这些缩合物如(C)图所示高度连接,且未表现出预期的相分离现象(见 图 3D),表明其制备存在错误。尽管错误的具体来源难以确定,但化学计量比不正确或使用了错误的寡核苷酸序列均可能是潜在原因。请点击此处查看该图的放大版本。
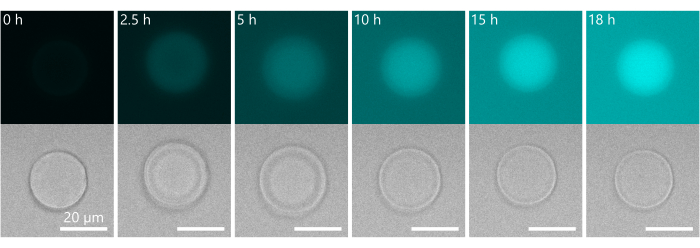
图5嵌入式DNA模板转录RNA适体的代表性结果。 延时成像显示通过转录嵌入C-star基序形成的凝聚体中的DNA模板,合成Broccoli荧光激活适体的过程 图1C适配体与转录混合物中存在的DFHBI结合,随时间推移诱导荧光增强。值得注意的是,凝聚体的形态随时间发生变化,呈现出核-壳结构。这一现象可能是由于凝聚体外层因局部RNA适配体的瞬时产生所引起的渗透压失衡,导致外层发生膨胀所致。适配体的合成可能优先发生在凝聚体的外层区域,这或与已有报道的适配体模板链倾向于在此区域富集的特性有关。30. 请点击此处以查看此图的放大版本。
补充表 1:单个组分不同设计方案的序列信息。 请点击此处下载该文件。
补充表2:每种设计的组分体积。 请点击此处下载该文件。
讨论
本文所述方案提供了一种从两亲性DNA纳米星制备单组分或双组分凝聚体的方法,并可通过设计变异使凝聚体具备不同的响应特性。该方案在含有0.3 M NaCl的TE缓冲液中生成凝聚体,但可通过适当调整上述体积来改变缓冲条件。先前的研究已在含有0.2 M NaCl或0.1 M NaCl的TE缓冲液以及磷酸盐缓冲盐水(PBS)中研究了C-star凝聚体的形成过程32。C-star凝聚体的终浓度为5 µM,但也可通过适当调整上述方案中的寡核苷酸浓度和/或添加体积进行调节。根据所需变异,可能需要在与第1节所述不同的浓度和缓冲体系中配制寡核苷酸储备液,尽管实验操作的基本流程保持不变。C-star的设计可轻易修改以引入新的功能或响应特性,具体方法详见前期研究32。设计变异包括引入对pH变化32、钾离子31或特定寡核苷酸序列30,32有响应的结构基序。若需设计新型结构,建议首先通过计算方法(如使用NUPACK39等工具)进行组装模拟,随后利用琼脂糖凝胶电泳检测相应的非胆固醇修饰纳米星的形成情况32,40。双组分凝聚体中相分离的程度取决于所用C-star种群的组合方式,如前期研究中所述30。需要注意的是,凝聚体形成所需的退火程序时间远长于折叠单个类似C-star的小型DNA纳米结构的典型时间。缓慢退火对于实现凝聚体更大尺度上的平衡至关重要。对于单组分凝聚体,建议退火时间为17小时;而对于双组分凝聚体,则需更长时间的退火程序(约3天),以接近热力学平衡状态。我们发现,该方案在迄今为止使用的所有不同C-star种群中均能获得可重复的结果;但如果研究人员希望提高样品通量,建议开展系统性研究,通过调节退火速率,寻找能够在测试体系中实现目标形貌的最短退火时间。建议保持95 °C下30分钟的孵育步骤不变,因为此步骤可有效灭菌,并有利于样品在毛细管中长期保存。
生成 C-star 凝聚物的腔室对其成功形成至关重要。该腔室应由玻璃或石英制成;使用聚丙烯等塑料容器(如典型的微量离心管材料)会因塑料与胆固醇基团之间的疏水相互作用而破坏自组装过程。退火容器的长径比以及 C-star 混合物的浓度也会影响凝聚物的特性,尤其是其尺寸和聚集状态。具体而言,若使用一种"较高"的容器,即底部表面积相对于高度较小的容器,C-star 凝聚物将沉积在底部并具有较高的表面密度,这有利于凝聚物之间接触点的形成。如果这些接触发生在热退火过程的后期,此时温度相对较低,凝聚物表现为高黏性液体或固体,则相互接触的凝聚物无法松弛为球形,而是形成部分融合的不规则聚集体。将 C-star 混合物移液至毛细管时,应小心避免引入气泡——大聚集体倾向于在气-水界面处形成,导致所提取的凝聚物尺寸和形态不理想。在注入 C-star 混合物或矿物油后,将毛细管两端干燥可提高粘合效果。所选粘合剂必须具有足够的黏度,能够完全覆盖毛细管开口而不被吸入管内,同时对矿物油呈惰性、与玻璃相容,并在所用退火温度下保持稳定。我们发现,尽管双组分 Araldite Rapid 环氧树脂粘合剂的耐温等级仅为 80 °C,但仍适用于我们的实验目的。粘合剂中的气泡或缝隙会导致毛细管密封不完全,从而在退火过程中发生泄漏。待胶水固化后,用铝箔包裹样品具有双重优势:既能防止泄漏,又能改善样品与热循环仪之间的热接触。铝箔应尽量保持平整光滑,以确保毛细管在退火过程中保持水平。退火后的毛细管中凝聚物可在室温下长期保存,必要时可再次进行退火。样品应小心处理——凝聚物在接触时容易发生融合,因此毛细管应平放储存。为获得最佳显微成像效果,可在保留毛细管完整的前提下对盖玻片进行划痕并移除。凝聚物直径通常大于 5 µm,我们在成像过程中未观察到明显的布朗运动29,30。
建议制备多批独立的C-star凝聚物,以确保样品间观察到的差异反映的是组分或退火条件的不同,而非由潜在实验误差引起的变化。
在提取过程中,可能会有少量玻璃微粒进入冷凝液溶液中。为尽量减少此类情况,可在将切割后的毛细管放入含有缓冲液的微量离心管之前,先用干净的Parafilm膜条轻轻蘸取毛细管的切口端,Parafilm膜对吸附玻璃微粒具有显著效果。在提取过程中,可通过短暂离心含有切割毛细管的微量离心管来最大化提取的冷凝液数量,但此操作可能增加冷凝液融合并形成非理想形态的风险。提取后,冷凝液应储存在冰箱温度下(通常为4 °C),并在三天内使用完毕,以避免潜在的生物污染问题;此外,由于微量离心管通常具有圆底或尖底形状,冷凝液会随时间推移发生聚集和融合。应避免对提取的冷凝液进行剧烈的移液操作,因为过强的剪切流可能导致其结构损伤。
在转录RNA适体时,可能需要调整所用转录反应体系的体积,因为每个独立反应中凝聚相的数量和大小(以及因此导致的模板浓度)无法精确控制。在第3节所述实验中,相对于理论模板浓度,使用了过量的转录反应体系。建议保留第3.1节中三次洗涤步骤的上清液,并用于进行转录反应。这些实验可提供溶液中未结合适体模板含量的参考信息。
C-star 平台的主要优势之一在于其灵活性和模块化特性。如上文及先前研究所述,可以设计出对多种输入信号产生响应的缩合物,例如通过趾控链置换或RNA适体转录单独或依次触发响应。结合其DNA构建单元固有的可编程性,两亲性DNA纳米星为合成细胞的设计与制备提供了一种稳定且多功能的解决方案。
披露
未声明任何利益冲突。
致谢
LM、LDM 和 DT 承认获得欧洲研究理事会(ERC)在“地平线 2020”研究与创新计划(ERC-STG No 851667 - NANOCELL)下的资助。LDM 承认获得英国皇家学会研究员研究资助(RGF/R1/180043)以及英国皇家学会大学研究员职位资助(UF160152, URF/R/221009)的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.22 μm 注射器滤器 | Sigma-Aldrich | SLGVR33RB | |
| 24 x 60 mm #1.5 矩形盖玻片,Menzel Gläser | VWR | 631-0853 | |
| 2-丙醇 | Sigma-Aldrich | 34683 | |
| 6 L 数显定时加热超声波清洗器,230 VAC | Cole-Parmer | WZ-08895-11 | |
| Araldite 快干型双组分环氧胶 | RS | ARA-400005 | |
| Bio-Rad C1000 梯度PCR仪 | Bio-Rad | 1851197 | |
| Brand 2 mL 带锁盖微量离心管 | Fisher Scientific | 15338665 | 用于C-star凝聚物的提取 |
| 金刚石划线笔 | RS | 394-217 | |
| 二氟-4-羟基亚苄基咪唑啉酮(DFHBI) | Sigma-Aldrich | SML1627 | |
| 二甲基亚砜(DMSO) | Sigma-Aldrich | 472301 | |
| Eppendorf PCR Clean 无色安全锁离心管 | Fisher Scientific | 0030123301 | 用于C-star混合物的制备 |
| 无水乙醇 99.8+% | Fisher Scientific | 10437341 | 70%乙醇足以满足清洁需求 |
| Fisherbrand ZX4 IR 涡旋混合器 | Fisherbrand | 13284769 | |
| Hellmanex III 清洗剂 | Hellma | 9-307-011-4-507 | |
| 空心矩形毛细管,内径 0.40 × 4.00 mm,长度 50 mm | CM Scientific | 2540-50 | |
| 矿物油 | Sigma-Aldrich | 69794 | |
| 迷你离心机,230 V | PRISM(TM) | Z763128 | |
| NaCl | Sigma-Aldrich | S3014 | |
| NanoDrop One 分光光度计 | Thermo Fisher Scientific | ND-ONE-W | 用于测定寡核苷酸的吸光度以计算浓度 |
| 寡核苷酸 | Integrated DNA Technologies | 定制 | 寡核苷酸序列根据所需C-star设计而定 |
| ScriptGuard RNase 抑制剂 | CELLSCRIPT | C-SRI6310K | RNase抑制剂 |
| T7-FlashScribe 转录试剂盒 | Cambio | C-ASF3507 | |
| Tris-EDTA 缓冲液,100× 储存液 | Sigma-Aldrich | 574793 | |
| UltraPure 无DNase/RNase蒸馏水 | Invitrogen | 10977035 | |
| VWR Spec-Wipe 3 擦拭纸 | VWR | 21914-758 |
参考文献
- Buddingh', B. C., Hest, J. C. M. v Artificial cells: Synthetic compartments with life-like functionality and adaptivity. Acc Chem Res. 50 (4), 769-777 (2017).
- Fanalista, F., et al. Shape and size control of artificial cells for bottom-up biology. ACS Nano. 13 (5), 5439-5450 (2019).
- Dora Tang, T. -Y., et al. Fatty acid membrane assembly on coacervate microdroplets as a step towards a hybrid protocell model. Nat Chem. 6 (6), 527-533 (2014).
- Deshpande, S., et al. Spatiotemporal control of coacervate formation within liposomes. Nat Commun. 10 (1), 1800(2019).
- Rubio-Sánchez, R., et al. Thermally driven membrane phase transitions enable content reshuffling in primitive cells. J Am Chem Soc. 143 (40), 16589-16598 (2021).
- Jahnke, K., Huth, V., Mersdorf, U., Liu, N., Göpfrich, K. Bottom-up assembly of synthetic cells with a DNA cytoskeleton. ACS Nano. 16 (5), 7233-7241 (2022).
- Tran, M. P., et al. A DNA segregation module for synthetic cells. Small. 19 (13), 2202711(2023).
- Mason, A. F., Buddingh', B. C., Williams, D. S., Hest, J. C. M. v Hierarchical self-assembly of a copolymer-stabilized coacervate protocell. J Am Chem Soc. 139 (48), 17309-17312 (2017).
- Gumz, H., et al. Toward functional synthetic cells: In-depth study of nanoparticle and enzyme diffusion through a cross-linked polymersome membrane. Adv Sci. 6 (7), 1801299(2019).
- Huang, X., Patil, A. J., Li, M., Mann, S. Design and construction of higher-order structure and function in proteinosome-based protocells. J Am Chem Soc. 136 (25), 9225-9234 (2014).
- Booth, R., Qiao, Y., Li, M., Mann, S. Spatial positioning and chemical coupling in coacervate-in-proteinosome protocells. Angew Chem Int Ed Engl. 58 (27), 9120-9124 (2019).
- Hindley, J. W., et al. Light-triggered enzymatic reactions in nested vesicle reactors. Nat Commun. 9 (1), 1093(2018).
- Zubaite, G., Hindley, J. W., Ces, O., Elani, Y. Dynamic reconfiguration of subcompartment architectures in artificial cells. ACS Nano. 16 (6), 9389-9400 (2022).
- Hirose, T., et al. A guide to membraneless organelles and their various roles in gene regulation. Nat Rev Mol Cell Biol. 24 (4), 288-304 (2023).
- Guindani, C., Silva, L. C. d, Cao, S., Ivanov, T., Landfester, K. Synthetic cells: From Simple Bio-Inspired Modules to Sophisticated Integrated Systems. Angew Chem Int Ed Engl. 61 (16), e202110855(2022).
- Adamala, K. P., et al. Present and future of synthetic cell development. Nat Rev Mol Cell Biol. 25 (3), 162-167 (2023).
- Allen, M. E., et al. Biomimetic behaviors in hydrogel artificial cells through embedded organelles. Proc Natl Acad Sci U S A. 120 (35), e2307772120(2023).
- Cook, A. B., Novosedlik, S., Hest, J. C. M. v Complex coacervate materials as artificial cells. Acc Mater Res. 4 (3), 287-298 (2023).
- Seeman, N. C., Sleiman, H. F. DNA nanotechnology. Nat Rev Mater. 3, 17068(2018).
- Takinoue, M. DNA droplets for intelligent and dynamical artificial cells: from the viewpoint of computation and non-equilibrium systems. Interface Focus. 13 (5), 20230021(2023).
- Liu, W., Lupfer, C., Samanta, A., Sarkar, A., Walther, A. Switchable hydrophobic pockets in DNA protocells enhance chemical conversion. J Am Chem Soc. 145 (13), 7090-7094 (2023).
- Wilner, O. I., Willner, I. Functionalized DNA nanostructures. Chem Rev. 112 (4), 2528-2556 (2012).
- Gong, J., Tsumura, N., Sato, Y., Takinoue, M. Computational DNA droplets recognizing miRNA sequence inputs based on liquid-liquid phase separation. Adv Funct Mater. 32, 2202322(2022).
- Jeon, B. -J., Nguyen, D. T., Saleh, O. A. Sequence-controlled adhesion and microemulsification in a two-phase system of DNA liquid droplets. J Phys Chem. 124 (40), 8888-8895 (2020).
- Sato, Y., Sakamoto, T., Takinoue, M. Sequence-based engineering of dynamic functions of micrometer-sized DNA droplets. Sci Adv. 6 (23), 3471(2020).
- Saleh, O. A., et al. Vacuole dynamics and popping-based motility in liquid droplets of DNA. Nat Commun. 14 (1), 3574(2023).
- Rubio-Sánchez, R., Fabrini, G., Cicuta, P., Michele, L. D. Amphiphilic DNA nanostructures for bottom-up synthetic biology. Chem Commun. 57 (95), 12725-12740 (2021).
- Brady, R. A., Brooks, N. J., Cicuta, P., Di Michele, L. Crystallization of amphiphilic DNA C-Stars. Nano Lett. 17 (5), 3276-3281 (2017).
- Leathers, A., et al. Reaction-diffusion patterning of DNA-based artificial cells. J Am Chem Soc. 144 (38), 17468-17476 (2022).
- Malouf, L., et al. Sculpting DNA-based synthetic cells through phase separation and phase-targeted activity. Chem. 9 (11), 3347-3364 (2023).
- Fabrini, G., Minard, A., Brady, R. A., Antonio, M. D., Michele, L. D. Cation-responsive and photocleavable hydrogels from noncanonical amphiphilic DNA nanostructures. Nano Lett. 22 (2), 602-611 (2022).
- Brady, R. A., Brooks, N. J., Foderà, V., Cicuta, P., Di Michele, L. Amphiphilic-DNA platform for the design of crystalline frameworks with programmable structure and functionality. J Am Chem Soc. 140 (45), 15384-15392 (2018).
- Walczak, M., et al. Responsive core-shell DNA particles trigger lipid-membrane disruption and bacteria entrapment. Nat Commun. 12 (1), 4743(2021).
- Zhang, D. Y., Winfree, E. Control of DNA strand displacement kinetics using Toehold exchange. J Am Chem Soc. 131 (47), 17303-17314 (2009).
- Integrated DNA Technologies OligoAnalyzer Tool. , Available from: https://www.idtdna.com/pages/products/custom-dna-rna/dna-oligos/custom-dna-oligos (2024).
- Cavaluzzi, M. J., Borer, P. N. Revised UV extinction coefficients for nucleoside-5'-monophosphates and unpaired DNA and RNA. Nucleic Acids Res. 32 (1), e13(2004).
- Lattuada, E., Caprara, D., Piazza, R., Sciortino, F. Spatially uniform dynamics in equilibrium colloidal gels. Sci Adv. 7 (49), (2021).
- T7-FlashScribeTM Transcription Kit. , Available from: https://www.cellscript.com/products/018pl0617CS.pdf (2017).
- Zadeh, J. N., et al. NUPACK: Analysis and design of nucleic acid systems. J Comput Chem. 32 (1), 170-173 (2011).
- Walczak, M., Brady, R. A., Leathers, A., Kotar, J., Di Michele, L. Influence of hydrophobic moieties on the crystallization of amphiphilic DNA nanostructures. The Journal of Chemical Physics. 158 (8), 084501(2023).
重印与许可
