提供了一种利用可调节密度的RGD功能化亲和素-生物素连接臂对单个迁移血小板进行成像的详细方案,揭示出血小板产生的力足以断裂亲和素-生物素键。
本文内容
摘要
摘要
尽管血小板是无细胞核的细胞碎片,但如今已被广泛认可具有多种功能。它们不仅能在损伤后形成血凝块以防止出血,还能在感染时参与免疫防御,并在炎症性疾病中维持血管完整性。止血栓的形成依赖于血小板的集体活化与聚集,而其在保护发炎血管方面的作用则是在单细胞水平上完成的。在此背景下,近期研究数据显示,血小板能够自主迁移,这一过程依赖于其对黏附环境的机械感知能力。本文介绍了一种用于成像单个血小板迁移的详细实验方案,采用三层包被系统:第一层为聚-L-赖氨酸接枝聚乙二醇-生物素(PLL-PEG-biotin)骨架(1),第二层为荧光标记的亲和素连接分子(2),第三层为生物素标记的环状精氨酸-甘氨酸-天冬氨酸肽段(cRGD)(3),作为血小板整合素的结合基序。该简化策略可精确调控基底的黏附特性,并提供一种简单、标准化的 体外 研究血小板迁移机制的检测方法。结果表明,迁移中的血小板与cRGD结合后可产生足以破坏亲和素-生物素键的力。此外,生物素化cRGD的密度显著影响血小板的铺展和迁移。
引言
血小板是由骨髓中巨核细胞产生的无细胞核的微小细胞碎片。活化的血小板可聚集形成血栓,从而在生理性止血过程中封闭血管损伤,或在病理性血栓形成中阻塞病变的血管1。然而,近几十年来人们逐渐认识到,血小板在炎症、感染和恶性肿瘤的病理生理过程中也发挥着核心作用,其与免疫细胞、癌细胞以及入侵病原体之间的多方面相互作用,对调控宿主免疫反应至关重要2,3。最新研究数据显示,血小板具有自主迁移的能力4。在全身性菌血症发生时,血小板被招募至肝窦状隙,在此处黏附并迁移。这种迁移能力使血小板能够捕获并结合细菌,进而促进白细胞的活化。值得注意的是,在此过程中血小板始终停留在血管内,不会迁移至内皮下组织4。此外,血小板也是血管炎症的哨兵,可沿受炎症影响的血管巡视,识别由外渗的免疫细胞引起的微小损伤5,并通过迁移行为保护发炎的血管6,7。在此过程中,血小板利用其整合素结合沉积在炎症内皮上的纤维蛋白原,并形成片状伪足,以探测周围环境的黏附特性。随后血小板发生极化,并向纤维蛋白原密度更高的区域迁移,这一过程称为趋黏附性(haptotaxis)。定向迁移最终使血小板定位至内皮微损伤部位,防止肌肉和肺等炎症组织发生出血。
血小板迁移高度依赖于黏附基质的力学特性4,8感知和转导环境机械特性的任务主要由整合素受体介导,整合素受体是跨膜异源二聚体蛋白,由α和β亚基组成,其胞外结构域与细胞外基质上的配体结合,胞内结构域与肌动蛋白细胞骨架结合 通过 衔接蛋白9,10血小板中最丰富的整合素是 αIIbβ3, 其主要配体是纤维蛋白(原)11整合素-配体结合触发信号转导事件,最终形成由Arp2/3介导的片状伪足,构成黏附血小板的前沿边缘7粘附的血小板通过施加拉力,立即探测其黏附环境的力学特性4当肌球蛋白IIa依赖性牵拉力超过细胞外基质(如纤维蛋白原/纤维蛋白)的机械稳定性时,血小板会机械性地断裂这些被削弱的配体,并利用其片状伪足突起扫描微环境中的黏附配体,形成新的基质连接,并迁移离开配体耗竭的区域6由非蛋白水解性机械配体耗竭驱动的细胞迁移可能在血小板功能之外也发挥重要作用,因为这一现象似乎普遍存在于能够通过机械方式重塑其黏附基质的细胞中8配体耗竭速率决定迁移速度,且取决于底物上配体的稳定性和配体密度8血小板在低配体密度下能够机械性破坏工程化整合素配体(环状精氨酸-甘氨酸-天冬氨酸(cRGD))6,7 用玻璃盖玻片结合 结合力约为160皮牛顿(pN)的生物素-亲和素连接分子12,13,14,15.
在此,利用这些观察结果开发了一种简单的体外(in vitro)方案,用于制备配体不稳定的黏附表面,以促进对血小板迁移机制的研究。本方案所述的黏附涂层包含三个基本组分:(1)PLL-PEG-生物素骨架,(2)中性亲和素-异硫氰酸荧光素(NA-FITC)连接分子,该连接分子可介导(3)生物素化cRGD(一种黏附配体)与PLL-PEG-生物素骨架的结合(另见图1B)。该结构的稳定性取决于生物素-亲和素键的强度,该键可能在(A)PLL-PEG-生物素-NA-FITC 或(B)FITC-NA-生物素-cRGD 界面处断裂。此外,通过调节底层中 PLL-PEG-生物素与 PLL-PEG 的比例,可调控黏附配体的密度。当键(A)断裂时,FITC 会从涂层中释放,导致迁移血小板下方荧光信号的减弱。因此,本方案所述的涂层不仅可精确调控基底的机械性能和黏附特性,还可通过简便的荧光信号读取血小板迁移过程。
方案
本研究中进行的动物实验均遵守涉及小鼠研究的所有相关伦理规定,并已获得当地动物保护法规的批准(德国慕尼黑上巴伐利亚行政区政府,190-15,2015)。实验使用8至10周龄(体重20-25 g)的雌性和雄性C57BL/6小鼠。所用试剂和设备的详细信息见材料表。
1. 生物素-链霉亲和素-生物素 cRGD 涂层
- 将玻璃盖玻片(24 mm × 24 mm;#1.5)置于20% HNO3中进行超声处理1分钟,随后分别在异丙醇、乙醇和H2O中各超声处理1分钟。每次超声后,用去离子水(ddH2O)充分冲洗盖玻片,最后在培养箱中干燥。
- 将预清洁的盖玻片在等离子清洗仪中用O2等离子体处理2分钟,然后按照先前描述的方法16与粘性载玻片组装。粘性载玻片与玻璃盖玻片之间将形成一个通道(如图1A所示)。
注意:有效的等离子体处理至关重要。请使用O2作为等离子体源。 - 向通道中加入2.5 µL PLL-PEG-生物素(1 mg/mL),该溶液用97.5 µL的PLL-PEG(1 mg/mL)稀释,室温(RT)孵育30分钟,然后用PBS洗涤三次。PLL-PEG-生物素将在下一步中结合链霉亲和素,而PLL-PEG骨架则形成惰性基底,防止蛋白质和血小板的非特异性结合。
注意:包被溶液中PLL-PEG-生物素的浓度决定了最终cRGD配体的密度。 - 加入100 µL中性亲和素-FITC(25 µg/mL),避光、室温孵育30分钟,然后用PBS洗涤三次。
注意:应根据PLL-PEG-生物素的浓度调整中性亲和素-FITC的浓度。若包被的PLL-PEG-生物素密度较高,则需提高中性亲和素-FITC的浓度。 - 加入100 µL环状[Arg-Gly-Asp-D-Phe-Lys (Biotin-PEG-PEG)](cRGD-生物素)(0.1–1 µM),室温孵育30分钟,然后用PBS洗涤三次。盖玻片即可使用。包被过程的示意图见图1B。
2. 从小鼠血液中分离血小板
- 配制改良的Tyrode缓冲液,其中含有136.9 mM NaCl、12.1 mM NaHCO3、2.6 mM KCl、5.5 mM葡萄糖、10 mM HEPES,并将pH分别调节至7.4和6.5。
- 按照机构批准的方案,通过腹腔注射0.5 mg/kg芬太尼、5 mg/kg咪达唑仑和0.05 mg/kg美托咪啶对小鼠进行麻醉。通过夹趾反应确认麻醉深度后,用剪刀去除胸部皮肤。
- 准备一支2 mL注射器(26 G针头),加入150 µL酸性枸橼酸葡萄糖溶液(ACD)作为抗凝剂。将针头插入胸骨左侧第二与第三肋骨之间,从心脏采血。随后通过颈椎脱臼法处死 小鼠 。
注意:(1)ACD缓冲液成分:85 mM三水合柠檬酸钠和65 mM一水合柠檬酸溶于111 mM葡萄糖溶液中。(2)采血过程应平稳,避免形成血凝块。从8至10周龄小鼠可获得约1 mL血液。 - 将血液与1 mL Tyrode缓冲液(pH 6.5)混合于5 mL FACS(聚苯乙烯圆底)管中,在室温下以70 × g离心20分钟,关闭刹车。
- 离心后,取上层富含血小板的血浆(PRP,约1 mL)。加入3 mL Tyrode缓冲液(pH 6.5),并添加100 ng/mL前列环素(PGI2)以防止血小板活化。
- 在室温下以1200 × g离心5分钟,弃去上清液,将沉淀物重悬于500 µL Tyrode缓冲液(pH 6.5)中,并使用血细胞计数板测定血小板数量。
3. 小鼠血小板在生物素-链霉亲和素-生物素 cRGD 涂层上的迁移
- 在改良的Tyrode's缓冲液(pH 7.4)中加入10 × 103/µL 小鼠血小板,1 mM CaCl₂2,2 µM U46619 和 4 µM 腺苷-5′-二磷酸钠盐(ADP),用移液器将总体积 240 µL 加入步骤 1 中制备的通道中。
- 使用配备载物台培养箱的倒置显微镜记录活体血小板迁移。或者,将通道在37 °C培养箱中孵育1小时。
- 用4%多聚甲醛在室温下固定样品10分钟,随后用PBS洗涤五次。
- 用含0.2% Triton-X的PBS溶液对血小板透化处理5分钟,随后用PBS洗涤五次。
- 将 2.5 µL Alexa Fluor 594 鬼笔环肽(40 倍甲醇储存液)溶于 100 µL PBS 中。避光孵育血小板 30 分钟,随后用 PBS 洗涤五次。
- 在荧光显微镜下观察载玻片。
4. 定量分析
注意:形成丝状伪足(指状突起)或片状伪足(片状突起)的血小板被计为黏附血小板4。迁移距离超过其直径一倍以上的血小板被定义为迁移血小板。
- 迁移血小板比例:通过计数血小板黏附或迁移数量来确定 多点 Fiji 中的工具。在下拉菜单上单击右键 点工具 在工具栏中选择 多点 工具。通过将迁移血小板数量除以黏附血小板数量,计算迁移血小板的比例。
- 迁移平均距离:通过测量迁移路径的长度,从固定样本中提取迁移距离 "印记" 使用中性亲和素-FITC包被的 自由手绘线 工具。右键单击下拉菜单中的 直线 在工具栏中选择 自由手绘线 工具
- 血小板形态学描述符:通过分割荧光标记的血小板(Alexa594-Phalloidin)生成二值化掩膜,使用以下方法 阈值 功能。选择 图像 > 调节 > 阈值 在工具栏中。
- 面积、周长、圆形度和长宽比等形态学参数可被获取 分析颗粒选择形状描述符 分析 > 设置测量参数,然后选择 显示结果 在 分析 > 分析颗粒.
结果
活化的血小板 readily 黏附并铺展在 PLL-PEG-biotin-neutravidin-FITC-biotin-cRGD 包被的载玻片上图1C 和 图 2A;0 分钟和 5 分钟)并随后通过在前沿形成片状伪足实现极化(图 2A;10 分钟)。在此过程中,拟核(血小板中央的深色区域)从血小板中央移向其后部图2A)。极化后的血小板随后开始迁移,但无明显方向性(图2A;15 分钟和 20 分钟 图2B)。我们观察到,血小板在PLL-PEG-生物素-中性亲和素-FITC-生物素-cRGD涂层上迁移时,可破坏中性亲和素-FITC-生物素-PLL-PEG键,表现为迁移路径上的荧光强度降低(图1C 和 图2A,B)。此外,解体的中性亲和素-FITC-生物素-cRGD 复合物在血小板表面聚集。图2A,B)。这一现象与先前的研究结果相似,即迁移中的血小板会从基质上清除纤维蛋白原,并将其积聚于自身的开放小管系统(OCS)中。4.
为了研究配体密度如何影响血小板迁移,通过调整第一层包被中 PLL-PEG-biotin 与 PLL-PEG 的比例来调节 cRGD 的密度。这些数据表明,小鼠血小板在 PLL-PEG-biotin 浓度为 2.5% 时迁移效果最佳。当 PLL-PEG-biotin 浓度较低(1%)或较高(10%)时,血小板迁移均有所下降(图 3A,B)。这种依赖于基底的迁移行为变化伴随着血小板形态的改变(图 3C)。在低配体密度(1%)条件下,血小板无法充分铺展,表现为投影面积和周长较小(图 3C),提示整合素激活及外向内信号转导不足7。因此,血小板无法对 cRGD 配体施加作用力,不能重塑基底,也无法实现迁移(图 3A,B)。
在配体密度为中等水平(2.5%)时,血小板面积和周长显著增加(图3C)。血小板有效铺展,通过机械作用破坏不稳定的cRGD配体,并发生迁移(图3A,B)。然而,在高配体密度(10%)下,尽管铺展增加,血小板无法极化,表现为长宽比降低(图3C)。在此条件下,血小板仍附着在黏性基质上而不发生迁移,因为它们无法断裂不稳定的cRGD配体(图3A,B).
这些研究结果表明,血小板迁移严重依赖于基底的黏附特性。只有当血小板充分结合黏附配体,并同时产生足够强的牵引力以克服黏附基底的张力耐受限度时,才能发生迁移4,6,7,8。
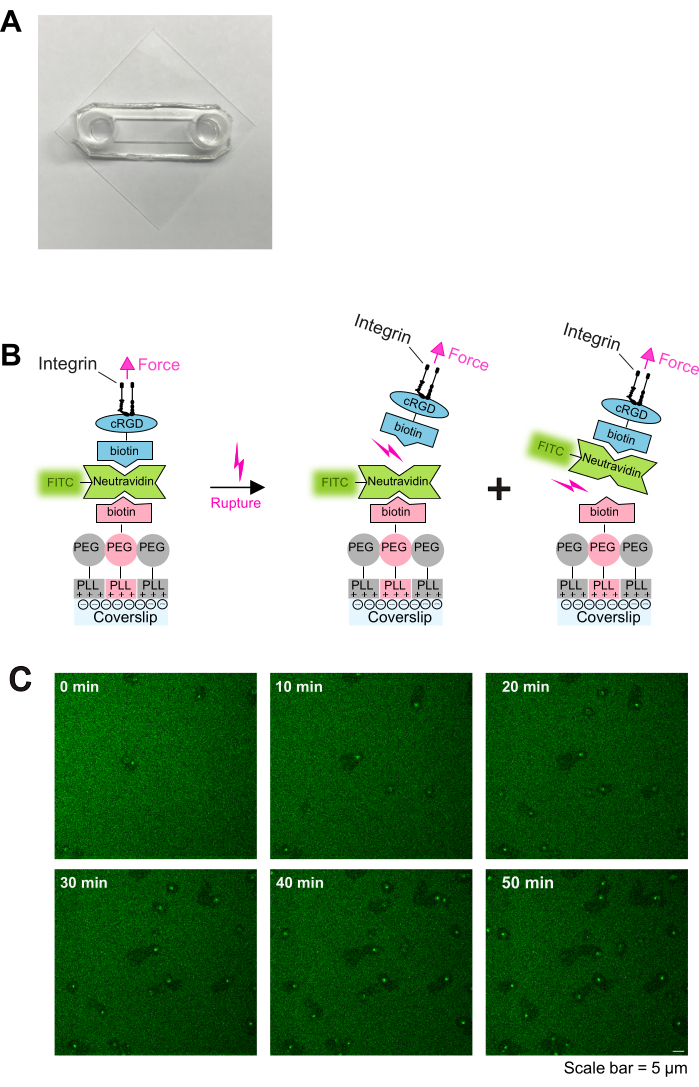
图1血小板-基质相互作用的包被程序与活细胞成像 (A组装好的腔室照片。B) 实验方案原理。左图:包被示意图。经等离子处理的玻璃盖玻片被包被三层分子。第一层为PLL-PEG与PLL-PEG-生物素的混合物(PLL-PEG骨架对细胞呈惰性,可防止非特异性结合)。第二层为中性亲和素-FITC(neutravidin-FITC),第三层为生物素化环状精氨酸-甘氨酸-天冬氨酸肽(biotin-cRGD)。中性亲和素-FITC介导PLL-PEG-生物素与biotin-cRGD之间的连接。血小板结合至biotin-cRGD位点 通过 质膜中的整合素。右图:血小板整合素介导的生物素-亲和素解离示意图。血小板通过整合素与cRGD的结合对基底施加力,导致上层cRGD-生物素–中性亲和素-FITC键或下层中性亲和素-FITC–PLL-PEG-生物素键发生断裂。当中性亲和素-FITC与生物素-PLL-PEG之间的下层键断裂时,荧光信号减弱;而当cRGD-生物素与中性亲和素-FITC之间的上层键断裂时,荧光信号不发生变化。 (C) 显示血小板迁移及不稳定cRGD配体耗竭的时间序列。荧光减弱区域指示血小板的迁移轨迹(另见 图 2A),荧光增强的区域表明FTIC-亲和素-生物素-cRGD在迁移血小板上的聚集。比例尺: 5 µm. 请点击此处以查看此图的放大版本。
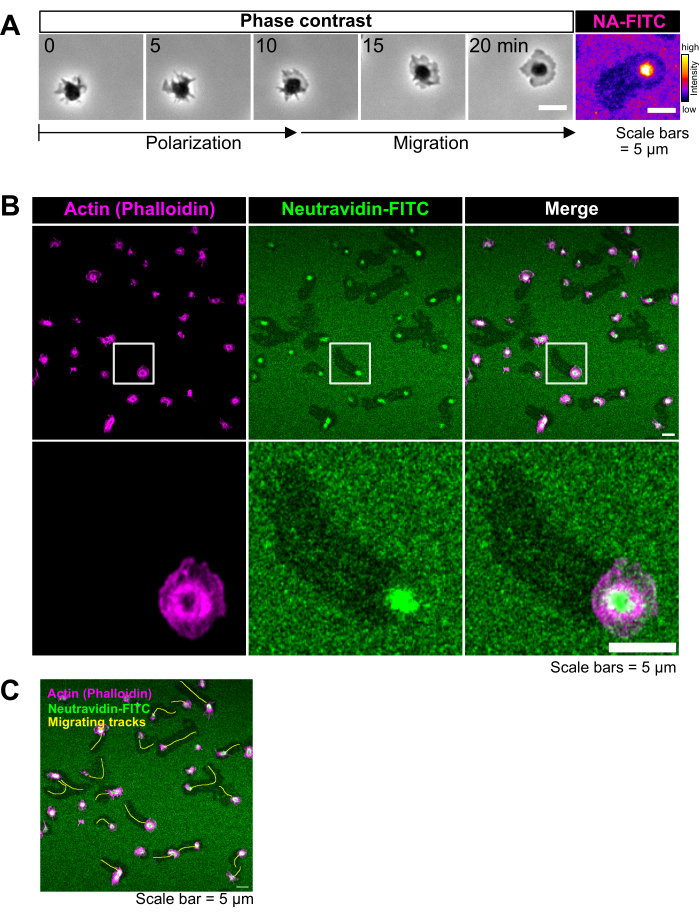
图 2:由重构基底编码的血小板迁移的免疫荧光成像。(A)单个血小板迁移的代表性电影序列。左图:迁移血小板的相差图像。血小板在前缘形成片状伪足而发生极化,并随后迁移。右图:从基底上去除了中性亲和素-FITC,留下血小板迁移的“足迹”。破裂的cRGD-生物素-中性亲和素-FITC在迁移血小板的中心区域积聚。(B)在配体不稳定的cRGD-生物素-亲和素涂层上血小板迁移的代表性图像。上图:用鬼笔环肽(Alexa FluorTM 594)染色的血小板显示出大片状伪足形成和极化形态,类似于迁移中的血小板。迁移的血小板破裂cRGD-生物素-中性亲和素-FITC键,从而在基底上形成迁移路径,表现为FITC信号降低。下图:裁剪后放大倍数更高的图像。(C)在Fiji软件中以黄线手动绘制迁移轨迹。比例尺:5 µm。请点击此处查看该图的放大版本。
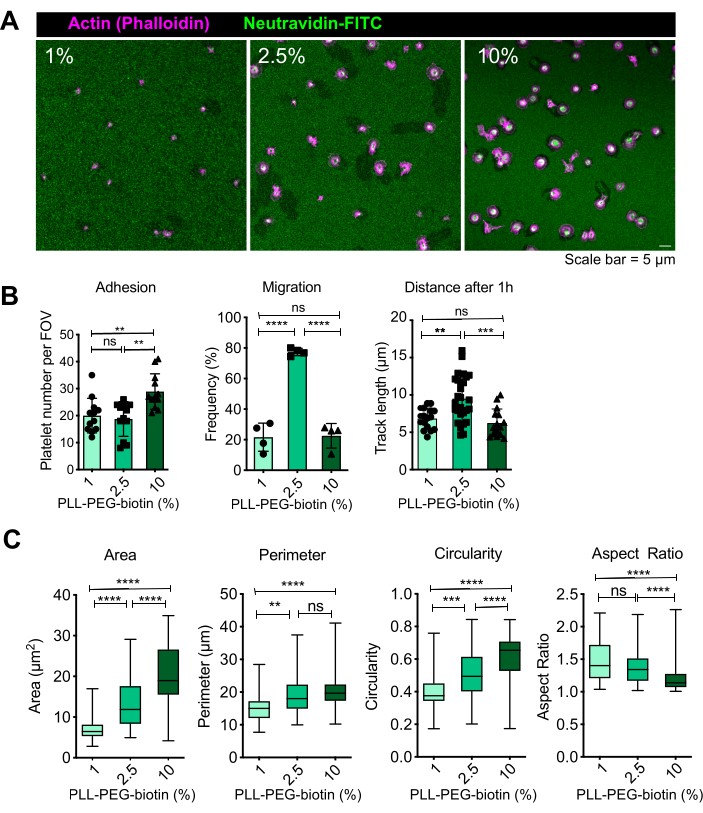
图3:PLL-PEG-biotin与PLL-PEG的比例决定血小板的迁移和形态。(A)血小板在1%、2.5%和10% PLL-PEG-biotin包被表面的代表性图像,比例尺:5µm。(B)血小板黏附、迁移效率和迁移距离的定量分析,n = 4次独立实验;均值/标准差;单因素方差分析/图基检验;**p < 0.01;***p < 0.001;****p < 0.0001;ns:无显著性差异。(C)血小板形态参数(面积、周长、圆形度和长宽比)的定量分析,n = 4次独立实验;均值/最小值-最大值;单因素方差分析/图基检验;**p < 0.01;***p < 0.001;****p < 0.0001;ns:无显著性差异。请点击此处查看本图的放大版本。
讨论
本方案介绍了一种三层涂层制备方法,包括:(1)PLL-PEG-生物素骨架层,(2)中性亲和素-FITC连接层,该层可促进(3)生物素化cRGD(一种黏附性配体)与PLL-PEG-生物素骨架层的结合(另见图1B)。通过调节PLL-PEG-生物素与PLL-PEG的比例,可精确调控基底的力学性能和黏附特性,并实现基于荧光的血小板迁移情况的便捷检测。本方案使用FITC标记的中性亲和素和Alexa Fluor 594标记的鬼笔环肽来追踪血小板的迁移 和形态变化,但也可选用其他荧光染料标记的亲和素和鬼笔环肽。由于所有涂层试剂(包括PLL-PEG、PLL-PEG-生物素、中性亲和素-FITC和生物素-cRGD)以及血小板激活剂均可从商业途径获得,因此该实验无需额外复杂的准备工作即可开展。其中关键步骤为等离子体处理,因为等离子体处理效率不足会导致PLL-PEG/PLL-PEG-生物素无法充分结合至基底表面,从而造成血小板无法黏附和迁移。等离子体清洗仪的性能至关重要。通常,使用13.6 MHz发生器的等离子体清洗仪效果优于40 kHz或100 kHz的设备。此外,采用氧气等离子体源比使用环境空气更为合适。在成功完成等离子体处理后,后续涂层步骤几乎不易出现操作失误。
血小板此前已被证实采用间充质样迁移模式,该模式高度依赖于基质黏附4,17类似于成纤维细胞,当配体密度较低时,血小板难以黏附于基底,从而阻碍迁移;而当配体密度过高时,牢固的黏附难以解离,同样会抑制迁移18 (图3)。在中等密度下,血小板确实会发生黏附,但肌球蛋白IIA依赖性的单个整合素键牵引力仍足以破坏黏附。值得注意的是,整合素α之间的高亲和力IIbβ3 及其配体纤维蛋白原(纤维蛋白)导致黏附结构解体,并非通过释放黏附配体实现,而是通过配体从其下方基质(如内皮细胞)发生断裂或脱离所致 体内 或盖玻片 体外4,6使纤维蛋白原从底层基质上解离所需的解离力在很大程度上受到物理和(生物)化学性质的影响,而这些性质通常难以控制,可能导致迁移效率出现显著差异。本文介绍的检测方法提供了一种简化策略以应对这一问题。然而,由于亲和素-生物素键的断裂力固定在约160 pN,因此若需研究较低受力条件下血小板的黏附行为,则必须采用更为复杂的张力传感器,例如基于双链DNA连接臂的传感器。19.
先前的研究发现,血小板迁移参与了细菌感染和血管炎症的 体内 过程。因此,具有迁移缺陷的血小板(例如肌球蛋白收缩性受损、肌动蛋白聚合障碍或整合素外向内信号传导异常)在清除细菌和维持血管完整性方面功能受损4,6,7。本文所介绍的方法简便、稳定,因而适用于筛选小分子抑制剂及其对血小板迁移的影响。该方法提供了一种新的 体外 工具,可用于探索炎症或血栓形成中的治疗靶点。
披露
作者无任何利益冲突需要披露。
致谢
本工作由德国研究基金会(Deutsche Forschungsgemeinschaft,DFG)资助,项目编号为514478744和514477451(授予F.G.)。该项目由欧盟(欧洲研究理事会ERC,MEKanics,101078110)资助。所表达的观点和意见仅为作者(们)的观点,不一定反映欧盟或欧洲研究理事会执行机构的观点。欧盟或资助机构对此不承担任何责任。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 5′-二磷酸腺苷钠盐(ADP) | Sigma-Aldrich | A2754 | |
| Alexa Fluor 594 鬼笔环肽 | Thermofisher | A12381 | |
| 血细胞计数仪 | Sysmex | XN-1000 | |
| 无底六通道粘附滑片 | IBIDI, sticky slides VI0.4 | 80608 | |
| 离心机 | Eppendorf | 5804 | |
| 共聚焦显微镜 | Zeiss | LSM880 | |
| 环状 [Arg-Gly-Asp-D-Phe-Lys(Biotin-PEG-PEG)] | Peptide international | PCI-3697-PI | |
| FACS 管 | Corning Brand | 352052 | |
| FITC 标记的中性亲和素 | Thermofisher | A2662 | |
| 甲醛 | Thermofisher | 28908 | |
| HEPES 溶液 | Sigma-Aldrich | H0887 | |
| 相差与落射荧光显微镜 | Olympus | IX83 | |
| 等离子清洗仪 | Diener | 116531 | |
| PLL(20)-g[3.5]-PEG(2)/PEG(3.4)-biotin(50%) | Susos | PLL(20)-g[3.5]-PEG(2)/PEG(3.4)-biotin (50%) | |
| 聚(L-赖氨酸)-接枝-聚乙二醇共聚物 | Susos | PLL(20)-g[3.5]-PEG(2) | |
| 前列环素 I2 钠盐(PGI2) | Abcam | ab120912 | |
| 超声破碎仪 | BANDELIN | SONNOREX RK514M | |
| 20% (v/v) Triton X-100 | Cayman Chemical | 600217 | |
| U46619 | Enzo Life Sciences | BML-PG023-0001) |
参考文献
- Jackson, S. P. Arterial thrombosis--insidious, unpredictable and deadly. Nat Med. 17, 1423-1436 (2011).
- Kaiser, R., Escaig, R., Nicolai, L. Hemostasis without clot formation: how platelets guard the vasculature in inflammation, infection, and malignancy. Blood. 142 (17), 1413-1425 (2023).
- Gaertner, F., Massberg, S. Patrolling the vascular borders: Platelets in immunity to infection and cancer. Nat Rev Immunol. 19 (12), 747-760 (2019).
- Gaertner, F., et al. Migrating platelets are mechano-scavengers that collect and bundle bacteria. Cell. 171 (6), 1368-1382.e23 (2017).
- Gros, A., et al. Single platelets seal neutrophil-induced vascular breaches via GPVI during immune-complex-mediated inflammation in mice. Blood. 126 (8), 1017-1026 (2015).
- Nicolai, L., et al. Vascular surveillance by haptotactic blood platelets in inflammation and infection. Nature Comm. 11, 5778(2020).
- Kaiser, R., et al. Mechanosensing via a GpIIb/Src/14-3-3zeta axis critically regulates platelet migration in vascular inflammation. Blood. 141 (24), 2973-2992 (2023).
- Sarkar, A., LeVine, D. N., Kuzmina, N., Zhao, Y., Wang, X. Cell migration driven by self-generated integrin ligand gradient on ligand-labile surfaces. Curr Biol. 30 (20), 4022-4032 (2020).
- Hynes, R. O. Integrins: Bidirectional, allosteric signaling machines. Cell. 110 (6), 673-687 (2002).
- Kechagia, J. Z., Ivaska, J., Roca-Cusachs, P. Integrins as biomechanical sensors of the microenvironment. Nat Rev Mol Cell Biol. 20, 457-473 (2019).
- Shattil, S. J., Newman, P. J. Integrins: Dynamic scaffolds for adhesion and signaling in platelets. Blood. 104 (6), 1606-1615 (2004).
- Yuan, C., Chen, A., Kolb, P., Moy, V. T. Energy landscape of streptavidin-biotin complexes measured by atomic force microscopy. Biochemistry. 39 (33), 10219-10223 (2000).
- Florin, E. L., Moy, V. T., Gaub, H. E. Adhesion forces between individual ligand-receptor pairs. Science. 264 (5157), 415-417 (1994).
- Merkel, R., Nassoy, P., Leung, A., Ritchie, K., Evans, E. Energy landscapes of receptor-ligand bonds explored with dynamic force spectroscopy. Nature. 397, 50-53 (1999).
- Jurchenko, C., Chang, Y., Narui, Y., Zhang, Y., Salaita, K. S. Integrin-generated forces lead to streptavidin-biotin unbinding in cellular adhesions. Biophys J. 106 (7), 1436-1446 (2014).
- Fan, S., Lorenz, M., Massberg, S., Gaertner, F. Platelet migration and bacterial trapping assay underflow. Bio-Protocol. 8 (18), e3018(2018).
- Lauffenburger, D. A., Horwitz, A. F. Cell migration: A physically integrated molecular process. Cell. 84 (3), 359-369 (1996).
- Palecek, S. P., Loftus, J. C., Ginsberg, M. H., Lauffenburger, D. A., Horwitz, A. F. Integrin-ligand binding properties govern cell migration speed through cell-substratum adhesiveness. Nature. 385, 537(1997).
- Zhao, Y., Wetter, N. M., Wang, X. Imaging integrin tension and cellular force at submicron resolution with an integrative tension sensor. J Vis Exp. (146), e59476(2019).
重印与许可
