本方案描述了一种简单且经济高效的方法,用于研究和量化人结肠类器官在细胞毒性干扰物(如细胞因子)作用下的细胞死亡。该方法采用荧光细胞死亡染料(SYTOX Green 核酸染色剂)、活细胞荧光显微镜和开源图像分析软件,以量化单个类器官对细胞毒性刺激的反应。
本文内容
摘要
摘要
炎症性肠病(IBD)患者,如溃疡性结肠炎(UC)和克罗恩病(CD)患者,其肠上皮细胞(IEC)死亡增加。这可能导致肠道屏障功能缺陷、炎症加重以及疾病免疫病理发生。细胞因子和死亡受体配体部分介导了IEC死亡的增加。与IBD相关的细胞因子,如TNF-α和IFN-γ,无论是单独作用还是联合使用,均对IEC具有细胞毒性。本实验方案描述了一种简单且实用的检测方法,利用荧光细胞死亡染料(SYTOX Green核酸染料)、活细胞荧光显微镜和开源图像分析软件,定量检测来自CD患者结肠类器官中细胞因子诱导的细胞毒性。我们还展示了如何使用Bliss独立性数学模型,基于类器官细胞毒性计算扰动因子相互作用系数(CPI)。该CPI可用于判断细胞因子组合或其他类型扰动因子之间的相互作用是拮抗性、相加性还是协同性。本方案可用于利用患者来源的结肠类器官研究细胞因子及其他扰动因子的细胞毒性活性。
引言
肠上皮在肠腔内容物与下方组织之间形成一道物理性的半透屏障。为了有效维持这一屏障,肠上皮细胞(IECs)具有极高的细胞更新率,持续进行着细胞死亡与再生的循环过程。然而,在炎症性疾病(如炎症性肠病(IBD))期间,异常的细胞死亡水平升高1。这可能导致屏障功能受损,并激活免疫系统,进而引发进一步的炎症反应。在克罗恩病(CD)(一种IBD)中,已有研究表明,细胞因子信号传导可导致IEC死亡水平升高2。通过研究细胞因子信号如何诱导IEC死亡,有望为IBD及其他肠道炎症性疾病患者开发出更有效的治疗方法1。
在生物学和药物靶点发现研究中,协同作用通常指生物系统在接受单独刺激物的组合处理后,其对组合刺激的反应强于各单独刺激物效应的简单加和。细胞因子之间的协同作用在驱动先天抗病毒反应方面已有充分报道3。已知细胞因子还可协同诱导细胞死亡,包括在肠上皮细胞(IECs)中的作用4。然而,协同性细胞毒性细胞因子信号在炎症性肠病(IBD)等肠道炎症性疾病中的作用尚未得到充分研究。
人类肠道类器官是由三维微组织构成的 体外 由肠上皮干细胞生成的类器官。炎症性肠病(IBD)患者的肠道黏膜活检样本可培养出肠类器官,且这些类器官保留了该疾病的多种特征5,6类器官已被证明是研究肠道炎症背景下细胞因子细胞毒性的理想模型系统7,8此前,我们的研究团队已表征了炎症性肠病相关细胞因子IFN-γ和TNF-α在克罗恩病患者来源的结肠类器官(colonoids)中协同杀伤作用9,10然而,介导这种协同性细胞死亡的确切机制仍不明确。此外,可能还存在许多尚未被表征的、与肠道炎症性疾病相关的细胞毒性细胞因子相互作用。
目前已有多种方案可用于研究肠道类器官中的细胞死亡10,11,12,13;然而,这些方法均存在一定的局限性。其中一些技术仅能检测细胞活力,而无法直接测量细胞死亡,或无法评估单个类器官的反应,或需要昂贵的设备和复杂的操作流程。因此,迫切需要建立可靠且简便的方法,以定量分析肠道类器官中的细胞死亡及其与扰动因子的相互作用。本文所介绍的方案是一种简单且经济的方法,可用于检测单个类器官对细胞毒性细胞因子的反应,但也可适用于任何其他类型的刺激物或扰动因子。我们还展示了如何利用 Bliss 独立性协同作用模型计算扰动因子相互作用系数(CPI),以描述细胞毒性细胞因子之间的相互作用。
方案
从接受常规结肠镜检查作为标准护理一部分的克罗恩病(CD)患者中采集结肠黏膜活检样本。使用患者组织样本并从这些样本建立结肠类器官系的研究已获得科克教学医院临床研究伦理委员会(CREC)的伦理批准。所有患者均按照《赫尔辛基宣言》的要求签署书面知情同意书。所有涉及患者活检样本和类器官的组织培养操作必须在生物安全柜内按照BSL2安全规程进行。确保所有塑料器皿在使用前均为无菌状态。有关本方案中使用的所有材料、试剂、仪器和软件的详细信息,请参见材料表。
本课题组所采用的隐窝分离与类器官培养方案改编自已建立的方法14,15,16,并已在先前发表9,10,17。在以下实验方案中,结肠类器官使用类器官增殖培养基(表1)进行培养。使用类器官增殖培养基培养的结肠类器官处于未分化状态,并富集结肠干细胞。类器官增殖培养基的主要成分为50% L-WRN条件培养基,其中含有肠道干细胞微环境生长因子Wnt-3A(W)、R-spondin 3(R)和Noggin(N)15。类器官增殖培养基的配制方法为:将L-WRN条件培养基与无血清培养基按1:1体积比混合,随后添加烟酰胺及化学抑制剂(表1)。
1. 结肠隐窝分离与结肠类器官培养
- 在接种隐窝前,将48孔微孔板于37 °C、5% CO2条件下预孵育至少72小时。
注意:预孵育微孔板可加速接种过程中基底膜提取物(BME)的聚合。 - 在分离隐窝的前一晚,于4 °C冰箱中将BME置于冰上解冻。
- 将结肠活检组织收集至含有15 mL活检收集液(表1)的样本收集管中,并于4 °C保存,直至准备进行处理。
- 使用移液器小心尽可能多地移除活检收集液。向样本管中加入含2.5 µg/mL两性霉素B和100 µg/mL庆大霉素的15 mL冰冻DPBS进行洗涤。剧烈振荡样本管,以使黏液或碎片从活检组织上解离。让活检组织自然沉降,再用移液器小心尽可能多地移除DPBS。
- 重复步骤1.4的洗涤程序两次(2x)。
- 向样本管中加入含2.5 µg/mL两性霉素B和200 µg/mL庆大霉素的10 mL无酶细胞解离试剂,在室温下以30 rpm振荡孵育15分钟。
- 孵育结束后,手动剧烈左右摇晃样本管,以释放结肠隐窝。使用低倍光学显微镜观察样本管,检查悬浮液中是否可见释放的隐窝及隐窝片段。若不可见,则再次摇晃并检查;重复此过程直至在悬浮液中观察到隐窝。
- 将70 µm细胞滤网固定于50 mL离心管上,将隐窝悬液通过滤网过滤。向空的样本管中加入10 mL冰冻类器官洗涤液(表1),吸取液体后再次通过细胞滤网。
- 将过滤后的隐窝转移至两个15 mL离心管中(每管10 mL),在4 °C下以150 × g离心5分钟。
- 小心从每个15 mL离心管中移除上清液,将隐窝沉淀用500 µL冰冻类器官洗涤液重悬,将两个15 mL离心管中的隐窝悬液合并转移至一个1.5 mL微量离心管中,在4 °C下以400 × g离心3分钟。
- 小心从微量离心管中移除上清液,将隐窝沉淀用70 µL BME重悬(每孔20 µL,额外10 µL死体积)。
- 使用已预孵育的48孔板(步骤1.1),将20 µL BME/隐窝悬液接种至每孔中央(每孔形成一个BME凝胶滴)。平稳而稳定地将板倒置,于37 °C、5% CO2条件下孵育20分钟。
注意:倒置板可防止细胞黏附于孔板塑料表面,确保细胞分布于BME内部。 - 从培养箱中取出板,确认BME已完全聚合,然后每孔覆盖350 µL预热的类器官增殖培养基,并补充100 µg/mL广谱抗菌试剂。将板置于37 °C、5% CO2条件下继续孵育。
注意:添加广谱抗菌试剂旨在防止与结肠活检组织相关的黏膜微生物污染。该试剂仅在隐窝分离后的第一周培养期间需要。 - 每周更换培养基2–3次,使用预热的类器官增殖培养基;在培养的第一周内补充广谱抗菌试剂,此后停止添加该试剂。
- 当结肠类器官培养完全建立后(分离后1–2周),使用含10 µM ROCK-I/II抑制剂Y-27632的酶解解离试剂对类器官进行解离(详见第2节关于结肠类器官解离的完整说明)。
注意:前两次传代(P0-1、P1-2)应采用1:1/2的传代比例扩增类器官;自P2代起,可采用1:3/4的传代比例。 - 按照步骤1.11–1.13进行类器官的接种与维持(类器官增殖培养基中不再添加广谱抗菌试剂)。
2. 细胞死亡检测用结肠类器官的制备
注意:细胞死亡检测方案需要4天完成(图1A)。
- 使用48孔板培养体系扩增结肠类器官,进行接种 20 µL 每孔加入 BME/crypt 悬浮液,于 37 °C,5% CO₂2,以及每周更换培养基2-3次(350 µL 每孔
- 在收获类器官用于细胞死亡检测前约1周进行传代。收获类器官前,确保其已增殖至高密度(图1生物),它们的长度约为25-50 µm 直径,并处于活跃增殖状态。
注意:本实验所用结肠类器官的传代次数为第3代至第14代,结果稳定一致。然而,已有研究表明,结肠类器官对细胞因子的转录响应可能随培养时间的延长而发生变化。18基于此,我们建议在传代15代后不再使用结肠类器官进行该检测。 - 预先孵育96孔微孔板于 37 °C,5% CO₂2 至少在接种结肠类器官细胞前 72 h。
- 将BME置于冰上解冻 4 °C 实验开始前的前一天晚上。
- 配制足量的酶解解离试剂(500 µL 每孔结肠类器官)通过添加 10 µM ROCK-I/II抑制剂Y-27632。轻柔移除含有结肠类器官的孔中培养基;从孔的边缘用移液器吸液,避免损伤结肠类器官的穹顶结构。添加 300 µL 每孔加入酶解离试剂。
- 每个孔中,用P1000移液器枪头刮擦孔表面,将类器官球体打散,并反复吹打细胞悬液以充分解离;注意避免产生气泡。将细胞悬液收集至15 mL离心管中。
注意:此15 mL离心管将用于收集来自48孔板中10个孔的结肠类器官。 - 用另一份相同溶液洗涤同一孔 200 µL 加入酶解离试剂,确保收集并转移所有结肠类器官材料至同一支15 mL离心管中。对每孔扩增的结肠类器官重复此操作,并将所有材料收集至同一支15 mL离心管中。
注意:为实现高效解离,每管收集的结肠类器官最多不超过10孔。若需收集更多 >10个孔,将收集的结肠类器官均分至多个15 mL离心管中。
- 每个孔中,用P1000移液器枪头刮擦孔表面,将类器官球体打散,并反复吹打细胞悬液以充分解离;注意避免产生气泡。将细胞悬液收集至15 mL离心管中。
- 将步骤 2.5.2 中收集的结肠类器官置于 15 mL 离心管中,放入水浴中孵育 37 °C 5 分钟。孵育后,在 400 × g 条件下离心 3 分钟 g轻轻吸去上清液,管中保留约1.2 mL。
注意:下一步需要通过快速吹打实现类器官的物理解离。为确保操作有效,管中细胞悬液的体积必须较小——15 mL 管中剩余的 1.2 mL 体积已足够满足此目的。 - 将类肠体沉淀物重悬于剩余的1.2 mL酶解解离试剂中。使用调至 1,000 µL将移液枪枪头插入悬液中,枪头尖端位于15 mL离心管底部上方,然后快速将悬液反复吸入和吹打枪头。进行快速吹打时,迅速将按钮按至第一停点,再松开按钮至接近顶部位置的一半处,重复该操作。快速吹打约10秒(30-40次按压),然后充分重悬样品,并重复吹打操作。共进行2-3轮快速吹打。
- 在显微镜下检查样本,确认无完整的结肠类器官残留,且大多数结肠类器官碎片大小约为30-40 µm 大小(图1Bii).
- 如果样品需要进一步解离,置于水浴中孵育 37 °C 再持续3分钟,重复步骤2.7中的移液操作,并在显微镜下检查样本。重复此过程,直至大多数结肠类器官片段达到最佳大小。
注意:消化结肠类器官时需谨慎,避免过度解离,否则会导致细胞死亡过多、接种效率降低以及类器官体积过小。 - 加入10 mL预冷的类器官洗涤培养基(冰上保存)表1) 加入15 mL离心管中。将离心管在400 × g条件下离心3分钟 g,移除上清液,加入1 mL预冷的类器官洗涤培养基重悬,转移至1.5 mL微量离心管(以下简称 结肠类器官片段管).
- 混合管内物质 结肠类器官片段管 通过移液操作并取样 50 µL 样本;转移此 50 µL 将样品转移至一个新的1.5 mL微量离心管(以下简称“新管”) 细胞计数管)。储存 结肠类器官片段管 从此时起直至步骤 2.15 完成,均需保持在冰上操作。
- 离心 细胞计数管 400 × 下 3 分钟 g,移除上清液,并重悬于 500 µL 酶解解离试剂,补充有 10 µM ROCK-I/II抑制剂Y-27632
- 孵育单个 细胞计数管 在水浴中 37 °C 5分钟。使用设置为P1000的移液器 400 µL按照步骤2.7所述用移液器处理样本,并在显微镜下检查样本,确保形成单细胞悬液。若未达到单细胞悬液状态,则重复此过程,直至类器官完全解离为单细胞悬液。
- 向单个类器官中加入1 mL类器官洗涤培养基 细胞计数管,400 × g 条件下离心 3 分钟 g 并小心移除上清液。将细胞重悬于 50 µL 类器官洗涤培养基,然后加入 50 µL 台盼蓝
- 使用血细胞计数板对细胞进行计数。计算细胞数量。 50 µL 样品,并用其计算细胞浓度 结肠类器官片段管.
- 计算实验所需的细胞悬液体积,其中细胞密度为 0.5 × 10⁴ 每个96孔微孔板孔中接种结肠类器官细胞。计算体积时需额外增加约15%,以补偿死体积。将该总体积从 结肠类器官片段管 (步骤 2.11)转移至新的 1.5 mL 微离心管中。
- 将含有结肠类器官片段的新1.5 mL微量离心管在400 × g下离心3分钟 g,移除上清液,并用BME重悬(使用 10 µL 每0.5 × 10个BME4 细胞)
注意:由于BME的物理特性(高黏度、温度依赖性聚合),在移液过程中可能会损失大量材料(死体积)。
- 将含有结肠类器官片段的新1.5 mL微量离心管在400 × g下离心3分钟 g,移除上清液,并用BME重悬(使用 10 µL 每0.5 × 10个BME4 细胞)
- 在生物安全柜内的无菌容器中,将装有结肠类器官/BME 悬液的试管或储液器置于冰上。
注意:接种细胞时将细胞保持在冰上,可防止细胞基质过早聚合。 - 使用预孵育的96孔微孔板(来自步骤2.3),反向移液 10 µL 每孔加入等量的结肠类器官/BME 溶液。确保移液枪头位于孔表面正上方,将溶液加至孔中央,避免触碰孔壁。定期混匀结肠类器官/BME 悬液,以防止接种不均。
注意:不要在微量滴定板外边缘的孔中接种结肠类器官。- 反向移液:
- 将移液器设定好,然后按下压杆,越过第一停点,到达第二停点。
- 保持此位置,将枪头浸入类结肠体/BME 悬液中,缓慢释放推杆至顶端。
- 轻轻而稳定地按压活塞按钮至第一停点,以排出悬液。若需接种多个孔,则保持此位置,并重复步骤2.18.1.2–2.18.1.3。
- 完成后,将推杆按钮按至第二档,排出残留的少量悬液。
注意:由于BME黏度较高,建议采用反向移液技术。
- 反向移液:
- 平稳且持续地倒置培养板,并在 37 °C,5% CO₂2 20 分钟。
- 从培养箱中取出培养板。确保BME已完全聚合,然后向类器官上覆盖 200 µL 预热的类器官增殖培养基。若使用带有周围护槽(可减少蒸发)的96孔微孔板,每个储液槽中加入2 mL类器官洗涤培养基。
- 将类器官在结肠中孵育 37 °C,5% CO₂2 培养3天,每天在显微镜下观察一次,以确保类器官已恢复并正在增殖。
3. 类器官细胞死亡检测的处理方法
- 通过将荧光细胞死亡染料或DMSO加入预热的类器官增殖培养基中,配制2.5 µM的荧光细胞死亡染料(SYTOX Green核酸染料)溶液和DMSO溶液(表2)。
注意:荧光细胞死亡染料的原液及稀释液需避光保存。SYTOX Green核酸染料以DMSO为溶剂;使用DMSO溶液配制无染料对照组,以排除溶剂效应的影响。 - 使用步骤3.1中配制的2.5 µM荧光细胞死亡染料溶液和DMSO溶液,按表2所示准备处理组。
- 轻轻倾斜接种了结肠类器官的96孔微孔板,从孔边缘吸去培养基;随后每孔加入200 µL处理培养基。请额外设置用于最大毒性条件的PBS/BSA对照孔(参见表2中的板图)。
- 将结肠类器官在37 °C、5% CO2条件下孵育,根据实验需要在指定时间点进行处理,直至成像前。
- 成像前至少2小时,用无菌细胞培养级水配制10% v/v的Triton-X 100溶液,并在成像前1小时,向最大毒性条件的对照孔培养基中直接加入22 µL该10% Triton-X 100溶液,使其终浓度为1% v/v。
注意:使用10%的溶液可减少因表面活性剂黏度较高而导致的移液误差。
4. 图像采集
- 从培养箱中取出接种有结肠类器官的96孔微孔板,转移至数字倒置落射荧光显微镜的载物台上。让微孔板恢复至室温。
- 在显微镜下观察最大毒性条件下的结肠类器官,确认其已完全裂解(图1Biii)。
- 选择合适的物镜,例如长工作距离40倍荧光物镜。在开始成像前优化显微镜的成像参数。
- 使用透射光通道,对焦于含有SYTOX阳性细胞的结肠类器官,切换至绿色荧光蛋白(GFP)
通道(488 nm),调整光照强度和曝光时间,以在最小化背景信号的同时最大化荧光信号。首先尝试较低的光照强度,然后逐步增加曝光时间;若曝光时间过长不切实际,则可轻微提高光照强度。
注意:相比于提高光照强度,增加曝光时间可减少样品的光毒性和荧光淬灭19。仅在必要时使样品暴露于荧光光源下。
- 使用透射光通道,对焦于含有SYTOX阳性细胞的结肠类器官,切换至绿色荧光蛋白(GFP)
- 使用优化后的GFP通道成像参数,观察无染料组和最大毒性组,确保样品未出现过度或不足曝光。参数确定后,在不同实验条件下保持成像参数一致。
- 采用随机取样方法获取图像:通过选择覆盖结肠类器官穹顶区域的固定网格模式视野进行成像。每组至少获取10个视野的结肠类器官图像。确保结肠类器官的中心平面处于对焦状态,并在透射光和GFP通道下同时采集图像。
- 应用以下排除标准。
- 若视野中无结肠类器官存在,则不采集图像。
- 若视野中仅存在同一焦平面上相互重叠的结肠类器官,则不采集图像(图1Biv)。
- 若视野中仅存在结肠类器官碎片,则不采集图像(图1Bv)。分析中不得包含结肠类器官碎片。
- 应用以下排除标准。
- 将图像以便携式网络图形格式(PNG)保存并导出。
- 若需对其他时间点进行成像,将含有结肠类器官的96孔微孔板放回37 °C、5% CO2的培养箱中继续培养。
5. 图像分析
- 打开 Fiji ImageJ,通过将文件拖放到 ImageJ 工具栏,或导航至 文件 | 打开 并选择文件,导入图像数据集。打开后,单击 图像 | 堆栈 | 图像到堆栈,将文件合并为一个图像堆栈。然后单击 图像 | 类型 | 8 位,将图像堆栈转换为 8 位文件格式。
- 对于每组图像,单击 ImageJ 工具栏上的 自由手选择 工具,使用计算机鼠标在透射光图像上手动选择感兴趣区域(ROI);该 ROI 即为结肠类器官的轮廓。随后在图像堆栈中切换至对应的 GFP 通道图像。
- 单击 分析 | 设置测量值;在 设置测量值 对话框中,勾选 平均灰度值,其余选项均不勾选。选中 GFP 图像后,单击 分析 | 测量。对图像堆栈中的每个结肠类器官重复此分析。完成数据集分析后,复制 结果 窗口中的所有数据,并将其粘贴至电子表格软件中。
6. 最大毒性百分比计算
- 使用公式(1)计算每种条件下技术重复的平均灰度值(MGV)的均值。
 (处理 a 的均值)=
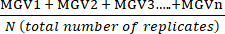 (1)
- 使用公式(2)将每种条件的均值表示为最大毒性条件(MT)均值的百分比。
%MTa = (2)
7. 计算 CPI
- 使用步骤 6.1 中计算的平均值对数据进行归一化(NORM)处理:从每个处理组和最大毒性(MT)条件中减去未处理组(UT)的平均值(以消除与细胞因子处理无关的背景细胞死亡)。然后,将每个处理组除以经过背景校正后的最大毒性(MT)条件的平均值,如公式(3)所示。
NORMa = (3)
- 用 1 减去步骤 7.1 中计算得到的归一化值;所得数值代表处理后的细胞活力(V)(如下方公式(4)所示)。
Va = 1 −NORMa (4) - 使用公式(5)计算扰动剂相互作用系数(CPI):
CPI = (5)
其中 a 表示第一种处理;b 表示第二种处理;ab 表示联合处理。CPI 值表明协同作用(<1)、相加作用(=1)或拮抗作用(>1)关系。
结果
通过本方案,我们展示了如何利用克罗恩病(CD)患者的结肠类器官研究与炎症性肠病(IBD)相关的细胞因子IFN-γ和TNF-α对原代上皮细胞的细胞毒性作用。我们使用了一种 commercially available 的荧光细胞死亡染料(SYTOX Green Nucleic Acid Stain),该染料仅能进入细胞膜受损的细胞,并通过与核酸结合而被激活。我们将结肠类器官与细胞因子及荧光细胞死亡染料共同孵育,并在8小时和24小时时使用倒置落射荧光显微镜进行活细胞成像。8小时时的代表性明场/荧光叠加图像显示,仅IFN-γ + TNF-α处理的结肠类器官呈现荧光信号阳性;然而,荧光标记的细胞数量较少(图2A)。在IFN-γ + TNF-α处理条件下,还可观察到细胞出泡现象,这是细胞死亡的一种形态学标志20。在24小时时,经IFN-γ + TNF-α处理的结肠类器官显示出大范围的荧光信号阳性区域(图2A)。此外,类器官的形态结构明显崩解,中央腔不再可见,上皮屏障已完全被破坏。
为了定量细胞死亡染料信号,我们使用开源图像分析软件计算每个结肠类器官的荧光强度。随后,通过将每种条件的平均值表示为最大毒性处理(Max Toxicity)的百分比来对数据进行归一化。在8小时时,BSA对照组类器官中的稳态或背景细胞死亡水平相对较低(占最大毒性的7.7%)(图2B)。在此时间点,各组之间的细胞死亡水平无统计学显著差异;然而,经TNF-α处理的组显示出细胞毒性轻微升高(图2B)。在24小时后,所有经细胞因子处理组的细胞死亡水平均有所上升。然而,BSA对照组在不同时间点之间的细胞死亡变化极小(24小时时为最大毒性的7.5%)。经IFN-γ + TNF-α联合处理的类器官相较于BSA对照组表现出最大的细胞死亡水平升高(占最大毒性的29.4%)。联合处理组与单细胞因子处理组(IFN-γ、TNF-α)之间的细胞死亡水平差异极为显著。这些结果提示IFN-γ与TNF-α在24小时时可能存在细胞毒性的协同作用。
我们使用CPI来量化细胞因子处理之间的细胞毒性相互作用,并确定它们是否具有协同作用。当CPI值<1时,细胞因子之间的相互作用被视为协同作用;等于1时为相加作用;>1时为拮抗作用。我们计算了每个时间点的CPI值(图2C)。在8小时时,CPI值表明存在轻微的协同作用(0.99),而在24小时时CPI值显著降低(0.83)。该分析证实,IFN-γ与TNF-α在24小时时的相互作用具有协同性。此外,这也说明在此背景下,IFN-γ与TNF-α之间的协同作用具有时间依赖性。

图1:实验流程及故障排除示意图。(A)实验方案的示意图概览。(B)代表性图像。(Bi)明场显微镜图像,显示检测前传代时类器官培养的最佳密度和理想大小。比例尺 = 500 µm。(Bii)明场显微镜图像,显示解离后结肠类器官片段的理想大小;红色高亮部分为片段。比例尺 = 100 µm。(Biii)经MT处理(使用Triton X-100)后出现坏死形态的结肠类器官明场图像。比例尺 = 25 µm。(Biv)两个结肠类器官在同一焦平面重叠的明场图像。比例尺 = 25 µm。(Bv)传代后存在的结肠类器官细胞碎片明场图像;红色高亮部分为碎片。比例尺 = 25 µm。缩写:ROI = 感兴趣区域;MFI = 平均荧光强度;MT = 最大毒性。请点击此处查看该图的放大版本。

图2:细胞因子诱导的人源克罗恩病结肠类器官细胞死亡的定量分析。(A)在8小时和24小时使用SYTOX Green核酸染料(荧光细胞死亡染料)和细胞因子处理后的克罗恩病结肠类器官代表性活细胞显微图像;透射光与GFP(绿色)通道叠加。处理方式如下:1)PBS/BSA,2)10 ng/mL IFN-γ,3)10 ng/mL TNF-α,4)10 ng/mL IFN-γ + 10 ng/mL TNF-α。比例尺 = 25 µm。(B)在8小时和24小时使用荧光细胞死亡染料和细胞因子处理的克罗恩病结肠类器官的定量分析;数据以MT条件的百分比表示。N = 2个克罗恩病结肠类器官系,每种条件下成像11–16个类器官。(C)基于B中数据集计算每个时间点的CPI,N = 2个克罗恩病结肠类器官系。数据以均值 ± 标准误表示。在B中,采用双因素方差分析,随后进行Bonferroni多重比较检验,*P < 0.05,***P < 0.001,如图所示。缩写:CD = 克罗恩病(Crohn's disease);GFP = 绿色荧光蛋白(green fluorescent protein);CPI = 干扰因子相互作用系数(coefficient of perturbagen interaction);PBS = 磷酸盐缓冲液(phosphate-buffered saline);BSA = 牛血清白蛋白(bovine serum albumin);TNF-α = 肿瘤坏死因子-α(tumor necrosis factor-alfa);IFN-γ = γ-干扰素(interferon-gamma);MT = 最大毒性(Max Toxicity)。请点击此处查看该图的放大版本。
表1:实验方案中培养基的组成。 制备类器官增殖培养基时,将L-WRN条件培养基与无血清培养基按1:1比例混合,然后加入补充成分。类器官增殖培养基应在配制后2周内使用。请注意,所有完全培养基均应于4 °C保存。请点击此处下载该表格。
表2:实验用96孔板布局及细胞因子处理方案。 请点击此处下载该表格。
讨论
目前已开发出多种用于定量分析肠道类器官中细胞死亡的方法。通过光学显微镜观察肠道类器官形态结构的破坏,是一种量化细胞毒性物质效应的直接方法11。然而,形态学变化并非细胞死亡的直接测量指标,该方法仅为半定量。另一种方法是利用MTT或ATP检测来评估类器官的代谢活性10,11。需要注意的是,这些检测仅能确定细胞活力的变化,必须通过细胞死亡检测进行验证。已有研究报道使用DNA结合染料的其他荧光细胞死亡检测方法12,13。可采用非成像方式,利用荧光酶标仪进行检测,实现高通量分析12。然而,该方法测量的是整个孔的平均信号,因此不适用于异质性细胞群体。此外,该方法需要使用具备Z轴高度调节功能的酶标仪。基于荧光成像的技术可用于单个类器官分析,并可获取细胞/亚细胞及形态学数据。自动化共聚焦高内涵成像(HCI)系统能够以高通量生成大量数据13。但遗憾的是,共聚焦高内涵成像需要专用设备,操作流程复杂,通常需依赖商业化的图像分析软件,且成本较高。
我们用于在多个时间点对类结肠体细胞死亡进行定量分析的方案简单、直接且成本低廉。然而,与自动化的高内涵成像(HCI)和酶标仪系统相比,该方法耗时较长,通量较低。本方法的另一个局限性在于使用了宽场显微镜而非共聚焦显微镜。共聚焦显微镜更适合成像类器官等较厚的三维样本,因为它可减少非焦平面信号,并能获取连续的光学切片(Z-stack)。然而,共聚焦成像通常需要更长的采集时间以及高强度激光,这会增加光毒性/光漂白效应。需要特别注意的是,SYTOX Green等荧光细胞死亡染料仅适用于检测伴随细胞膜完整性丧失的细胞死亡形式,例如坏死、晚期凋亡相关的继发性坏死、坏死性凋亡和细胞焦亡21。某些调控性细胞死亡在早期阶段细胞膜仍保持不透性,例如半胱天冬酶(caspase)依赖性凋亡。但本方案可轻松改进,以同时纳入caspase 3/7活性的荧光报告系统成像22,从而提供额外数据,有助于进一步明确具体的细胞死亡方式。
我们利用本方案展示了细胞因子 IFN-γ 与 TNF-α 之间的细胞毒性协同作用(图 2C),此前我们已在克罗恩病(CD)患者来源的类器官中报道过这一现象9,10。这种协同作用的生理相关性也已在噬血细胞性淋巴组织细胞增生症和脓毒症的小鼠模型中得到证实23。目前已有多种数学参考模型和方法被用于量化生物制剂组合之间的协同效应24,25。这些模型在复杂性、所考虑因素的数量以及判定协同作用的阈值方面各不相同24,25。部分模型需要预先了解所测试生物制剂的特性,对制剂活性作出特定假设,并且可能需要针对每种单一处理及组合处理获取完整的剂量-反应曲线25。我们选用的协同效应检测方法是对药物相互作用系数(CDI)模型的一种改进,该模型此前已被用于评估化疗药物组合对癌细胞系增殖的抑制作用26。CDI 属于 Bliss 独立性模型;在计算两种扰动因子联合作用的预测效应时,Bliss 独立性假设它们作用于不同的通路且具有独立的作用机制27。当扰动因子之间的实际联合作用强于预测作用时,即可判定为协同作用。该模型适用于我们的实验设计,因为已知 IFN-γ 和 TNF-α 具有不同的受体及下游信号组分。此外,Bliss 独立性模型可通过计算相互作用系数来量化协同程度,且无需依赖剂量-反应数据集。
为确保本实验方案获得最佳结果,必须考虑几个关键因素。结肠类器官应培养至较高密度(图1Bi),直径约为25–50 µm,并在接种细胞前处于活跃增殖状态。若使用状态欠佳的类器官进行实验,可能导致细胞数量不足、类器官回收率低以及实验结果不一致。为获得可重复的结果,还需在不同实验间保持一致的类器官接种密度。已有研究表明,细胞接种密度可能影响类器官对炎症性细胞因子的体外反应28,29。另一个常见问题是基质胶(BME)滴中的气泡形成,这会影响成像效果。可通过使用反向移液技术避免此问题,该技术也有助于实现更一致的接种效果。
此外,如果需要对多个时间点进行成像,应为每个时间点分别准备一个最大毒性(Max Toxicity)条件。Triton-X 100 是一种非离子型表面活性剂,通常用作细胞毒性检测中的阳性对照(即最大毒性条件)。加入 Triton-X 100 可导致类器官裂解并死亡,从而使荧光细胞死亡染料进入细胞内。若使用较早时间点的最大毒性条件,会因荧光信号随时间衰减而导致数据归一化结果不准确且不一致。
最后需要考虑的是用于结肠类器官培养的基底膜提取物(BME)的选择。目前有多个厂商生产BME;然而,在本实验方案中,我们仅测试了材料表中列出的品牌。最近一项使用患者来源的胰腺癌类器官的研究发现,不同商业来源的BME会影响细胞增殖速率,但对化疗药物反应或基因表达无显著影响30。基于此,我们预计在本方案中不同BME品牌所得结果的趋势相似,但仍建议持续使用同一品牌。
我们展示了如何利用克罗恩病(CD)患者来源的结肠类器官,通过该方案分析干扰素-γ(IFN-γ)和肿瘤坏死因子-α(TNF-α)诱导的细胞死亡。患者来源的肠道类器官是研究克罗恩病的有力工具,因其保留了该疾病的多种特征,包括对TNF-α细胞毒性作用的敏感性增加31。然而,该方案也可轻松修改,用于研究除细胞因子以外的其他干扰因素的细胞毒性作用,或除炎症性肠病(IBD)以外的其他疾病状态,例如结直肠癌(我们已成功在非IBD来源的结肠类器官中测试了该方案)。我们认为,该方法适用于任何关注细胞死亡机制、上皮屏障功能或肠道黏膜免疫学的研究领域。
披露
K.N. 在完成本工作期间获得了艾伯维公司(AbbVie Inc.)的研究资助。该资助属于爱尔兰APC微生物组研究所获得的科学基金会爱尔兰中心分支奖项(SFI-14/SP/2710)的一部分。
致谢
作者谨此感谢患者提供知情同意并参与本项研究,同时感谢临床工作人员给予的出色协助。图1A 使用 BioRender.com 制作。 本研究由爱尔兰科学基金会资助,包括授予 K.N. 的职业发展奖(CDA)(SFI-13/CDA/2171)、研究中心资助(SFI-12/RC/2273)以及授予 APC Microbiome Ireland 的研究中心分支项目奖(SFI-14/SP/2710)。P.F. 还获得了 SFI/20/RP/9007 项目的资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 高级DMEM/F12 | Gibco | 12634010 | |
| 两性霉素B溶液 | Sigma-Merck | A2942 | |
| A-83-01 | Sigma-默克 | SML0788 | |
| BioRender | Science Suite 公司 | N/A | 科学绘图软件 |
| 牛血清白蛋白 | Sigma-默克 | A2058 | 基本不含IgG,低内毒素 |
| B27 补充剂 | Invitrogen | 17504-044 | |
| CHIR-99021 | Sigma-默克 | SML1046 | |
| Corning 48孔透明TC处理细胞培养板,单个包装,无菌 | 康宁 | 3548 | |
| Cultrex 基底膜提取物,2 型,Pathclear | R&D Systems | 3532-010-02 | 基底膜提取物 |
| 二甲基亚砜 | Sigma-默克 | D2650 | |
| 杜尔贝科′磷酸盐缓冲液 | Sigma-Merck | D8537 | |
| EVOS FL 数字倒置荧光显微镜 | Invitrogen | AMF4300 | 数字倒置落射荧光显微镜 |
| EVOS 40倍物镜,萤石,长工作距离,相差 | 赛默飞世尔科技 | AMEP4683 | 长工作距离40倍荧光物镜 |
| Fiji/ImageJ(Windows 版本) | 开源软件 | N/A | 图像分析软件 |
| 胎牛血清 | Sigma-默克 | F9665 | |
| 庆大霉素溶液 | Sigma-默克 | G1397 | |
| 温和细胞解离试剂 | STEMCELL Technologies | 100-0485 | 无酶细胞解离试剂 |
| GlutaMAX-1 | Gibco | 35050061 | L-丙氨酰-L-谷氨酰二肽补充剂 |
| GraphPad Prism 5(Windows 版本) | Dotmatics | N/A | 数据图表与统计软件 |
| Greiner 15 mL 聚丙烯离心管,无菌,锥底 &和螺帽盖 | Cruinn | 188261CI | |
| HEPES 1 M | Gibco | 15630080 | |
| 人重组表皮生长因子(无动物源成分) | Peprotech | AF-100-15 | |
| N-乙酰半胱氨酸 | Sigma-默克 | A9165 | |
| 烟酰胺 | Sigma-Merck | N0636 | |
| 诺尔霉素 | InvivoGen | ant-nr-05 | 广谱抗菌试剂 |
| Nunc Edge 96孔,Nunclon Delta处理,平底微孔板 | 赛默飞世尔科技 | 15543115 | |
| N2 补充剂 | Invitrogen | 17502-048 | |
| 重组人IFN-γ蛋白 | R&D Systems | 285-IF | 用无菌过滤的 0.1% PBS/BSA 重悬 |
| 重组人TNF-α蛋白 | R&D Systems | 210-TA | 用无菌滤过的 0.1% PBS/BSA 重悬 |
| SB202190 | Sigma-默克 | S7067 | |
| 低吸附带盖微量离心管 | 赛默飞世尔科技 | 3451 | |
| SYTOX Green 核酸染料 - DMSO 中 5 mM 溶液 | Invitrogen | S7020 | 荧光细胞死亡染料,避光保存 |
| Triton X-100 | Sigma-默克 | 93420 | |
| 台盼蓝溶液 | Sigma-默克 | T8154 | |
| Tryple Express | Gibco | 12604013 | 酶解离试剂 |
| Y-27632 | MedChemExpress | HY-10071 | ROCK-I 和 ROCK-II 抑制剂 |
参考文献
- Patankar, J. V., Becker, C. Cell death in the gut epithelium and implications for chronic inflammation. Nat Rev Gastroenterol Hepatol. 17 (9), 543-556 (2020).
- Zeissig, S., et al. Downregulation of epithelial apoptosis and barrier repair in active Crohn's disease by tumour necrosis factor alpha antibody treatment. Gut. 53 (9), 1295-1302 (2004).
- Bartee, E., Mcfadden, G. Cytokine synergy: An underappreciated contributor to innate anti-viral immunity. Cytokine. 63 (3), 237-240 (2013).
- Fish, S. M., Proujansky, R., Reenstra, W. W. Synergistic effects of interferon γ and tumour necrosis factor α on T84 cell function. Gut. 45 (2), 191-198 (1999).
- Wakisaka, Y., Sugimoto, S., Sato, T. Organoid medicine for Inflammatory Bowel Disease. Stem Cells. 40 (2), 123-132 (2022).
- Flood, P., Hanrahan, N., Nally, K., Melgar, S. Human intestinal organoids: Modeling gastrointestinal physiology and immunopathology - current applications and limitations. Eur J Immunol. 54 (2), e2250248(2024).
- Matsuzawa-Ishimoto, Y., et al. An intestinal organoid-based platform that recreates susceptibility to t-cell-mediated tissue injury. Blood. 135 (26), 2388-2401 (2020).
- Lee, C., et al. Intestinal epithelial responses to IL-17 in adult stem cell-derived human intestinal organoids. J Crohns Colitis. 16 (12), 1911-1923 (2022).
- Woznicki, J. A., et al. TNF-α synergises with IFN-γ to induce caspase-8-JAK1/2-STAT1-dependent death of intestinal epithelial cells. Cell Death Dis. 12 (10), 864(2021).
- Flood, P., et al. DNA sensor-associated type I interferon signaling is increased in ulcerative colitis and induces jak-dependent inflammatory cell death in colonic organoids. Am J Physiol Gastrointest Liver Physiol. 323 (5), G439-G460 (2022).
- Grabinger, T., et al. Ex vivo culture of intestinal crypt organoids as a model system for assessing cell death induction in intestinal epithelial cells and enteropathy. Cell Death Dis. 5 (5), e1228(2014).
- Bode, K. J., Mueller, S., Schweinlin, M., Metzger, M., Brunner, T. A fast and simple fluorometric method to detect cell death in 3D intestinal organoids. Biotechniques. 67 (1), 23-28 (2019).
- Mertens, S., et al. Drug-repurposing screen on patient-derived organoids identifies therapy-induced vulnerability in KRAS-mutant colon cancer. Cell Rep. 42 (4), 112324(2023).
- Vandussen, K. L., et al. Development of an enhanced human gastrointestinal epithelial culture system to facilitate patient-based assays. Gut. 64 (6), 911-920 (2015).
- Miyoshi, H., Stappenbeck, T. S. In vitro expansion and genetic modification of gastrointestinal stem cells in spheroid culture. Nat Protoc. 8 (12), 2471-2482 (2013).
- Sato, T., et al. Long-term expansion of epithelial organoids from human colon, adenoma, adenocarcinoma, and Barrett's epithelium. Gastroenterology. 141 (5), 1762-1772 (2011).
- Woznicki, J. A., et al. Human BCL-G regulates secretion of inflammatory chemokines but is dispensable for induction of apoptosis by IFN-γ and TNF-α in intestinal epithelial cells. Cell Death Dis. 11 (1), 68(2020).
- Edgar, R. D., et al. Culture-associated DNA methylation changes impact on cellular function of human intestinal organoids. Cell Mol Gastroenterol Hepatol. 14 (6), 1295-1310 (2022).
- Mubaid, F., Brown, C. M. Less is more: Longer exposure times with low light intensity is less photo-toxic. Microscopy Today. 25 (6), 26-35 (2017).
- Ziegler, U., Groscurth, P. Morphological features of cell death. News Physiol Sci. 19 (3), 124-128 (2004).
- Zhang, Y., Chen, X., Gueydan, C., Han, J. Plasma membrane changes during programmed cell deaths. Cell Res. 28 (1), 9-21 (2018).
- Tamura, H., et al. Evaluation of anticancer agents using patient-derived tumor organoids characteristically similar to source tissues. Oncol Rep. 40 (2), 635-646 (2018).
- Karki, R., et al. Synergism of TNF-α IFN-γ triggers inflammatory cell death, tissue damage, and mortality in SARS-CoV-2 infection and cytokine shock syndromes. Cell. 184 (1), 149-168 (2021).
- Geary, N. Understanding synergy. Am J Physiol Endocrinol Metab. 304 (3), E237-E253 (2013).
- Duarte, D., Vale, N. Evaluation of synergism in drug combinations and reference models for future orientations in oncology. Curr Res Pharmacol Drug Discov. 3, 100110(2022).
- Wong, F. C., Woo, C. C., Hsu, A., Tan, B. K. The anti-cancer activities of Vernonia amygdalina extract in human breast cancer cell lines are mediated through caspase-dependent and p53-independent pathways. PLoS One. 8 (10), e78021(2013).
- Ryall, K. A., Tan, A. C. Systems biology approaches for advancing the discovery of effective drug combinations. J Cheminform. 7, 7(2015).
- Sukho, P., et al. Effect of cell seeding density and inflammatory cytokines on adipose tissue-derived stem cells: An in vitro study. Stem Cell Rev Rep. 13 (2), 267-277 (2017).
- Vaughan-Jackson, A., et al. Density dependent regulation of inflammatory responses in macrophages. Front Immunol. 13, 895488(2022).
- Lumibao, J. C., et al. The impact of extracellular matrix on the precision medicine utility of pancreatic cancer patient-derived organoids. bioRxiv. , 10.1101/2023.01.26.525757 (2023).
- Lee, C., et al. TNF-α induces LGR5+ stem cell dysfunction in patients with Crohn's disease. Cell Mol Gastroenterol Hepatol. 13 (3), 789-808 (2022).
重印与许可
