我们研究了Bos indicus和杂交公牛的骨骼肌组织,以解释其肉质性状的差异。 Warner-Bratzler剪切力(WBSF)值介于4.7 kg至4.2 kg之间。肌球蛋白重链同工型在不同个体间表现出差异,而肌原纤维断裂指数为进一步解析嫩度(WBSF)变异提供了依据。
本文内容
摘要
摘要
本研究通过分析Bos indicus和杂交公牛的肌肉组织,以解释其肉质性状的差异。文中描述了胴体性状、肉质参数以及肌原纤维蛋白的生物化学和分子学研究。概述了用于评估pH值、肌内脂肪(IMF)、肉色(L*、a*、b*)、水分损失、嫩度及分子生物学检测的方法。每种方法的具体操作步骤,包括校准、样品制备和数据分析,均进行了详细说明。这些技术包括用于测定IMF含量的红外光谱法、肉品嫩度的客观评估,以及MyHC同工型的电泳分离。
颜色参数被强调为预测牛肉嫩度的潜在工具,而嫩度是影响消费者决策的关键质量性状。研究采用沃纳-布雷茨勒剪切力(Warner-Bratzler shear force, WBSF)方法,测得尼洛尔牛和安格斯-尼洛尔杂交牛的剪切力值分别为4.68和4.23 kg(P < 0.01)。通过总烹饪损失和包括肌原纤维片段化指数(myofibril fragmentation index, MFI)在内的生化分析,揭示了嫩度差异的内在机制。研究还分析了肌肉纤维类型,特别是肌球蛋白重链(myosin heavy chain, MyHC)同工型,发现所研究的瘤牛动物中不存在MyHC-IIb同工型。关于MyHC-I与肉品嫩度之间的关系,文献报道存在不同结论,表明该关联具有复杂性。总体而言,本研究全面揭示了影响Bos indicus及杂交(Bos taurus × Bos indicus)公牛肉质的因素,为牛肉产业提供了有价值的信息。
引言
巴西拥有全球最大的商业牛群,数量约为2.2亿头,是全球第二大肉类生产国,每年产出超过900万吨胴体当量的肉类1。肉牛生产部门对国家农业体系贡献显著,年总销售额超过550亿雷亚尔(R$)。自2004年以来,巴西一直是全球肉类贸易的重要参与者,向超过180个国家出口肉类,占全球肉类贸易总量的约50%2。
肉品嫩度是影响消费者满意度和肉类消费的最重要品质属性3。 研究人员通过采用生化和客观方法测定肉品嫩度,旨在深入了解动物遗传、加工技术及贮藏条件等因素,从而最终提升肉类产品对消费者的品质与一致性。此类信息具有重要价值,因为肉品嫩度在消费者购买决策中的重要性日益增加。此外,肉品嫩度评估为肉类生产与加工行业的质量控制提供了有价值的信息。通过持续监测嫩度,生产者可确保肉类产品符合预期的标准与规格。在此背景下,巴西肉牛养殖者正逐步采用集约化育肥体系并使用杂交牛种以提高资金周转率。该体系约占巴西每年胴体产量的10%4,5。
消费者对肉类品质日益增长的需求促使肉牛养殖者与欧洲品种进行杂交,主要是与阿伯丁安格斯牛(Aberdeen Angus)6杂交。该策略旨在培育F1代安格斯-尼洛尔杂交牛,其生产性能、胴体性状和肉质均优于纯种瘤牛动物7,8。在巴西的热带地区,育肥场普遍使用未去势(公牛)且生理成熟度较高的动物,这可能会对肉质特性(如颜色、大理石纹和嫩度)产生不利影响。值得注意的是,一项调查显示,在巴西集中育肥场中出栏的动物有95%为雄性,其中73%为尼洛尔牛,22%为杂交牛,5%为其他基因型9,10。
了解肉质嫩度背后的生化机制对于改善肉类品质至关重要。其中一个关键方面是宰后蛋白质降解,其会影响肌纤维的结构完整性11。肌原纤维碎片化指数(MFI)是一种广泛使用的生化检测方法,用于量化肌原纤维降解的程度,从而反映肉类的嫩度12。MFI 方法通过测定肌原纤维蛋白的碎片化程度来评估肉的嫩度,该指标与肉的嫩度直接相关。该检测方法补充了传统的肉类品质评估手段,有助于更深入理解导致肉嫩度差异的生化过程。
在此背景下,本研究探讨了在育肥场育肥的Bos indicus与杂交(Bos taurus × Bos indicus)公牛的骨骼肌,旨在阐明其肉质性状的差异。
方案
所有涉及动物的实验程序均符合“圣保罗州立大学儒利奥·德梅斯基塔·菲略分校”博图卡图校区动物使用伦理委员会(CEUA)根据协议编号0171/2018所制定的伦理研究标准。
1. 实验动物
- 30头内洛尔牛的育肥Bos indicus)以及30头F1安格斯-尼罗罗牛公牛(Bos taurus × Bos indicus),年龄20-24个月,饲养于育肥场。将两组动物均饲养在尺寸为5米×6米的集体圈舍中,地面为混凝土结构,配备壳状饮水槽,每圈最多容纳5只动物。确保所有动物属于同一管理组(在同一农场出生并饲养),并经历相同的育肥期。
注:本研究中,Nellore 公牛的平均初始体重为 370.7 kg,而 F1 Angus-Nellore 公牛的平均初始体重为 380.8 ± 17 kg。 - 育肥场日粮
- 确保育肥期日粮由11.3%的粗饲料(提丰草和甘蔗渣)与88.7%的精饲料(粉碎干玉米粒、豆粕、湿玉米酒糟蛋白、干玉米 gluten 饲料和矿物核心成分)组成。动物饲喂该日粮120天,并提供相应饲料 随意摄取 每天两次(上午10:00和下午04:00)。
- 屠宰
- 记录实验结束时的最终体重(BWf)。将所有动物送至附近屠宰场进行处理,并遵循标准检验程序。屠宰前,确保动物至少禁食16小时,期间禁止饲喂饲料和饮水。
注意:安格斯-内洛尔F1代公牛的最终体重为615.09 ± 57.53 kg,而内洛尔公牛的体重为545.47 ± 11.45 kg。
- 记录实验结束时的最终体重(BWf)。将所有动物送至附近屠宰场进行处理,并遵循标准检验程序。屠宰前,确保动物至少禁食16小时,期间禁止饲喂饲料和饮水。
- 胴体性状评估
- 最初称量牛胴体重量,然后在2-4℃条件下进行冷却处理。4 °C 48小时。测量指标包括热胴体重(HCW)、第12肋间的眼肌面积(REA)和背膘厚度(BFT)。th/13th 推荐的肋骨界面13采用小网格法(18 cm × 13 cm)测定REA,并使用游标卡尺以毫米为单位测量BFT。
- 使用网状网格(与美国农业部产肉率等级分类系统所用相同)测量每具胴体的背最长肌面积(REA),该网格被划分为1 cm²的方格,每个方格中央有一个点。将肋眼肌轮廓 traced 范围内的所有方格以及轮廓沿线穿过中央点的方格全部相加。
- 在评估区域的任意位置测量BFT,该位置介于12之间th/13th 肋骨。为确定该位置,需测量眼肌的长度;然后从眼肌内侧边界“A”开始,确定眼肌长度四分之三处且横向中点的位置“B”。将卡尺穿过“B”点,并与指定肋骨垂直,测量至皮下脂肪与肌间脂肪交界面处。测量皮下脂肪时,将卡尺垂直于皮下脂肪的走向,从交界面点开始测量。补充图 S1).
- 最初称量牛胴体重量,然后在2-4℃条件下进行冷却处理。4 °C 48小时。测量指标包括热胴体重(HCW)、第12肋间的眼肌面积(REA)和背膘厚度(BFT)。th/13th 推荐的肋骨界面13采用小网格法(18 cm × 13 cm)测定REA,并使用游标卡尺以毫米为单位测量BFT。
- 采样
- 样本 胸最长肌 (左侧半片 carcass 上的 LT 肌,取自第 11 肋间处约 12.0 cm 长的肉段)th 和 13th 沿颅骨方向切开肋骨。在实验室中,将肉样切成2.54 cm厚的肉排。
- 衰老
- 在0-4 °C温度下湿式排酸14天后,评估肉质性状2 °C 在生化需氧量(BOD)培养箱中孵育。用于肉色、pH值、肌内脂肪、滴水损失、持水能力、客观嫩度及烹饪损失分析的肉块厚度应为2.54 cm。将肉块分别装入具有高真空和低透氧性的塑料袋中,在达到熟成时间后,于-20℃以下冷冻保存。20 °C 直至分析时为止。将牛肉样品在 4 °C 24 h,并在30 min内暴露于氧气 4 °C (开花时间)
2. 肉类 pH 值
- 使用配备穿刺探头的数字pH计测量肉样的pH值。在25 °C的室温下,用pH 4.0和7.0的缓冲液进行校准。在LT肌肉样品的三个位置测量肉样的pH值。手动记录数据读数,随后导出数据表;计算三个读数的平均值作为肉样的pH值。
3. 肌内脂肪
注意:肌内脂肪(IMF)含量采用近红外(NIR)光谱法14和重量法15测定。
- 使用解剖刀去除腰最长肌(LT肌)的皮下脂肪。然后取约180 g样品,用搅拌机研磨并均质5分钟。将样品放入样品杯中,置于样品室内部,通过旋转样品杯对测试样品的不同区域进行子扫描;将各区域结果合并以获得最终结果。
- 对每个样品读取三次数据。均质后,将样品放入检测板中以进行后续读数。将仪器设置为近红外透射模式,使用移动光栅单色仪扫描850 nm至1050 nm的波长范围。
- 导出数据表,然后计算肌内脂肪(IMF)三次读数的平均值。使用公式:[(IMF平均值 ÷ 样品重量) × 100],将结果以百分比形式表示。
- 将均质后的LT肌样品(3.0 g)与氯仿/甲醇(2:1)溶液混合,搅拌2分钟,随后进行离心(700 × g;10 min;20 °C),以分离亲水相(上层)、固相(中层)和疏水相(下层)。
- 将离心后获得的疏水相通过装有滤纸的漏斗在轻微负压下过滤。将滤液(下层相;氯仿中的脂质)转移至标记为“脂质相”的烧瓶中,并在静置数分钟后,将至少5 mm的滤液转移至已称重的烧杯中。记录氯仿层的体积(至少150 mL),并吸除醇层。
- 将100 g新鲜或冷冻组织样品分样,与100 mL氯仿和200 mL甲醇的混合液一起均质2分钟。向混合物中加入100 mL氯仿,搅拌30秒,再加入100 mL蒸馏水,继续搅拌30秒。
- 将均质液通过装有滤纸的漏斗在轻微负压下过滤。当残渣变干时,用烧杯底部施加压力,以确保溶剂最大程度回收。
- 将滤液转移至500 mL量筒中,静置数分钟以使各相分离并澄清。记录氯仿层的体积(至少150 mL),并吸除醇层。
- 务必完全去除上层;氯仿层中含有纯化的脂质。为实现定量脂质提取,需将残渣和滤纸与100 mL氯仿再次混合搅拌,以回收残渣中截留的脂质。
- 将混合物通过漏斗过滤,并用总共50 mL氯仿冲洗搅拌罐和残渣。将此滤液与原始滤液合并,再去除醇层。
注意:过滤通常较快;在干燥残渣上用烧杯底部施加压力,以确保溶剂最大程度回收。
- 将样品在烘箱中干燥,在干燥器中冷却至少24小时,再置于110 °C烘箱中直至溶剂完全蒸发,随后在干燥器中继续冷却过夜,最后重新称重。
- 通过计算烧杯前后重量的差值,测定IMF含量。
4. 肉色
- 使用黑色和白色标准板校准设备。将白色校准板放置在板的近中央位置。进行校准时,应使用板中央附近区域。灯闪烁三次后,校准完成。
- 在 4 °C 下放置 30 分钟后(显色时间)进行测量。从 LT 肌肉样品的三个不同位置获取颜色读数,注意避开结缔组织和脂肪。
- 在室温(20 °C)下,按照建议16,计算这些测量值的平均值。
5. 水分损失
- 测定所有样品的解冻损耗(PL)。通过测量牛腰肉块在冷冻前的初始重量与冻融后的最终重量之间的差异,确定其解冻损耗(PL)。
注意:不评估未经冷冻的对照组牛腰肉的解冻损耗(PL)。 - 采用加压法测定持水能力(WHC),即在10 kg压力下持续5分钟,测定肉样(约1.0 g)加压前后的重量差异17。
6. 肉品嫩度的客观评价
注意: Warner-Bratzler 剪切力(WBSF)的测定按照文献18,19所述方法进行。
- 将样品放置在固定于玻璃耐火板上的网格中,并在工业电烤箱中加热,直至样品中心温度达到 71 °C。烹饪结束后,冷却样品,称重,并于 4 °C 冷藏保存 24 小时。
- 使用以下公式计算烹饪损失(CL):
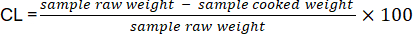 。
- 通过称量样品在烹饪前后耐火板的重量变化来测定滴水损失。为此,将样品置于玻璃耐火板上方的网格上,以便在烹饪过程中使肉汁和脂肪充分排出。
- 通过仅称量样品在烹饪前后的重量来测定蒸发损失。
- 记录生样和熟样的重量,并计算滴水损失百分比(DL),即烹饪后滴下的液体重量除以解冻后肉样重量的百分比。
- 使用公式 [100 - (烹饪后重量) ÷ 生样重量 × 100] 计算蒸发损失百分比(EVP)。
- 为测定剪切力(WBSF),使用配备有 3.07 mm Warner-Bratzler 剪切刀片和 V 形(60° 角)刃口的质构分析仪,从样品中切取八个直径为 1.27 cm 的圆柱形核心样品。
- 排除每个样品中最高和最低的两个极值后,以剩余六个数值的平均值报告结果,单位为千克(kg)19。
7. 生物化学检测
注意:通过估算肌原纤维断裂指数(MFI)来评估死后蛋白质降解,该方法依据 Culler 等人20提出的基本步骤,并经 Borges 等人21 针对 Bos indicus 牛进行改良。
- 在 2 °C 条件下,将约 3 g 的 LT 样本(去脂肪的肌肉组织和结缔组织)在含有 100 mM 氯化钾、20 mM 磷酸钾(pH 7)、1 mM 乙二胺四乙酸(EDTA)、1 mM 氯化镁和 1 mM 叠氮化钠的缓冲溶液中进行匀浆处理,随后在 4 °C 下以 1,000 × g 离心 15 分钟。
- 使用玻璃棒将沉淀物重新悬浮于 10 倍体积(v/w)的分离介质中,然后再次以 1,000 × g 离心 15 分钟,并倾去上清液。
- 将沉淀物重新悬浮于 2.5 倍体积(v/w)的分离介质中,通过聚乙烯筛网(18 目)过滤以分离结缔组织和碎片。再使用额外的 2.5 倍体积(v/w)介质使肌原纤维通过筛网。
- 采用 Gornall 等人22描述的双缩脲法测定肌原纤维悬浮液的蛋白浓度。用分离介质稀释肌原纤维悬浮液的等分试样,使其蛋白浓度达到 0.5 ± 0.05 mg/mL。
- 立即测定该悬浮液在 540 nm 处的吸光度。使用分光光度法在 540 nm 处测定 MFI。将吸光度值乘以 200,得到每个样本的 MFI(以指数形式报告,无单位)。
8. 分子生物学实验
注意:为了分析肌球蛋白重链(MyHC)——牛骨骼肌中最丰富的蛋白质,对两组的 LT 样本均按照文献中描述的方案进行处理23,24。
- 使用梯度SDS-PAGE凝胶(7-10%)和4%浓缩胶进行电泳分离。施加 25 µL 每个样品上样至凝胶,以 70 V、28 mA 的条件电泳运行 4 °C 1小时,随后在180 V、12 mA条件下电泳运行 4 °C 29 小时。
- 在电泳过程中使用两种不同的缓冲液:上层凝胶缓冲液含有甘氨酸、Tris(羟甲基)氨基甲烷碱、十二烷基硫酸钠(SDS)和蒸馏水;下层凝胶缓冲液与上层缓冲液成分相同,额外添加巯基乙醇。
- 用考马斯亮蓝染色凝胶,并使用适当的软件采集图像。
- 根据分子量(分别为 223.900、224.243 和 223.875 kDa)鉴定 MyHC 同工型(MyHC-I、MyHC-IIa、MyHC-IIx/d)。使用适当的软件对各同工型对应的条带进行密度测定,以开展半定量分析。
- 使用 大鼠比目鱼肌 和 趾长伸肌 (EDL)肌肉作为阳性对照以分类MyHC同工型,每块凝胶预留一个加样孔用于上样 40 µL 样品处理后的
- 对于所有数据,使用以下模型通过 F 检验进行方差分析(ANOVA):
Yij = µ + ti + Ɛij
其中Yij为第i处理组第j次重复实验单元的观测值;µ为总体均值效应;t为处理效应(遗传组别),ε为实验误差。 - 使用学生的 t 检验比较均值 t-测试与采用 P-值 < 0.05 作为临界概率。
结果
表1展示了本研究中两个遗传群体的胴体性状。值得注意的是,在胴体重(HCW)、眼肌面积(REA)和背膘厚度(BFT)方面发现了显著差异(P < 0.01),杂交动物的数值更高,提示存在杂种优势效应。
| 变量¹ | Nellore | F1 Angus x Nellore | SEM | P-值 |
| BWfinal, kg | 545.47b | 615.09a | 7.32 | <.0001 |
| HCW, kg | 286.87b | 325.12a | 3.26 | <.0001 |
| REA, cm² | 75.17b | 90.48a | 1.66 | <.0001 |
| BFT, mm | 5.72b | 9.16a | 0.62 | 0.001 |
表1:育肥场育肥的尼罗牛(Bos indicus)与F1安格斯-尼罗杂交牛(Bos taurus × Bos indicus)的胴体性状。a-b 不同小写字母表示在 P < 0.05 水平上存在差异。缩写:BW = 体重;HCW = 热胴体重;REA = 眼肌面积;BFT = 背膘厚度;SEM = 均值标准误。
还进行了肉质性状的比较(表2),发现内洛尔牛与F1安格斯-内洛尔杂交公牛在肉pH值、红度、物理损失(PL)、蒸发损失(EVP)和熟肉率(CL)方面无显著差异(P > 0.05)。然而,杂交公牛的肌内脂肪(IMF)、黄度、持水力(WHC)和肌原纤维嫩度指数(MFI)均显著高于内洛尔公牛(P < 0.05)。因此,内洛尔公牛的肉质性状在嫩度方面表现较差,表现为剪切力(WBSF)和滴水损失(DL)更高(肉质更坚韧),同时持水力较低且水分含量较高。
| 变量¹ | Nellore | F1 安格斯 × Nellore | SEM | P 值 |
| pH | 5.58 | 5.63 | 0.06 | 0.122 |
| 水分含量,% | 74.51 a | 73.65 b | 0.21 | 0.017 |
| IMF NIRS, % | 3.79a | 5.11 b | 0.25 | 0.002 |
| IMF 重量法,% | 1.95 a | 3.11 b | 0.34 | 0.005 |
| 亮度 (L*) | 31.57 a | 30.98 b | 0.58 | 0.008 |
| 红度 (a*) | 14.91 | 15.59 | 0.37 | 0.061 |
| 黄度 (b*) | 5.61 a | 6.19 b | 0.17 | 0.003 |
| 渗出损失,% | 23.17 | 21.03 | 1.22 | 0.176 |
| 滴水损失,% | 3.96 a | 3.67 b | 0.05 | 0.039 |
| 蒸发损失,% | 22.9 | 24.22 | 1.15 | 0.122 |
| 总烹饪损失,% | 26.8 | 28.08 | 1.04 | 0.764 |
| 持水能力 (WHC),% | 61.3 | 63.5 | 1.01 | 0.042 |
| 剪切力 (WBSF),kg | 4.68 a | 4.23 b | 0.17 | 0.002 |
| 肌原纤维片段化指数 (MFI) | 64.95 a | 81.76 b | 1.54 | 0.005 |
表2:集中育肥的 Nelore(Bos indicus)和 F1 安格斯-奈洛尔(Bos taurus × Bos indicus)的肉质性状。a-b不同小写字母表示在 P < 0.05 水平上存在差异。缩写:IMF = 肌内脂肪含量;WBSF = Warner-Bratzler 剪切力;MFI = 肌原纤维碎片化指数;WHC = 持水力。
不同实验组之间肉质嫩度的差异也可能与 MyHC IIa 的差异有关(P < 0.01)(图1)。F1 安格斯-尼罗尔牛的 MyHC IIa 含量高于尼罗尔牛。这些结果表明,在尼罗尔牛中,肌纤维类型从快缩糖酵解型纤维(MyHC IIx)向快缩氧化糖酵解型纤维(MyHC IIa)发生了转变。相比之下,在 F1 安格斯-尼罗尔牛中,这种转变程度较小,表现出明显的快缩糖酵解型纤维(MyHC IIx)肥大性生长。因此,MyHC-IIa 亚型在这两组动物中的表达存在显著差异。
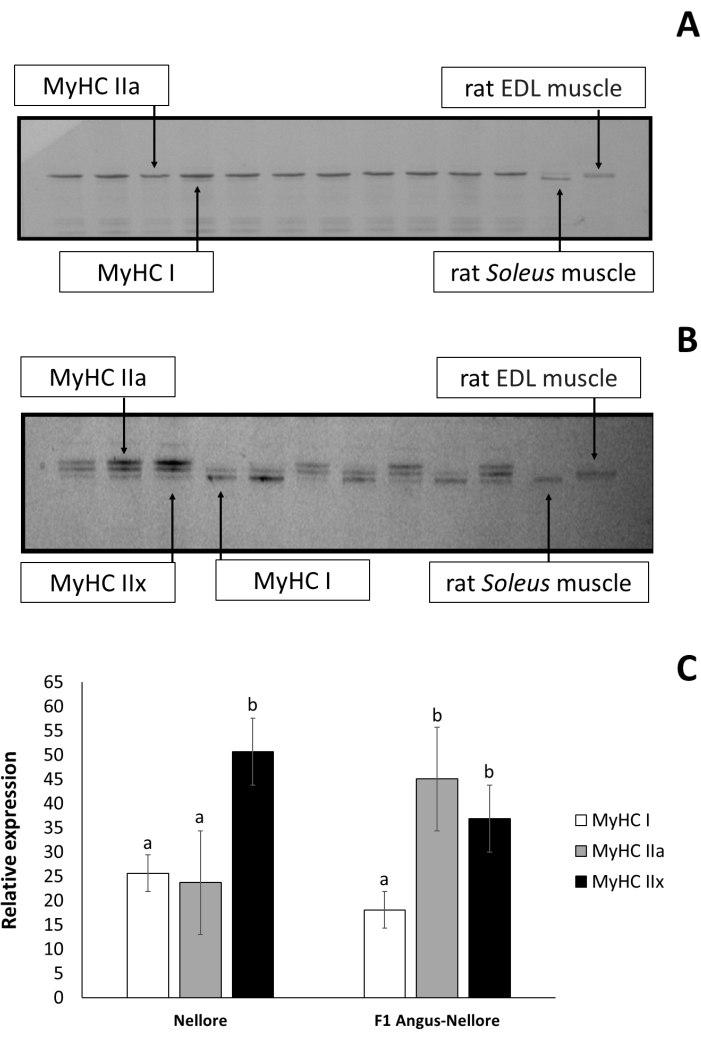
图 1:胸最长肌中肌球蛋白重链同工型的电泳分析。 (A)尼罗牛和(B)安格斯×尼罗杂交F1代公牛。(C)两个实验组胸最长肌中MyHC同工型的相对百分比(7-10% SDS-PAGE凝胶)。缩写:MyHC = 肌球蛋白重链;SDS-PAGE = 十二烷基硫酸钠-聚丙烯酰胺凝胶电泳。请点击此处查看此图的放大版本。
补充图 S1:测量背膘厚度(BFT)的方法,测量位置为皮下脂肪与肌间脂肪的交界处。该方法包括识别特定解剖标志,如肋骨内侧边界“A”点,以及沿眼肌长度四分之三处且横向中点的位置“B”点。随后将游标卡尺在 B 点处垂直于指定肋骨放置,并延伸至皮下脂肪与肌间脂肪的交界处。皮下脂肪厚度通过在交界点处将游标卡尺垂直于皮下脂肪连线进行测量。请点击此处下载该文件。
讨论
在胴体评估过程中,必须在冷却48小时后准确测量生长和品质性状,以获得一致且可比较的数据。两种生物模型在胴体性状上表现出差异,尤其是热胴体重(HCW)、眼肌面积(REA)和背膘厚度(BFT),这与其他研究报道的结果一致。内洛尔公牛的平均热胴体重符合巴西市场的偏好,该市场倾向于每头动物单位产肉量更高且脂肪含量较低的胴体25。相反,杂交牛(Bos taurus × Bos indicus)具有更高的胴体重和更优的大理石纹评分,所产牛肉感官品质更佳。这满足了市场对高附加值牛肉的需求,因为这些性状通常与优质肉制品相关26。
测得的平均pH值在5.3至5.5之间,与文献报道的牛肉pH值范围(通常为5.3至5.6)27高度一致。L*、a*、b*色度参数与其他研究中观察到的肉牛平均值相符7,28,这些研究报道的b*、a*和L*参数范围分别为4.0至7.0、13至16以及30.0至32.0。在这些肉质检测实验中,样品制备必须严谨,包括对肌肉样品进行规范处理,如标准化的成熟过程以及分析前的显色时间,以确保实验一致性。校准和测量操作规程要求所有仪器(如pH计和色差仪)在使用前必须精确校准,以保证测量结果的准确性。
肉的颜色源于肌肉中肌红蛋白与氧气的相互作用,而肌红蛋白的浓度似乎与动物体型成正比29。Purchas 等人30 在对欧洲动物(Bos taurus)的研究中也报告了类似发现,他们观察到快速生长的安格斯牛的肉比生长缓慢的动物具有更高的红度和黄度。先前的研究已报道,颜色参数(L*、a*、b*)可作为预测欧洲牛31和瘤牛32牛肉嫩度的工具。
肉类颜色的检测至关重要,因为消费者在购买肉类时,会将颜色与食品安全(产品来源和贸易)、切割类型与大小、脂肪含量以及肌内脂肪(大理石纹)等因素一同作为主要考量因素。因此,为了提高肉类嫩度和多汁性的可能性,建议消费者评估肉类的颜色、切割大小,尤其是大理石纹或肌内与皮下脂肪33。然而,显然在肉类购买决策过程中,颜色对消费者的影响最为显著。
测得的平均剪切力(WBSF)值在4.0至4.7 kg之间。客观嫩度分析已被广泛用于评估肉类嫩度,因其相对成本较低,且无需依赖品评小组或感官测试34。鉴于消费者对牛肉嫩度的评价具有主观性,且受肌内脂肪(IMF)含量的影响35,仪器测定方法对于预测嫩度等级至关重要。此外,某些方法(如近红外光谱法)具有较高的敏感性,需要精确的校准和样品制备的一致性;任何偏差均可能导致测量结果不准确。
自20世纪60年代以来,WBSF仪器的原始概念已经历了一些变化36。在牛肉研究领域,该方法已由Wheeler等人标准化37。根据作者所述,样品的制备和烹饪过程必须严格控制:将样品置于耐热玻璃上方的网格上进行烹饪,直至其内部温度达到71 °C。烹饪完成后,样品需冷却、称重,并在4 °C下冷藏24小时,以稳定其状态,便于后续分析。烹饪损失通过滴水损失和蒸发损失的计算公式确定,以准确量化因烹饪引起的重量变化。WBSF测定是关键步骤,要求每个样品切取8个圆柱形核心组织,剔除极值后取其中6个剪切力值的平均值,作为衡量肉质嫩度的可靠指标。本研究中的总烹饪损失(EL与DL之和)与育肥场出栏肉牛中报道的数据相当38。此外,普遍认为热诱导的结缔组织变化具有嫩化作用。已有研究证实终末烹饪温度对嫩度的影响,揭示了肌原纤维结构的变化,表明嫩度和烹饪损失(CL)均受到蛋白质变性的影响39,40。此类化学或分子层面的变化可能因持水能力(WHC)的改变而影响感官特性。
关于持水力(CL)和持水能力(WHC)的观察结果符合预期,因为肌肉中水分分布和可利用性在肉的多汁性、嫩度和风味中起着关键作用41。因此,较高的滴水损失(DL)和较低的持水能力(WHC)会导致肉质更坚韧、多汁性更差,本研究中 Nelore 公牛的结果即体现了这一现象。
诸如肌原纤维片段化指数(MFI)之类的生化分析被用作肉嫩度的指标。本研究获得的结果证实,随着剪切力值(WBSF)的升高,牛肉中的MFI下降,可能表明较坚韧肉品中肌原纤维的断裂程度降低。因此,MFI可作为肌纤维蛋白水解的指标,其数值随WBSF的降低而升高42。研究人员报道,较高的肌原纤维蛋白水解速率会导致牛肉43和羔羊肉44嫩度增加。这种用于死后蛋白水解的生化测定方法包括:在特定缓冲溶液中对背最长肌(LT)样品进行匀浆处理,随后进行离心和重悬,并采用双缩脲法测定蛋白浓度。然后通过分光光度法测定MFI,以提供反映肌原纤维断裂程度的指数。这些严格控制的步骤确保了数据的完整性与可靠性,对于评估肉制品的质量和市场价值至关重要。
此外,MFI 可解释熟成肉品嫩度变异性的 50% 以上。在研究不同品种或群体时,肉品嫩度的差异不仅取决于遗传因素。特别是对于背最长肌(LT 肌肉),本研究所表明的结果显示,嫩度变异主要归因于肌原纤维蛋白的蛋白水解作用,其次与肌节长度和结缔组织含量有关45。然而,WBSF 与 MFI 之间的关系可作为肉类工业中检测因宰后冷藏过程导致肉品嫩度问题的有效工具。需要指出的是,尽管本研究为品种类型间的差异提供了见解,但由于样本量及研究范围的限制,尚不能构成全面的遗传评估。
分子分析需要严格控制电泳条件,并对MyHC同工型进行后续分析,以确保蛋白质分离与鉴定的可靠性。遵循这些关键步骤可保证研究结果的稳健性和可重复性。肌纤维类型在调控生长和牛肉嫩度性状方面起着基础性作用。MyHC蛋白是牛肌肉中最丰富的蛋白质46,常用于各肌肉中纤维类型分子鉴定的研究。一些MyHC同工型(如MyHC-IIx)已被建议作为Bos taurus中肉质嫩度的生物标志物47。然而,针对编码MyHC的基因及其在瘤牛(Bos indicus)中同工型表达量的研究仍较为有限。本研究动物中未检测到MyHC-IIb同工型,这与以往关于成年牛骨骼肌中MyHC鉴定与表达的研究结果一致48。具体而言,在尼罗牛中,先前的研究通过电泳法未能在LT肌肉中检测到MyHC-IIb同工型。该同工型更常见于双肌型的Bos taurus品种,例如阿基坦白牛49。
肌纤维类型与牛肉嫩度之间的关系一直是持续争论的话题。样本变异性是一个重要因素,因为动物之间肌肉组成和纤维类型的差异可能导致结果不一致。环境因素,包括饮食和饲养条件,也在影响肉类品质性状方面起着关键作用。这些局限性凸显了在整个测量过程中进行严格控制和标准化的必要性,以确保结果的可靠性和可比性。与本研究结果类似,已有研究报道MyHC-I对夏洛莱牛LT肌肉嫩度具有负面影响50,51。相反,其他研究则描述了MyHC-I对奥布拉克牛、萨勒斯牛、利木赞牛、夏洛莱牛、蒙贝利亚尔牛、荷斯坦牛和阿基坦白牛等多个品种肉品嫩度具有正面影响52,53,54。文献中出现的分歧结果可能归因于基因型差异以及用于分离和鉴定牛LT肌肉中该同工型的方法局限性。此外,不同的背景环境和饮食也可能影响肉质和肌肉类型性状。
生化分析,特别是肌内脂肪含量(MFI)分析,揭示了牛肉宰后嫩度的作用机制,表明了肌纤维类型、肌球蛋白重链同工型及其对牛肉嫩度的关键影响。研究指出,Bos indicus 牛缺乏某些肌球蛋白重链(MyHC)同工型,这与牛肉嫩度的差异密切相关。总体而言,遗传和生化因素之间的复杂相互作用调控着牛肉嫩度,凸显了该领域进一步研究的必要性。通过整合多种方法,如剪切力测定(WBSF)、肌内脂肪(IMF)含量分析以及MyHC同工型电泳,有助于解释肉质性状的变异。文中详述的实验方案为肉质评价提供了精确的操作步骤,确保其他研究人员能够准确重复或调整该流程。此外,研究结果通过揭示Bos indicus牛与杂交公牛在肉质性状上的显著差异,提供了有价值的遗传学见解。
披露
作者无任何利益冲突需要披露。资助方在研究设计、数据收集与分析、发表决定或稿件撰写过程中均未发挥作用。
致谢
本研究由圣保罗研究基金会(FAPESP,资助号:2023/05002-3;2023/02662-2 和 2024/09871-9)、巴西高等教育机构资助基金会(CAPES,资助代码 001)、国家科学技术发展理事会(CNPq,304158/2022-4)以及圣保罗州立大学兽医与动物科学学院研究与研究生事务办公室(PROPE,IEPe-RC 资助号 149)资助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 丙酮 | Merk, Darmstadt, Germany | CAS 67-64-1 | 100014 | 用于电泳分离的溶液 |
| 抗MYH-1抗体 | Merk, Darmstadt, Germany | MABT846 | 大鼠比目鱼肌 |
| 抗肌球蛋白抗体 | Abcam, Massachusetts, United States | ab37484 | 肌球蛋白重链 |
| 抗肌球蛋白-2 (MYH2) 抗体 | Merk, Darmstadt, Germany | MABT840 | 趾长伸肌(EDL) |
| 生化需氧量(BOD)培养箱 | TECNAL, São Paulo, Brazil | TE-371/240L | 肉类成熟 |
| 氯仿;分析纯试剂 | Sigma-Aldrich, Missouri, United States | 67-66-3 | 肌内脂肪 |
| CIELab系统 | Konica Minolta Sensing, Tokyo, Japan | CR-400色差计 | 肉色 |
| 考马斯亮蓝 | Sigma-Aldrich, Missouri, United States | C.I. 42655) | 肌球蛋白重链 |
| 电热烘箱 | Venâncio Aires, Rio Grande do Sul, Brazil | 肉质嫩度 | |
| 乙醇 | Merk, Darmstadt, Germany | 64-17-5 | 用于电泳分离的溶液 |
| 乙二胺四乙酸 | Sigma-Aldrich, Missouri, United States | 60-00-4 | 死后蛋白水解 |
| 玻璃烧瓶 | Sigma-Aldrich, Missouri, United States | 用于电泳分离的溶液 | |
| 甘氨酸 | Sigma-Aldrich, Missouri, United States | G6761 | 肌球蛋白重链 |
| 红外光谱仪 - FoodScan | Foss NIRSystems, Madson, United States | FoodScan™ 2 | 肌内脂肪 |
| 氯化镁 | Sigma-Aldrich, Missouri, United States | 7786-30-3 | 死后蛋白水解 |
| 巯基乙醇 | Sigma-Aldrich, Missouri, United States | M6250 | 肌球蛋白重链 |
| 甲醇,分析纯试剂 | Sigma-Aldrich, Missouri, United States | 67-56-1 | 肌内脂肪 |
| pH计 | LineLab, São Paulo, Brazil | AKLA 71980 | 肉的pH值 |
| PlusOne 2-D Quant试剂盒 | GE Healthcare Product | 编号 80-6483-56 | 死后蛋白水解 |
| 聚丙烯 | Sigma-Aldrich, Missouri, United States | 用于电泳分离的溶液 | |
| 氯化钾 | Sigma-Aldrich, Missouri, United States | 7447-40-7 | 死后蛋白水解 |
| 磷酸钾 | Sigma-Aldrich, Missouri, United States | P0662 | 死后蛋白水解 |
| R软件 | Vienna, Austria | 版本 3.6.2 | 数据分析 |
| 叠氮化钠 | Sigma-Aldrich, Missouri, United States | 26628-22-8 | 死后蛋白水解 |
| 十二烷基硫酸钠 (SDS) | Sigma-Aldrich, Missouri, United States | 822050 | 肌球蛋白重链 |
| 分光光度计 | Perkin Elmer, Shelton, United States | Perkin Elmer Lambda 25 UV/Vis | 死后蛋白水解 |
| 统计分析系统 | SAS, Cary, North Carolina, United States | 版本 9.1 | 数据分析 |
| 质构分析仪 | AMETEK Brookfield, Massachusetts, United States | CTX | 肉质嫩度 |
| 三羟甲基氨基甲烷 | Sigma-Aldrich, Missouri, United States | 77-86-1 | 肌球蛋白重链 |
| 超低温冰箱 | Indrel Scientific, Londrina, Paraná, Brazil. | INDREL IULT 335 D - LCD | 样品储存 |
| 超纯水 | Elga PURELAB Ultra Ionic系统 | 用于电泳分离的溶液 | |
| Ultra-Turrax高剪切混合器 | Marconi – MA102/E, Piracicaba, São Paulo, Brazil | 死后蛋白水解 |
参考文献
- Nunes, C. L. deC., Pflanzer, S. B., Rezende-de-Souza, J. H., Chizzotti, M. L. Beef production and carcass evaluation in Brazil. Anim Front. 14 (2), 15-20 (2024).
- MAPA. Projeções Do Agronegócio: Brasil 2017/18 a 2027/28 Projeções de Longo Prazo / Ministério Da Agricultura, Pecuária e Abastecimento. Biblioteca Nacional de Agricultura. , BINAGRI. Brasília-DF. (2018).
- Bernués, A., Ripoll, G., Panea, B. Consumer segmentation based on convenience orientation and attitudes towards quality attributes of lamb meat. Food Qual Prefer. 26, 211-220 (2012).
- Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding management and marketing decisions on feedlots: A national survey in Brazil (Part II). Can J Anim Sci. 100 (4), 759-770 (2020).
- de Andrade, T. S., et al. Perception of consultants, feedlot owners, and packers regarding the optimal economic slaughter endpoint in feedlots: A national survey in Brazil (Part I). Can J Anim Sci. 100 (4), 745-758 (2020).
- Santiago, B., et al. Comparison of dental carcass maturity in non-castrated male F1 Angus-Nellore cattle finished in feedlot. Food Sci Anim Resour. 41 (3), 554-562 (2021).
- Miguel, G. Z., et al. Immunocastration improves carcass traits and beef color attributes in Nellore and Nellore×Aberdeen Angus crossbred animals finished in feedlot. Meat Sci. 96 (2), 884-891 (2014).
- Costa, N. V., et al. Carcass and meat quality traits in Nellore and F1 Nellore-Araguaia crosses. Genet Mol Res. 14 (2), 5379-5389 (2015).
- Pinto, A. C. J., Millen, D. D. Nutritional recommendations and management practices adopted by feedlot cattle nutritionists: the 2016 Brazilian survey. Can J Anim Sci. 99 (2), 392-407 (2019).
- Costa Junior, C., et al. Brazilian beef cattle feedlot manure management: A country survey. J Anim Sci. 91 (4), 1811-1818 (2013).
- Huang, C., et al. Proteomics discovery of protein biomarkers linked to meat quality traits in post-mortem muscles: Current trends and future prospects: A review. Trends Food Sci Technol. 105, 416-432 (2020).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20, 609-619 (2020).
- Official United States Standards for Grades of Carcass Beef. United States Standards for Grades of Carcass Beef. USDA. , Available from: https://www.ams.usda.gov/sites/default/files/media/CarcassBeefStandard.pdf 1-20 (1997).
- Anderson, S. Determination of fat, moisture, and protein in meat and meat products by using the FOSS FoodScan near-infrared spectrophotometer with FOSS artificial neural network calibration model and associated database: Collaborative study. J AOAC Int. 90 (4), 1073-1083 (2007).
- Bligh, E. G., Dyer, W. J. A rapid method of total lipid extraction. Can J Biochem Physiol. 37 (8), 911-917 (1959).
- Hernández Salueña, B., Sáenz Gamasa, C., Diñeiro Rubial, J. M., Alberdi Odriozola, C. CIELAB color paths during meat shelf life. Meat Sci. 157, 107889(2019).
- Rao, M. V., Gault, N. F. S., Kennedy, S. Variations in water-holding capacity due to changes in the fibre diameter, sarcomere length and connective tissue morphology of some beef muscles under acidic conditions below the ultimate pH. Meat Sci. 26 (1), 19-37 (1989).
- Wheeler, T. L., Koohmaraie, M., Cundiff, L. V., Dikeman, M. E. Effects of cooking and shearing methodology on variation in Warner-Bratzler shear force values in beef. J Anim Sci. 72 (9), 2325-2330 (1994).
- AMSA. Research Guidelines for Cookery, Sensory Evaluation, and Instrumental Tenderness Measurements of Meat. American Meat Science Association Educational Foundation. , (2015).
- Culler, R. D., Parrish, F. C., Smith, G. C., Cross, H. R. Relationship of myofibril fragmentation index to certain chemical, physical and sensory characteristics of bovine longissimus muscle. J Food Sci. 43 (4), 1177-1180 (1978).
- Borges, B. O., et al. Polymorphisms in candidate genes and their association with carcass traits and meat quality in Nellore cattle. Pesqui Agropecu Bras. 49 (5), 364-371 (2014).
- Gornall, A. G., Bardawill, C. J., David, M. M. Determination of serum proteins by means of the biuret reaction. J Biol Chem. 177 (2), 751-766 (1949).
- Chardulo, L. A. L., et al. Gene and protein expression of myosin heavy chain in Nellore cattle comparing growth or meat tenderness traits. Anim Biotechnol. 32 (3), 300-309 (2019).
- Vechetti-Júnior, I. J., et al. NFAT isoforms regulate muscle fiber type transition without altering can during aerobic training. Int J Sports Med. 34 (10), 861-867 (2013).
- Ferraz, J. B. S., de Felício, P. E. Production systems - An example from Brazil. Meat Sci. 84, 238-243 (2010).
- Liang, R. R., et al. Tenderness and sensory attributes of the longissimus lumborum muscles with different quality grades from Chinese fattened yellow crossbred steers. Meat Sci. 112, 52-57 (2016).
- Viljoen, H. F., De Kock, H. L., Webb, E. C. Consumer acceptability of dark, firm and dry (DFD) and normal pH beef steaks. Meat Sci. 61 (2), 181-185 (2002).
- Lopes, L. S. F., et al. Application of the principal component analysis , cluster analysis , and partial least square regression on crossbreed Angus-Nellore bulls feedlot finished. Trop Anim Health Prod. 52 (6), 3655-3664 (2020).
- Oddy, V. H., Harper, G. S., Greenwood, P. L., McDonagh, M. B. Nutritional and developmental effects on the intrinsic properties of muscles as they relate to the eating quality of beef. Aust J Exp Agric. 41 (7), 921-942 (2001).
- Purchas, R. W., Burnham, D. L., Morris, S. T. Effects of growth potential and growth path on tenderness of beef longissimus muscle from bulls and steers. J Anim Sci. 80 (12), 3211-3221 (2002).
- Wulf, D. M., O’Connor, S. F., Tatum, J. D., Smith, G. C. Using objective measures of muscle color to predict beef Longissimus tenderness. J Anim Sci. 75 (3), 684-692 (1997).
- Baldassini, W. A., et al. Meat quality traits of Nellore bulls according to different degrees of backfat thickness: A multivariate approach. Anim Prod Sci. 57 (2), 363-370 (2017).
- Chardulo, L. A. L., Silveira, A. C., Vianello, F. Analytical aspects for tropical meat quality assessment. Food Quality, Safety and Technology. Lima, G. P. P., Vianello, F. , Springer-Verlag Wien. 53-62 (2013).
- Chen, L., Opara, U. L. Texture measurement approaches in fresh and processed foods - A review. Food Research International. 51 (2), 823-835 (2013).
- Luo, L., Guo, D., Zhou, G., Chen, K. An investigation on the relationship among marbling features, physiological age and Warner–Bratzler Shear force of steer longissimus dorsi muscle. J Food Sci Technol. 55 (4), 1569-1574 (2018).
- Essex, E. Objective measurements for texture in foods. J Texture Stud. 1, 19-37 (1969).
- Wheeler, T. L., Koohmaraie, M., Shackelford, S. D. Standardized Warner-Bratzler shear force procedures for meat tenderness measurement. , Available from: https://www.ars.usda.gov/ARSUserFiles/30400510/protocols/shearforceprocedures.pdf (1995).
- Severino, M., et al. Proteomics unveils post-mortem changes in beef muscle proteins and provides insight into variations in meat quality traits of crossbred young steers and heifers raised in feedlot. Int J Mol Sci. 23 (20), 12259(2022).
- Bertola, N. C., Bevilacqua, A. E., Zaritsky, N. E. Heat treatment effect on texture changes and thermal denaturation of proteins in beef muscle. J Food Process Preserv. 18 (1), 31-46 (1994).
- Palka, K., Daun, H. Changes in texture, cooking losses, and myofibrillar structure of bovine M. semitendinosus during heating. Meat Sci. 51 (3), 237-243 (1999).
- Pearce, K. L., Rosenvold, K., Andersen, H. J., Hopkins, D. L. Water distribution and mobility in meat during the conversion of muscle to meat and ageing and the impacts on fresh meat quality attributes - A review. Meat Sci. 89 (2), 111-124 (2011).
- Muniz, M. M. M., et al. Use of gene expression profile to identify potentially relevant transcripts to myofibrillar fragmentation index trait. Funct Integr Genomics. 20 (4), 609-619 (2020).
- Baldassini, W., et al. Meat quality and muscle tissue proteome of crossbred bulls finished under feedlot using wet distiller grains by-product. Foods. 11 (20), 3233(2022).
- della Malva, A., et al. In-depth characterization of myofibrillar muscle proteome changes in lambs fed hazelnut skin by-products. Food Biosci. 53, 102836(2023).
- Koohmaraie, M., Kent, M. P., Shackelford, S. D., Veiseth, E., Wheeler, T. L. Meat tenderness and muscle growth: Is there any relationship. Meat Sci. 62 (3), 345-352 (2002).
- Lefaucheur, L., et al. Muscle characteristics and meat quality traits are affected by divergent selection on residual feed intake in pigs. J Anim Sci. 89 (4), 996-1010 (2011).
- Picard, B., et al. Inverse relationships between biomarkers and beef tenderness according to contractile and metabolic properties of the muscle. J Agric Food Chem. 62 (40), 9808-9818 (2014).
- Chikuni, K., Muroya, S., Nakajima, I. Myosin heavy chain isoforms expressed in bovine skeletal muscles. Meat Sci. 67 (1), 87-94 (2004).
- Picard, B., Cassar-Malek, I. Evidence for expression of IIb myosin heavy chain isoform in some skeletal muscles of Blonde d’Aquitaine bulls. Meat Sci. 82 (1), 30-36 (2009).
- Crouse, J. D., Koohmaraie, M., Seideman, S. D. The relationship of muscle fibre size to tenderness of beef. Meat Sci. 30 (4), 295-302 (1991).
- Zamora, F., et al. Predicting variability of ageing and toughness in beef M. Longissimus lumborum et thoracis. Meat Sci. 43 (3-4), 321-333 (1996).
- Strydom, P. E., Naude, R. T., Smith, M. F., Scholtz, M. M., Van Wyk, J. B. Characterisation of indigenous African cattle breeds in relation to meat quality traits. Meat Sci. 55 (1), 79-88 (2000).
- Renand, G., Picard, B., Touraille, C., Berge, P., Lepetit, J. Relationships between muscle characteristics and meat quality traits of young Charolais bulls. Meat Sci. 59 (1), 49-60 (2001).
- Chriki, S., et al. Meta-analysis of the comparison of the metabolic and contractile characteristics of two bovine muscles: Longissimus thoracis and semitendinosus. Meat Sci. 91 (4), 423-429 (2012).
重印与许可
