本文介绍了一种用于测定人或小鼠骨骼肌新鲜通透化肌纤维中线粒体氧化磷酸化水平的综合性方法。该方法能够在保持线粒体网络结构和膜完整性的前提下,实时定量检测线粒体呼吸,并评估底物偏好性与代谢灵活性。
本文内容
摘要
摘要
线粒体功能是细胞能量生成的核心,对维持代谢稳态至关重要。骨骼肌中线粒体功能障碍与多种常见代谢性疾病(如糖尿病和肥胖)、肌营养不良症以及肌肉减少症密切相关。尽管已有多种技术可用于评估线粒体含量和形态,但评估线粒体功能的标志性方法是通过呼吸测定法测量线粒体氧化磷酸化(OXPHOS)。定量检测线粒体OXPHOS有助于深入了解线粒体氧化供能效率及细胞生物能量状态。高分辨率呼吸仪通过实时测定透化肌纤维中线粒体耗氧速率的变化,可实现对线粒体OXPHOS高度敏感且可靠的测量。相较于分离的线粒体,使用透化肌纤维能够保留线粒体网络结构,维持线粒体膜完整性,从而获得更接近生理状态的测量结果。该系统还可用于评估底物偏好性和代谢灵活性——即肌肉能量代谢的动态特征。本文提供了利用高分辨率呼吸仪测定人和小鼠骨骼肌纤维中线粒体OXPHOS的全面操作指南。骨骼肌由不同类型的肌纤维组成,其在线粒体底物偏好和生物能量特性方面存在差异。借助高分辨率呼吸仪,我们描述了评估有氧糖酵解和脂肪酸底物利用的方法,以实现按肌纤维类型依赖的方式分析底物偏好性和代谢灵活性。该方案具有良好的通用性,适用于人和啮齿类动物的肌纤维。本研究的目标是提高线粒体功能评估的可重复性和准确性,从而增进我们对这一在肌肉健康中起关键作用的细胞器的理解。
引言
线粒体是细胞能量生成的核心,对于维持细胞和机体的最佳稳态至关重要。这些具有双层膜结构的细胞器主要负责氧化磷酸化过程,能够高效地将糖类和脂肪酸等营养物质转化为三磷酸腺苷(ATP),即细胞内的能量“货币”。除了在能量代谢中的作用外,线粒体还调控多种细胞过程,包括细胞凋亡、钙稳态以及活性氧(ROS)的生成1,2。由于线粒体在维持细胞和机体稳态中具有关键作用,其功能障碍通常会对组织和机体健康造成有害影响。在骨骼肌中,线粒体功能障碍与多种疾病状态相关,包括代谢性疾病(如肥胖、糖尿病和心血管疾病)、肌肉减少症以及肌营养不良3,4,5,6,7,8。
线粒体功能障碍主要表现为线粒体含量、数量和形态的改变,以及代谢紊乱。因此,要全面理解线粒体功能障碍,需要采用整合性和整体性的研究方法。初步表征研究包括检测呼吸链蛋白复合物的表达水平以评估线粒体含量,定量线粒体DNA及生物发生标志物以衡量线粒体生物合成,以及利用精密的电子显微镜成像技术评估线粒体形态9,10。对线粒体功能的进一步评估还包括测定细胞内活性氧(ROS)和三磷酸腺苷(ATP)的生成水平,以及线粒体膜电位9。
由于线粒体对细胞能量生成和稳态至关重要,评估线粒体功能的一个重要标志是测量线粒体氧化磷酸化(OXPHOS)。利用高分辨率呼吸测定法检测透化肌纤维,可实时测量线粒体耗氧速率的变化,从而反映线粒体OXPHOS呼吸链活性的动态变化9,11,12。通过应用特异性化学调节剂和抑制剂,可直接且依次测定不同呼吸复合物的活性。尽管分离的线粒体也可用于呼吸测定,但使用新鲜的透化肌纤维能够维持内源性线粒体网络结构和膜完整性,从而获得更接近生理状态的测量结果。此外,由于不同类型的肌纤维具有不同的底物偏好和呼吸速率,该系统还可用于根据纤维类型评估燃料偏好和代谢灵活性的变化13。
本文介绍了一种利用高分辨率呼吸测量系统对人或小鼠骨骼肌纤维进行线粒体氧化磷酸化(OXPHOS)测定的全面实验方案。方案中包括使用丙酮酸或棕榈酰-肉碱作为底物,定量测定氧化型或糖酵解型肌纤维中线粒体氧消耗的方法。本方案还可采用其他燃料底物,以研究与底物利用障碍及燃料偏好相关的特定代谢问题。
方案
所有小鼠实验程序均经华盛顿大学机构动物护理和使用委员会批准。实验可使用任意性别、年龄和体重的小鼠,具体选择取决于拟解决的科学问题。本实验所用小鼠为成年雄性野生型 C57BL/6 小鼠(12–16 周龄)。所有涉及人类受试者的实验程序均经华盛顿大学机构审查委员会批准。研究对象已签署数据使用知情同意书,本方案中所引用的代表性人类受试者数据来自已发表的研究14。此处所用数据来自非糖尿病、绝经后女性(55–75 岁)。实验所需试剂的配制详情见表 1。实验中所用特定试剂、工具和仪器的信息列于材料表中。本实验方案的示意图见图 1。

图1:透化骨骼肌样本高分辨率呼吸测定的示意图。 本文详细描述的方法分为六个部分:1)呼吸缓冲液和试剂的制备,2)检测当天仪器和试剂的准备,3)肌肉样本的制备与透化处理,4)样本与仪器的准备,5)运行呼吸测定实验,以及6)数据分析。图片由 BioRender.com 制作。请点击此处查看此图的放大版本。
1. 检测准备与仪器校准
- 在测定当天,取出所需数量的每种呼吸化合物(blebbistatin、palmitoyl-carnitine、glutamate、malate、ADP、succinate、cytochrome C、FCCP)分装样品,置于冰上解冻。同时将BIOPS和MiR05试剂瓶置于冰上解冻。
- 按照指示制备皂苷和丙酮酸溶液 表1. 按如下方法制备MiR05的工作溶液 表1. 每台仪器(2个腔室)配制5 mL MiR05工作液,根据需要同比放大。
- 打开高分辨率呼吸测定系统和真空系统。取下塞子,通过真空除去70%乙醇储存液,并用超纯分子级H2O. 去除 H2用真空法吸出并重新加入缓冲液,共重复洗涤3次。最后一次洗涤后,向每个腔室中加入2 mL MiR05(不含肌酸或blebbistatin)。
- 打开呼吸测量软件。软件启动后,将弹出一个用于仪器设置的对话框。将腔室搅拌速度设置为750 rpm,温度设置为 37 °C,将数据记录间隔设为2 s。将氧气传感器的增益设为1,极化电压设为800 mV。点击 连接至Oxygraph 与仪器建立通信。
- 建立连接后,将弹出一个对话框,用于命名并保存实验文件。请将文件以当前日期和校准信息命名并保存。保存文件后,将弹出一个填写实验详情的对话框。校准运行无需填写任何信息,可直接关闭该对话框。
- 至少记录30分钟的氧气浓度,以使腔室充分预热并记录空气校准信号。此步骤可与肌纤维的制备同时进行,具体操作详见下文步骤2。
- 校准周期结束时,在氧浓度(蓝线)稳定的区域上标记一个校准范围。操作方法是按住 转移 键和 左键鼠标 按钮并拖动以在时间轴上选择一个区域。
- 通过进入校准窗口打开校准窗口 Oxygraph > O2 校准. 对于空气校准,选择步骤1.8中生成的标记。点击 校准并复制到剪贴板.
- 对剩余的腔室重复步骤 1.6-1.8。每天进行空气校准。通过断开与仪器的连接来停止空气校准记录并保存文件。待样品准备好后,进入步骤 3 进行检测。
2. 骨骼肌纤维的收获与通透化
- 小鼠组织分离
- 针对每个待分析的样本,向12孔培养板中的一个孔加入1 mL BIOPS溶液。将培养板置于冰上预冷。
- 通过吸入二氧化碳安乐死小鼠,随后进行颈椎脱位,取所需骨骼肌组织,并确保去除所有结缔组织和脂肪(图2A)。将肌肉组织放入含有BIOPS溶液的孔中,置于冰上直至进行纤维制备。
注意:本方案可用于检测任何类型的骨骼肌——所检测的肌肉类型取决于拟解决的实验问题。对于含有混合纤维类型的骨骼肌(如腓肠肌),可将组织分离为白色和红色区域,以分别测量主要为快缩型(白色区域)和主要为慢缩型(红色区域)的肌纤维(图2B)。
- 人类组织分离
- 按照临床操作规程采集组织14。用冰冷的无菌PBS快速冲洗组织,并将其置于含有2 mL BIOPS溶液的锥形管中。将组织置于冰上,直至进行纤维制备。
- 纤维制备
- 透化处理将在6孔细胞培养板中进行。向一组孔中加入2 mL BIOPS溶液,向另一组孔中加入2 mL MiR05溶液。每个待测样本需使用一组孔。
- 用冰填满托盘,并将玻璃培养皿倒扣于冰上。务必始终将肌肉组织保持在冰上。
- 使用镊子将采集的肌肉样本转移至预冷的培养皿平台上。在光源照明的解剖显微镜下,使用两把尖头镊子轻轻去除附着在肌肉上的肌腱、筋膜和脂肪组织,对组织进行清理。
- 在去除所有非肌肉组织后,用尖头镊子轻轻将肌纤维分开,直至形成长度约为0.75–1.0 mm的半透明细小纤维束(图2C-D)。纤维分离完成后,用镊子将纤维束转移至6孔板中盛有BIOPS溶液并置于冰上的孔中。
- 向每个含有BIOPS溶液的孔中加入20 µL 5 mg/mL皂苷溶液,在冷室中轻轻振荡,于冰上孵育20分钟。
- 皂苷处理后,将肌纤维转移至含有MiR05溶液的孔中进行漂洗,以准备后续检测。在冷室中轻轻振荡,于冰上孵育15分钟。
- MiR05溶液孵育完成后,用尖头镊子收集纤维,并在实验纸巾上轻轻吸干肌纤维表面液体。将1.5 mL塑料微量离心管在精密天平上去皮归零,取2–3 mg纤维放入管中。在每根管壁上记录最终纤维重量。将离心管置于冰上。对其他样本重复上述操作。立即进入第3步。
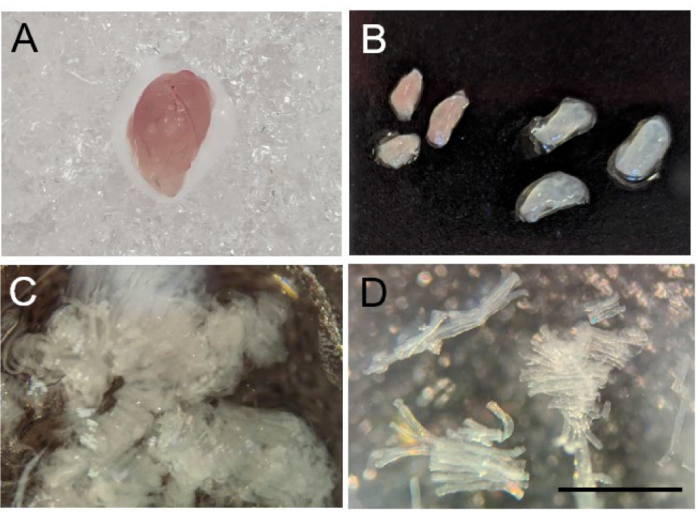
图 2:小鼠骨骼肌纤维的分离。(A)收获后小鼠腓肠肌的大体形态。(B)将腓肠肌解剖为红色部分(左侧)和白色部分(右侧)。(C)机械分离后的肌纤维。(D)成功分离的肌纤维在 10 倍显微镜下的图像。比例尺为 1 mm。请点击此处查看该图的放大版本。
3. 在呼吸计中制备肌肉样本
- 按照上述步骤1中的说明,抽真空去除用于仪器校准的MiR05,并向每个腔室中加入2.1 mL的工作MiR05溶液。
- 使用与上述步骤1.5中相同的仪器设置,为实验创建一个新文件。设置文件名并保存配置。
- 设置文件名后,下一个弹出的对话框将用于输入特定的实验细节。输入每个腔室中样品的信息及样品质量。关闭该对话框。
- 进入新的实验文件后,打开O2校准窗口进行校准设置。点击从文件复制,并选择上述步骤1.9中保存的文件。点击校准并复制到剪贴板按钮。对剩余腔室重复此过程。
- 使用精细镊子,小心地将肌纤维束转移至相应腔室的呼吸溶液中。对剩余腔室重复此操作。
- 将密封塞盖上腔室,并通过将塞子向下压至约一半深度的方式半关闭腔室。当塞子上的O型圈与腔室内壁接触并产生阻力时,边向下压边旋转以完成关闭。当腔室关闭至一半时,可在腔室顶部观察到一个小气泡。
注意:在常规呼吸条件下,透化纤维易受氧气扩散限制的影响。为克服此限制,本实验在较高的氧气浓度下进行11。 - 用氧气罐中的纯氧填充一支10 mL塑料注射器。将仪器附带的长钝针头安装在注射器上。将针头插入第一个腔室,并缓慢向其中注入约1 mL氧气。
- 在呼吸测量软件中监测腔室内的氧气浓度。当腔室氧气浓度达到350–400 nmol/mL时,边向下压边轻轻旋转密封塞,将腔室完全关闭。观察腔室内部,确保无残留气泡。若存在气泡,应小心迅速地重新打开腔室,加入100 µL额外的工作MiR05溶液,然后迅速再次关闭腔室。对剩余腔室重复此操作。
- 实验过程中应保持氧气浓度高于250 nmol/mL。根据需要,可通过部分打开腔室,在气泡中加入更多氧气,再小心关闭腔室的方式补充氧气。
- 将氧气通量数据归一化至实验所用组织的质量。为调整图表,将布局更改为显示O2通量(pmol O2 / (s × mg))。在布局菜单中选择06 - 单位样品特异性通量布局。此时数据将根据每个腔室中组织的量进行归一化显示。
4. 高分辨率呼吸测氧法
- 在添加氧气后,当氧浓度(蓝线)和 O2 流速(红线)趋于稳定时,开始进行呼吸测定实验。当蓝线呈平坦或缓慢下降状态时,可认为氧气已稳定;O2 流速也应趋于平稳,并在 5 pmol O2 / s × mg 以内。
- 使用玻璃注射器添加所有试剂。务必避免将同一只注射器用于底物、抑制剂和解偶联剂,应分别为每类试剂配备专用注射器。每次加入化合物后,需在呼吸速率稳定后继续记录 1–2 分钟的氧流速,然后再加入下一种试剂。
- 呼吸作用测量
- 使用 10 µL 玻璃注射器,向每个腔室加入 2.5 µL 的 0.8 M 苹果酸。按下 F4 标记时间线,并将标记标注为 M。记录 1–2 分钟稳定的 O2 流速。
- 根据以下说明加入特定营养物试剂:
- 有氧糖酵解:使用 10 µL 玻璃注射器,向每个腔室加入 10 µL 的 2 M 谷氨酸和 5 µL 的 2 M 丙酮酸。按下 F4 标记时间线,并将标记标注为 G P。记录 1–2 分钟稳定的 O2 流速。
- 脂肪酸:使用 10 µL 玻璃注射器,向每个腔室加入 10 µL 的 2 M 谷氨酸和 10 µL 的 10 mM 棕榈酰肉碱。按下 F4 标记时间线,并将标记标注为 G PC。记录 1–2 分钟稳定的 O2 流速。
- 使用 25 µL 玻璃注射器,向每个腔室加入 20 µL 的 0.5 M(含 MgCl2)ADP。按下 F4 标记时间线,并将标记标注为 ADP。记录 1–2 分钟稳定的 O2 流速。
- 使用 25 µL 玻璃注射器,向每个腔室加入 20 µL 的 1 M 琥珀酸。按下 F4 标记时间线,并将标记标注为 S。记录 1–2 分钟稳定的 O2 流速。
- 使用 10 µL 玻璃注射器,向每个腔室加入 5 µL 的 4 mM 细胞色素 C。按下 F4 标记时间线,并将标记标注为 Cyt C。记录 1–2 分钟稳定的 O2 流速。
- 使用 10 µL 玻璃注射器,分三次每次加入 1 µL 的 1 mM FCCP。通常在加入 FCCP 时会产生混合效应,导致 O2 流速短暂下降。需等待 O2 流速回升并稳定后再进行下一步操作。每次加入后按下 F4 标记时间线,并将标记标注为 FCCP。每次加入后记录 1 分钟稳定的 O2 流速。
- 当呼吸测定实验完成后,通过旋转并向上拔出的方式轻轻取下密封塞。使用洗瓶以超纯 H2O 冲洗腔室 3 次,随后再用洗瓶以 70% 乙醇冲洗 3 次。最后一次乙醇冲洗后,将腔室中充满 70% 乙醇以供储存。
- 将密封塞轻轻放入腔室中,直至感觉到阻力为止。不要完全关闭密封塞。在密封塞上盖上盖帽,保存实验文件,并将仪器从呼吸测定软件中断开连接。关闭仪器电源。
5. 数据分析
- 在呼吸测定软件中打开分析文件。从加入呼吸化合物后获得的稳定氧通量区域提取数据。
- 要标记感兴趣区域,请按住 移位 关键,点击 左鼠标 按钮,并将方框拖动至稳定的 O2 测定各阶段的通量速率区域。
- 检测步骤14,15,16,17,18,19,20
- 在加入苹果酸/谷氨酸/丙酮酸(有氧糖酵解方案)或苹果酸/谷氨酸/棕榈酰肉碱(脂肪酸方案)后标记时间线。该速率代表复合物 I 状态 2 呼吸(LEAK(n))速率。
- 在加入ADP后标记时间线。该速率代表复合体I状态3呼吸(CI OXPHOS)速率。
- 在加入琥珀酸后标记时间线。该速率代表复合体 I+II 状态 3 呼吸(CI+II OXPHOS)速率。
- 添加细胞色素C后标记时间线。该速率代表复合物I+II+细胞色素C状态3呼吸(CI+II+Cyt C OXPHOS)速率。
- 标记 FCCP 滴定的最高氧耗率时间点2 通量速率。该速率代表最大呼吸速率(MAX ETS)。
- 通过选择时间轴上标记的区域来提取相应的数据值 马克 > 统计学. 复制 O2 通量速率(pmol O2/(s × mg) 将标记腔室的数据记录到电子表格中。
- 对其他腔室重复标记和数据提取。
- 通过将复合体I+II的State 3(加入琥珀酸后)除以复合体I的State 2(加入ADP前)来计算呼吸控制比(RCR)。
结果
图3 和 图4 分别展示了经适当制备的小鼠腓肠肌红肌与白肌纤维在有氧糖酵解和脂肪酸呼吸测定实验中的氧消耗曲线。图中同时展示了代表性定量结果作为参考。图5 展示了经适当制备的人体肌肉活检样本在有氧糖酵解呼吸测定实验中的氧消耗曲线,同时附有代表性定量结果。需要注意的是,在 图3、图4 和 图5 中,ADP 加入后添加细胞色素 C 并未对氧通量产生影响,表明样本的线粒体外膜保持完整。图6 展示了一例有氧糖酵解呼吸测定的氧消耗曲线,其中在 ADP 加入后添加细胞色素 C 导致氧通量出现明显上升(增加 40%),表明线粒体外膜已受损,因此该样本不适用于呼吸测定实验——可能的原因包括组织处理不当或反复冻融、组织透化时间过长,以及未使用新鲜分离的组织。
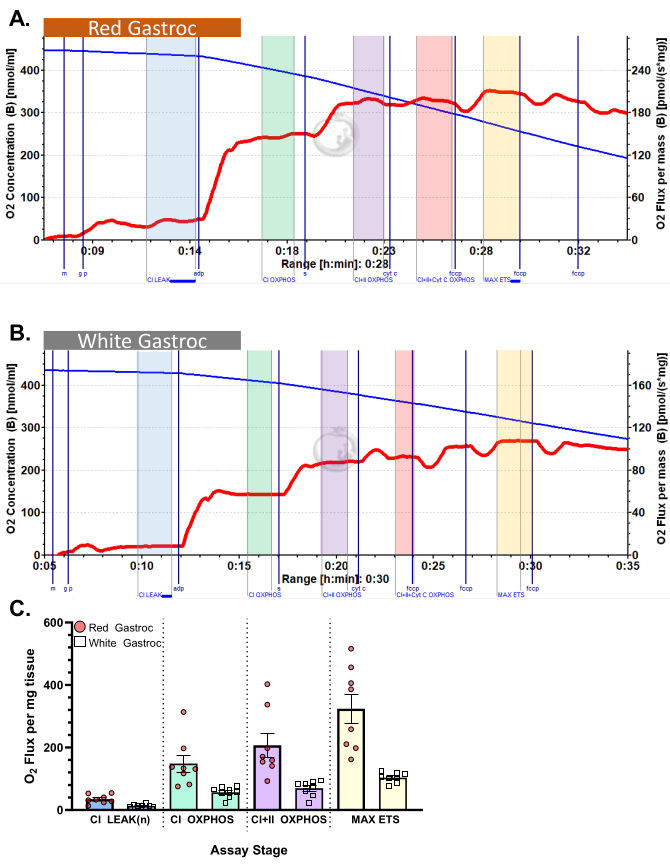
图3:小鼠中的氧气消耗。 结果显示了使用丙酮酸盐方案时(A)红色和(B)白色腓肠肌中的氧气消耗。在加入苹果酸、谷氨酸和丙酮酸后,状态2的通量(蓝色区域,CI LEAK)。加入ADP后观察到O2消耗显著增强(绿色区域,CI OXPHOS),再加入琥珀酸后呼吸进一步增强(紫色区域,CI+II OXPHOS)。细胞色素C未引起显著增加(<15%),表明线粒体外膜完整(橙色区域,CI+II+Cyt C OXPHOS)。加入FCCP后线粒体解偶联(黄色区域,MAX ETS)。蓝色线代表封闭腔室中的氧气浓度,红线代表氧气消耗速率(O2通量)。添加的化合物:苹果酸(m)、谷氨酸(g)、丙酮酸(p)、二磷酸腺苷(ADP)、细胞色素C(cyt c)、羰基氰化-p-三氟甲氧基苯腙(FCCP)。(C) 柱状图反映代表性结果(n=8)。数据以±SEM表示。请点击此处查看此图的放大版本。
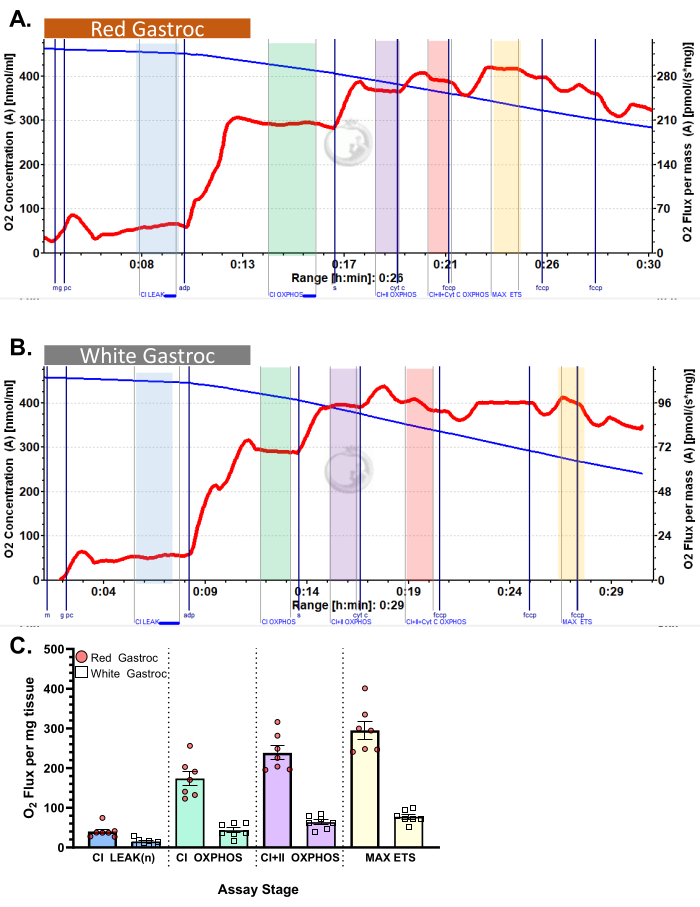
图4:小鼠中的氧气消耗。结果显示了使用棕榈酰肉碱方案时(A)红色和(B)白色腓肠肌中的氧气消耗。在加入苹果酸、谷氨酸和棕榈酰肉碱后,状态2的通量(蓝色区域,CI LEAK)。加入ADP后,O2消耗显著增强(绿色区域,CI OXPHOS),再加入琥珀酸后呼吸进一步增强(紫色区域,CI+II OXPHOS)。细胞色素C未引起显著增加(<15%),表明线粒体外膜完整(橙色区域,CI+II+Cyt C OXPHOS)。加入FCCP后线粒体解偶联(黄色区域,MAX ETS)。蓝线表示密闭腔室中的氧气浓度,红线表示氧气消耗速率(O2通量)。所添加的化合物:苹果酸(m)、谷氨酸(g)、棕榈酰肉碱(pc)、二磷酸腺苷(ADP)、细胞色素C(cyt c)、羰基氰-对-三氟甲氧基苯腙(FCCP)。(C)柱状图反映了代表性结果(n=7)。数据以±SEM表示。请点击此处查看此图的放大版本。
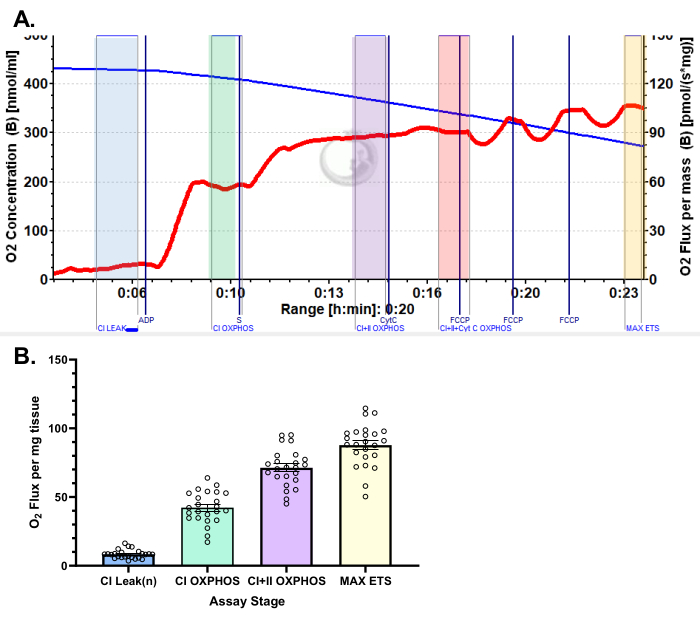
图5使用丙酮酸盐方案检测人股外侧肌耗氧量的代表性结果 (A) 添加苹果酸、谷氨酸和丙酮酸后的状态2呼吸(蓝色区域,CI LEAK)。O₂消耗显著增强2 在加入ADP后观察到耗氧量增加(绿色区域,CI OXPHOS),随后添加琥珀酸可进一步促进呼吸作用(紫色区域,CI+II OXPHOS)。细胞色素C未引起显著的耗氧量上升<15%),表明线粒体外膜完整(橙色区域,CI+II+Cyt C OXPHOS)。加入FCCP后线粒体解偶联(黄色区域,MAX ETS)。蓝色线条表示密闭腔室中的氧气浓度。红色线条表示氧气消耗速率(O2 通量)。添加的化合物:苹果酸(m)、谷氨酸(g)、丙酮酸(p)、二磷酸腺苷(ADP)、细胞色素C(cyt c)、羰基氰化对三氟甲氧基苯腙(FCCP)。B柱状图反映了从股外侧肌活检获得的代表性结果(n = 24)。数据以± SEM表示。 请点击此处以查看此图的放大版本。
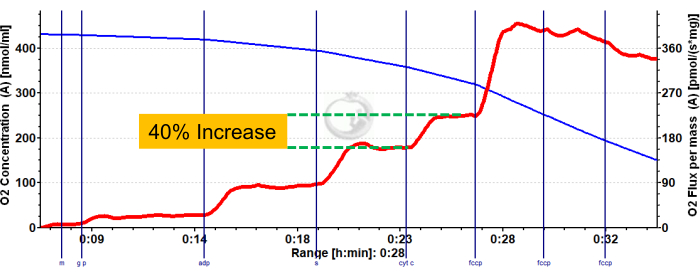
图6:代表性结果,显示小鼠红色腓肠肌线粒体外膜完整性受损。 添加苹果酸、谷氨酸和丙酮酸后测定的态2呼吸通量(蓝色区域,CI LEAK)。加入ADP后,O2消耗显著增强(绿色区域,CI OXPHOS);进一步添加琥珀酸后呼吸作用进一步增强(紫色区域,CI+II OXPHOS)。细胞色素C引起O2消耗显著增加(>15%),表明线粒体外膜已受损。蓝色曲线表示密闭腔室中的氧气浓度,红色曲线表示氧气消耗速率(O2通量)。所添加的化合物:苹果酸(m)、谷氨酸(g)、丙酮酸(p)、二磷酸腺苷(ADP)、细胞色素C(cyt c)、羰基氰化物-对-三氟甲氧基苯腙(FCCP)。请点击此处查看该图的放大版本。
表1:呼吸作用化合物和呼吸溶液的试剂配制。 列出了进行检测所需试剂的配制细节,包括最终储备浓度以及配制和储存方法。请点击此处下载该表格。
讨论
本方案为评估人和小鼠样本中透化骨骼肌纤维的线粒体功能,提供了一个全面且简便的模板化实验流程。与分离线粒体相比,使用透化肌纤维具有多项优势。其中一个关键优势在于,透化肌纤维实验仅需少量组织(2–5 mg),因此适用于人体肌肉活检样本以及小鼠肌肉组织。另一项优于分离线粒体的特点是细胞结构保持完整,从而确保了线粒体与细胞其他组分之间结构和功能相互作用的保留12,21,22,23。
在我们的有氧糖酵解实验方案中使用丙酮酸、苹果酸和谷氨酸,可对NADH向复合体I的供应进行综合、广谱的评估24,25,26,27,28。尽管这种综合方法可在整体且生理相关的代谢条件下评估复合体I的活性,但使用丙酮酸-苹果酸或谷氨酸-苹果酸组合可能是更为合适的实验策略。例如,谷氨酸-苹果酸组合有助于揭示与氨基酸分解代谢相关的线粒体功能差异29。我们建议研究人员根据其特定的研究模型,仔细选择适当的实验方法。
尽管本实验方案主要关注使用底物来评估线粒体活性,但在某些情况下,使用特异性抑制剂可能是实现实验目的所必需的。例如,鱼藤酮可用于抑制复合物 I12,21,30,寡霉素用于抑制复合物 V(ATP 合酶)12,21,抗霉素 A 用于阻断复合物 III12,21,以评估非线粒体呼吸。上述方案可轻松调整,以纳入特定抑制剂的使用。需要特别注意的是,抑制剂使用的一个局限性在于这些化合物具有黏附性,需进行彻底清洗才能从仪器反应室中清除。我们发现,使用 10% BSA 溶液孵育 60 分钟足以去除残留的抑制剂。
LEAK呼吸是指与ATP合成无关的氧气消耗速率。该速率代表质子从线粒体内膜回流至线粒体基质的过程。目前有三种公认的方法用于评估与ATP合成无关的氧气消耗(LEAK)。第一种方法LEAK(n),是在存在底物但不添加腺苷酸(ADP或ATP)的条件下测定氧气消耗速率31,32,33。该LEAK状态反映了线粒体膜固有的质子渗漏性。第二种方法LEAK(t),是在存在ATP的条件下进行测定34;第三种方法LEAK(o),是在存在ATP合酶抑制剂寡霉素的条件下进行测定35,36,37。本实验方案采用LEAK(n)进行评估,但根据具体的研究目的和实验模型,其他测定LEAK氧通量的方法也可能适用。
在此项检测中,MiR05 缓冲液需添加磷酸肌酸(3 mg/mL)和布雷比斯塔汀(10 µM)。线粒体 ADP 转运由肌酸激酶(CK)介导,因此向呼吸缓冲液中加入肌酸以饱和 CK 活性38,39。肌纤维可能发生自发性收缩,并对 ADP 诱导的收缩敏感。为了在不受收缩影响的情况下评估线粒体呼吸活性,已加入布雷比斯塔汀以抑制肌纤维的收缩功能38。此外,针对人体肌肉的研究表明,呼吸能力可能受活检方法(微活检与 Bergstrom 针)的影响,这种差异可能源于所获取肌纤维长度的不同40,41。较短的肌纤维在制备过程中可能更容易受损,而使用布雷比斯塔汀有助于维持其功能完整性。在某些特定实验条件下,若肌纤维松弛不符合研究目的,则可不将布雷比斯塔汀加入 MiR05 缓冲液中。
皂苷处理骨骼肌纤维可使其质膜产生孔隙,从而使底物和抑制剂自由进入细胞。皂苷对胆固醇具有高亲和力,而胆固醇在细胞质膜中含量丰富,线粒体膜则胆固醇含量较低42,43预计本方案中用于制备肌纤维的皂苷处理将保持线粒体膜的完整性。线粒体损伤也可能由组织分离为肌纤维过程中产生的机械剪切力引起。我们建议将组织分离为肌纤维束的操作应迅速完成,并尽量减少操作步骤。为评估可能发生的线粒体损伤,我们在呼吸测定方案中加入了细胞色素C滴定步骤。细胞色素C无法穿过完整的线粒体外膜。12,因此,任何O的增加2 细胞色素C添加后通量的变化表明,在样品制备过程中外线粒体膜受到了损伤。在我们最近的一项研究中,发现O2 通量增加了8%15 在加入细胞色素C后,可验证本方案中建议使用的皂苷不会引起线粒体损伤。我们建议,若任何样本的氧消耗率增加超过15%,2 添加细胞色素C后的通量应排除在分析之外44此步骤仅作为质量控制措施,而非用于评估复合体IV的活性。
尽管高分辨率呼吸测定法在提供高灵敏度和可靠的氧气消耗测量方面表现出色,但该仪器的一个显著局限性在于每台设备只能同时测量两个样本。因此,在设计涉及多个样本队列的研究时,必须仔细规划。尽管研究者可能倾向于在一天内分批测量不同样本组,但我们强烈建议考虑昼夜节律对代谢的影响。针对人类和啮齿类动物骨骼肌的研究均表明,生物钟会对线粒体功能产生影响45,46。因此,我们建议在每天相同的时间段内分多日进行测量,以消除昼夜节律波动带来的影响。
最后,为了确保呼吸测量结果具有可重复性和可靠性,呼吸仪必须定期进行清洁、维护和校准。如本方案所述,应每天进行空气校准。我们建议用户每月对极谱式氧气传感器进行一次完整的校准(包括空气校准和零点校准)。有关该校准方法的更多细节以及仪器常规维护的操作说明,用户应参考仪器制造商提供的技术文档和官方网站信息。
高分辨率呼吸测定法仍是测量线粒体呼吸的金标准。本方案中详述的方法可对啮齿类和人类骨骼肌的线粒体功能能力进行可靠的评估。该方案已应用于与遗传性小鼠模型相关的线粒体功能研究15,16,以及慢性肾病19、膳食补充剂干预14,20和运动17,18背景下的相关研究。
披露
作者无任何利益冲突需要披露。
致谢
本研究得到了美国国立卫生研究院营养与肥胖研究中心(NIH资助号P30 DK056341)以及NIH资助号K01 HL145326的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 µL Hamilton 注射器(玻璃注射器) | ThermoFisher | 14-813-125 | 用于呼吸测定实验的滴定 |
| 25 µL Hamilton 注射器(玻璃注射器) | 赛默飞世尔科技 | 14-813-133 | 用于呼吸测定实验的滴定 |
| ADP | 默克 | 117105 | 呼吸测定实验 |
| 黑色玻璃解剖皿 | Scintica | DD-90-S-BLK | 用于样品制备 |
| Blebbistatin | Sigma | B0560 | 工作用 MiR05 溶液 |
| BSA,无脂肪酸 | Sigma | A6003 | MiR05 溶液 |
| 碳酸钙 | Sigma | C4830 | BIOPS 溶液 |
| 肌酸 | Sigma | 27900 | 工作用 MiR05 溶液 |
| 细胞色素C | Sigma | C7752 | 呼吸测定实验 |
| DatLab | Oroboros Instruments | N/A | 呼吸测定软件 |
| 二硫苏糖醇(DTT) | Sigma | D0632 | BIOPS 溶液 |
| D-蔗糖 | Sigma | 84097 | MiR05 溶液 |
| EGTA | Sigma | E4378 | BIOPS & MiR05 溶液 |
| FCCP | Sigma | C2920 | 呼吸测定实验 |
| 谷氨酸 | Sigma | G1626 | 呼吸测定实验 |
| HEPES | Sigma | H7523 | MiR05 溶液 |
| 咪唑 | Sigma | 56750 | BIOPS 溶液 |
| KH2PO4 | Sigma | P5379 | MiR05 溶液 |
| 乳糖酸 | Sigma | 153516 | MiR05 溶液 |
| 苹果酸 | Sigma | M1000 | 呼吸测定实验 |
| MES 水合物 | Sigma | M8250 | BIOPS 溶液 |
| MgCl₂ - 6 H₂O | Sigma | M2670 | BIOPS & MiR05 溶液 |
| Oroboros Oxygraph-2K(O2K)系统 | Oroboros Instruments | 10203-03 | 高分辨率呼吸测量仪 |
| 棕榈酰-肉碱 | Sigma | P4509 | 呼吸测定实验 |
| 氢氧化钾 | Sigma | P1767 | BIOPS 溶液 |
| 精密镊子 | Fisher | 17-467-168 | 用于样品制备 |
| 皂苷 | Sigma | S2149 | 用于纤维通透化 |
| 钠ATP | Sigma | A2383 | BIOPS 溶液 |
| 磷酸肌酸钠 | Sigma | P7936 | BIOPS 溶液 |
| 丙酮酸钠 | Sigma | P2256 | 呼吸测定实验 |
| 琥珀酸 | Sigma | S2378 | 呼吸测定实验 |
| 牛磺酸 | Sigma | T0625 | BIOPS & MiR05 溶液 |
参考文献
- Rizzuto, R., De Stefani, D., Raffaello, A., Mammucari, C. Mitochondria as sensors and regulators of calcium signalling. Nat Rev Mol Cell Biol. 13 (9), 566-578 (2012).
- Ruegsegger, G. N., Creo, A. L., Cortes, T. M., Dasari, S., Nair, K. S. Altered mitochondrial function in insulin-deficient and insulin-resistant states. J Clin Invest. 128 (9), 3671-3681 (2018).
- Simoneau, J. A., Kelley, D. E. Altered glycolytic and oxidative capacities of skeletal muscle contribute to insulin resistance in NIDDM. J Appl Physiol. 83 (1), 166-171 (1997).
- Ryan, T. E., et al. Extensive skeletal muscle cell mitochondriopathy distinguishes critical limb ischemia patients from claudicants. JCI Insight. 3 (21), 123235(2018).
- Sullivan, M. J., Green, H. J., Cobb, F. R. Skeletal muscle biochemistry and histology in ambulatory patients with long-term heart failure. Circulation. 81 (2), 518-527 (1990).
- Giebelstein, J., et al. The proteomic signature of insulin-resistant human skeletal muscle reveals increased glycolytic and decreased mitochondrial enzymes. Diabetologia. 55 (4), 1114-1127 (2012).
- Tezze, C., et al. Age-associated loss of OPA1 in muscle impacts muscle mass, metabolic homeostasis, systemic inflammation, and epithelial senescence. Cell Metab. 25 (6), 1374-1389 (2017).
- Hughes, M. C., et al. Early myopathy in Duchenne muscular dystrophy is associated with elevated mitochondrial H(2) O(2) emission during impaired oxidative phosphorylation. J Cachexia Sarcopenia Muscle. 10 (2), 643-661 (2019).
- Yin, Y., Shen, H. Common methods in mitochondrial research (Review). Int J Mol Med. 50 (4), 5182(2022).
- Vue, Z., et al. 3D reconstruction of murine mitochondria reveals changes in structure during aging linked to the MICOS complex. Aging Cell. 22 (12), e14009(2023).
- Doerrier, C., et al. High-resolution fluoRespirometry and OXPHOS protocols for human cells, permeabilized fibers from small biopsies of muscle, and isolated mitochondria. Methods Mol Biol. 1782, 31-70 (2018).
- Pesta, D., Gnaiger, E. High-resolution respirometry: OXPHOS protocols for human cells and permeabilized fibers from small biopsies of human muscle. Methods Mol Biol. 810, 25-58 (2012).
- Picard, M., Hepple, R. T., Burelle, Y. Mitochondrial functional specialization in glycolytic and oxidative muscle fibers: tailoring the organelle for optimal function. Am J Physiol Cell Physiol. 302 (4), C629-C641 (2012).
- Yoshino, M., et al. Nicotinamide mononucleotide increases muscle insulin sensitivity in prediabetic women. Science. 372 (6547), 1224-1229 (2021).
- Mousa, M. G., et al. Site-1 protease inhibits mitochondrial respiration by controlling the TGF-beta target gene Mss51. Cell Rep. 42 (4), 112336(2023).
- Moon, S. H., et al. Genetic deletion of skeletal muscle iPLA(2)gamma results in mitochondrial dysfunction, muscle atrophy and alterations in whole-body energy metabolism. iScience. 26 (6), 106895(2023).
- Bittel, A. J., et al. A single bout of premeal resistance exercise improves postprandial glucose metabolism in obese men with prediabetes. Med Sci Sports Exerc. 53 (4), 694-703 (2021).
- Bittel, A. J., et al. A single bout of resistance exercise improves postprandial lipid metabolism in overweight/obese men with prediabetes. Diabetologia. 63 (3), 611-623 (2020).
- Bittel, D. C., Bittel, A. J., Varadhachary, A. S., Pietka, T., Sinacore, D. R. Deficits in the skeletal muscle transcriptome and mitochondrial coupling in progressive diabetes-induced CKD relate to functional decline. Diabetes. 70 (5), 1130-1144 (2021).
- Mills, K. F., et al. Long-term administration of nicotinamide mononucleotide mitigates age-associated physiological decline in mice. Cell Metab. 24 (6), 795-806 (2016).
- Djafarzadeh, S., Jakob, S. M. High-resolution respirometry to assess mitochondrial function in permeabilized and intact cells. J Vis Exp. (120), e54985(2017).
- Lemieux, H., Semsroth, S., Antretter, H., Hofer, D., Gnaiger, E. Mitochondrial respiratory control and early defects of oxidative phosphorylation in the failing human heart. Int J Biochem Cell Biol. 43 (12), 1729-1738 (2011).
- Gnaiger, E. Capacity of oxidative phosphorylation in human skeletal muscle: new perspectives of mitochondrial physiology. Int J Biochem Cell Biol. 41 (10), 1837-1845 (2009).
- Appelman, B., et al. Muscle abnormalities worsen after post-exertional malaise in long COVID. Nat Commun. 15 (1), 17(2024).
- O'Rourke, A. R., et al. Impaired muscle relaxation and mitochondrial fission associated with genetic ablation of cytoplasmic actin isoforms. FEBS J. 285 (3), 481-500 (2018).
- Inigo, M. R., et al. Estrogen receptor-alpha in female skeletal muscle is not required for regulation of muscle insulin sensitivity and mitochondrial regulation. Mol Metab. 34, 1-15 (2020).
- Musci, R. V., et al. Phytochemical compound PB125 attenuates skeletal muscle mitochondrial dysfunction and impaired proteostasis in a model of musculoskeletal decline. J Physiol. 601 (11), 2189-2216 (2023).
- Englund, D. A., et al. p21 induces a senescence program and skeletal muscle dysfunction. Mol Metab. 67, 101652(2023).
- Zhang, K., et al. Mitochondrial supercomplex assembly regulates metabolic features and glutamine dependency in mammalian cells. Theranostics. 13 (10), 3165-3187 (2023).
- Davis, M. S., Barrett, M. R. High-resolution fluoro-respirometry of equine skeletal muscle. J Vis Exp. (192), e65075(2023).
- Schytz, C. T., et al. Skeletal muscle mitochondria demonstrate similar respiration per cristae surface area independent of training status and sex in healthy humans. J Physiol. 602 (1), 129-151 (2024).
- Hingst, J. R., et al. Inducible deletion of skeletal muscle AMPKalpha reveals that AMPK is required for nucleotide balance but dispensable for muscle glucose uptake and fat oxidation during exercise. Mol Metab. 40, 101028(2020).
- Krumschnabel, G., Eigentler, A., Fasching, M., Gnaiger, E. Use of safranin for the assessment of mitochondrial membrane potential by high-resolution respirometry and fluorometry. Methods Enzymol. 542, 163-181 (2014).
- Gnaiger, E., Mendez, G., Hand, S. C. High phosphorylation efficiency and depression of uncoupled respiration in mitochondria under hypoxia. Proc Natl Acad Sci U S A. 97 (20), 11080-11085 (2000).
- Basse, A. L., et al. Nampt controls skeletal muscle development by maintaining Ca(2+) homeostasis and mitochondrial integrity. Mol Metab. 53, 101271(2021).
- Flensted-Jensen, M., et al. Combined changes in temperature and pH mimicking exercise result in decreased efficiency in muscle mitochondria. J Appl Physiol. 136 (1985), 79-88 (2024).
- Porter, C., et al. Mitochondrial respiratory capacity and coupling control decline with age in human skeletal muscle. Am J Physiol Endocrinol Metab. 309 (3), E224-E232 (2015).
- Perry, C. G., et al. Inhibiting myosin-ATPase reveals a dynamic range of mitochondrial respiratory control in skeletal muscle. Biochem J. 437 (2), 215-222 (2011).
- Veksler, V. I., et al. Muscle creatine kinase-deficient mice. II. Cardiac and skeletal muscles exhibit tissue-specific adaptation of the mitochondrial function. J Biol Chem. 270 (34), 19921-19929 (1995).
- Isner-Horobeti, M. E., et al. Microbiopsies versus Bergstrom needle for skeletal muscle sampling: impact on maximal mitochondrial respiration rate. Eur J Appl Physiol. 114 (5), 885-889 (2014).
- Hughes, M. C., et al. Mitochondrial bioenergetics and fiber type assessments in microbiopsy vs. Bergstrom percutaneous sampling of human skeletal muscle. Front Physiol. 18 (6), 360(2015).
- Kuznetsov, A. V., et al. Analysis of mitochondrial function in situ in permeabilized muscle fibers, tissues and cells. Nat Protoc. 3 (6), 965-976 (2008).
- Elustondo, P., Martin, L. A., Karten, B. Mitochondrial cholesterol import. Biochim Biophys Acta Mol Cell Biol Lipids. 1862 (1), 90-101 (2017).
- Ramos, P. M., Li, C., Elzo, M. A., Wohlgemuth, S. E., Scheffler, T. L. Mitochondrial oxygen consumption in early postmortem permeabilized skeletal muscle fibers is influenced by cattle breed. J Anim Sci. 98 (3), 044(2020).
- van Moorsel, D., et al. Demonstration of a day-night rhythm in human skeletal muscle oxidative capacity. Mol Metab. 5 (8), 635-645 (2016).
- de Goede, P., et al. Time-restricted feeding during the inactive phase abolishes the daily rhythm in mitochondrial respiration in rat skeletal muscle. FASEB J. 36 (2), e22133(2022).
重印与许可
