噬菌体在地球上广泛存在且种类繁多,可感染细菌宿主并在其中复制,在微生物生态系统中发挥着关键作用。尽管噬菌体具有重要性,但其存在可能干扰工业生产过程。我们开发了一种利用细菌脂多糖从Salmonella培养物中去除噬菌体的方法。
本文内容
摘要
摘要
噬菌体,或简称为噬菌体,在微生物环境中发挥着至关重要的作用,影响细菌种群并塑造其进化和相互作用。这类生物是能够感染并在细菌宿主内复制的病毒。噬菌体在地球上普遍存在,具有高度多样性且数量极为丰富。尽管噬菌体在不同环境中具有重要价值,并且是微生物学和生态学研究的关键领域,但其在某些工业过程或产品中的存在可能是不利的。鉴于噬菌体在地球上的广泛存在和高丰度,设计从细菌培养物中去除噬菌体的程序对于多种实验室和工业应用至关重要,以维持培养物的完整性,并确保实验结果的准确性或产品质量。本文中,我们优化了一种利用革兰氏阴性菌外膜中存在的脂多糖(LPS)来清除感染性肠炎沙门氏菌(Salmonella enterica)培养物中噬菌体的方案。细菌LPS在噬菌体识别宿主过程中起重要作用,我们利用这一特性,设计了一种有效去除以LPS为受体的噬菌体的方法,适用于沙门氏菌(Salmonella)培养物。
引言
微生物种群在自然环境中面临着多种挑战,其中尤为严峻的威胁是感染噬菌体的可能性,噬菌体是感染细菌的病毒1。这些病毒在地球上广泛存在,具有高度的多样性与丰度2,3,4,5。尽管噬菌体在大小、形态和基因组结构上各不相同,但它们都具有相同的结构:由噬菌体编码蛋白构成的衣壳包裹着DNA或RNA基因组6。细菌已进化出多种多样的防御机制以对抗噬菌体7。噬菌体感染的一个关键特征是其尾丝上存在的受体结合域,这一特征对于噬菌体的表征和检测均具有重要意义。噬菌体表面具有称为受体结合蛋白或尾丝的蛋白质,用于识别并结合细菌细胞表面的特定受体位点。对于革兰氏阴性菌而言,表面结构(如脂多糖(LPS)、外膜蛋白、菌毛和/或鞭毛)的识别参与了噬菌体与细菌的相互作用8。噬菌体与细菌之间的这种相互作用具有高度特异性,主要取决于它们附着于宿主表面的能力。脂多糖的O抗原是一种常用的受体9。
噬菌体与细菌相互作用的研究不仅在生物学角度上引人入胜,而且在噬菌体治疗和生物技术等领域具有实际应用价值。尽管噬菌体在多种情境下具有重要用途,例如调控微生物群落10,但其在某些工业过程中可能存在不利影响。在制药、生物技术和食品生产中,噬菌体的存在可能影响最终产品的质量和安全性,因此必须将其去除以满足质量标准。在利用细菌培养物生产各种化合物(如蛋白质、酶或抗生素)的生物加工与生物制造过程中,噬菌体的存在可能因其在所有共存环境中调节细菌种群的能力而干扰生产流程。噬菌体有时会使工业微生物学家的工作陷入困境11。设计有效的噬菌体去除方案对于确保生产过程的稳定性和可靠性、提高工艺效率至关重要。除工业应用外,在科研实验室环境中,精确性和可重复性至关重要,消除噬菌体对于获得准确可靠的研究结果必不可少。此外,去除噬菌体还可用于模拟不同环境以检验各种假设12。在研究环境中,去除噬菌体也极为有用,因为许多基于噬菌体的研究(例如噬菌体处理后对细菌进行计数)若能增加一步去除噬菌体的操作,将显著提高活菌计数的可靠性。
基于菌落分离的噬菌体去除方法需要数天时间才能确保菌落无噬菌体,而本文所述方法可在数小时内获得无噬菌体的培养物。该方案使我们能够在不中断菌落分离的情况下持续追踪细菌培养物的进化过程。在此意义上,可模拟波动环境(噬菌体存在和/或缺失)以检验不同的假设。此外,该方案还允许对细菌培养物中噬菌体的存在进行定性和定量分析。
总之,设计经济高效的噬菌体去除方法对于在多个行业中维持产品质量、安全性和工艺效率,以及推动基础和应用研究进展至关重要。本文介绍了一种基于脂多糖(LPS)的高效方案,可用于去除以LPS作为受体的噬菌体,该方法从感染的Salmonella培养物中清除噬菌体,既节省时间,又仅需最少的设备。
方案
注意:在进行噬菌体消除操作之前,我们先介绍用9NA噬菌体感染的Salmonella(沙门氏菌)培养物的制备方法。图1展示了细菌培养物中噬菌体去除全过程的总体示意图。
1. 准备 沙门氏菌 感染噬菌体的培养物
- 细菌培养物制备
注意:在本研究中, 鼠伤寒沙门氏菌 亚种 enterica 血清型鼠伤寒沙门菌ATCC 14028株 opvAB::lacZ (SV8011)13 被使用。- 从 -80 °C 取出的冻存管,缓慢解冻 S. enterica 将目标菌株置于冰上。
- 划线接种 S. enterica 从解冻的二甲基亚砜保存液中取菌株接种至LB琼脂平板(10 g/L胰蛋白胨,5 g/L NaCl,5 g/L酵母提取物,15 g/L琼脂,见 材料表)。将培养板在37 °C孵育24 h。
- 使用接种针,从培养物中转移一个菌落 S. enterica 接种于玻璃管中含5 mL液体LB培养基的培养管内,37 °C、200 rpm振荡培养24 h。
- 噬菌体的制备
注意:属于长尾噬菌体科(Siphoviridae,目:有尾噬菌体目 Caudovirales)的噬菌体 9NA14,本方案中使用了。值得注意的是,其他 沙门氏菌肠炎亚种 可使用以脂多糖O抗原作为受体的噬菌体。- 通过将0.1 mL浓缩噬菌体裂解液加入含有100 mL营养肉汤(NB;5 g/L蛋白胨和3 g/L酵母提取物)与2 mL 50× E盐溶液(38.78 mM MgSO₄)的混合液中,制备噬菌体培养液。47 H2O,520.5 mM 柠檬酸H2O, 2.87 M K2HPO4 无水且含829 mM NaNH4HPO44 H2O) 和 0.4 mL 50% 葡萄糖。颠倒混匀。
- 噬菌体浓度的一个代表性示例为 109 PFU/mL(噬斑形成单位/mL),但使用较低浓度也可获得相似结果(参见 材料表)在完成步骤1.2.3后,估算噬菌体浓度。
- 按照下述步骤制备裂解液。
- 制备 S. enterica 在5 mL LB培养基(10 g/L胰蛋白胨、5 g/L NaCl和5 g/L酵母提取物)中接种菌种。37 °C、200 rpm条件下培养24 h。
- 将4 mL噬菌体肉汤与1 mL过夜培养的菌液混合 S. enterica37 °C、200 rpm条件下孵育混合物8小时。
- 为了区分细菌与噬菌体,将混合物在 2,377 x g 20分钟。将上清液回收至玻璃管中,加入800 µL氯仿(见 材料表),并涡旋混合。当使用含氯仿的混合液时,务必仅转移上层相。
注意:必须防止残留氯仿的转移,因为这可能影响实验步骤的效率。在分离和扩增实验方案中,氯仿处理步骤均较为常见,其目的在于最大限度地释放噬菌体。然而,氯仿可能使某些噬菌体失活或破坏其感染能力。15因此,此步骤仅适用于对氯仿具有抗性的噬菌体。 - 将裂解液在室温下孵育2小时,然后于4 °C保存。
- 滴定裂解液以定量测定所制备裂解液中每毫升含有的噬菌体数量(即PFU数)。为此,请执行下述覆盖法技术。
- 制备5 mL LB培养基用于接种 S. enterica37 °C、200 rpm 振荡培养 24 小时。
- 将裂解液用LB培养基进行系列稀释,以获得可计数的PFU/mL。为确定所需的稀释倍数,需明确初始噬菌体裂解液的浓度。以噬菌体浓度约为10为例9 PFU/mL,能够产生可计数噬斑数量的稀释倍数介于10之间6-1010.
- 加入100 µL适当稀释的裂解液和60 µL过夜培养的菌液 S. enterica 前一天制备的5 mL LB软琼脂,通过将液体LB与LB-琼脂按1:1比例混合,并保持在56 °C以防止凝固。轻轻混匀,避免产生气泡。
- 将每种混合物倒入LB平板的上层,置于实验台上直至培养基凝固。
- 37 °C 培养平板 24 小时。计数每块平板上的噬斑数量。为确定 PFU/mL 数值,将每块平板上的噬斑数乘以稀释倍数(FD)。为确保高效的噬菌体感染,109-1012 PFU/mL 是必需的。
PFU/mL = 平板中空斑数 × 稀释倍数
- 通过将0.1 mL浓缩噬菌体裂解液加入含有100 mL营养肉汤(NB;5 g/L蛋白胨和3 g/L酵母提取物)与2 mL 50× E盐溶液(38.78 mM MgSO₄)的混合液中,制备噬菌体培养液。47 H2O,520.5 mM 柠檬酸H2O, 2.87 M K2HPO4 无水且含829 mM NaNH4HPO44 H2O) 和 0.4 mL 50% 葡萄糖。颠倒混匀。
- 感染 沙门氏菌 用噬菌体培养
- 稀释过夜培养的菌液 S. enterica 至终体积5 mL LB培养基中按1:100稀释,并加入0.1 mL(浓缩至10倍)的裂解液9-1012 PFU/mL)。在37 °C、200 rpm条件下培养24 h。
- 平板法测定噬菌体滴度(PFU)
- 为了定量感染培养物中的噬菌体数量,按如下所述进行平板测定,以确定噬菌体滴度(PFU/mL)。
- 将1 mL培养物转移至离心管中,在17,115 x g 2 分钟后,将上清液倒入一个新的已标记小瓶中。
- 加入100 µL氯仿至离心管中,涡旋振荡以去除溶液中的细菌碎片。按步骤1.2.3操作。
- 为了定量感染培养物中的噬菌体数量,按如下所述进行平板测定,以确定噬菌体滴度(PFU/mL)。
2. 从感染的 Salmonella enterica 培养物中去除噬菌体(见 图2)
注意:为了监测噬菌体的去除过程,在清洗流程的不同阶段取样进行滴定。总共取八个样品,以确认在清洗过程中每毫升噬菌斑形成单位(PFU/mL)的数量持续下降,直至完全消除。
- 去除悬浮液中的噬菌体
- 将含有噬菌体的细菌培养物用5 mL经0.22 µm滤膜过滤的LB培养基在50 mL锥形离心管中稀释100倍。滴定点1:此为用于滴定的第一个等分试样(初始感染的Salmonella培养物)。
- 将悬浮液在2,377 x g条件下离心10分钟。小心移除上清液。不要使用移液器,应直接倾倒离心管。尽量在锥形离心管底部保留少量液体,以确保细胞的存在。
- 用10 mL经0.22 µm滤膜过滤的LB培养基洗涤细菌细胞。重复离心和洗涤步骤3次。将沉淀重悬于5 mL经0.22 µm滤膜过滤的LB培养基中。滴定点2:此为用于滴定的第二个等分试样。
- 使用真空过滤系统,将50 µL上述细菌悬浮液通过无菌0.45 µm滤膜(见材料表)。用100 mL经0.22 µm滤膜过滤的LB培养基冲洗滤膜。
注意:噬菌体9NA的头部大小为0.067 µm。相比之下,Salmonella长度为2–5 µm,宽度为0.5–1.5 µm。因此,若使用0.45 µm膜,大多数细菌因尺寸大于0.45 µm而无法通过,而大多数噬菌体则能穿过0.45 µm滤膜孔。
- 去除存在于Salmonella细胞内部的噬菌体
- 为促进噬菌体从细菌细胞中释放,将含有细胞的0.45 µm滤膜在不拆卸系统的条件下于37 °C培养箱中孵育2小时。
注意:此孵育步骤旨在促进感染细菌的裂解,并使胞内噬菌体释放至滤膜中。 - 使用真空过滤系统清洗0.45 µm滤膜,用100 mL经0.22 µm滤膜过滤的LB培养基冲洗滤膜。
- 用2 mL 2x LB培养基(20 g/L胰蛋白胨,10 g/L NaCl,10 g/L酵母提取物;见材料表)从滤膜上回收细菌细胞。操作时,使用无菌镊子将0.45 µm滤膜转移至烧瓶中,然后在滤膜上加入2 mL 2x LB培养基,并反复吹打数次以使细胞从滤膜上脱离。
- 取1 mL该悬浮液在10,354 x g条件下离心2分钟。弃去上清液,并用1 mL过滤后的LB培养基洗涤细菌细胞3次。将细胞重悬于1 mL 2x LB培养基中。滴定点3:此为用于滴定的第三个等分试样。
注意:强烈建议使用浓度更高的LB培养基(2x LB),因为如下所述,将添加市售脂多糖(LPS),而LPS溶于水,会稀释培养基。
- 为促进噬菌体从细菌细胞中释放,将含有细胞的0.45 µm滤膜在不拆卸系统的条件下于37 °C培养箱中孵育2小时。
- 通过如下所述的市售脂多糖“欺骗”从细菌细胞中释放的噬菌体,以避免再次感染。
- 将20 µL细菌悬浮液与市售S. enterica脂多糖(LPS;见材料表)共同孵育,最终LPS浓度为3.75 mg/mL,总体积为1 mL经0.22 µm滤膜过滤的LB培养基,在37 °C、200 rpm振荡条件下孵育2小时。
注意:从细胞释放到培养基中的噬菌体可能结合市售S. enterica LPS,而非细菌自身的LPS。 - 孵育2小时后,将1 mL培养物转移至微量离心管中,在10,354 x g条件下离心2分钟。滴定点4:将上清液作为第四个等分试样用于滴定。
- 用1 mL过滤后的LB培养基洗涤沉淀3次。
- 洗涤后,将沉淀重悬于1 mL 2x LB培养基中。取20 µL该混合液加入含0.8 mg/mL市售LPS的1 mL经0.22 µm滤膜过滤的LB培养基中,在37 °C、200 rpm振荡条件下孵育2小时。滴定点5:将剩余的细菌悬浮液用于第五次滴定。
- 孵育2小时后,将1 mL培养物转移至微量离心管中,在10,354 x g条件下离心2分钟以沉淀细胞。滴定点6:将上清液倾入新样品管中,作为第六个等分试样用于滴定。
- 用过滤后的LB培养基洗涤细菌细胞3次。洗涤后,将收集的细胞重悬于1 mL经0.22 µm滤膜过滤的LB培养基中。
- 使用真空过滤系统,将1 mL细菌悬浮液通过无菌0.45 µm滤膜。用100 mL经0.22 µm滤膜过滤的LB培养基冲洗滤膜。
- 用2 mL 2x LB培养基从0.45 µm滤膜上回收细胞。操作时,使用无菌镊子将0.45 µm滤膜转移至烧瓶中,然后在滤膜上加入2 mL 2x LB培养基,并反复吹打数次,尝试使细胞从滤膜上脱离。
- 取1 mL细胞在10,354 x g条件下离心2分钟以形成沉淀。用经0.22 µm滤膜过滤的LB培养基洗涤3次。洗涤后,将收集的细胞重悬于1 mL 2x LB培养基中。滴定点7:此为用于滴定的第七个等分试样。该等分试样将用于评估细菌培养物中噬菌体去除的效率。
- 将20 µL细菌悬浮液与市售S. enterica脂多糖(LPS;见材料表)共同孵育,最终LPS浓度为3.75 mg/mL,总体积为1 mL经0.22 µm滤膜过滤的LB培养基,在37 °C、200 rpm振荡条件下孵育2小时。
3. 无噬菌体制备 沙门氏菌 去除噬菌体后的培养
- 制备无噬菌体的接种物。取100 µL细菌悬液中的细胞加入到含有0.45 mg/mL LPS的900 µL LB培养基中。在37 °C、200 rpm振荡条件下培养24 h。
- 滴定点8:准备第八份等分试样用于滴定(最终可能未感染的培养物)。该点用于确认无噬菌体再感染。
结果
Salmonella enterica 及其他革兰氏阴性菌具有含脂多糖(LPS)的外膜。LPS 的 O-抗原是噬菌体 9NA 感染 Salmonella 菌株时常用的受体16,17。
鉴于噬菌体对脂多糖(LPS)的O抗原或核心多糖区域具有特异性亲和力,我们希望探究Salmonella enterica商用LPS是否可用作诱饵以排除9NA噬菌体。为此,我们将已知浓度的商用LPS与9NA裂解液混合,随后进行滴定。商用LPS与9NA噬菌体在总体积200 µL中混合,并在37 °C下孵育2小时,不振荡。进行滴定时,取100 µL LPS-9NA混合液和60 µL过夜培养物加入5 mL LB软琼脂中,混匀后倾注至LB平板表面。平板在37 °C下孵育24小时。图3显示,随着S. enterica商用LPS浓度的增加,裂解液滴度呈比例下降。这些结果表明,商用LPS可有效作为9NA噬菌体的诱饵。
有趣的是,噬菌体9NA裂解Salmonella细胞并释放子代噬菌体所需的时间受到细菌和噬菌体数量的影响(图4)。为了研究这一因素如何影响噬菌体去除方案,我们测试了不同的细菌与噬菌体比例(1:1、1:10、1:100 和 1:1000)。如图4所示,在加入9NA噬菌体后1.5–2.5小时,培养物在OD600 nm处的光密度值出现下降。OD600 nm值接近零表明细菌培养物正在被裂解18。因此,本方案中将孵育时间设定为2小时,以确保噬菌体在Salmonella细胞内有足够时间裂解细菌并释放出来。在实施本方案前,应针对每种宿主-噬菌体系统单独估算所需时间。
在确定商用LPS可作为诱饵以及9NA感染细菌的裂解时间后,我们执行了用于清除感染性Salmonella培养物中噬菌体的方案(图1和图2)。为了监测该方案每一步骤中噬菌体的存在情况,我们进行了噬斑实验,以测定在不同时间点所获得混合液100 µL中培养物的感染性(图5)。可以看出,重复洗涤和过滤不足以完全清除培养物中的噬菌体(滴定点1-3);然而,一旦引入商用LPS孵育步骤,噬菌体数量即开始减少(滴定点4)。在细菌培养物中彻底去除噬菌体的关键步骤是第二次与商用LPS孵育(滴定点6)。该步骤对于成功清除Salmonella培养物中的9NA噬菌体至关重要。
该方案的一个有趣之处在于了解去除噬菌体后的细菌对噬菌体的抗性水平。如果一种方法仅能将噬菌体与抗噬菌体的细菌分离,则其应用价值有限。因此,关键在于明确表明培养物中残留的细菌仍对噬菌体敏感。为了证明在操作步骤完成后培养物中仍存在对噬菌体敏感的细胞,我们采用伊文思蓝尿素(Evans Blue Uranine, EBU)平板法来检测噬菌体污染19。EBU平板由LB培养基添加以下成分制成:10 mL/L 25%的K2HPO4、5 mL/L 50%葡萄糖、2.5 mL/L 1%荧光素、1.25 mL/L 1%伊文思蓝以及15 g/L琼脂。通过在EBU平板上与9NA噬菌体进行交叉划线,可区分出抗噬菌体和敏感噬菌体的菌株(图6)。清洁程序结束后获得的细菌培养物用于分离单菌落,并检测其是否含有噬菌体污染(图6B)。我们可以观察到,既有抗性细胞,也有敏感细胞的存在。本方案不会促进抗噬菌体细胞的筛选,仅能清除噬菌体。
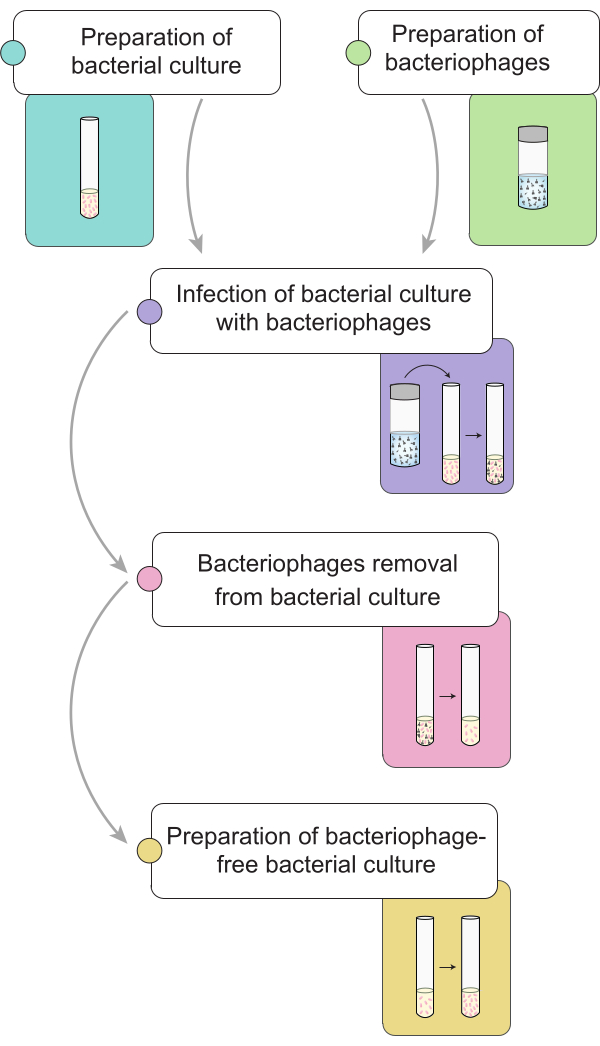
图 1:消除沙门氏菌培养物中噬菌体的操作流程简图。 该流程分为不同阶段:细菌培养物与裂解液的制备、用噬菌体感染细菌培养物、从感染的细菌培养物中去除噬菌体,以及制备无噬菌体的细菌接种物。请点击此处查看该图的放大版本。

图2:从感染的 Salmonella enterica 培养物中去除噬菌体的操作流程。 该过程包括三个阶段:1)去除悬浮液中的噬菌体,2)去除细菌细胞内部包含的噬菌体,以及3)防止再次感染。请点击此处查看该图的放大版本。
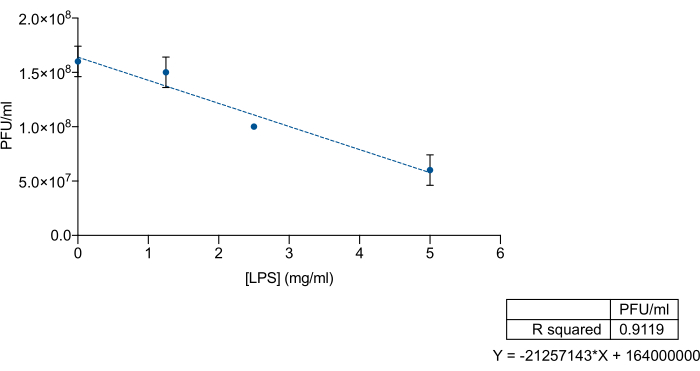
图3LPS诱饵实验以测量效率 鼠伤寒沙门氏菌 商业化的LPS用于结合噬菌体。 滴定9NA裂解液(PFU/mL)在不同浓度下的滴度 Salmonella enterica 商业LPS。实验重复三次。数据以均值和标准差表示。 请点击此处以查看此图的放大版本。
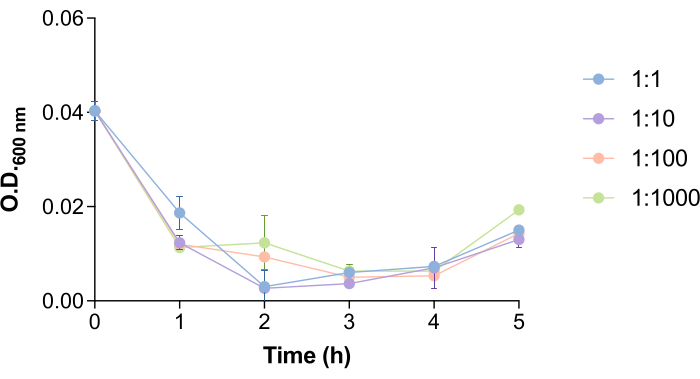
图4:噬菌体9NA裂解时间在 沙门氏菌 培养物 生长曲线的 肠炎沙门氏菌 在细菌与噬菌体9NA的比例分别为1:1、1:10、1:100和1:1000的条件下进行培养。实验重复三次。数据以均值和标准差表示。 请点击此处以查看此图的放大版本。
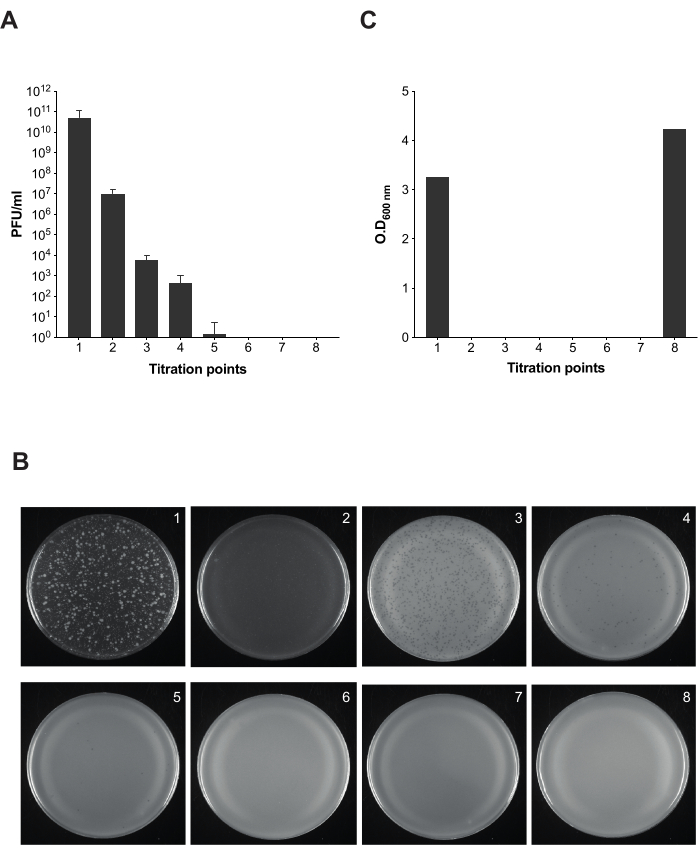
图5用于噬菌体去除过程中感染性检测的噬斑测定法 沙门氏菌 培养物 (A) 在实验方案的不同时间点对八份等分试样进行了滴定(滴定时间点1-7在图中已标出 图2)。本实验中, 沙门氏菌肠亚种 血清型鼠伤寒沙门菌ATCC 14028菌株 opvAB::lacZ (SV8011) 和噬菌体 9NA 被使用。实验重复三次,结果显示为平均值和标准偏差。B软琼脂平板 沙门氏菌肠炎亚种 采用八点滴定法的等分试样,通过覆盖技术获得。从左至右,各孔分别对应滴定点1至8。C不同时间点的噬菌体去除过程中细菌培养物在 600 nm 处的光密度。 请点击此处查看此图的放大版本。
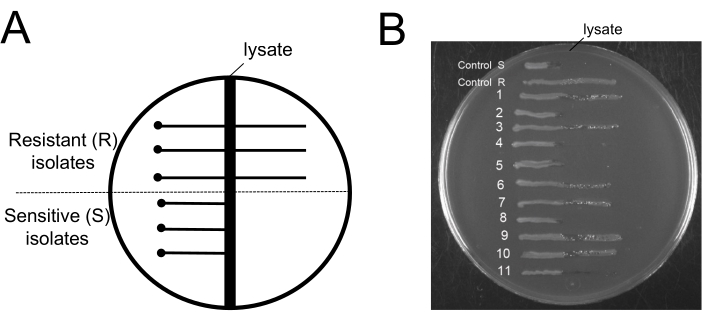
图 6:噬菌体清除程序后对噬菌体抗性细菌的检测。 (A) 用于交叉划线琼脂试验的典型EBU琼脂平板示意图:中心的垂直深色区域代表9NA裂解液区域。圆点表示待测细胞接种的位置,该位置距离裂解液区域保持安全距离;水平实线表示能够在裂解液区域内生长的噬菌体抗性细胞,或无法在裂解液区域外生长的噬菌体敏感性细胞。 (B) 在清除程序结束时,通过EBU平板试验检测获得的11个菌落。对照R和S分别为噬菌体抗性和噬菌体敏感性分离菌的示例。 请点击此处查看该图的放大版本。
讨论
噬菌体采用多种策略识别并感染细菌宿主。细菌表面不同的分子结构可作为噬菌体受体:蛋白质、多糖、脂多糖(LPS)以及碳水化合物基团20。在革兰氏阴性细菌中,脂多糖是噬菌体常见的受体。此外,其他受体还包括外膜蛋白、菌毛和鞭毛21。
基于对LPS8的识别,噬菌体与细菌之间的特异性相互作用已被本研究用于开发一种高效清除感染性细菌培养物中噬菌体的实验方案(图1 和 图2)。该方案不会促进噬菌体抗性细胞的筛选,仅特异性清除噬菌体(图6)。在完成该噬菌体清除流程后,噬菌体敏感型和噬菌体抗性细菌细胞均保留在细菌培养物中。
当噬菌体污染发生时,传统标准做法是尝试清除所有受污染的材料,随后进行清洁和灭菌22。去污染程序包括将细菌培养物暴露于高温等应激条件下,以部分或完全消除细菌细胞。如代表性结果所述,本方案的关键步骤是将受噬菌体感染的细菌培养物与商用脂多糖(LPS)共同孵育,LPS对细菌培养物无害。该方法有助于维持细菌培养物的活力,并在发酵罐和生物反应器的工业应用中具有显著优势。
本方案中的孵育时间为2 h,以确保噬菌体有足够时间裂解细菌细胞。若使用不同的细菌菌株和噬菌体,用户应考虑并确定该参数。在此情况下,应在实验前进行类似于图4所述的测定。
有趣的是,该清洗方案的有效性也可通过监测特定样本中噬菌体含量的检测方法进行分析。在此背景下,表观遗传生物传感器是一种用于检测噬菌体的新型工具23。一种已知能够检测利用脂多糖(LPS)作为受体的大肠杆菌噬菌体的噬菌体生物传感器是opvAB::gfp系统13,18,23,24。该噬菌体生物传感器可在存在以O-抗原作为受体的噬菌体时,检测到OpvABON亚群的增加。因此,我们可利用opvAB::gfp融合系统,在本方案的不同步骤和/或不同培养基与条件下监测结合LPS的噬菌体。这些方法有助于确定在何时何地需要实施有效的处理方案。
尽管脂多糖(LPS)识别较为常见,噬菌体也可利用细菌细胞表面的多种其他受体进行附着和感染。本研究中,我们采用革兰氏阴性菌Salmonella作为肠杆菌科的代表性菌种,并使用以LPS为受体并触发基因组注入的噬菌体9NA。其他肠杆菌科噬菌体(例如Escherichia coli T5)与LPS的结合较弱,需要外膜蛋白介导基因组的注入。本方案适用于识别LPS O-抗原并依赖其完成成功感染的噬菌体,如9NA、Det7和P2213,25,26,27。因此,在应用本方案进行噬菌体清除细菌培养物的操作时,需首先确定所用噬菌体的感染机制是否依赖于对宿主LPS的识别。
总之,尽管该实验方案可能存在某些局限性,但我们的代表性结果明确表明,此方法是一种有效的工具,可用于清除利用脂多糖(LPS)作为受体及基因组注入触发因子的噬菌体污染的沙门氏菌(Salmonella)培养物。
披露
作者无任何利益冲突需要披露。
致谢
感谢 Carmen R. Beuzón 博士和 Rocío Carvajal-Holguera 提供的有益讨论和建议。本工作由 MICIU/AEI/10.13039/5011100011033 资助的 PID2020-116995RB-I00 项目以及塞维利亚大学第六期研究与转化计划(VI Plan Propio de Investigación y Transferencia)提供支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 20 mL 注射器 | BD Discardit II | 300296 | 无特殊要求 |
| 50 mL 锥形管 | Avantor | 525-0610 | 无特殊要求 |
| 90 × 14 mm 培养皿 | Deltalab | 200209 | 无特殊要求 |
| 琼脂 | Sigma-Aldrich | A1296 | 无特殊要求 |
| 噬菌体裂解液 | 最低浓度:109 PFU/mL | ||
| 离心机 | Eppendorf | 无特殊要求 | |
| 氯仿 | Panreac | 131252 | 无特殊要求 |
| 柠檬酸 · H2O | Merck | 1.00247 | |
| 菌落计数器 | 无特殊要求 | ||
| 伊文思蓝 | Sigma-Aldrich | E-2129 | |
| 烧瓶 | 无特殊要求 | ||
| 荧光素钠盐 | Sigma-Aldrich | F-6377 | |
| 镊子 | 无特殊要求 | ||
| 玻璃管 | 无特殊要求 | ||
| 用于裂解液的玻璃管 | 无特殊要求 | ||
| 葡萄糖 | Sigma-Aldrich | G7021 | |
| K2HPO4 | Merck | 1.05104.1000 | |
| K2HPO4 无水 | Merck | 1.05104 | |
| 来自 Salmonella enterica 血清型 Typhimurium 的脂多糖 | Sigma-Aldrich | L6511-25 mg | 溶于无菌水 |
| 0.45 µm 膜 | MF-Millipore | HAWP02500 | 无特殊要求 |
| MgSO4 · 7 H2O | Merck | 1.05886 | |
| NaCl | Sigma-Aldrich | S9888 | 无特殊要求 |
| NaNH4HPO4 · 4 H2O | Sigma-Aldrich | S9506 | |
| 蛋白胨 | iNtRON | Ba2001 | 无特殊要求 |
| 0.22 µm 注射器滤器 | Millex | SLGSR33SB | 无特殊要求 |
| 牙签 | 无特殊要求 | ||
| 胰蛋白胨 | Panreac | 403682.1210 | 无特殊要求 |
| 真空泵 | Thermo Scientific | 无特殊要求 | |
| 酵母提取物 | iNtRON | 48045 | 无特殊要求 |
参考文献
- Kasman, L. M., Porter, L. D. Bacteriophages. , StatPearls Publishing. (2024).
- Lawrence, D., Baldridge, M. T., Handley, S. A. Phages and human health: More than idle hitchhikers. Viruses. 11 (7), 587(2019).
- Beller, L., Matthijnssens, J. What is (not) known about the dynamics of the human gut virome in health and disease. Curr Opin Virol. 37, 52-57 (2019).
- Roux, S., Hallam, S. J., Woyke, T., Sullivan, M. B. Viral dark matter and virus-host interactions resolved from publicly available microbial genomes. eLife. 4, 08490(2015).
- Wommack, K. E., Colwell, R. R. Virioplankton: Viruses in aquatic ecosystems. Microbiol Mol Biol Rev. 64 (1), 69-114 (2000).
- Louten, J. Virus structure and classification. Essentl Human Virol. , 19-29 (2016).
- Egido, J. E., Costa, A. R., Aparicio-Maldonado, C., Haas, P. J., Brouns, S. J. J. Mechanisms and clinical importance of bacteriophage resistance. FEMS Microbiol Rev. 46 (1), 048(2022).
- Rakhuba, D. V., Kolomiets, E. I., Dey, E. S., Novik, G. I. Bacteriophage receptors, mechanisms of phage adsorption and penetration into host cell. Polish J Microbiol. 59 (3), 145-155 (2010).
- Lindberg, A. A. Bacteriophage receptors. Ann Rev Microbiol. 27 (1), 205-241 (1973).
- Koskella, B., Meaden, S. Understanding bacteriophage specificity in natural microbial communities. Viruses. 5 (3), 806-823 (2013).
- Marcó, M. B., Moineau, S., Quiberoni, A. Bacteriophages and dairy fermentations. Bacteriophage. 2 (3), 149-158 (2012).
- Fernández-Fernández, R., et al. Evolution of a bistable genetic system in fluctuating and non-fluctuating environments. bioRxiv. , 2024.01.22.576666 (2024).
- Cota, I., Blanc-Potard, A. B., Casadesús, J. STM2209-STM2208 (opvAB): a phase variation locus of Salmonella enterica involved in control of O-antigen chain length. PloS one. 7 (5), e36863(2012).
- Kropinski, A. M., Mazzocco, A., Waddell, T. E., Lingohr, E., Johnson, R. P. Enumeration of bacteriophages by double agar overlay plaque assay. Methods Mol Biol. 501, 69-76 (2009).
- Ackermann, H. W. Tailed bacteriophages: The order Caudovirales. Adv Virus Res. 51, 135-201 (1998).
- Wilkinson, R. G., Gemski, P., Stocker, B. A. D. Non-smooth mutants of Salmonella typhimurium: Differentiation by phage sensitivity and genetic mapping. J Gen Microbiol. 70 (3), 527-554 (1972).
- Casjens, S. R., Leavitt, J. C., Hatfull, G. F., Hendrix, R. W. Genome sequence of Salmonella Phage 9NA. Genome Announc. 2 (4), e00531(2014).
- Cota, I., et al. Epigenetic control of Salmonella enterica O-antigen chain length: A tradeoff between virulence and bacteriophage resistance. PLoS Genet. 11 (11), e1005667(2015).
- Chan, K., Botstein, D., Watanabe, T., Ogata, Y. Specialized transduction of tetracycline resistance by phage P22 in Salmonella typhimurium. Virology. 50, 883-898 (1972).
- Bertozzi Silva, J., Storms, Z., Sauvageau, D. Host receptors for bacteriophage adsorption. FEMS Microbiol Lett. 363 (4), 002(2016).
- Sørensen, M. C. H., et al. Bacteriophage F336 recognizes the capsular phosphoramidate modification of Campylobacter jejuni NCTC11168. J Bacteriol. 193 (23), 6742-6749 (2011).
- Ogata, S., Hongo, M. Bacteriophages of the Genus Clostridium. Adv Appl Microbiol. 25, 241-273 (1979).
- Olivenza, D. R., Casadesús, J., Ansaldi, M. Epigenetic biosensors for bacteriophage detection and phage receptor discrimination. Environ Microbiol. 22 (8), 3126-3142 (2020).
- Olivenza, D. R., et al. A portable epigenetic switch for bistable gene expression in bacteria. Sci Rep. 9 (1), 862(2019).
- Walter, M., et al. Structure of the receptor-binding protein of bacteriophage Det7: a Podoviral tail spike in a Myovirus. J Virol. 82 (5), 2265-2273 (2008).
- Davies, M. R., Broadbent, S. E., Harris, S. R., Thomson, N. R., vander Woude, M. W. Horizontally acquired Glycosyltransferase operons drive Salmonellae lipopolysaccharide diversity. PLoS Genet. 9 (6), e1003568(2013).
- Wahl, A., Battesti, A., Ansaldi, M. Prophages in Salmonella enterica: a driving force in reshaping the genome and physiology of their bacterial host. Mol Microbiol. 111 (2), 303-316 (2019).
重印与许可
