为了研究语言的演化,将人类与非人灵长类动物的大脑机制进行比较具有重要意义。我们开发了一种非侵入性测量清醒动物脑电图(EEG)的方法。该方法使我们能够在不伤害动物的前提下,长期直接比较人类与动物之间的脑电图数据。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
声音交流在灵长类动物的社会互动中起着至关重要的作用,尤其关系到生存与社会结构。人类已发展出一种独特且高度复杂的以语言形式呈现的声音交流策略。为了研究人类语言的演化过程,有必要探究人类声音处理背后的神经机制,同时通过与非人灵长类动物的脑机制进行比较,理解脑机制的演化路径。本文中,我们建立了一种非侵入性测量清醒状态非人灵长类动物脑电图(EEG)的方法。该记录方法可在不伤害动物的前提下实现长期研究,更重要的是,使我们能够直接比较非人灵长类动物与人类的脑电图数据,从而为人类语言的演化提供新的见解。在本研究中,我们采用头皮脑电图记录方法,探究狨猴对物种特异性发声刺激的脑活动反应。本研究利用头皮脑电图技术捕捉狨猴在声音感知过程中广泛的神经表征,为现有知识体系填补了重要空白。
引言
灵长类动物利用物种特异性的发声来传递重要的生物学信息,例如发声者的情绪状态或维持社会联系的意图、捕食者的出现或其他危险情况。对具有丰富发声行为的非人灵长类动物在感知发声时所涉及的神经机制进行研究,可能为我们提供关键线索,以更好地理解人类语言的进化起源。
普通狨猴是原产于南美洲的小型灵长类动物。近年来,由于其繁殖能力强、体型小易于操作,以及转基因技术的发展,狨猴与猕猴一样被越来越多地用作模式动物1,2,3。除了作为疾病模型的应用价值外,群体内丰富的声音交流是该物种另一显著特征4,5,6,7。狨猴在森林中经常通过发声信号与不可见的同种个体进行交流。通过研究狨猴发声感知和产生过程中涉及的脑活动,我们可以了解它们在大脑中如何处理自身或同种个体叫声的听觉信息,并确定参与其中的神经回路。先前的研究已证实,初级听觉皮层8,9,10,11,12和前额叶皮层13,14参与了狨猴的发声产生过程。此外,初级听觉皮层中的听觉-发声相互作用可调节这些神经元的兴奋和抑制反应8,10。这些研究通过侵入性记录方法提供了单个神经元水平上的详细神经活动数据。已有大量研究进一步探讨了与狨猴发声产生相关的神经活动;然而,关于发声感知的神经机制仍知之甚少15,16。
多项非侵入性脑成像研究已阐明了狨猴发声处理的神经机制17,18,19;这些方法具有高空间分辨率的优势,然而,扫描过程中保持动物处于清醒状态需要先进的技术。然而,最近Jafari等人利用功能磁共振成像(fMRI)在清醒的狨猴中识别出参与发声感知的额颞区19。几乎所有旨在阐明人类发声感知与产生相关脑功能的实验均采用非侵入性方法进行,例如头皮脑电图(EEG)、脑磁图(MEG)20,21和fMRI22,23,24。大量人类研究已使用EEG探讨与发声感知相关的脑活动。其中大多数研究集中于情绪信息25,26,27以及情绪词汇的显著性28,结果揭示了发声感知过程中事件相关电位的变化29。人类颅内电皮层记录(ECoG)及使用植入式电极进行的单神经元记录仅在少数接受神经外科治疗的患者中开展过有限的实验30,31。
从进化角度比较人类与猴子,对于理解人类在发声感知和产生方面所发展出的独特神经机制具有重要意义。为了直接比较狨猴等发声丰富的非人灵长类动物与人类在言语感知和发声过程中涉及的神经机制,采用相同的方法在两个物种之间进行数据比较至关重要。功能磁共振成像(fMRI)能够实现全脑成像,且具有高空间分辨率,其优势在于可记录垂直于颅骨或脑深部区域的活动,而这些区域使用脑电图(EEG)或脑磁图(MEG)难以记录。然而,MRI设备的安装和维护成本高昂,且由于设备本身的特性,对可呈现的刺激存在诸多限制。相比之下,脑电图(EEG)、事件相关电位(ERPs)和脑磁图(MEG)具有高时间分辨率,适用于分析时间序列的语音处理过程。特别是EEG,具有便携性强、可在多种实验环境中使用、相对成本较低以及仅需单人操作等优势。
由于已在人类中获得了大量脑电图(EEG)数据,因此需要采用非侵入性范式来对非人灵长类动物进行EEG测量。我们的研究团队为猕猴和狨猴开发了一种利用管道的独特非侵入性EEG记录方法32。本文报道了关于非人灵长类动物听觉处理的若干新发现33,34,35,36,37。为了表征狨猴对物种特异性发声的脑活动反应,我们构建了一个实验系统,通过放置在头皮上的电极非侵入性地记录脑活动。本研究描述了狨猴的EEG测量方法。
访问受限。请登录或开始试用以查看此内容。
方案
所有实验均经EHUB动物实验委员会批准(编号:2022-003、2023-104),并依照EHUB发布的《实验灵长类动物护理与使用指南》进行。实验共使用九只普通狨猴(Callithrix jacchus,雄性六只,雌性三只,年龄2-12岁,体重330-490 g)。九只狨猴中,四只以配对或家庭方式饲养,五只单独饲养。种群中的狨猴通常在两岁前以家庭为单位共同饲养,之后根据配对是否成功,转移至配对饲养或单独饲养环境。
1. 动物
- 将狨猴饲养在配备巢箱、木制栖木和其他丰富化装置的单个笼子中。
- 保持房间处于12小时光照-12小时黑暗的循环条件下,温度和湿度分别维持在28 ± 2 °C 和 40 ± 20%。
- 每天两次,每次喂食14克新世界猴颗粒饲料,并补充阿拉伯胶和黄粉虫等食物。提供饮水 随意.
- 在实验室内隔音箱中进行所有实验。
2. 仪器(图1B 和材料表)
- 使用 4 mm 的银电极。电极表面的氯化银(AgCl)涂层可防止极化,确保记录稳定。
- 使用放大器记录脑电(EEG)信号。对信号进行 0.016-250 Hz 的带通滤波,并以 1,000 Hz 的频率采样数据。
- 将 64 通道电极输入盒连接至放大器,并将其置于受试者前方。
- 将扬声器放置在狨猴头部前方 30 cm 处,控制声音强度为 65-75 dB(以耳部位置测量值为准),并通过该扬声器传递听觉刺激。
- 将摄像头置于受试者前方,以在脑电记录期间监测其状态。
- 灵长类动物固定椅由亚克力板和合成树脂柱构成。实验时,由研究人员扶住动物使其站立于脚板上;随后插入颈圈并固定至颈板,插入腰托并固定至腰板,确保每只狨猴全身均被适度固定。
3. 麻醉
- 通过肌肉注射阿法沙龙(6-8 mg/kg)和阿托品(0.05 mg/kg)对动物进行麻醉。该方案可使麻醉状态维持约20分钟。如果操作时间较长,可追加阿法沙龙剂量以延长麻醉时间。同时在操作前给予止吐药(马罗匹坦 1 mg/kg,皮下注射),以应对阿法沙龙可能引起的恶心副作用。
注意:在操作过程中,狨猴必须处于注射或吸入麻醉状态,剃毛结束后应立即让其恢复清醒。 - 使用脉搏血氧仪监测生命体征,必要时给予氧气-空气混合气体(O2 0.5 L/min,空气 0.5 L/min)。
- 保持室温在27 °C以上,并用保温布包裹狨猴身体,防止低体温。
4. 脱毛
- 使用电动剃须刀剃除整个头部的毛发(包括耳后区域)。
- 涂抹适用于敏感皮肤的脱毛膏,5分钟后用湿纱布擦去。
5. 掩模制备
- 预先加工一个热塑性面罩,使其适配猴椅的尺寸。具体而言,在面罩背部突出于椅背垂直长度的部分钻四个螺钉孔,以便将其固定在椅背的颈板上。
注意:热塑性面罩是安全的,可用于放射治疗期间固定患者的头部。我们使用了一种专为儿童设计的小型面罩,并将其裁剪至适合狨猴头部的尺寸。该面罩在置于温水中时会软化 75 °C 当从水中取出后,随着温度降低,它会变硬。 - 实验时,将动物置于灵长类实验椅中。使用颈部和腰部固定板支撑麻醉后的动物,并将动物及这些固定板牢固地固定在实验椅上。
- 将面罩在热水中加热,然后塑形以适配狨猴的头部。从热水中取出面罩后,等待其温度下降(约降至50多摄氏度) °C 范围)以防止烫伤,然后将其置于受试者头部以塑形面罩。
- 冷却并硬化后,将面具从动物身上取下,并剪去面具顶部的头部和耳部部分,以暴露电极放置区域。
注意:此掩膜制作完成后,可应用于其他个体。
6. 椅位与面罩适应(每天30分钟,持续3天)
- 在清醒条件下,通过将动物放置于椅子上并给予奖励约 30 分钟,使其适应椅子环境。此操作连续重复 3 天。
- 使用面罩使动物适应头部固定,持续 2 天。
注:此适应过程根据个体状况进行个性化调整。适应完成后,动物在捕捉和安装头罩时可能会短暂抗拒,但一旦坐入椅子并完成头部固定,便会趋于平静。 - 在椅子适应过程中,评估以下行为学指标:i)发出焦虑或警觉性叫声,ii)拒绝接受提供的奖励,iii)出现剧烈动作。若观察到上述任一行为,应终止当日实验,以便狨猴逐步适应实验环境。
7. 脑电图记录(2 小时/天)
- 受试者准备
- 将转运笼连接至主笼箱的小窗,通常单独将狨猴从主笼箱转移至转运笼中。用布覆盖转运笼,将其转移至实验室内。
- 头部固定
- 使用防护手套捕捉狨猴,并将其放置于专用椅子中。
- 将准备好的面罩置于狨猴头部。将固定在椅子上的螺杆穿过面罩上的孔,并使用拇指螺钉固定。
- 在鼻根下方用绑带轻轻固定头部和面罩。
注意:只要电极未因移动而脱落,受试者的头部无需完全固定。因此,我们在所有受试者中使用了相同的面罩。
- 电极位置的确定
- 以鼻根点、枕外隆凸和耳垂作为解剖学标志,根据国际10-20系统确定电极的位置32,33,34,35,36,37用卷尺测量正中线上鼻根点(nasion)与枕外隆凸点(inion)之间的距离。将Cz电极位置定义为该距离的中点。以inion-nasion距离的20%作为电极间距,确定其他电极(Fz、Pz、Oz、F3或F4)的位置。使用油性皮下记号笔在头皮上标记电极位置。
- 皮肤准备
- 用蘸有异丙醇的细棉签擦拭标记区域,以清除头皮上的污垢和皮脂。
- 电极设置
注意:在所有电极位置执行步骤 7.2.1–7.2.3,将电极置于 Fz、Cz、C3、C4、Pz、A1、A2 和 F3(或 F4)。- 使用管子切割器将一段内径为4 mm、外径为7 mm的硅胶管切割成约20 mm长。
- 将粘合剂涂抹于切割后管子的边缘,并将其粘附至头皮。
- 使用注射器和非尖头注射器针头,将脑电图凝胶注入管内。
- 将参考电极连接至Pz,接地电极连接至F3或F4(图1C).
- 将电极插入管中,并将电极电缆连接到输入盒。
- 启动脑电图记录应用程序以测量电极阻抗,并调整参数以确保所有电极阻抗均低于 5 kΩ。
- 将电极电缆捆扎在一起以减少噪声。
- 在头部固定过程中及任务阶段之间,使用注射器手动给予1-3 mL液体奖励(胶状物或营养液)作为奖励。
- 指定 EEG 记录软件中要保存的文件,然后按下 开始录制 按钮。在开始 EEG 记录后立即运行刺激呈现脚本。按下 停止 刺激呈现脚本执行完毕后,按 EEG 记录按钮以结束所有记录。记录完成后,取下电极和头戴式遮罩。
- 捕捉动物并将其放回运输笼中。将导管保留在头皮上;所有导管均在约1天后自然脱落。
注意:在早期阶段,我们使用丙酮溶解黏合胶以在记录结束后移除套管;然而,曾出现皮肤损伤的情况;因此,后续我们不再移除套管,而是直接将动物放回其饲养笼中。在迄今为止开展的数十次实验中,狨猴对已移除的套管均未表现出任何兴趣,也从未发生误食情况。 - 刺激
- 在未用于后续脑电图记录的圈养或实验室内狨猴中,录制其自然的简单叫声和复合叫声。提取三种物种特异性的简单叫声和复合叫声(Phee, Tsik-Ek, 和 Tsik-String5 从录制的文件中提取呼叫(calls)。
- 除了呼叫刺激外,使用编程软件中的函数生成白噪声,并将其用作刺激。
- 使用三个狨猴叫声的听觉文件(16 位,48 kHz)进行本实验。通过自定义脚本控制实验任务。
注意:每个区块包含每种刺激50次呼叫,共200次呼叫。每次录音区块持续约10分钟。每位参与者需完成两个区块。呼叫间间隔为3 s。四种音频刺激文件(参见 补充文件 1),该 Phee 呼叫刺激持续约2秒,而其余三个刺激持续约1秒。这是因为单个 Phee 持续呼叫仍是一个长时间的呼叫(图1D). - 在每个声音刺激文件中,右声道包含狨猴叫声或噪声数据,左声道包含刺激起始的触发信号。通过同步设备将此触发信号发送至脑电图记录系统,并将其记录为事件时间。
8. 数据分析
注意:使用编程软件和工具箱中编写的原始代码对脑电图(EEG)数据进行后处理,如下所述(补充文件 2)37。
- 预处理
- 重参考至双耳乳突参考。
- 使用2 Hz高通滤波。
- 以刺激 onset 前100 ms至刺激 onset 后1000 ms进行分段。
- 以刺激前100 ms期间的均值进行基线校正,并依据±150 µV的标准排除伪迹。
- 绘制事件相关电位(ERP)
- 对每位受试者的全部试验数据进行平均。
- 通过对所有受试者的数据求平均,获得群体平均波形。
- 为比较不同类型叫声与噪声刺激之间的平均ERP差异,以刺激类型为组间因子,在Cz电极处进行单因素方差分析(ANOVA)。
- 采用Tukey法进行事后多重比较分析。
- 绘制事件相关谱扰动(ERSP)
- 计算ERSP,以可视化在宽频率范围内谱功率随时间变化的平均事件相关改变,使用公式(1)。其中Fk (f,t)表示第k次试验在频率f和时间t处的谱估计值:
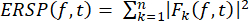 (1)
- 采用正弦小波变换对神经活动进行时频分解,最低频率(10 Hz)处使用3个周期,最高频率(120 Hz)处线性增加至32个周期。
- 定义初始与瞬态响应为刺激 onset 后150 ms内、2–30 Hz频段的活动,持续响应则定义为刺激 onset 后151–950 ms、持续800 ms、40–100 Hz频段的活动。
- 为检验Fz与Cz电极处不同受试年龄组和叫声类型之间初始响应与持续响应的差异,采用双因素方差分析(ANOVA),以叫声类型为组内因子,年龄为组间因子。
- 计算ERSP,以可视化在宽频率范围内谱功率随时间变化的平均事件相关改变,使用公式(1)。其中Fk (f,t)表示第k次试验在频率f和时间t处的谱估计值:
访问受限。请登录或开始试用以查看此内容。
结果
首先,我们绘制了狨猴对每种听觉刺激的平均事件相关电位(ERPs)(图2)。在噪声条件下,听觉诱发电位(AEP)尤为显著,反映了刺激的清晰起始(见图1D)。为了比较不同类型叫声与噪声刺激之间平均ERPs的差异,我们在Cz通道的反应中以刺激类型为被试间因素进行了单因素方差分析(ANOVA)。结果发现,刺激类型对刺激起始后13–18 ms、28–36 ms以及45–88 ms时段的Cz活动具有显著的主效应(p < 0.05)。采用Tukey法进行事后多重比较分析显示,噪声与其他叫声之间存在差异(p < 0.05),但不同类型狨猴叫声之间无显著差异。该结果表明,仅从事件相关电位中无法观察到不同叫声类型引起的脑活动差异。
接下来,我们对每位受试者进行了时频分析。 图3 展示了时频图的一个示例 Tsik-string 受试者R(老年)获得的呼叫,
访问受限。请登录或开始试用以查看此内容。
讨论
关于麻醉的注意事项
曾尝试使用氯胺酮和赛拉嗪,尽管这些药物具有镇痛作用,因此适用于长时间且疼痛的操作,但狨猴在未吸入氧气的情况下往往会出现血氧水平下降44。简而言之,阿法沙龙可能最适合用于剃毛或制备面罩等无痛操作。此外,对于仅需10-15分钟的剃毛操作,吸入麻醉最为合适。由于异氟烷作用时间短且浓度较低(约1%),在插管过程中未使用该药物。
脑电图测量的优势
头皮脑电图(EEG)是一种通过皮肤、颅骨和皮下组织记录大脑活动的方法,其空间分辨率低于针对单个神经元或具有更高空间分辨率的颅内电极的记录方法。尽管存在这些缺点,在非人灵长类动物中进行头皮脑电图测量仍具有多项优势。首先,该方法为非侵入性,不会对动物造成损伤。例如,对于通过极为复杂的基因工程手段构建的珍贵疾病动物模型,研究者可能希望测量其脑活动。在这种情况下,可安全使用该技术进行脑活动测量,而无需外科手术干预。事实上,该方法使我们能够在长时间内对同一受试个体进行无损伤的神经数据采集。此外,与侵入...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
本研究得到了京都大学 Hakubi 项目、挑战性研究(开拓)基金(编号:22K18644)、科学研究费补助金(C)(编号:22K12745)、科学研究费补助金(B)(编号:21H02851)以及科学研究费补助金(A)(编号:19H01039)的支持。我们感谢 Editage(www.editage.jp)在英文语言润色方面的帮助。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 阿法沙龙 | 明治动物健康 | Alfaxan | |
| 放大器 | Brain Products | BrainAmp | |
| 阿托品 | Fuso Pharmaceutical Industries | 硫酸阿托品注射液 | |
| 音频编辑器 | Adobe | Adobe Audition | |
| 数据处理软件 | MathWorks | MATLAB | 版本 R2023a |
| 数据处理工具箱 | 加利福尼亚大学圣迭戈分校 | EEGLAB | |
| 数据处理工具箱 | 加利福尼亚大学戴维斯分校 | ERPLAB | |
| 电动剃须刀 | Panasonic | ER803PPA | |
| 电极 | 独特的医疗 | UL-3010 | AgCl 涂层(定制) |
| 电极凝胶 | Neurospec AG | V16 SuperVisc | |
| 电极输入盒 | Brain Products | EIB64-DUO | 64ch |
| 胶水 | 3M | Scotch 7005S | |
| 脱毛膏 | Kracie | 适用于敏感肌肤的脱毛膏 | |
| 异氟烷 | Bussan Animal Health | 异氟烷 | |
| 液态口香糖 | San-ei Yakuhin Boeki | 阿拉伯语字幕 SS | 阿拉伯胶 + 水 |
| 液体营养 | 雀巢é 健康科学公司 | Isocal 1.0 Junior | 聚合物分子式 |
| 马罗匹坦 | 硕腾 | Cerenia注射液 | |
| 监控摄像头 | 英特尔 | RealSense LiDAR相机L515 | |
| 猴粮颗粒 | 东方酵母 | SPS | |
| 灵长类实验椅 | Natsume Seisakusho | 订单已生成 | |
| 脉搏血氧仪 | Covident | Nellcor | PM10N |
| 皮肤准备面膏 | 曼嫩多夫研究所ü物理学与医学 | NeuPrep | |
| 硅胶管 | AsONE | Φ4 × 7 毫米 | |
| 发言人 | Fostex | PM0.3 | |
| 同步装置 | 脑电图视野 | StimTrak | |
| 热塑性面罩 | CIVCO | MTAPU 型一次性热塑性膜片口罩 2.4 mm |
参考文献
- Miller, C. T., et al. Marmosets: A neuroscientific model of human social behavior. Neuron. 90 (2), 219-233 (2016).
- Okano, H., Hikishima, K., Iriki, A., Sasaki, E. The common marmoset as a novel animal model system for biomedical and neuroscience research applications. Semin Fetal Neonatal Med. 17 (6), 336-340 (2012).
- t'Hart, B. A., Abbott, D. H., Nakamura, K., Fuchs, E. The marmoset monkey: a multi-purpose preclinical and translational model of human biology and disease. Drug Discov Today. 17 (21-22), 1160-1165 (2012).
- Bezerra, B. M., Souto, A. Structure and usage of the vocal repertoire of Callithrix jacchus. Int J Primatol. 29 (3), 671-701 (2008).
- Agamaite, J. A., Chang, C. J., Osmanski, M. S., Wang, X. A quantitative acoustic analysis of the vocal repertoire of the common marmoset (Callithrix jacchus). J Acoust Soc Am. 138 (5), 2906-2928 (2015).
- Pistorio, A. L., Vintch, B., Wang, X. Acoustic analysis of vocal development in a New World primate, the common marmoset (Callithrix jacchus). J Acoust Soc Am. 120 (3), 1655-1670 (2006).
- Grijseels, D. M., Prendergast, B. J., Gorman, J. C., Miller, C. T. The neurobiology of vocal communication in marmosets. Ann N. Y. Acad Sci. 1528 (1), 13-28 (2023).
- Eliades, S. J., Wang, X. Neural substrates of vocalization feedback monitoring in primate auditory cortex. Nature. 453 (7198), 1102-1106 (2008).
- Eliades, S. J., Wang, X. Comparison of auditory-vocal interactions across multiple types of vocalizations in marmoset auditory cortex. J Neurophysiol. 109 (6), 1638-1657 (2013).
- Eliades, S. J., Wang, X. Contributions of sensory tuning to auditory-vocal interactions in marmoset auditory cortex. Hear Res. 348, 98-111 (2017).
- Eliades, S. J., Wang, X. Neural correlates of the lombard effect in primate auditory cortex. J Neurosci. 32 (31), 10737-10748 (2012).
- Tsunada, J., Wang, X., Eliades, S. J. Multiple processes of vocal sensory-motor interaction in primate auditory cortex. Nat Commun. 15 (1), 3093(2024).
- Miller, C. T., Thomas, A. W., Nummela, S. U., de la Mothe, L. A. Responses of primate frontal cortex neurons during natural vocal communication. J Neurophysiol. 114 (2), 1158-1171 (2015).
- Roy, S., Zhao, L., Wang, X. Distinct neural activities in premotor cortex during natural vocal behaviors in a New World Primate, the common marmoset (Callithrix jacchus). J Neurosci. 36 (48), 12168-12179 (2016).
- Wang, X., Merzenich, M. M., Beitel, R., Schreiner, C. E. Representation of a species-specific vocalization in the primary auditory cortex of the common marmoset: temporal and spectral characteristics. J Neurophysiol. 74 (6), 2685-2706 (1995).
- Zeng, H. -h, et al. Distinct neuron populations for simple and compound calls in the primary auditory cortex of awake marmosets. National Science Review. 8 (11), nwab126(2021).
- Sadagopan, S., Temiz-Karayol, N. Z., Voss, H. U. High-field functional magnetic resonance imaging of vocalization processing in marmosets. Sci Rep. 5, 10950(2015).
- Kato, M., et al. Individual identity and affective valence in marmoset calls: in vivo brain imaging with vocal sound playback. Anim Cogn. 21 (3), 331-343 (2018).
- Jafari, A., et al. A vocalization-processing network in marmosets. Cell Rep. 42 (5), 112526(2023).
- Papanicolaou, A. C., et al. Differential brain activation patterns during perception of voice and tone onset time series: a MEG study. Neuroimage. 18 (2), 448-459 (2003).
- Capilla, A., Belin, P., Gross, J. The early spatio-temporal correlates and task independence of cerebral voice processing studied with MEG. Cereb Cortex. 23 (6), 1388-1395 (2012).
- Belin, P., Zatorre, R. J., Lafaille, P., Ahad, P., Pike, B. Voice-selective areas in human auditory cortex. Nature. 403 (6767), 309-312 (2000).
- Perrodin, C., Kayser, C., Abel, T. J., Logothetis, N. K., Petkov, C. I. Who is that? Brain networks and mechanisms for identifying individuals. Trends Cogn Sci. 19 (12), 783-796 (2015).
- Pernet, C. R., et al. The human voice areas: Spatial organization and inter-individual variability in temporal and extra-temporal cortices. Neuroimage. 119, 164-174 (2015).
- Chen, X., Pan, Z., Wang, P., Zhang, L., Yuan, J. EEG oscillations reflect task effects for the change detection in vocal emotion. Cogn Neurodyn. 9 (3), 351-358 (2015).
- Hiyoshi-Taniguchi, K., et al. EEG correlates of voice and face emotional judgments in the human brain. Cogn Comput. 7 (1), 11-19 (2015).
- Lévêque, Y., Schön, D. Listening to the human voice alters sensorimotor brain rhythms. PloS One. 8, e80659(2013).
- Liu, T., et al. Electrophysiological insights into processing nonverbal emotional vocalizations. NeuroReport. 23, 108-112 (2012).
- Bruneau, N., et al. Early neurophysiological correlates of vocal versus non-vocal sound processing in adults. Brain Res. 1528, 20-27 (2013).
- Flinker, A., et al. Single-Trial speech suppression of auditory cortex activity in humans. J Neurosci. 30, 16643-16650 (2010).
- Greenlee, J. D. W., et al. Human auditory cortical activation during self-vocalization. PloS One. 6 (3), e14744(2011).
- Itoh, K., Konoike, N., Iwaoki, H., Igarashi, H., Nakamura, K. A novel "dip-in electrode" method for electrode application to record noninvasive scalp electroencephalograms and evoked potentials in an awake common marmoset. Neuroimage: Reports. 2 (3), 100116(2022).
- Itoh, K., et al. Cerebral cortical processing time is elongated in human brain evolution. Sci Rep. 12 (1), 1103(2022).
- Itoh, K., Nejime, M., Konoike, N., Nakamura, K., Nakada, T. Evolutionary elongation of the time window of integration in auditory cortex: macaque vs. human comparison of the effects of sound duration on auditory evoked potentials. Front Neurosci. 13, 630(2019).
- Itoh, K., Iwaoki, H., Konoike, N., Igarashi, H., Nakamura, K. Noninvasive scalp recording of the middle latency responses and cortical auditory evoked potentials in the alert common marmoset. Hear Res. 405, 108229(2021).
- Itoh, K., Nejime, M., Konoike, N., Nakada, T., Nakamura, K. Noninvasive scalp recording of cortical auditory evoked potentials in the alert macaque monkey. Hear Res. 327, 117-125 (2015).
- Konoike, N., et al. Comparison of noninvasive, scalp-recorded auditory steady-state responses in humans, rhesus monkeys, and common marmosets. Sci Rep. 12 (1), 9210(2022).
- Eliades, S. J., Miller, C. T. Marmoset vocal communication: Behavior and neurobiology. Dev Neurobiol. 77 (3), 286-299 (2017).
- Ray, S., Hsiao, S. S., Crone, N. E., Franaszczuk, P. J., Niebur, E. Effect of stimulus intensity on the spike-local field potential relationship in the secondary somatosensory cortex. J Neurosci. 28 (29), 7334-7343 (2008).
- Leonard, M. K., et al. Large-scale single-neuron speech sound encoding across the depth of human cortex. Nature. 626 (7999), 593-602 (2024).
- Dubey, A., Ray, S. Comparison of tuning properties of gamma and high-gamma power in local field potential (LFP) versus electrocorticogram (ECoG) in visual cortex. Sci Rep. 10 (1), 5422(2020).
- Ray, S., Crone, N. E., Niebur, E., Franaszczuk, P. J., Hsiao, S. S. Neural correlates of high-gamma oscillations (60-200 Hz) in Macaque local field potentials and their potential implications in electrocorticography. Journal Neurosci. 28 (45), 11526-11536 (2008).
- Buzsáki, G., Anastassiou, C. A., Koch, C. The origin of extracellular fields and currents--EEG, ECoG, LFP and spikes. Nat Rev Neurosci. 13 (6), 407-420 (2012).
- Konoike, N., Miwa, M., Ishigami, A., Nakamura, K. Hypoxemia after single-shot anesthesia in common marmosets. J Med Primatol. 46 (3), 70-74 (2017).
访问受限。请登录或开始试用以查看此内容。
重印与许可
