本方案描述了一种动物模型,用于研究生命早期逆境(由贫瘠的环境和出生后早期阶段不可预测的母体照料所引发)对大脑发育及未来精神障碍风险的影响。
本文内容
摘要
摘要
生命早期逆境(ELA),例如虐待、忽视、资源匮乏以及不稳定的家庭环境,是导致抑郁症等神经精神疾病已知的风险因素。研究者常使用动物模型来探究慢性应激对大脑发育的影响,其中通常通过操控母体照料的质量和/或数量来模拟ELA,因为母体照料是包括人类在内的哺乳动物生命早期经历的主要来源。本文提供了一种在小鼠中应用“有限垫料与筑巢材料”(LBN)模型的详细实验方案。该模型通过限制母鼠可用于为其幼鼠筑巢的垫料量,并在笼内使用网状平台将小鼠与垫料分离,从而模拟资源匮乏的环境,导致在关键发育期(出生后第2至9天)母体照料呈现碎片化和不可预测的模式。文中提供了代表性数据,用以展示LBN模型所引起的母体行为改变、幼鼠体重减轻以及基础皮质酮水平的长期变化。成年后,LBN环境中抚育的后代 表现出异常的应激反应、认知缺陷以及类似快感缺失的行为。因此,该模型是研究ELA如何改变应激敏感脑环路成熟过程,并导致长期行为改变从而增加精神疾病易感性的重要工具。
引言
出生后的早期是一个关键的发育窗口期,在此期间,环境因素可能改变发育轨迹。例如,生命早期逆境(ELA)可改变大脑发育,从而引发认知和情绪功能的长期变化。ELA 的实例包括儿童期或青春期发生的身体或情感虐待、忽视、资源匮乏以及不可预测的家庭环境1。已知 ELA 是导致抑郁症、物质使用障碍、创伤后应激障碍(PTSD)和焦虑症等疾病的风险因素2,3,4,5。这一点尤为重要,因为美国儿童贫困率最近已超过翻倍,从2021年的5.2%上升至2022年的12.4%6;尽管贫困本身不一定属于 ELA,但它确实增加了遭遇各类 ELA 的可能性7。
动物模型长期以来对于理解生命早期应激对大脑发育及成年期结局的影响至关重要。近年来用于解析这一现象的两种主要动物模型是母体分离(maternal separation, MS)和通过限制垫料与筑巢材料诱导的贫瘠环境(limited bedding and nesting materials, LBN)。MS模型最初被设计用于模拟亲代剥夺8,其操作方式通常是在断奶前每天将啮齿类幼崽与其母体分离数小时8。研究表明,MS范式可导致成年期出现类似抑郁和焦虑的行为9,以及对慢性应激产生异常反应10,11。另一方面,LBN模型最初由Baram实验室建立12,该模型并不将母体与幼崽分离,而是通过改变幼崽的养育环境来模拟资源匮乏的条件12,13。在该模型中,减少筑巢材料的数量并限制幼崽直接接触垫料,会导致母体照护行为紊乱3。由于稳定且可预测的母体照护对于认知与情绪相关脑环路的正常发育至关重要14,因此LBN引起的碎片化母体照护可能导致一系列后果,包括下丘脑-垂体-肾上腺(Hypothalamic-Pituitary-Adrenal, HPA)轴过度活跃、多个脑区兴奋-抑制平衡偏移、促肾上腺皮质激素释放激素(corticotropin-releasing hormone, CRH)水平升高,以及子代出现类抑郁行为13,15,16,17,18,19。
早期生活逆境(ELA)导致神经精神障碍风险增加的确切机制尚未完全阐明。目前认为这与下丘脑-垂体-肾上腺(HPA)轴神经回路的改变有关19,20,最近的证据表明,这可能是由于小胶质细胞突触修剪功能发生变化所致19。限制垫料与筑巢(LBN)模型已被证明是理解围产期环境对大脑发育及长期行为结局影响的关键工具。尽管该模型最初是为大鼠建立的,但现已成功应用于小鼠,以便利用现有的转基因技术工具12,13。值得注意的是,该模型在两种物种中表现极为相似,并引发高度一致的结果,如下丘脑-垂体-肾上腺轴功能改变、认知缺陷 以及类似抑郁的行为,从而凸显了其跨物种的适用性和转化研究潜力。本文将详细描述如何在小鼠中应用限制垫料与筑巢模型,包括母代行为及子代结局的采集与分析,以验证模型的有效性及预期结果。
方案
所有涉及动物的实验操作均遵循美国国立卫生研究院《实验动物护理与使用指南》的规定,并经佐治亚州立大学机构动物护理与使用委员会批准(批准编号 A24011)。小鼠在佐治亚州立大学动物实验中心内繁育并饲养。实验使用 C57BL/6J 品系小鼠,在围产期(出生后第 [P] 2–10 天)进行,包含雄性和雌性个体。本研究所用试剂与设备列于下文 材料清单.
1. 材料准备
- 根据笼具尺寸裁剪网状隔板,较长的两侧各留出 3 cm 的余量。
注意:材料表中提供的网状隔板由制造商预先裁剪。 - 将边缘(包括多余部分)折叠,形成一个与笼具边缘完全贴合、且高出笼底约 2.5 cm 的平台。这样可使尿液和粪便穿过网状隔板,同时防止动物取回玉米芯垫料。最后,确保所有锋利边缘均向下折叠,以避免对动物造成伤害。
注意:网状隔板可重复使用,每次使用后应使用热水和肥皂彻底清洗,再用 70% 乙醇喷洒消毒。 - 将摄像头安装在三脚架上,并设置好录像系统。
注意:建议使用视频管理软件。录制的视频将自动生成 .mp4 文件,并自动分割为每段 1 小时。 - 将录制模式设置为连续录制。
注意:建议的其他设置参数为 1920 x 1080 分辨率和每秒 30 帧。 - 如果视频管理软件未自动执行,应将生成的 .mp4 文件手动设置为每 1 小时分割一段。
- 若需分析关灯时段的行为,请使用红外照明。
注意:为减少笼具侧面的录像反光,建议关闭摄像头自带的红外功能,而在黑暗期录像时使用房间内的红外泛光灯照明。
2. 有限垫料与筑巢材料范式(LBN)
- 将1-4只雌性动物与单笼饲养的雄性种鼠配对。
注意:实验雌鼠的首次合笼推荐年龄为P75。使用未产仔雌鼠最为理想;但在某些不可行的情况下(例如珍贵的转基因小鼠品系),经产雌鼠可在之后继续繁殖约四个月。建议(非强制)每天检查阴栓,以确定交配日期(胚胎发育第0天[E0])。- 母鼠怀孕后,尽量减少干扰。
注意:多产雌性小鼠通常可在生育力下降前重复用于繁殖多达五窝。若需重复使用母鼠进行实验,应优先让其每次处于相同实验条件,或仅从对照组转至LBN组,但绝不可反向转换,以避免LBN对母鼠产生任何残留的长期影响。
- 母鼠怀孕后,尽量减少干扰。
- 在E17天(或如果未检查阴栓,则在雌鼠明显怀孕时),将雌鼠单独分笼饲养至标准的聚甲基丙烯酸甲酯笼中,并提供一个棉质筑巢垫料(5 × 5 cm),供其筑巢。
注意:对于对照组和LBN设置,最好将分离的雌性小鼠转移至远离主饲养室的安静小房间内,保持12小时光照/12小时黑暗循环,并尽量减少人员干扰。 - 记录出生日期(约 E19)。
- 在P2天,统计并记录仔鼠数量及性别。将窝仔随机分配至LBN组或对照组(若为母鼠的第一窝仔鼠)。对仔鼠的这一操作应在光照开启后1至4小时内完成。
- 将幼崽小心放入一个新的洁净笼子中,按性别进行分拣。雄性幼崽的肛门与生殖器之间的肛门生殖距离比雌性幼崽更长,可作为性别鉴定的依据。
- 将雄性和雌性分开分组进行计数。
- 剔除超过8只幼崽的窝仔,丢弃少于4只幼崽的窝仔。最佳窝仔数量为4–8只,因为超出此范围可能干扰研究期间母体护理的正常分配。
注意:窝仔数可能影响幼崽体重、摄食机会以及母体与幼崽间的相互作用,这些因素可能对实验造成混杂效应。理想情况下,不应进行小鼠的交叉哺育,因为小鼠的存活率较之大鼠更低。
- 设置对照组和 LBN 条件,如图所示 图1.
- 对照组:使用标准尺寸的小鼠鞋盒式笼具(19.4 cm × 13.0 cm × 38.1 cm),铺约 220 g 玉米芯垫料(根据笼具尺寸调整,垫料高度约为 1 cm),并放置一个标准方形棉质筑巢垫片(5 cm × 5 cm)。
- 为帮助小鼠适应这一陌生环境,将它们旧笼子中的一粒粪便颗粒放入新笼子的每个角落。此外,在新垫料上放置少量(约硬币大小)来自先前笼子的用过的棉絮垫料。
- LBN:将先前准备好的网状隔板放入标准鞋盒式笼具中,加入约110 g玉米芯垫料(目标厚度约为0.5 cm)。网状隔板应能防止小鼠与玉米芯垫料直接接触。
- 最后,加入半片棉巢垫料(2.5 × 5 cm)。重复上述所有步骤,以帮助动物适应环境。
注意:建议将鞋盒式笼具放置在标准的非通风笼架上,因为已有研究表明,这种设置环境安静,且不会导致在LBN笼具中饲养的仔鼠出现低体温现象。21然而,在使用通风笼具时,由于气流增加,情况可能有所不同;因此,若研究人员使用通风笼具,应测量其系统中的噪声水平和仔鼠核心温度。
- 最后,加入半片棉巢垫料(2.5 × 5 cm)。重复上述所有步骤,以帮助动物适应环境。
- 对照组:使用标准尺寸的小鼠鞋盒式笼具(19.4 cm × 13.0 cm × 38.1 cm),铺约 220 g 玉米芯垫料(根据笼具尺寸调整,垫料高度约为 1 cm),并放置一个标准方形棉质筑巢垫片(5 cm × 5 cm)。
- 将幼崽放入指定的笼子中,并将其放置在垫巢物上方。接着,将母鼠放入笼内,使其朝向幼崽,这有助于母鼠更快地察觉到幼崽的存在。确保笼内提供充足的食物和饮水,至少满足8天的需求,以避免在实验结束前(P10)干扰笼内环境。
- 将摄像机安装在笼子前方的三脚架上,以获得母鼠及其幼崽的清晰侧视图像。可选择在笼子周围放置镜子,以更好地捕捉所有角度的画面。尽管每天仅需分析1小时的视频记录,但摄像机在实验期间会设置为24/7连续录制,以便监测任何干扰情况。
注意:小鼠也可进行直接观察,并可手动评分母性行为,但建议采用视频记录,以避免实验人员在场对行为造成干扰。若使用通风笼架,可能需要采用与本文所述不同的方法来安置摄像设备,以记录母性行为。 - 在P10当天上午,将所有动物恢复至标准饲养条件(理想情况下与上述对照条件相同),并称量仔鼠体重。
- 对所有幼鼠进行相同的处理,并在出生后21天(P21)断奶,按同性别同胞仔鼠每2–5只一组分笼饲养。
注意:尽可能将同窝的同性别个体共同饲养,如有必要,可将不同窝的同性别后代在相同条件下共同饲养。建议避免将对照组与LBN后代同笼饲养(参见Yang等关于笼内同伴组成对行为表型影响的研究)。22).

图 1:笼具设置示例。 图像左侧的笼具显示的是标准对照(CTL)组,其中含有足量的垫料和一个完整的筑巢垫块。右侧的笼具显示的是限制性垫料和筑巢(LBN)设置,其中垫料量减半,筑巢垫块为半块,并配有网状隔板,用于将动物与垫料隔开。请点击此处查看该图的放大版本。
3. 母代行为评分
- 尽管在此实验设置中会持续采集记录数据,但仅分析 P3 至 P6 期间的 1 小时数据。建议分析在光照变化后至少 1 小时开始录制的视频,以确保动物完成适应过程,并保证每天在相同时间段进行视频分析。
注意:P3 至 P6 期间通常因低幼崽数量(LBN)处理而表现出最显著的母体照料行为差异,因此仅需分析这些天的数据。建议的观察/记录时间可涵盖活动期与非活动期转换后的行为表现。然而,母鼠最可能在非活动期进行母体照料行为,且先前研究已表明该阶段母体行为的组间差异最为显著3。
注意:P2 的录制时间应晚于其他天,因为小鼠至少需要 1 小时以适应笼具更换。除非笼具更换是研究关注的变量,否则应将该天数据从分析中剔除。 - 根据表1中列出的所有行为进行评分。通常,在数据采集开始后的前 50 分钟内对行为进行评分。
注意:该过程可通过手写记录完成,也可使用行为观察研究交互式软件(Behavioral Observation Research Interactive Software, BORIS,一款开源软件)或其他类似软件进行电子化评分。以下说明基于手写评分方法,但可根据所选软件进行相应调整。 - 在打印的表格中,使用行为缩写记录所观察到的行为、行为起始时间、持续时间以及任何描述性备注。例如,若母鼠正在主动哺乳,随后离开巢穴但幼崽仍附着在其身上,应记录为 AN,随后记录为 O。关于仍附着在母鼠身上的幼崽(及其数量)的描述应作为备注记录在表格一侧,以备后续需要时查阅。
注意:持续时间少于 3 秒的行为不予分析。此规则有助于排除由外界干扰(如环境噪音)引起的瞬时行为。但若在主动哺乳(AN)过程中出现明显中断(如因大幅度移动或伸展),但行为迅速恢复,则可记录为 AN,随后记录为 N-AN,具体参见表1中的说明。 - 当多个行为同时发生时,记录其中最显著的行为。例如,若母鼠最初处于低哺乳状态(LN),随后开始理毛和舔舐幼崽(LG),则应记录低哺乳行为结束,下一行为标记为 LG,并备注该行为发生在低哺乳期间。
| 行为类型 | 缩写 | 描述 | ||||
| 舔舐/理毛 | LG | 母鼠正在舔舐或清理其幼崽。 | ||||
| 主动哺乳 | AN | 母鼠以站立姿势哺乳幼崽,背部呈弓形。 | ||||
| 新主动哺乳 | N-AN | 该行为特指母鼠中断哺乳后迅速恢复的情况。此为3秒规则的例外。 | ||||
| 低体位哺乳 | LN | 母鼠正在主动哺乳幼崽,但其背部较低或几乎呈平直状态。该行为通常在主动哺乳持续一段时间后出现。 | ||||
| 侧卧哺乳 | SN | 母鼠以侧卧姿势哺乳幼崽(也称为被动哺乳)。 | ||||
| 离巢 | O | 母鼠不在巢内,且未进食或饮水。可观察到其在笼内走动或探索。 | ||||
| 进食/饮水 | E | 母鼠离开巢穴进行进食或饮水。 | ||||
| 自我理毛 | SG | 母鼠正在清理自身。 | ||||
| 搬运幼崽 | C | 母鼠正在搬运幼崽,通常是为了将其移回巢内。 | ||||
| 筑巢 | NB | 母鼠正在积极构建或调整巢穴。 | ||||
| 在巢上移动 | M | 母鼠在巢上移动。表现为以不同于舔舐/理毛或任何哺乳方式的行为与幼崽互动,例如嗅闻、直立或踩踏幼崽。 | ||||
表1:母体护理行为的描述。
4. 母代行为数据的分析
- 将评分结果整理到电子表格中。
- 如果视频是通过电子方式分析的,则删除持续时间短于3秒的行为片段,具体操作如步骤3所述。
- 计算每次观察期间舔舐和理毛行为的平均持续时间、平均频率以及总持续时间。
注意:可对任何已评分的行为进行描述性统计分析,但舔舐和理毛行为通常在LBN作用下表现出最明显的片段化中断(即持续时间更短、频率更高)。这些变量可计算P3至P6日龄期间的平均值进行分析,也可按天数作为重复测量进行分析,以考察是否存在随时间变化的趋势(如有需要)。
5. 熵的计算
注意:母体照料行为的熵(即不可预测性)是根据 Vegetabile 等人提出的方法23计算得出的。该方法基于一个假设,即母体照料行为构成一个马尔可夫链,可用于估计行为序列的熵率。每只母鼠的行为序列通过条件概率从一种行为(i)转换到另一种行为(j)的经验转移矩阵 ij> i,j = 1…7 进行表征,熵率则根据此前所述的方法3,23并按以下公式计算:
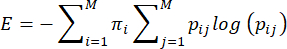
其中 pij 表示在观察到母鼠执行行为 i 后紧接着观察到行为 j 的条件概率,πi 表示行为 i 被观察到的频率,M(=7)为不同行为的总数。关于该方程理论基础的详细讨论,请参阅 Vegetabile 等人的研究23;本文的重点是如何在 LBN 模型中应用此方法。
- 为进行此项计算,需整理分析所需的格式。
- 将 AN、LN、SN 和 N-AN 相加合并为一个名为 N 的变量,因为这些行为均涉及哺乳行为。
注意:母体护理行为的详细说明请参见表 1。 - 将不涉及自我或幼崽指向性行为(M 和 O)的行为归入 O。
- 将 LG、E、SG、C 和 NB 分别单独输入,最终共得到 7 种行为。
- 将 AN、LN、SN 和 N-AN 相加合并为一个名为 N 的变量,因为这些行为均涉及哺乳行为。
- 创建一个电子表格,其列按以下顺序排列:小鼠编号(Mouse ID)、窝编号(Litter ID)、产仔次数(Litter #)、处理方式(Treatment)、日龄(Day)、时间(Time)、行为(Behavior)和状态(Status)。
- 在小鼠编号(Mouse ID)中,添加母鼠的品系/基因型。
- 在窝编号(Litter ID)中,使用母鼠的标识符后接产仔序号。
- 在产仔次数(Litter #)中,标明该母鼠的产仔序数。
- 根据动物所处的实验条件,确保处理方式为 LBN 或对照(Control)。
- 日龄(Day)应填写所分析的相应出生后天数。
- 时间(Time)应填写行为在视频中开始和结束的时间戳(相对于录像开始的时间)。
- 从前述七种行为(N、O、LG、E、SG、C 和 NB)中选择相应行为(参见表 1)。
- 标记两种状态:START(开始)和 STOP(结束)。因此,每种行为将出现两次,第一次记录表示开始,第二次表示结束。
- 按照此格式,录入所有分析日的数据。
- 在 R 环境中导入已按上述格式整理好的数据集。
- 安装位于 https://github.com/bvegetabile/entropyRate 的软件包。
注意:运行此代码将生成一个名为 LBN 的文件夹;无论实验条件如何,该文件夹均包含计算得到的熵值。此外,还可将每个个体在 P3–P6 天的熵值取平均,并在不同处理条件下进行比较。
结果
代表性结果展示了在LBN笼具的贫瘠环境中施加的早期生活应激(ELA)如何影响母鼠的育幼行为及其子代的生理结局。在P3至P6天期间,LBN组母鼠育幼行为的日熵值显著更高(F1,58 = 7.21,p = 0.0094;图2A),该时间段内每只母鼠的平均熵值也更高(t15 = 3.03,p = 0.0085;图2B)。值得注意的是,在同一处理组内,同一母鼠所产不同窝仔鼠之间的平均熵率无显著差异(F1.699,4.247 = 0.57,p = 0.58;图2C),提示熵率可能是每只母鼠相对稳定的特征。在所有行为中,梳理和舔舐(licking and grooming)是受LBN影响最显著碎片化的育幼行为3。LBN组母鼠对幼崽进行梳理和舔舐(LG)的频率更高(t16 = 4.04,p = 0.0010;图2D),且每次行为持续时间更短(t16 = 3.25,p = 0.0050;图2E)。然而,对照组与LBN组母鼠在LG行为的总持续时间上无显著差异(t16 = 1.52,p = 0.15;图2F)。

图 2:母性行为分析。 (A有限垫料和筑巢条件(LBN)下母鼠的日均熵率较高 与对照(CTL)通过混合效应模型分析(F1,58 = 7.21, p = 0.0094). (BLBN 母猪的平均熵率较高 与. CTL(细胞毒性T淋巴细胞,t15 = 3.03, p = 0.0085). (C) 在同一母体且保持相同处理组的情况下,不同窝仔鼠之间的平均熵率(P3-P6)无显著差异(F1.699,4.247 = 0.57, p = 0.58)。每条线代表一座大坝。D高舔舐与理毛(LG)行为母鼠的舔舐与理毛(LG)事件累积频率更高 对比. CTL(t16 = 4.04, p = 0.0010). (E) LG母鼠的平均哺乳持续时间较短 与. CTL(细胞毒性T淋巴细胞,t16 = 3.25, p = 0.0050). (F) 累计在LG上花费的时间因LBN而无显著差异(t16 = 1.52, p = 0.15)。数据以均值 ± 标准误表示,* p < 0.05. 请点击此处以查看此图的放大版本。
在LBN条件下饲养的幼鼠在P10时体型显著较小(t61 = 6.30,p < 0.0001;图3A)。这种差异通常在断奶期仍然存在(t62 = 6.29,p = <0.0001;图3B),但在成年期已不再显著(t38 = 1.08,p = 0.29;图3C)。然而,成年期基础状态下的皮质酮水平升高(t18.79 = 2.23,p = 0.038;图3D),提示LBN具有持续性的生理影响。这些差异是成功实验设置下预期的结果。若实验设置不理想,则母鼠理毛行为持续时间、熵值以及幼鼠体重等指标可能未见差异,这很可能是由于“对照组”也处于应激状态所致。在本文中,分析子代结果时未区分性别,因为此处描述的生理指标通常不表现出性别差异;然而,在该模型中,其他类型的结果(如认知和情绪行为)常报告存在性别差异,值得进一步研究4。

图3:子代结果。(A)有限垫料和筑巢材料(LBN)导致在P10(返回标准笼具前)测得的幼崽体重降低(t61 = 6.30,p < 0.0001)。(B)在断奶期,LBN仍导致体重下降(t62 = 6.29,p < 0.0001)。(C)成年体重在LBN处理后不再存在差异(t38 = 1.08,p = 0.29)。(D)成年期基础皮质酮浓度因LBN而升高,经Welch's t-检验分析(t18.79 = 2.23,p = 0.038)。所有图表中,雌性以圆形表示,雄性以三角形表示。数据为均值 ± 标准误(SEM),*p < 0.05。请点击此处查看该图的放大版本。
讨论
本文提供了一种在小鼠中应用LBN模型的详细实验方案。该模型是研究生命早期一种具有生态学和转化相关性的慢性应激形式如何影响子代神经精神疾病发生的重要工具13。它也适用于从分子、神经内分泌或神经环路角度研究母体行为及其大脑的任何变化24。对于此类问题,经产次数可能是更需考虑的重要变量。我们观察到,同一母鼠在多次分娩中其母体行为熵值评分保持一致(图2C),提示熵值可能是每只母鼠相对稳定的特征。这一发现可能为使用经产雌性小鼠提供了依据,尤其是在仅使用初产雌性小鼠不可行的情况下,例如使用昂贵或稀有的转基因小鼠时。然而,由于经产可能对其他变量(如宫内环境)产生非预期影响,建议实验人员在数据分析过程中对经产雌性小鼠的使用进行统计学控制。
需要注意的是,该模型对环境干扰极为敏感。多种因素可能干扰动物,导致问题和次优结果,例如笼具进水或附近施工产生的巨大噪音。通常情况下,这些干扰会导致对照组动物产生应激,从而使得对照组与LBN条件之间无显著差异。此类问题的一个指标是P10时对照组和LBN幼崽体重相似,以及母体照料行为的熵值相近。因此,理想的设置是使用专用于此目的的母体照料房间,保持安静,并远离动物饲养区和其他实验室人员。干扰还可能导致幼崽被同类相食,尤其是在分娩母鼠年龄小于P75时更为常见。母鼠在P75之后以及产过第一胎之后,幼崽被同类相食的风险会降低。该方法的另一种变体将实验操作的时间调整至P4-P11,以进一步降低同类相食的风险25,26;尽管在当前实验室条件下并非必需。另一种LBN模型版本不使用网状隔板,但仍在整个断奶前的出生后阶段限制垫料和筑巢材料的用量27。需要注意的是,改变实验时间线可能导致不同的结果,例如母体虐待行为,进而导致子代出现不同的表型,如类似焦虑的行为25,28。其他常见问题包括由于摄像角度和巢穴过大而丢失母体行为数据;为缓解此问题,建议在笼具后方放置一面镜子,并确保在对照条件下仅提供一个巢垫,以防止巢穴过大而遮挡幼崽,影响摄像观察。最后,必须确保网状隔板正确安装于笼具内,以防止幼崽卡住或受伤。
LBN 模型的一个优势在于其易于定制,并可与其他实验因素相结合。可添加到本方案中的变量示例包括饮食29,30、免疫刺激30,31、不同的转基因品系32,33以及化学遗传学技术19。此外,该模型的某些版本采用出生后第10至17天(P10-P17)的时间框架,并结合母体分离(MS)处理34,35,36。该范式还被改造用于模拟产前应激,即从妊娠第14天(E14)到第19天(E19)将孕鼠饲养于LBN环境中37,38,但幼鼠本身从未直接暴露于应激刺激。最后,一些研究采用“二次打击”模型,即早期生活应激(ELA)与子代成年后接受的不同应激测试相结合19,39。
该方法的一个局限性在于通量不高。其产生的数据量受限于同时可用的相机数量和空间,尽管可以在不同时间分批进行实验。母性行为的手动评分尤其耗时,且可能引入观察者偏差,但得益于基于机器学习的方法的出现,自动化评分目前正在开发中40。如果采用人工评分,建议由同一个人完成同一实验中所有视频的评分,以减少观察者间的差异。另一个局限性是,该模型主要针对依赖母体照护的啮齿类动物设计,因此难以用于研究双亲照护行为。然而,已有研究团队在加州小鼠等具有双亲照护特性的物种中,采用父系剥夺作为母婴分离(MS)的替代方案41,42,因此可以设想,LBN模型也有可能被调整适用于这些物种。
除了LBN模型外,母婴分离(maternal separation, MS)是研究早期生活应激(ELA)的另一种最主要模型,因为成年动物中常用的其他应激方式(例如束缚应激)在生态学上不具相关性,且对幼崽的影响不同。LBN与MS的区别在于,LBN是一种导致母体行为碎片化且不可预测的慢性应激形式,而MS中的剥夺则是间歇性的,通常每天在可预测的时间发生43。有趣的是,这两种模型均可引起啮齿类动物HPA轴的改变以及类似抑郁的行为表现,尽管LBN可能是一种可重复性更高、实验人员干预更少且在不同实验室之间结果更一致的实验方案1,11,13,16。尽管该方案有助于减少某些变异来源(如实验者相关因素),但其他因素,如动物设施条件、动物来源或品系差异,仍可能影响实验结果。例如,已知BALB/c小鼠对慢性束缚应激的反应更为显著,其对ELA的敏感性也可能与C57BL/6J小鼠存在差异27,44。
总之,LBN 模型采用资源受限的环境并伴随不可预测的母体照料,是研究生命早期应激如何影响多种生理过程(如应激的生理适应、母体行为及大脑发育)的有效方法。值得注意的是,该模型已被用于探讨早期生活逆境(ELA)为何会成为神经精神疾病风险因素的机制1,5,9,12。未来,LBN 模型的应用将加深我们对精神和躯体疾病生物学基础的理解,并有助于阐明治疗围产期敏感阶段应激影响的新型治疗靶点。
致谢
本工作获得了美国国家心理健康研究所(NIMH)K99/R00 独立之路奖 #MH120327、Whitehall 基金会资助项目 #2022-08-051,以及脑与行为研究基金会(Brain & Behavior Research Foundation)和约翰与波莉·斯帕克斯基金会(The John and Polly Sparks Foundation)颁发的 NARSAD 青年研究者奖 #31308 的支持。作者谨此感谢佐治亚州立大学动物资源中心为实验动物提供的卓越照护,以及瑞安·斯利思(Ryan Sleeth)在建立和维护视频管理系统过程中提供的出色技术支持。博尔顿博士(Dr. Bolton)还特别感谢塔莉·Z·巴拉姆博士(Dr. Tallie Z. Baram),她创建了LBN模型并将其分享给本人。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 2英寸 400万像素 4倍变焦红外迷你云台半球网络摄像机 | Hikvision | DS-2DE2A404IW-DE3(S6) | |
| 亚马逊基础款铝制轻便摄影三脚架支架(含收纳包)- 2件装,2.8 - 6.7英尺,3.66磅,黑色 | 亚马逊 | 来自亚马逊 | |
| 蓝鸢尾 | Blue Iris 安全系统 | 可选视频管理软件 | |
| CAMVATE 1/4"-20 带天花板安装座的微型球头,适用于闭路电视监控系统 & 视频墙显示器支架 - 1991 | Camvate | 来自亚马逊 | |
| 玉米芯垫料 | The Andersons | 4B | |
| 棉质巢材 | Ancare | NES3600 | |
| 网状隔板 | McNICHOLS | 4700313244 | 标准,铝,合金 3003-H14,3/16" No. .032 标准(凸起型),70% 开放面积 |
| Tendelux DI20 红外照明器 | Tendelux | 来自亚马逊 |
参考文献
- Warhaftig, G., Almeida, D., Turecki, G. Early life adversity across different cell- types in the brain. Neurosci Biobehav Rev. 148, 105113(2023).
- Duffy, K. A., Mclaughlin, K. A., Green, P. A. Early life adversity and health-risk behaviors: Proposed psychological and neural mechanisms. Ann N Y AcadSci. 1428 (1), 151-169 (2018).
- Molet, J., et al. Fragmentation and high entropy of neonatal experience predict adolescent emotional outcome. Transl Psychiatry. 6 (1), e702(2016).
- Garvin, M. M., Bolton, J. L. Sex-specific behavioral outcomes of early-life adversity and emerging microglia-dependent mechanisms. Front Behav Neurosci. 16, 1013865(2022).
- Andersen, S. L. Neuroinflammation, early-life adversity, and brain development. Harv Rev Psychiatry. 30 (1), 24-39 (2022).
- Shrider, E. A., Creamer, J. Poverty in the United States: 2022. , Washington, DC. 60(2023).
- Roos, L. L., Wall-Wieler, E., Lee, J. B. Poverty and early childhood outcomes. Pediatrics. 143 (6), e20183426(2019).
- Ader, R., Tatum, R., Beels, C. C. Social factors affecting emotionality and resistance to disease in animals: I. Age of separation from the mother and susceptibility to gastric ulcers in the rat. J Comp Physiol Psychol. 53 (5), 446-454 (1960).
- Nishi, M. Effects of early-life stress on the brain and behaviors: Implications of early maternal separation in rodents. Int J Mol Sci. 21 (19), 7212(2020).
- Trujillo, V., Durando, P. E., Suárez, M. M. Maternal separation in early life modifies anxious behavior and fos and glucocorticoid receptor expression in limbic neurons after chronic stress in rats: Effects of tianeptine. Stress. 19 (1), 91-103 (2016).
- Yu, S., et al. Early life stress enhances the susceptibility to depression and interferes with neuroplasticity in the hippocampus of adolescent mice via regulating miR-34c-5p/SYT1 axis. J Psychiatr Res. 170, 262-276 (2023).
- Walker, C. D., et al. Chronic early life stress induced by limited bedding and nesting (LBN) material in rodents: Critical considerations of methodology, outcomes and translational potential. Stress. 20 (5), 421-448 (2017).
- Rice, C. J., Sandman, C. A., Lenjavi, M. R., Baram, T. Z. A novel mouse model for acute and long-lasting consequences of early life stress. Endocrinology. 149 (10), 4892-4900 (2008).
- Glynn, L. M., Baram, T. Z. The influence of unpredictable, fragmented parental signals on the developing brain. Front Neuroendocrinol. 53, 100736(2019).
- Karst, H., et al. Acceleration of GABA-switch after early life stress changes mouse prefrontal glutamatergic transmission. Neuropharmacology. 234, 109543(2023).
- Demaestri, C., et al. Resource scarcity but not maternal separation provokes unpredictable maternal care sequences in mice and both upregulate CRH-associated gene expression in the amygdala. Neurobiol Stress. 20, 100484(2022).
- Breton, J. M., et al. Early life adversity reduces affiliative behavior with a stressed cagemate and leads to sex-specific alterations in corticosterone responses in adult mice. Horm Behav. 158, 105464(2023).
- Bath, K. G., Manzano-Nieves, G., Goodwill, H. Early life stress accelerates behavioral and neural maturation of the hippocampus in male mice. Horm Behav. 82, 64-71 (2016).
- Bolton, J. L., et al. Early stress-induced impaired microglial pruning of excitatory synapses on immature CRH-expressing neurons provokes aberrant adult stress responses. Cell Rep. 38 (13), 110600(2022).
- Dahmen, B., et al. Effects of early-life adversity on hippocampal structures and associated HPA axis functions. Dev Neurosci. 40 (1), 13-22 (2018).
- Bolton, J. L., Short, A. K., Simeone, K. A., Daglian, J., Baram, T. Z. Programming of stress-sensitive neurons and circuits by early-life experiences. Front Behav Neurosci. 13, 30(2019).
- Yang, M., Lewis, F., Foley, G., Crawley, J. N. In tribute to Bob Blanchard: Divergent behavioral phenotypes of 16p11.2 deletion mice reared in same-genotype versus mixed-genotype cages. Physiol Behav. 146, 16-27 (2015).
- Vegetabile, B. G., Stout-Oswald, S. A., Davis, E. P., Baram, T. Z., Stern, H. S. Estimating the entropy rate of finite Markov chains with application to behavior studies. J Educ Behav Stat. 44 (3), 282-308 (2019).
- Rincón-Cortés, M., Grace, A. A. Postpartum scarcity-adversity disrupts maternal behavior and induces a hypodopaminergic state in the rat dam and adult female offspring. Neuropsychopharmacology. 47 (2), 488-496 (2022).
- Gallo, M., et al. Limited bedding and nesting induces maternal behavior resembling both hypervigilance and abuse. Front behav neurosci. 13, 167(2019).
- Manzano Nieves, G., Bravo, M., Baskoylu, S., Bath, K. G. Early life adversity decreases pre-adolescent fear expression by accelerating amygdala pv cell development. eLife. 9, e55263(2020).
- Johnson, F. K., et al. Amygdala hyper-connectivity in a mouse model of unpredictable early life stress. Transl Psychiatry. 8 (1), 49(2018).
- Demaestri, C., et al. Type of early life adversity confers differential, sex-dependent effects on early maturational milestones in mice. Horm Behav. 124, 104763(2020).
- Reemst, K., et al. Molecular underpinnings of programming by early-life stress and the protective effects of early dietary ω6/ω3 ratio, basally and in response to LPS: Integrated mRNA-miRNAs approach. Brain Behav Immun. 117, 283-297 (2024).
- Reemst, K., et al. Early-life stress and dietary fatty acids impact the brain lipid/oxylipin profile into adulthood, basally and in response to LPS. Front Immunol. 13, 967437(2022).
- Reemst, K., et al. Early-life stress lastingly impacts microglial transcriptome and function under basal and immune-challenged conditions. Transl Psychiatry. 12 (1), 507(2022).
- Wang, T., et al. The nucleus accumbens CRH-CRHR1 system mediates early-life stress-induced sleep disturbance and dendritic atrophy in the adult mouse. Neurosci Bull. 39 (1), 41-56 (2023).
- Knop, J., Van, I. M. H., Bakermans-Kranenburg, M. J., Joëls, M., Van Der Veen, R. Maternal care of heterozygous dopamine receptor d4 knockout mice: Differential susceptibility to early-life rearing conditions. Genes Brain Behav. 19 (7), e12655(2020).
- Bennett, S. N., Chang, A. B., Rogers, F. D., Jones, P., Peña, C. J. Thyroid hormones mediate the impact of early-life stress on ventral tegmental area gene expression and behavior. Horm Behav. 159, 105472(2024).
- Parel, S. T., et al. Transcriptional signatures of early-life stress and antidepressant treatment efficacy. Proc Natl Acad Sci U S A. 120 (49), e2305776120(2023).
- Julie-Anne, B., et al. Reactivation of early-life stress-sensitive neuronal ensembles contributes to lifelong stress hypersensitivity. J Neurosci. 43 (34), 5996(2023).
- Bolton Jessica, L., et al. Maternal stress and effects of prenatal air pollution on offspring mental health outcomes in mice. Environ Health Perspect. 121 (9), 1075-1082 (2013).
- Block, C. L., et al. Prenatal environmental stressors impair postnatal microglia function and adult behavior in males. Cell Rep. 40 (5), 111161(2022).
- Peña, C. J., et al. Early life stress alters transcriptomic patterning across reward circuitry in male and female mice. Nat Commun. 10 (1), 5098(2019).
- Lapp, H. E., Salazar, M. G., Champagne, F. A. Automated maternal behavior during early life in rodents (amber) pipeline. Sci Rep. 13 (1), 18277(2023).
- Madison, F. N., Palin, N., Whitaker, A., Glasper, E. R. Sex-specific effects of neonatal paternal deprivation on microglial cell density in adult California mouse (Peromyscus californicus) dentate gyrus. Brain, Behav. Immun. 106, 1-10 (2022).
- Walker, S. L., Sud, N., Beyene, R., Palin, N., Glasper, E. R. Paternal deprivation induces vigilance-avoidant behavior and accompanies sex-specific alterations in stress reactivity and central proinflammatory cytokine response in California mice (Peromyscus californicus). Psychopharmacology. 240 (11), 2317-2334 (2023).
- Molet, J., Maras, P. M., Avishai-Eliner, S., Baram, T. Z. Naturalistic rodent models of chronic early-life stress. Dev Psychobiol. 56 (8), 1675-1688 (2014).
- Tsuchimine, S., et al. Comparison of physiological and behavioral responses to chronic restraint stress between C57BL/6J and balb/c mice. Biochem Biophys Res Commun. 525 (1), 33-38 (2020).
重印与许可
