在本实验方案中,我们展示了如何制备蝾螈组织以进行原子力显微镜(AFM)检测,并在完整及再生肢体软骨中进行压痕测量。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
完整及再生墨西哥钝口螈肢体中软骨的原子力显微镜测量
* These authors contributed equally
本文内容
摘要
摘要
机械力为细胞正常功能和发育组织中的模式形成提供了重要的信号,其在胚胎发生和病理发生过程中的作用已被广泛研究。相比之下,人们对动物再生过程中这些信号的作用了解较少。
由于具有在损伤后完全再生多种器官和组织(包括缺失的软骨和骨骼)的能力,墨西哥钝口螈(axolotl)是研究再生过程的重要模式生物。由于骨骼组织在脊椎动物体内起着主要的支撑作用,因此在再生过程中恢复其功能不仅需要重建缺失的结构,还需恢复其机械性能。本实验方案介绍了一种用于原子力显微镜(AFM)检测的墨西哥钝口螈肢体样本制备方法,该方法是高空间分辨率下探测细胞和组织机械性能的金标准。
利用墨西哥钝口螈的再生能力,本研究测量了肢体软骨在稳态以及肢体再生两个阶段(组织溶解和软骨凝聚)期间的硬度。结果表明,原子力显微镜(AFM)是研究组织动态重构及再生过程中力学变化的有力工具。
引言
骨骼,尤其是软骨和骨组织,为脊椎动物体内软组织提供了主要的机械支撑。因此,骨骼系统的任何损伤都可能严重损害其功能,甚至影响生存。在人类中,骨折是最常见的创伤性损伤之一1,其中大多数在数周内可自行修复,但仍有5%–10%的病例会出现愈合延迟或无法完全恢复2,3。此外,人类无法自行修复大范围的骨或软骨缺损4,5。然而,某些蝾螈能够再生多种身体结构,包括完整的肢体6,这使其成为研究骨骼再生的理想模型。
墨西哥钝口螈(Ambystoma mexicanum)是一种被广泛研究肢体再生的蝾螈。该过程可分为四个主要的连续且部分重叠的阶段:1)伤口愈合,2)炎症/组织溶解,3)芽基形成,以及 4)芽基生长/分化(详见文献7,8)。截肢后,损伤部位边缘的角质形成细胞迅速迁移,封闭伤口并形成伤口上皮(WE)。在随后的炎症和组织溶解过程中,病原体被清除,碎片和受损细胞被移除,截肢面下方的细胞外基质(ECM)被重塑9。组织溶解对于肢体再生的发生至关重要10,其中蛋白水解酶的分泌不仅对整体ECM重塑至关重要,而且有助于释放形成芽基的细胞以及ECM中储存的生物活性分子8。事实上,多种再生模型和模式生物的研究表明,在组织溶解期间ECM独特的材料特性能够诱导细胞去分化过程,或引导细胞向损伤部位迁移(详见文献11)。此外,在组织溶解后期,钙化组织的吸收已被证明对新生肢体骨骼结构的正确整合具有关键作用12。在组织溶解阶段之后,芽基在伤口上皮(WE)下方形成,表现为由成熟组织细胞去分化或组织驻留干细胞产生的未分化、多谱系前体细胞的聚集。芽基细胞增殖并分化为所有缺失的细胞类型。最后发生肢体形态发生,骨骼组织通过来自骨周细胞和转分化的真皮成纤维细胞所衍生的软骨前体细胞的聚集而再生13,14,15。
尽管许多调控细胞身份改变和细胞外基质(ECM)成分变化的生化信号分子已被鉴定10,13,14,16,17,18,但在肢体再生的不同阶段中,组织的力学特性及其对再生过程的影响仍 largely 未被深入研究。大量研究表明,在多种生理环境中,细胞能够感知并整合机械信号,从而调控其命运和行为(详见综述19,20)。因此,将肢体再生的细胞与分子机制研究与组织力学测量相结合,将极大促进我们对这些生物学过程的理解。
已开发出多种技术,可用于生物样品的力学表征和力操控21。在这些技术中,原子力显微镜(AFM)已成为力学生物学领域的金标准,该技术通过使用超灵敏力传感器——AFM悬臂——对样品进行压痕,以高空间分辨率探测生物样品的黏弹性特性22。由于该技术需要与样品直接接触,通常需制备组织切片,这在某些情况下可能具有挑战性。因此,必须针对每种特定样品调整和优化制备条件,以尽可能保持接近生理状态,并尽量减少人为假象的产生23。本 方案描述了如何利用AFM测量墨西哥钝口螈肢体组织的刚度,重点关注完整状态下的软骨组织、发生组织溶解过程中的组织以及软骨凝聚阶段的组织(图1 和 图2)。该方法也可拓展用于其他类型组织的测量。
访问受限。请登录或开始试用以查看此内容。
方案
墨西哥钝口螈(Ambystoma mexicanum)饲养于德累斯顿工业大学(TUD)德累斯顿再生治疗中心(CRTD)的墨西哥钝口螈养殖设施中。饲养条件的完整描述见文献24。简而言之,饲养室温度保持在20–22 °C,光照周期为12小时光照/12小时黑暗。所有操作和手术程序均遵循当地伦理委员会指南,并经德国萨克森州地方管理局(Landesdirektion Sachsen)批准。
本研究所有实验均使用白色(d/d)墨西哥钝口螈,这是一种自然发生的突变品系,缺乏体表色素(黑色素细胞和黄色素细胞极少或缺失),仅在眼睛虹膜中存在虹彩细胞。实验所用墨西哥钝口螈体长为8-15 cm(从吻端到尾尖),年龄为5-7个月,无性别特异性偏好。
1. 准备
- 配制10% (w/v) 苯佐卡因储备液,用于墨西哥钝口螈的麻醉和安乐死(见下文)。将50 g苯佐卡因与100%乙醇在容量瓶中混合,定容至500 mL。
- 配制0.03% (w/v) 苯佐卡因储备液。
- 配制1 L溶液:将50 mL 10倍浓度Tris缓冲盐水(TBS)与30 mL 10% (w/v) 苯佐卡因溶液、5 mL 4000% (w/v) Holtfreter's溶液加入915 mL蒸馏水中,用磁力搅拌器搅拌过夜。
- 配制1 L 10倍浓度TBS溶液:将24.2 g Trizma碱和90 g NaCl溶于990 mL去离子水中,用磁力搅拌器充分混合。然后加入约10 mL浓盐酸(12 M或37%),调节pH至8。
- 配制1 L 4000% (w/v) Holtfreter's溶液:将158.4 g NaCl、11.13 g MgSO4·7H2O、5.36 g CaCl2·2H2O和2.88 g KCl溶于去离子水中,定容至1 L。
- 通过将0.03% (w/v) 储备液按1:3比例稀释于饲养箱水中,配制0.01% (w/v) 的苯佐卡因工作液用于麻醉。
- 配制1 L溶液:取333 mL苯佐卡因储备液与666 mL饲养箱水混合。
- 配制5 mg/mL酒石酸布托啡诺储备液用于镇痛。将100 mg酒石酸布托啡诺(+)盐溶于20 mL超纯水中。分装后于4 °C保存。
- 在截肢当天,将储备液用饲养箱水按1:10,000比例稀释,新鲜配制0.5 mg/L酒石酸布托啡诺工作液,以减轻动物术后疼痛。
- 对于体长小于8 cm的动物,将20 µL储备液加入200 mL饲养箱水中。
- 对于较大的动物,将60 µL储备液加入600 mL饲养箱水中。
- 配制无菌两栖类磷酸盐缓冲液(APBS),即80% (v/v) PBS溶液,将800 mL DPBS与200 mL去离子水混合,室温(RT)保存。
- 配制1 mg/mL胰岛素储备液。将250 mg胰岛素粉末溶于25 mL 0.1 M HCl中,缓慢振荡至溶解。在持续振荡下加入225 mL APBS,直至溶液澄清。经无菌过滤后,分装为4 mL每份,于-20 °C保存。
- 配制无菌培养基(所有成分为v/v%):62.5% L15培养基、10%热灭活胎牛血清(FBS)、1%青霉素/链霉素、1%胰岛素、1% L-谷氨酰胺,并于4 °C保存至使用当天。实验当天使用前平衡至室温。
- 配制400 mL培养基:取250 mL L15培养基、40 mL热灭活FBS、4 mL青霉素/链霉素、4 mL胰岛素溶液(来自步骤1.7)、4 mL L-谷氨酰胺和98 mL无菌去离子水,在无菌条件下混合,混合后经无菌过滤。分装为15 mL每份。
- 配制2.5%和3% (w/v) 低熔点(lmp)-琼脂糖APBS溶液,于70 °C加热至琼脂糖完全溶解。将溶液分装至1.5 mL离心管中,4 °C保存至使用当天。
- 配制20 mL 2.5% (w/v) lmp-琼脂糖溶液:在50 mL离心管中将0.5 g lmp-琼脂糖与20 mL APBS混合,于70 °C水浴中加热至琼脂糖完全熔化。溶液应变为澄清透明。趁热分装。
- 配制20 mL 3% (w/v) lmp-琼脂糖溶液:将0.6 g lmp-琼脂糖与20 mL APBS混合,其余操作同上。
- (可选):配制20 mL 1% (w/v) lmp-琼脂糖溶液:将0.2 g lmp-琼脂糖与20 mL APBS混合,其余操作同上。
注意:熔化时间取决于lmp-琼脂糖浓度,大约为15–40分钟。
- 用于截肢和组织固定时,使用明场体视显微镜。
- 准备直径100 mm的塑料培养皿、镊子、手术刀和手术剪,用于截肢和组织采集。
- 准备直径35 mm的塑料培养皿,用于压痕测量。
- 制备长约1 cm、直径约1 cm的圆柱体。将纸板切割刀在本生灯火焰上加热,用加热后的刀片切割15 mL离心管。
- 裁剪若干1 cm2大小的Parafilm膜小片并储存。
- 将金属块或冷块置于-20 °C冰箱中至少1小时,使其充分冷却。
- 准备塑料巴斯德吸管。
- (可选):配制固定液MEMFa溶液(0.1 M MOPS,pH 7.4,2 mM EGTA,1 mM MgSO4·7H2O,3.7%甲醛)。加入10.465 g MOPS、0.123 g MgSO4·7H2O、2 mL 0.5 M EDTA(pH 8.0),加水至45 mL。加入5 mL 37% (w/v) 甲醛,定容至50 mL。
2. 试剂
- 本研究所用试剂详见材料表,但也可使用其他商业供应商的同类产品。
3. 墨西哥钝口螈截肢与肢体再生
- 在进行所有实验操作之前,将动物置于含有0.01% (w/v) 苯佐卡因的饲养箱水(步骤1.3)中麻醉20分钟,确保动物深度麻醉且对触觉刺激无反应。
- 将美西螈从麻醉液中取出,放置在直径100 mm的培养皿上,培养皿内垫有经含麻醉剂的水润湿的滤纸。将肢体调整至与身体纵轴垂直,并将培养皿置于体视显微镜下以获得更清晰的视野。
注意:本实验使用带有紧凑型鹅颈灯的体视显微镜。 - 使用锋利且无菌的手术刀,在中胚节区域(桡骨/尺骨)钙化区远端立即截除肢体(图1A)。
注意:根据动物福利的3R原则,建议将截肢时取下的肢体作为完整对照使用。 - 将动物留在培养皿中,并用浸有含苯佐卡因水的湿滤纸覆盖15分钟,以促进血液凝固和伤口闭合。
- 将动物转移至含有新鲜饲养水和镇痛剂(酒石酸布托啡诺,0.5 mg/L,来自步骤1.5)的水箱中。
- 术后镇痛处理24小时后,将动物移回含有新鲜饲养水的原始水箱中。
- 让动物再生至所需的研究阶段。
注意:在5月龄动物中,完整阶段的样本取自截肢当天,组织溶解阶段的样本取自截肢后第5天;在7月龄动物中,软骨凝聚阶段的样本取自截肢后第21天。
4. 用于测量的组织安装与处理
- 将含有 2.5% 或 3% (w/v) lmp-琼脂糖的 1.5 mL 离心管(来自步骤 1.9)置于 70 °C 的加热金属块上加热,直至琼脂糖完全融化。随后将离心管转移至另一个预热至 37 °C 的加热金属块中,平衡温度后使用。
注:本实验中,2.5% lmp-琼脂糖用于再生组织的检测,3% 用于完整组织。 - 用一片 Parafilm 膜(步骤 1.14)密封 1 cm 长的圆柱体(步骤 1.13)的一端,确保其底端完全封闭。
- 将 15 mL 培养基分装液(来自步骤 1.8)平衡至室温(RT)。
- 将动物浸入含麻醉剂的水中(0.01% (w/v) 苯佐卡因溶于饲养水)至少 20 分钟,以实现麻醉。
- 在体视显微镜下使用支持定量测量的软件对肢体成像。测量目标结构的长度,并计算需从肢体远端切除多少组织才能暴露目标切面。
- 对于再生肢体,使用解剖刀和/或手术剪在肘部水平切断并收集肢体,去除多余组织。在准备下一步操作时,将组织暂时保存在 APBS 溶液中。确保切口与前臂轴线垂直(90°),以获得平整的切面。对于完整肢体,通过腕部区域切断以去除手部。
- 通过暴露动物于致死剂量的麻醉剂(0.1% 苯佐卡因)至少 20 分钟实施安乐死。为此,向体系中加入适量 10% (w/v) 苯佐卡因溶液,使终浓度达到 0.1% (w/v)。
- 若动物此前在 100 mL 的 0.01% (w/v) 苯佐卡因溶液中麻醉,则加入 900 µL 的 10% (w/v) 苯佐卡因溶液。
- 将肢体浸入 APBS 溶液中进行清洗。
- 确保移液管和已预热至 37 °C 并装有琼脂糖分装液的加热金属块靠近工作台。从 -20 °C 冰箱中取出冷金属块,并将圆柱体底部(覆盖 Parafilm 的一端朝下)放置于其上。
- 取出发离的肢体,用纸巾轻轻吸去多余液体。将肢体置于洁净的培养皿中,加入融化的 lmp-琼脂糖覆盖其上,并轻微移动肢体以排出皮肤表面残留的 APBS 溶液。
- 迅速将肢体放入圆柱体内,确保其垂直放置,且目标区域朝上。
- 用镊子轻轻夹持肢体的同时,向圆柱体内加入 lmp-琼脂糖,直至完全覆盖组织。在琼脂糖凝固前轻轻移除镊子。
- 将圆柱体从冷金属块上取下,在室温下静置约 30 秒,使琼脂糖完全凝固。
- 立即将含有组织的琼脂糖块连同无菌培养基分装液和 APBS 一起转移至振动切片机操作室,均保持在室温。
- 去除圆柱体底部的 Parafilm 膜,使用氰基丙烯酸酯胶水将含组织的琼脂糖块固定于振动切片机载物台上。确保琼脂糖和样品均牢固粘附于载物台。
- 将载物台浸入 APBS 溶液中进行切片。
注:完整组织包含较硬的骨/软骨,而再生组织质地较软。因此需相应调整振动切片机参数。本研究采用以下参数:完整组织(振幅 1.2 mm,速度 0.1 mm/s);再生组织(振幅 0.9 mm,速度 0.4 mm/s)。 - 以短步进方式(例如每次 100 µm)开始切削琼脂糖,直至到达组织尖端。随后继续切削组织块,直至去除远端部分组织(该长度已在步骤 4.5 中计算)。如此,目标区域的横截面即可清晰暴露。
注:所切除的组织部分紧邻原子力显微镜(AFM)探测的表面,可作为组织结构的参考样本,可用于直接互补分析,或固定后进行后续染色(见第 6 节)。 - 使用刀片小心地将含组织的琼脂糖块从振动切片机载物台上取下,并彻底清除所有胶水残留。立即使用外科组织粘合胶将琼脂糖块粘附于 35 mm 塑料培养皿上,并加入约 2 mL 室温培养基,确保组织完全浸没。
注:琼脂糖块中暴露的组织表面即为待探测表面。
5. 原子力显微镜测量
- 测量前至少 1 天,准备用于测量的悬臂梁。
注意:本研究中,无针尖的硅悬臂梁通过聚苯乙烯微珠(直径 20 µm)进行功能化处理,并将微珠-悬臂梁的结合在用于压痕测量前至少放置 1 天以增强其强度。- 使用固化时间为 5 分钟的环氧胶将微珠粘附到悬臂梁上。
- 迅速将悬臂梁轻轻接触涂有胶水的玻璃载片,使其末端形成一小滴胶水,随后立即与合适的微珠接触。
- 保持悬臂梁与微珠接触约 10 分钟,然后将带有微珠的悬臂梁从表面提起。
- 在测量前对悬臂梁进行校准。
注意:每次实验前,均采用原子力显微镜(AFM)软件内置程序,通过热噪声法对修饰后的悬臂梁进行校准。 - 将含有组织块(步骤 4.18)和培养基的培养皿放入 AFM 的培养皿支架中,并在明场显微镜下获取概览图像(图 1B)。
注意:压痕测试使用配备电动载物台的正置光学显微镜系统。安装 AFM 探头,将悬臂梁定位至组织上方,并使其接近组织表面。 - 选择特定的兴趣区域,并记录一组力-距离曲线(图 2A)。
注意:为在不同刚度的组织中实现约 1–4 µm 的可比压痕深度,采用 2–25 nN 的相对力设定值,接近和回撤速度为 7.5 µm/s,z 方向长度为 50 µm,网格大小为 70 µm × 70 µm,共 3 × 3 个测量点。 - 对每个探测区域,均获取一幅明场显微镜图像,以便将所得数据与肢段切片中的具体区域相对应。
- 对所有样品,每种组织类型至少探测 3 个不同区域。
注意:在所有情况下,本研究在软骨中心测量了 4 个区域,在软骨周边区域测量了 3 个区域,并将组织在显微镜下观察时间控制在最多 1 小时内。 - 完成压痕测量后,丢弃组织或将其固定以进行后续分析。
注意:测量结束后,将样品置于含有 2 mL MEMFa 溶液的离心管中,在 4 °C 下固定过夜。使用 MEMFa(步骤 1.17),但也可使用含 4%(w/v)甲醛的 PBS 溶液。
6. (可选)相邻组织切片的处理
- 如果相邻的组织切片将用于后续染色,则在切片后立即放入含有固定液的小型 2 mL 管中,并在 4 °C 下固定过夜。
- 为了通过标记肌动蛋白细胞骨架和细胞核来显示组织结构,用 PBS 洗涤 3 次,每次 5 分钟以去除固定液,然后在摇床上于室温下用含有 Alexa Fluor 488 标记的鬼笔环肽(1:250)和 Hoechst 33258(1:10000)的 PBS 溶液染色 1 小时。
- 接着,使用在 37 °C 下预热平衡的 APBS 中配制的 1%(w/v)低熔点琼脂糖(来自步骤 1.9),将染色后的样品固定在玻璃底培养皿表面,确保待观察的表面朝向玻璃。待琼脂糖凝固后,用 PBS 覆盖样品以防止脱水。
注意:完整组织和组织溶解样品使用倒置共聚焦显微镜成像(10 倍放大,光学切片厚度为 8 µm)。图 1C 中的图像是 8 层光学切片的最大投影。
- 如果相邻的组织切片将用于需要新鲜组织的即时下游分析(如 RNA 提取、活体染料孵育等),请确保操作迅速,并使用细胞培养基(来自步骤 1.8)以最大程度维持组织完整性。
7. 数据分析与展示
- 为计算表观杨氏模量,使用 JPK/Bruker 数据处理软件,基于球形压头的赫兹/斯内登模型(公式1)分析力-距离曲线,并假设泊松比为 0.5。
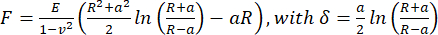 (公式1)
其中 R:压头半径,E:弹性模量,ν:泊松比,a:压头与样品之间接触区域的圆形半径,δ:压入深度。 - 对于粘弹性分析,使用 PyJibe 0.15.0 软件中的“基于 Kelvin-Voigt-Maxwell (KVM) 模型修正的赫兹模型”扩展功能(由 Paul Müller 编写,https://github.com/AFM-analysis/PyJibe)分析力-压入曲线的接近段25。该拟合函数基于 Abuhattum 等人26 描述的模型,整合了 Kelvin-Voigt-Maxwell 模型元件。
- 对力-压入曲线进行预处理,通过分段拟合方法估计接触点:使用直线(基线)和多项式拟合函数对接近段进行拟合。
- 将力-压入曲线拟合至“基于 Kelvin-Voigt-Maxwell (KVM) 模型修正的赫兹模型”。从拟合结果中获取未弛豫杨氏模量、表观杨氏模量和表观黏度。该模型还可提供麦克斯韦弛豫时间和压入时间。
注意:在多个分析的力-压入曲线中(特别是完整组织),麦克斯韦弛豫时间显著大于或小于压入时间,分别表明材料表现出更接近弹性行为或 Kelvin-Voigt 力学行为。
- 将所有测量数据导出至电子表格,并计算每种组织类型及每个样品的表观杨氏模量中位数。
- 使用适当的软件绘制图形并对数据进行统计分析。
注意:本研究使用 GraphPad Prism 软件;在描述结果时,引用的是每个样品表观杨氏模量中位数的均值 ± 标准差(见图 2D-F)。 - 利用 Fiji 软件的最大投影功能对共聚焦图像的光学切片进行投影显示。针对每个独立通道调整亮度和对比度,以实现荧光染色的最佳可视化效果。
- 使用适当的软件生成图像图版。
注意:使用 Affinity Designer 生成图版,图 1A 中的模型由 Affinity Designer 绘制。
访问受限。请登录或开始试用以查看此内容。
结果
利用上述方案,我们在稳态(“完整”)条件下、软骨组织早期溶解阶段以及后期软骨凝聚阶段,测量了软骨状墨西哥钝口螈肢体组织的表观杨氏模量(图1A)。我们还检测了骨骼结构不同区域(包括其中心和外围区域)的力学特性,如显示悬臂位置的图像所示(图1B)。为了展示组织结构并将其与刚度测量结果相关联,我们对横向组织切片或进行测量的组织块进行固定,并分别使用Alexa Fluor 488标记的鬼笔环肽和Hoechst对肌动蛋白纤维和细胞核进行染色(图1C)。在完整肢体中,桡骨明显大于尺骨,但这两个软骨性骨骼元件具有相似的形态,其中心区域分布着均匀的圆形细胞核,周围环绕着一层扁平细胞核,对应于软骨膜24。在溶解阶段,组织结构发生显著变化,骨骼元件内部的细胞核排列紊乱且密度降低。在后期软骨凝聚阶段,细胞核再次呈现有序排列,新生软骨与周围再生组织之间有清晰的界限。然而,在此阶段大多数细胞核呈扁平状,中心与外围之间无明显形态学差异。
访问受限。请登录或开始试用以查看此内容。
讨论
本文展示了利用原子力显微镜(AFM)测量墨西哥钝口螈肢体软骨硬度的技术。然而,该方法也可扩展应用于其他组织类型的检测。成功的AFM测量关键步骤在于样品制备,而墨西哥钝口螈样品的制备尤为困难。我们发现,对仍嵌入琼脂糖块中的组织表面进行检测是保持组织完整性的最佳方式。原因是墨西哥钝口螈皮肤会在表皮表面分泌大量黏液,从而阻碍切片组织在琼脂糖中稳定包埋。
某些样品可能会带来额外的挑战,例如具有较高的黏附性。我们在组织溶解阶段的样品中遇到了这一问题,这些样品相对柔软且具有黏性。在这些样品上,我们还观察到多条力-距离曲线,其压痕部分呈现出"锯齿状"的形态,表明探针小球以非连续的方式使样品表面发生变形(图2C),例如由于表面在应力作用下发生局部塌陷所致。此类力-距离曲线必须舍弃,因其无法用赫兹-斯内登(Hertz-Sneddon)模型进行拟合。为降低黏附性,可对压头进行钝化处理28,例如用聚乙二醇(PEG)或牛血清白蛋白等降低其黏附性的试剂对压头小球进行包被。此外,也可采用...
访问受限。请登录或开始试用以查看此内容。
致谢
我们感谢Sandoval-Guzmán实验室的所有成员在本研究开发过程中提供的持续支持与陪伴。我们还要感谢Anja Wagner、Beate Gruhl和Judith Konantz在墨西哥钝口螈饲养方面的辛勤付出。同时感谢Paul Müller提供了用于原子力显微镜(AFM)数据分析的代码。本工作得到了德累斯顿工业大学CMCB技术平台光镜设施的支持。 AT是德国癌症援助基金会(Deutsche Krebshilfe)资助的德累斯顿 Mildred Scheel 早期职业中心P2项目的研究员。RA由德国研究基金会(Deutsche Forschungsgemeinschaft, DFG)的临时独立课题组长职位(Eigene Stelle)资助——项目编号AI 214/1-1。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| Affinity Designer | Affinity | version 1.10.4 | 用于图像组装 |
| 低熔点琼脂糖 | Roth | 6351.1 | 用于样品制备 |
| Alexa Fluor 488 鬼笔环肽 | Invitrogen | A12379 | 用于组织染色 |
| Axiozoom | Zeiss | 用于在原子力显微镜(AFM)下成像样品 | |
| 苯佐卡因 | Sigma-Aldrich | E1501 | 用于动物麻醉 |
| 丁丙诺啡 (+)-酒石酸盐 | Sigma-Aldrich | B9156 | 作为镇痛剂 |
| 悬臂梁 | NanoWorld | Arrow TL1 | 用于原子力显微镜(AFM)压痕测量 |
| 配备电机载物台的 Cellhesion 200 装置 | JPK/Bruker | 用于原子力显微镜(AFM)压痕测量 | |
| CellSense Entry | 用于在 Olympus UC90 体视显微镜下成像 | ||
| Dulbecco’s 磷酸盐缓冲液(DPBS, 1x) | Gibco | 14190-144 | 用于清洗样品及振动切片机下的切片 |
| FIJI(ImageJ2) | https://imagej.net/software/fiji | version 2.9.0/1.53t | 用于图像处理 |
| GraphPad Prism | GraphPad Software | (version 8.4.3) | 用于数据作图与统计分析 |
| 热灭活胎牛血清(FBS) | Gibco | 10270-106 | 用于细胞培养基 |
| Histoacryl 胶水(2-丁基-氰基丙烯酸酯) | Braun | 用于将样品粘附至培养皿 | |
| Hoechst 33258 | Abcam | ab228550 | 用于组织染色 |
| 胰岛素 | Sigma-Aldrich | I5500 | 用于细胞培养基 |
| 倒置共聚焦显微镜 | Zeiss | 780 LSM | 用于组织切片成像 |
| 倒置共聚焦显微镜 | Zeiss | 980 LSM | 用于组织切片成像 |
| JPK/Bruker 数据处理软件 | JPK/Bruker | SPM 6.4 | 用于分析力-距离曲线 |
| L15 培养基(Leibovitz) | Sigma | L1518 | 用于细胞培养基 |
| L-谷氨酰胺 | Gibco | 25030-024 | 用于细胞培养基 |
| 青霉素/链霉素 | Gibco | 15140-122 | 用于细胞培养基 |
| 聚苯乙烯微球(直径 20 µm) | microParticles | 用于原子力显微镜(AFM)压痕测量 | |
| Pyjibe | 由 Paul Müller 编写 https://github.com/AFM-analysis/PyJibe | 0.15.0 | 用于黏弹性分析 |
| 体视显微镜 Olympus SX10 | Olympus | SX10 | 用于肢体截肢和组织固定 |
| 体视显微镜 Olympus UC90 | Olympus | UC90 | 用于成像 |
| Leica 振动切片机 | Leica | VT 1200S | 用于组织切片 |
参考文献
- Mills, L. A., Aitken, S. A., Simpson, A. H. R. W. The risk of non-union per fracture: current myths and revised figures from a population of over 4 million adults. Acta Orthop. 88 (4), 434-439 (2017).
- Calori, G. M., et al. Non-unions. Clin Cases Miner Bone Metab. 14 (2), 186-188 (2017).
- Nandra, R., Grover, L., Porter, K. Fracture non-union epidemiology and treatment. Trauma. 18 (1), 3-11 (2016).
- Nauth, A., Schemitsch, E., Norris, B., Nollin, Z., Watson, J. T. Critical-size bone defects: Is there a consensus for diagnosis and treatment. J Orthop Trauma. 32 (3 Suppl), S7-S11 (2018).
- Schemitsch, E. H. Size matters: Defining critical in bone defect size. J Orthop Trauma. 31 (10), S20-S22 (2017).
- Joven, A., Elewa, A., Simon, A. Model systems for regeneration: Salamanders. Development (Cambridge). 146 (14), 0-2 (2019).
- Aires, R., Keeley, S. D., Sandoval-Guzmán, T. Basics of Self-Regeneration. Cell Engineering and Regeneration. , Springer. Cham. (2020).
- Stocum, D. L. Mechanisms of urodele limb regeneration. Regeneration. 4 (4), 159-200 (2017).
- Bassat, E., Tanaka, E. M. The cellular and signaling dynamics of salamander limb regeneration. Curr Opin Cell Biol. 73, 117-123 (2021).
- Vinarsky, V., Atkinson, D. L., Stevenson, T. J., Keating, M. T., Odelberg, S. J. Normal newt limb regeneration requires matrix metalloproteinase function. Dev Biol. 279 (1), 86-98 (2005).
- Godwin, J., Kuraitis, D., Rosenthal, N. Extracellular matrix considerations for scar-free repair and regeneration: Insights from regenerative diversity among vertebrates. International J Biochem Cell Biol. 56, 47-55 (2014).
- Riquelme-Guzmán, C., et al. Osteoclast-mediated resorption primes the skeleton for successful integration during axolotl limb regeneration. ELife. 11, e79966(2022).
- Gerber, T., et al. Single-cell analysis uncovers convergence of cell identities during axolotl limb regeneration. Science. 362 (6413), aaq0681(2018).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Currie, J. D., et al. Live Imaging of Axolotl Digit Regeneration Reveals Spatiotemporal Choreography of Diverse Connective Tissue Progenitor Pools. Dev Cell. 39 (4), 411-423 (2016).
- Qin, T., et al. Single-cell RNA-seq reveals novel mitochondria-related musculoskeletal cell populations during adult axolotl limb regeneration process. Cell Death Differ. 28 (3), 1110-1125 (2021).
- Sandoval-Guzman, T., et al. Fundamental differences in dedifferentiation and stem cell recruitment during skeletal muscle regeneration in two salamander species. Cell Stem Cell. 14, 174-187 (2014).
- Currie, J. D., et al. The Prrx1limb enhancer marks an adult subpopulation of injury-responsive dermal fibroblasts. Biol Open. 8, bio043711(2019).
- Wagh, K., Ishikawa, M., Garcia, D. A., Stavreva, D. A., Upadhyaya, A., Hager, G. L. Mechanical regulation of transcription: Recent advances. Trends Cell Biol. 31 (6), 457-472 (2021).
- d'Angelo, M., et al. The role of stiffness in cell reprogramming: A potential role for biomaterials in inducing tissue regeneration. Cells. 8 (9), 1036(2019).
- Akhtar, R., Sherratt, M. J., Cruickshank, J. K., Derby, B. Characterizing the elastic properties of tissues. Mater Today (Kidlington). 14 (3), 96-105 (2011).
- Krieg, M., et al. Atomic force microscopy-based mechanobiology. Nat Rev Phys. 1 (1), 41-57 (2019).
- El Kirat, K., Burton, I., Dupres, V., Dufrene, Y. F. Sample preparation procedures for biological atomic force microscopy. J Microsc. 218 (3), 199-207 (2005).
- Riquelme-Guzmán, C., et al. Postembryonic development and aging of the appendicular skeleton in Ambystoma mexicanum. Dev Dyn. 251 (6), 1015-1034 (2021).
- López-Alonso, J., Eroles, M., Janel, S., et al. PyFMLab: Open-source software for atomic force microscopy microrheology data analysis [version 2; peer review: 2 approved]. Open Res Europe 2024. 3 (187), (2024).
- Abuhattum, S., Mokbel, D., Müller, P., Soteriou, D., Guck, J., Aland, S. An explicit model to extract viscoelastic properties of cells from AFM force-indentation curves. iScience. 25 (4), 104016(2022).
- Glorieux, L., et al. In-depth analysis of the pancreatic extracellular matrix during development for next-generation tissue engineering. Int J Mol Sci. 24 (12), 10268(2023).
- Hiratsuka, S., et al. Power-law stress and creep relaxations of single cells measured by colloidal probe atomic force microscopy. Jpn J Appl Phys. 48 (8 PART 3), 08JB17(2009).
- Johnson, K. L., Kendall, K., Roberts, A. D. Surface energy and the contact of elastic solids. Proc R Soc Lond A. 324, 301-313 (1971).
- Kondiboyina, V., Duerr, T. J., Monaghan, J. R., Shefelbine, S. J. Material properties in regenerating axolotl limbs using inverse finite element analysis. J Mech Behav Biomed Mater. 150, 106341(2024).
- Calve, S., Simon, H. Biochemical and mechanical environment cooperatively regulate skeletal muscle regeneration. FASEB J. 26 (6), 2538-2545 (2012).
- Calve, S., Simon, H. G. Extracellular control of limb regeneration. IUTAM Symposium on Cellular, Molecular and Tissue Mechanics. IUTAM Bookseries. 16, Springer. Dordrecht. 257-266 (2010).
- Kaufmann, R. A., Kozin, S. H., Barnes, A., Kalluri, P. Changes in strain distribution along the radius and ulna with loading and interosseous membrane section. J Hand Surg Am. 27 (1), 93-97 (2002).
- Martin, A. R., et al. Measurement of distal forearm bone mineral density: Can different forearm segments be used interchangeably. J Clin Densitom. 2 (4), 381-387 (1999).
- Riquelme-Guzmán, C., et al. In vivo assessment of mechanical properties during axolotl development and regeneration using confocal Brillouin microscopy. Open Biol. 12 (6), 220078(2022).
访问受限。请登录或开始试用以查看此内容。
重印与许可
