本文描述了一种正相高效液相色谱法,用于检测和定量与视觉功能维持相关的关键类视黄醇物质,这些物质存在于眼组织和全身组织中,在全身维生素A供应的背景下,可生成必需的光敏视紫红质发色团11-cis-视黄醛。
本文内容
摘要
摘要
G蛋白偶联受体(GPCRs)是一类跨膜蛋白的超家族,当其与配体结合后,可通过激活相应的G蛋白来启动信号级联反应。在所有哺乳动物的视觉过程中,视紫红质是负责启动光转导级联反应的G蛋白偶联受体。在光感受器细胞中,视紫红质与其发色团11-cis-视黄醛结合,并通过光敏感的异构化反应将11-cis-视黄醛转化为全-trans-视黄醛,从而激活转导素G蛋白,引发光转导级联反应。
尽管光转导机制已较为明确,但关于眼部生成11-cis-视黄醛所需的膳食维生素A前体的供给过程,以及导致该供给过程受阻的相关疾病,目前尚未完全阐明。维生素A前体被肠道吸收后,以视黄酯的形式储存在肝脏中,并以全-trans-视黄醇与视黄醇结合蛋白4(RBP4)结合的形式释放入血液循环。这种循环中的RBP4-视黄醇复合物可被包括肝脏、肺、肾和眼在内的全身器官吸收。因此,建立一种能够定量检测眼部及全身器官中各种膳食维生素A代谢物的方法,对于研究视紫红质G蛋白偶联受体(GPCR)的正常功能至关重要。
本方法介绍了一种用于小鼠组织中维生素A分析的全面提取与分析流程。通过正相高效液相色谱分析,可在单次运行中同时检测视黄醛、视黄醇和视黄酯的所有相关异构体,从而高效利用实验样本,并提高同一样本中不同维生素A代谢物之间的内部可靠性。采用这一全面的方法,研究人员将能够更准确地评估视紫红质G蛋白偶联受体功能中的全身性维生素A供应状况。
引言
G蛋白偶联受体(GPCRs)是目前已知研究最为广泛且特征最明确的蛋白质超家族之一。在其最为人熟知的功能中,GPCRs作为细胞表面受体参与信号转导,当与特定配体结合后可启动细胞内的响应反应。GPCRs的特征是具有七个跨膜(TM)螺旋结构域和总共六个环状结构域。这六个环中,三个位于细胞外侧,有助于配体结合;另外三个位于细胞内侧的环则与由Gα、Gβ和Gγ亚基组成的异源三聚体G蛋白相偶联1,2。
G蛋白偶联受体(GPCR)可分为多个类别,包括A类视紫红质样受体、B类分泌素受体家族、C类谷氨酸受体、D类真菌交配信息素受体、E类环磷酸腺苷受体以及F类卷曲/平滑受体3,4。顾名思义,G蛋白偶联受体中的视紫红质样A类亚族包含视紫红质,这是一种在光信号转导和视觉功能中起关键作用的G蛋白偶联受体。视紫红质具备典型G蛋白偶联受体模型中的所有重要特征和结构元件,包括前述的七个跨膜α螺旋结构域、六个胞外和胞内环区,以及与异源三聚体G蛋白的结合——在感光细胞中,该G蛋白也被称为转导素(Gt)1,5,6,7。在视紫红质的配体结合口袋中,光敏发色团配体11-cis-视黄醛通过共价的席夫碱键与赖氨酸296连接,从而形成11-cis-视黄酰基1,8。当吸收一个光子后,11-cis-视黄酰基发生光异构化,转变为全-trans-视黄酰基,诱导视紫红质发生构象变化。因此,11-cis-视黄醛配体对视紫红质G蛋白偶联受体的功能至关重要,必须持续维持充足且高效的11-cis-视黄醛供应,以应对感光细胞内较高的更新速率。
视黄醛(如11-cis-视黄醛)属于一类统称为类视黄醇(retinoids)的分子,生物学上重要的类视黄醇通常被称为维生素A。类视黄醇的特征是具有一个环状末端基团,连接一条共轭多烯链,另一端则为极性末端基团。视黄醛及其相关的维生素A衍生物(vitamers)也不例外,它们以β-紫罗兰酮环作为环状末端基团,一条二萜类多烯链,以及根据不同的维生素衍生物而变化的极性末端基团,例如视黄醛的醛基、视黄醇的羟基、视黄酸的羧基、视黄酯的酯键等(图1)9,10。
哺乳动物无法从头合成维生素A de novo,但植物可以;因此,哺乳动物系统中的所有类视黄醇必须来源于食物链中以植物为生产者的膳食。在经典的维生素A代谢模型中,β-胡萝卜素作为典型的植物性维生素A前体,通过清道夫受体B类1型成员(SCARB1)被吸收进入肠上皮细胞,由β-胡萝卜素加氧酶1(BCO1/BCMO1)裂解为两个全-反式-视黄醛分子,后者与视黄醛结合蛋白2(RBP2)结合,并由视黄醇脱氢酶(RDH)还原为全-反式-视黄醇,再由卵磷脂视黄醇酰基转移酶(LRAT)转化为视黄酯,随后通过乳糜微粒进入血液11,12,13,14。另一方面,视黄酯(如视黄醇棕榈酸酯)则是来自动物性来源的主要维生素A前体。肠腔中的视黄醇棕榈酸酯被羧酸酯酶1(CES1)水解为全-反式-视黄醇,并扩散进入肠上皮细胞15。肝脏是维生素A储存和稳态调节的主要器官,其吸收乳糜微粒中的视黄酯,在视黄酯水解酶作用下水解为与细胞视黄醇结合蛋白1(CRBP1)结合的全-反式-视黄醇,进入肝星状细胞后由LRAT再次转化为视黄酯以供储存13,16,17。为了维持机体维生素A的稳态水平,肝脏以全-反式-视黄醇的形式释放维生素A,该形式与血清转运复合物结合,此复合物由视黄醇结合蛋白4(RBP4)和转甲状腺素蛋白(TTR)组成15,18,19。本文中将该复合物称为holo-RBP4。
为了利用血液中这种系统性的维生素A供应,全身各组织(包括维持着丰富维生素A来源的眼部组织)必须具备吸收全-视黄醇结合蛋白4(holo-RBP4)进入组织的方法。在富含感光细胞的眼部组织视网膜中,受视黄酸刺激的膜受体6(STRA6)即为执行此功能的转运蛋白。机制研究表明,STRA6能够促进细胞外全-反式视黄醇的摄取转-视黄醇从全-视黄醇结合蛋白4(holo-RBP4)进入视网膜色素上皮细胞(RPE)20。这导入了所有-转-视黄醇随后将进入视觉循环,即全-反式-视黄醇被转化为11-顺式-视黄醛在视网膜色素上皮(RPE)和光感受器外节段中,与视紫红质结合后有助于视觉功能的实现9,21.
当循环中的全-trans-视黄醇通过STRA6从全视黄醇结合蛋白4(holo-RBP4)穿过血-视网膜屏障进入眼组织的视网膜色素上皮(RPE)后,RPE内的全-trans-视黄醇首先由卵磷脂:视黄醇酰基转移酶(LRAT)酯化为视黄酯,随后被视网膜色素上皮特异性65 kDa蛋白(RPE65)水解为11-cis-视黄醇。接着,11-cis-视黄醇由视黄醇脱氢酶5(retinol dehydrogenase 5)转化为11-cis-视黄醛。该11-cis-视黄醛由视锥视杆细胞间视黄醇结合蛋白(IRBP)携带进入光感受器的外节段(OS)9,21。在位于外核层(ONL)内光感受器细胞核周围的内质网中,视蛋白G蛋白偶联受体(opsin GPCRs)被合成,并通过连接纤毛(CC)转运。参与此CC跨膜转运的马达蛋白尚存争议,但目前的假说认为,驱动蛋白和动力蛋白介导的鞭毛内转运(IFT)或肌球蛋白介导的转运可能在此过程中起促进作用14,22,23,24,25,26。当这两个组分在OS的膜盘结构内相遇时,11-cis-视黄醛与视蛋白在视紫红质的赖氨酸196位点通过希夫碱共价连接形成11-cis-视黄基,从而为光转导做好准备8。
尽管视网膜色素上皮(RPE)中STRA6的表达有助于促进全反式视黄醇的摄取,反式-尽管肝脏是维生素A的主要稳态器官,并具有摄取全反式视黄醇的能力,但并未发现holo-RBP4的受体STRA6在肝脏中表达。反式-全反式视黄醇来自全结合型RBP415,19,27,28,29,30,31最终,一种类似受体被发现,称为视黄醇结合蛋白4受体2(RBPR2),具有摄取全反式视黄醇的能力反式-视黄醇从全-视黄醇结合蛋白4(holo-RBP4)中获取,作用类似于STRA6,但在肝组织中表达32.
因此,要全面理解视紫红质在视觉功能中的作用,必须了解最终导致视觉色素再生的生物学过程。这一过程又与前述过程密切相关,包括维生素A前体的代谢、在肝脏中的储存、肝脏释放全型RBP4,以及通过STRA6和RBPR2膜受体对全型RBP4的摄取。如上所述,小鼠等动物模型仍是研究这些过程的主要模型之一。因此,我们拟介绍一种从小鼠组织中提取类视黄醇的方法,以及一种可检测并定量这些类视黄醇的正相高效液相色谱法(HPLC)。利用这些方法,可对上述重要类视黄醇(如11-cis-视黄醛这一视紫红质配体,或主要运输形式的全-trans-视黄醇)在眼部、肝脏及全身器官中的含量进行分析。通过评估小鼠组织中类视黄醇的供应情况,我们对与类视黄醇物流供应相关的疾病状态和病理机制的理解将得以进一步深化。
除了通过与视蛋白G蛋白偶联受体结合在视觉功能中发挥发色团作用外,类视黄醇还通过视黄酸信号通路在哺乳动物细胞信号传导中发挥重要作用。该过程由两类直接结合DNA并调控基因转录的核受体介导,即视黄酸受体(RARs)和类视黄醇X受体(RXRs)。33这两个受体家族均以视黄酸形式的类视黄醇作为配体。研究表明,RARs 对全反式视黄酸和反式-视黄酸和 9-顺式-视黄酸,而RXRs仅对9-顺式-视黄酸34,35视黄酸若含量失控则具有致畸性,因此视黄酸信号通路必须受到极为严格的调控36视黄酸信号的产生必须在特定组织(如后脑和肢体发育)的发育过程中于局部且非常特定的时间点发生,但还有无数其他发育过程也依赖视黄酸信号传导37,38在参与视黄酸信号传导的细胞内,视黄酸由两类酶合成:醇/视黄醇脱氢酶(ADHs/RDHs),可催化通过STRA6或RBPR2摄入的视黄醇氧化为视黄醛;以及视黄醛脱氢酶(RALDHs),可催化视黄醛进一步氧化为视黄酸。39。尽管不参与 GPCR 信号传导 本身,尽管如此,视黄酸仍是一种重要的类视黄醇,同时也作为信号受体的配体发挥作用。
尽管此处未详细描述,我们希望承认此前已建立的利用高效液相色谱法(HPLC)在不同领域中检测视黄醇类物质的方法,例如在食品研究和微生物视紫红质研究中的应用。这些方法在视黄醇类物质的检测中采用了不同的目标和策略,包括使用反相技术,该技术所需的流动相挥发性和毒性较低40,41,42,检测视黄酸及其相关异构体40,41,以及从不同生物来源中进行纯化和提取43。我们的方法则专门针对从哺乳动物组织中检测棕榈酸视黄酯、视黄醛异构体和视黄醇异构体。如果预期用途与此特定应用不同,则应考虑采用不同的实验方案。
方案
注意:所有动物实验均经明尼苏达大学机构动物护理和使用委员会(IACUC)批准(方案编号 # 2312-41637A),并依照ARVO关于在眼科与视觉研究中使用动物的声明进行操作。所有提取步骤均需在黑暗中进行,仅使用微弱红光照明。注意仪器显示屏及附属LED灯可能发出的残留光线。
1. 分光光度法类视黄醇标准品制备及外标标准曲线绘制
注意:在使用高效液相色谱分析前,准备一个干冰容器用于类视黄醇的临时储存。
- 称取适量但任意的视黄醇类化合物,并将其溶解于适当的溶剂中,以便通过分光光度法进行定量。
注意:本研究中选用的溶剂为乙醇,溶解于乙醇中的视黄醇类化合物的摩尔吸光系数值详见表1。标准品和样品必须使用无水、HPLC级乙醇溶解。仅通过蒸馏纯化的乙醇会与水形成共沸混合物,体积比约为4%的水。水与己烷流动相不混溶,并会导致硅胶固定相水化,最终引起色谱柱降解。 - 利用比尔-朗伯定律及相应视黄醇类化合物的摩尔吸光系数,测定所制备标准品的浓度(表1)。
吸光度 = 摩尔吸光系数 (ε) × 摩尔浓度 × 光程长度 - 进行系列稀释,以制备可在目标组织定量范围内生成标准曲线的浓度。
注意:需了解比尔-朗伯定律的基本局限性,例如其在分析物浓度过高时不再适用。为避免此问题,稀释后的视黄醇标准品所产生的吸光度值应不超过1。在小鼠器官中视黄醇和视黄醛的定量应用中,我们发现1–10 ng范围内的校准曲线足以覆盖通常检测到的含量。对于从小鼠肝脏中定量视黄醇棕榈酸酯,我们发现20–80 µg范围内的校准曲线能够覆盖通常检测到的含量。 - 通过逐步改变从前述储备溶液中的进样体积,从而逐步改变进样的视黄醇类化合物量,对峰面积进行积分,建立外部标准曲线,用于视黄醇类化合物的定量,其中峰积分面积与进样视黄醇类化合物量成正比。
2. 组织采集与样本收集
注意:在组织匀浆和类视黄醇提取前,准备干冰容器用于组织的临时储存。推荐的组织采集量详见表2。为排除各组织因血液含量差异导致的类视黄醇水平变异,组织提取应使用完全灌注的小鼠进行,而血液提取则应在另外的小鼠上完成。
- 根据机构动物护理和使用委员会(IACUC)规定的指南和方案对小鼠实施安乐死(此处采用CO2窒息法)。
- 血液:安乐死后立即用剪刀将小鼠头部剪下,并将小鼠主干中的血液流入1.5 mL离心管中。
- 眼球:用镊子从小鼠去头的头部取出眼球。
- 脑组织:用小型剪刀剪开去头的小鼠头部,再用镊子取出脑组织。
- 肾脏、肝脏、脾脏、心脏和肺脏:用小型剪刀在腹部做切口,沿中线向上剪开,并剪开胸骨和肋骨。用镊子取出暴露的组织。
3. 组织匀浆
注意:如果需要对器官的较小部分进行分析(例如较大的器官,如肝脏或肺组织),应将整个器官匀浆,以避免组织不同区域中类视黄醇含量的差异。若需要更少量的组织,可对匀浆液进行分样。本方案的示意图详见图2。此改良方案改编自Kane和Napoli44。
- 将组织放入组织研磨管中,加入50%冰冷生理盐水(0.9%)和50%甲醇。不同组织类型所用体积见表2。
- 将研杵插入研磨管中,缓慢轻柔地旋转五整圈,以获得匀浆液。
- 匀浆后立即转移样品至15 mL离心管中。
- 加入2 mL甲醇,室温静置15分钟。
注意:如需分析视黄醛肟衍生物,请加入1 mL 0.1 M盐酸羟胺的0.1 M HEPES溶液(pH 6.5)(图1)。
4. 视黄醇提取
警告:正己烷高度易燃、高度挥发且剧毒。操作正己烷时,必须使用经美国国家职业安全与健康研究所(NIOSH)认证的呼吸器、护目镜、丁基手套,并在通风橱中进行。当从样品中蒸发正己烷时,建议使用增强空气流通的装置,以防止溶剂蒸气积聚,例如 snorkel 吸气装置。
- 向匀浆液中加入 10 mL 己烷,并将试管水平涡旋振荡至少 10 秒。
注意:必须确保两相充分混合。 - 将匀浆液与己烷的混合物在 1,000 × g 条件下离心 3 分钟,以促进相分离。
- 进行两次提取,以确保视黄醇类物质从匀浆液中完全提取。重复步骤 4.1 和 4.2。
- 用移液器吸取己烷层,并将己烷层转移至一组独立的玻璃 15 mL 试管中,用于真空蒸发。
注意:蒸发时请使用玻璃 15 mL 试管,以避免视黄醇类物质黏附在试管壁上。 - 使用真空离心浓缩仪将己烷完全蒸发。
5. 重悬与高效液相色谱分析
注意:由于本文所用的高效液相色谱系统为二元泵系统,因此在运行前需将四组分流动相预先混合至一个储液瓶中。
警告:本方法中使用的四种有机溶剂均具有高度易燃性、高度挥发性和高度毒性。1,4-二氧六环在接触氧气时易形成爆炸性过氧化物。不使用时,所有含1,4-二氧六环的容器必须保持密闭。操作这些溶剂时,必须佩戴经美国国家职业安全卫生研究所(NIOSH)认证的呼吸器、护目装备、丁基手套,并在通风橱中进行。在高效液相色谱(HPLC)运行这些溶剂时,建议使用增强空气流通的装置,以防止溶剂蒸气积聚,例如 snorkel 吸气装置。
- 用100 µL己烷重悬干燥的15 mL离心管,充分涡旋振荡,确保所有类视黄醇完全溶解。
- 将全部100 µL己烷溶液转移至单个玻璃进样小瓶中,用于HPLC分析。
- 设置HPLC运行程序(改编自Landers和Olson45):流动相:85.4% 己烷(v/v)、11.2% 乙酸乙酯(v/v)、2% 二噁烷(v/v)、1.4% 1-辛醇(v/v);色谱柱:两根4.6 mm内径 × 250 nm、5 µm的色谱柱串联连接;多柱恒温器温度:25 °C;进样体积:100 µL;流速:1 mL/min;运行时间:40 min。采用紫外吸收光谱检测,勾选采集200 nm至400 nm波长范围内紫外光谱的选项。
6. 峰的鉴定与积分
- 根据各目标类视黄醇标准品分析中观察到的保留时间和紫外光谱来鉴定色谱峰(图3、表3 和 表4)。
- 使用所选高效液相色谱(HPLC)系统的色谱数据系统对已鉴定的峰进行积分。积分值(即曲线下面积)与分析物的含量成正比。参照步骤1中建立的外标曲线对分析物进行定量。
- 对于生物组织样品所得色谱图的分析,建议采用手动积分而非典型色谱数据系统提供的自动积分,因为此类样品常出现保留时间等参数的波动。
- 确保色谱图无异常,以免提示运行过程中存在问题,例如基线噪声或非高斯峰形。此类问题可能表明HPLC系统中存在污染物或色谱柱磨损,需予以纠正以保证分析结果的有效性。
结果
在此,我们采用上述方法检测并定量小鼠眼部及全身组织中的类视黄醇,并生成了代表性色谱图。此外,我们将简要总结在这些组织中可检测到的典型类视黄醇。
在6月龄时,小鼠通过CO2窒息法实施安乐死。为维持眼部视黄醇含量,小鼠在安乐死及组织取材前需在黑暗环境中适应2天。采集两只眼球、0.2 g肝脏组织以及75 μL血液,用于视黄醇提取及后续的高效液相色谱(HPLC)分析。对于眼部组织,一只眼球在提取时未添加羟胺,另一只则进行羟胺处理。对于肝脏和血液样本,则无需羟胺处理,因为视黄醛通常不在这些组织中被检测到。
在未用羟胺处理的小鼠眼部色谱图中,鉴定出两种非经典视黄醛异构体之一的13-cis-视黄醛。此外,还鉴定出两种经典视黄醛异构体:11-cis-视黄醛和全-trans-视黄醛。在两张色谱图中,均鉴定出视觉循环中间产物11-cis-视黄醇以及维生素A的主要运输形式全-trans-视黄醇(图4A)。
在经羟胺处理的小鼠眼部色谱图中,此前提到的所有视黄醛异构体仍然存在。然而,这些异构体的保留时间显著延长。此外,这些视黄醛异构体现在以syn和anti两种构型同时出现。在通过峰面积积分进行定量时,必须将syn和anti两个峰的面积相加,以获得准确的积分值。11-cis-视黄醇和全-trans-视黄醇仍然存在(图4B)。
在小鼠肝组织的色谱图中,检测到棕榈酸视黄酯和全-trans-视黄醇。棕榈酸视黄酯是一种视黄酯,作为维生素A在哺乳动物体内的主要储存形式,可在哺乳动物肝组织中以较大量存在。肝脏以全-trans-视黄醇-RBP4复合物(holo-RBP4)的形式将维生素A释放至全身组织,该复合物包含在RBP4-转甲状腺素蛋白复合物中。随后,可在该色谱图中观察到一个显著的全-trans-视黄醇峰(图4C)。
在小鼠血液的色谱图中,一个大的全反式-视黄醇峰被鉴定出来。鉴于全型RBP4由肝脏释放后通过循环系统输送至全身组织,这一结果符合预期(图 4D)。类视黄醇异构体在时间依赖性解析的HPLC峰中表现出特征性的紫外吸收光谱(~250–400 nm),可用于初步交叉验证特定峰中异构体存在的质量。 (图5).
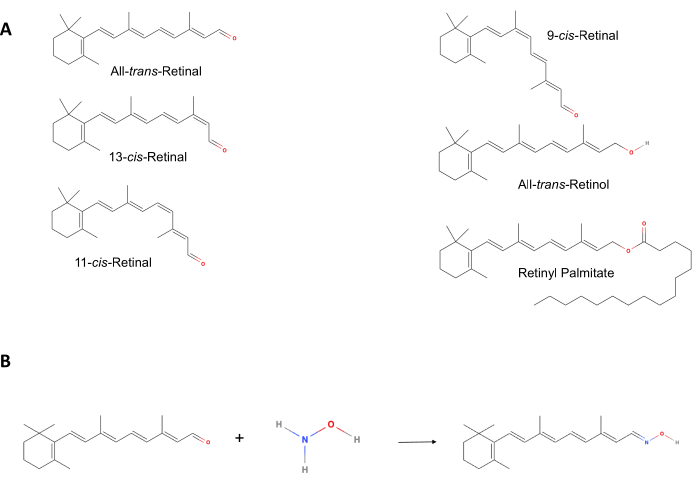
图1:类维生素A的化学结构。(A)这些类维生素A通常存在于提取的小鼠组织中。注意其极性末端基团的差异,以及类维生素A异构体中cis双键位置的不同。(B)将视黄醛转化为视黄醛肟可提高提取效率,避免与视黄醇棕榈酸酯的峰共洗脱,同时避免视黄醛异构体之间的峰共洗脱。请点击此处查看该图的放大版本。

图2:组织采集、匀浆、类视黄醇提取与分析的工作流程。从暗适应小鼠中获取视网膜及组织样本后进行匀浆和提取。步骤1:根据指南实施小鼠安乐死后,采集血液和多种组织。步骤2–4:使用生理盐水和甲醇进行组织匀浆,加入盐酸羟胺以用于定量分析。步骤5–7:使用正己烷处理类视黄醇,随后进行蒸发。步骤8,9:用100 µL正己烷重悬,确保所有类视黄醇完全溶解。步骤10:最后使用HPLC对样品进行分析。缩写:HPLC = 高效液相色谱法。请点击此处查看该图的放大版本。

图3:视黄类化合物标准品及羟胺处理后的视黄类化合物标准品的色谱图。(A)该色谱图包含视黄醇棕榈酸酯、13-cis-视黄醛、11-cis-视黄醛、全-trans-视黄醛、11-cis-视黄醇、13-cis-视黄醇和全-trans-视黄醇标准品。(B)该色谱图包含视黄醇棕榈酸酯、13-cis-视黄醛、11-cis-视黄醛、全-trans-视黄醛、11-cis-视黄醇、13-cis-视黄醇和全-trans-视黄醇标准品。此外,该色谱图还包含syn和anti异构体的视黄醛肟,以及视黄醇异构体。请点击此处查看该图的放大版本。

图4:代表性色谱图。(A)小鼠眼组织的代表性色谱图。该色谱图包含通常在小鼠眼组织中发现的类视黄醇化合物,包括视黄醛异构体以及视黄醇异构体。(B)经羟胺处理的小鼠眼组织的代表性色谱图。请注意,与前一张色谱图(图4A)中未经过化学修饰的视黄醛不同,该色谱图中包含syn和anti型肟基视黄醛异构体,以及视黄醇异构体。(C)小鼠肝脏组织的代表性色谱图。该色谱图包含通常在小鼠肝组织中发现的类视黄醇化合物,包括视黄基棕榈酸酯和全-trans-视黄醇。(D)小鼠血液的代表性色谱图。该色谱图包含通常在小鼠血液中发现的类视黄醇化合物,包括全-trans-视黄醇。 请点击此处查看此图的放大版本。
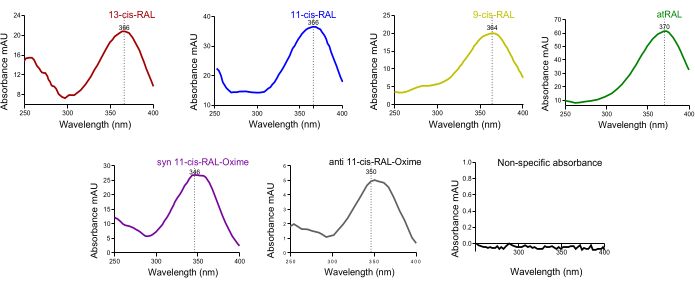
图 5:小鼠眼组织中视黄醛异构体的紫外吸收光谱。 吸收光谱分别为 (A) 13-cis-视黄醛、(B) 11-cis-视黄醛、(C) 9-cis-视黄醛、(D) 全-trans-视黄醛、(E) 合型 11-cis-视黄醛肟、(F) 反型 11-cis-视黄醛肟。 请点击此处查看该图的高清版本。

图6:高效液相色谱(HPLC)模块、流动相流向及其他仪器装置示意图。流动相从配制好的溶剂瓶开始,由二元泵在高压下输送至自动进样器,在此分析物被引入溶剂流中。随后,流动相与分析物进入温度可控的色谱柱温箱,最终进入二极管阵列检测器进行检测。(A)带红色滤光的显示器屏幕,用于减少类视黄醇的光异构化。(B)二元泵。(C)样品瓶进样器。(D)多柱温控装置。(E)二极管阵列检测器。(F)分析型馏分收集器。(G)高密度聚乙烯废液容器。(H)从左至右:铝制压盖、带聚合物底脚的250 μL内衬管、琥珀色压盖小瓶、进样小瓶的最终组装结构。(I)左侧为制冷离心机,右侧为离心浓缩仪。请点击此处查看该图的放大版本。
| 化合物 | 摩尔吸光系数 (ε) | 溶剂 | 参考文献 |
| 棕榈酸视黄酯 | 49260 | Ethanol | Hubbard et al.49 |
| 13-cis-视黄醛 | 35500 | Ethanol | Hubbard et al.49 |
| 11-cis-视黄醛 | 24935 | Ethanol | Hubbard et al.49 |
| 9-cis-视黄醛 | 36100 | Ethanol | Robeson et al.51 |
| 全-trans-视黄醛 | 42880 | Ethanol | Hubbard et al.49 |
| 11-cis-视黄醇 | 34890 | Ethanol | Hubbard et al.49 |
| 13-cis-视黄醇 | 48305 | Ethanol | Robeson et al.50 和 Robeson et al.51 |
| 全-trans-视黄醇 | 52770 | Ethanol | Hubbard et al.49 |
表1:类视黄醇在乙醇中的摩尔吸光系数。 类视黄醇的摩尔吸光系数值取自Kane和Napoli44、Hubbard等46、Robeson等47以及Robeson等48。摩尔吸光系数依赖于溶剂。此处列出的数值适用于溶解于乙醇中的类视黄醇。
| 组织 | 组织采集量 | 匀浆体积 |
| 血液 | 75 µL | N/A |
| 肝脏 | 0.2 g | 2 mL |
| 肾脏 | 2 个完整肾脏 | 2 mL |
| 皮肤 | 0.2 g | 1 mL – 1.5 mL |
| 脾脏 | 1 个完整脾脏 | 1 mL |
| 眼睛 | 双侧视网膜,合并4个视网膜 | 1 mL |
| 脑 | 1 个完整脑组织 | 2 mL |
| 心脏 | 1 个完整心脏 | 1 mL |
| 肺 | 0.2 g | 2 mL |
表2:每项分析推荐的组织用量。 根据Kane和Napoli44的建议,每项分析所需的组织用量以及用于组织匀浆的50%冰冻生理盐水(0.9%)和50%甲醇的体积。
| 化合物 | 保留时间 (min) | 紫外吸收最大值 (nm) |
| 视黄醇棕榈酸酯 | 5.177 | 326 |
| 13-cis-视黄醛 | 7.268 | 366 |
| 11-cis-视黄醛 | 7.691 | 366 |
| 9-cis-视黄醛 | 7.931 | 364 |
| 全-trans-视黄醛 | 8.993 | 370 |
| 11-cis-视黄醇 | 17.003 | 318 |
| 13-cis-视黄醇 | 17.83 | 328 |
| 全-trans-视黄醇 | 23.933 | 326 |
表3:类视黄醇的保留时间及最大吸收波长。这些数值是在采用所述方法和流动相,并使用参考的二极管阵列检测器进行检测时测得的。
| 化合物 | 保留时间(分钟) | 紫外吸收最大值(纳米) |
| Syn 11-cis-视黄醛肟 | 9.59 | 346 |
| Syn 全-trans-视黄醛肟 | 10.6 | 356 |
| Syn 13-cis-视黄醛肟 | 11.3 | 352 |
| Anti 13-cis-视黄醛肟 | 13 | 356 |
| Anti 11-cis-视黄醛肟 | 15.1 | 350 |
| Anti 全-trans-视黄醛肟 | 19.7 | 360 |
表4:经羟胺处理的视黄醛所形成的各视黄醛syn和anti肟异构体的保留时间及最大吸收波长。这些数值是在使用所述方法和流动相,并通过引用的二极管阵列检测器检测时获得的。
讨论
本方法采用正相高效液相色谱法(HPLC)检测和定量相关类视黄醇化合物,包括视黄酯、视黄醛和视黄醇。鉴于11-cis-视黄醛是视紫红质G蛋白偶联受体(GPCR)激活过程中的关键发色团,能够检测与11-cis-视黄醛生成相关的代谢物的方法,对于整体视觉功能研究至关重要。该方法的主要优势在于,可在单次运行中同时检测和定量视黄醛和视黄醇的所有相关异构体。考虑到可用的实验组织通常极为有限,该方法可高效利用组织进行类视黄醇检测。尽管已有报道使用正己烷和乙酸乙酯作为流动相对类视黄醇进行分离49,但添加1,4-二氧六环和1-辛醇可进一步提高类视黄醇异构体的分离分辨率。其中,1,4-二氧六环对13-cis-视黄醇与11-cis-视黄醇的分离至关重要50,而长链醇类(如1-辛醇)则可进一步改善视黄醇异构体的分离效果45,51,52。
为了定量分析视黄醛异构体,需先用羟胺将其转化为相应的视黄醛肟,因为活性醛基容易与其他生物分子(如蛋白质和脂质)发生反应45,53,54。视黄醛肟更易于提取,并使视黄醛的色谱峰在运行后期洗脱,从而避免与未知峰组以及在约5–8分钟洗脱的棕榈酸视黄酯峰发生共洗脱。使用羟胺处理视黄醛还可防止具有相似保留时间的视黄醛之间发生共洗脱45。转化为视黄醛肟后会生成syn和anti两种异构体,每种视黄醛异构体均产生两个在不同时间洗脱的独立色谱峰。为准确量化每种视黄醛异构体,必须将这两个峰的积分面积相加。除保留时间外,紫外光谱也提供了可用于峰鉴定的另一项指标。每种类视黄醇化合物的紫外吸收最大值略有不同。结合保留时间与紫外光谱特征,可实现对色谱峰的准确鉴定(表3和表4)。
尽管眼组织中存在如11-cis-视黄醛和全-trans-视黄醛等经典视黄醛异构体是预期之中的现象——其中11-cis-视黄醛是视紫红质的关键配体发色团,而全-trans-视黄醛则是光异构化后的配体——但本方法还可检测到其他非经典视黄醛异构体。特别是在我们的分析中,小鼠眼组织的HPLC检测结果中可清晰观察到13-cis-视黄醛的存在(图4A-D)。这些非经典视黄醛的出现并非完全出乎意料,因为13-cis-视黄醛和9-cis-视黄醛均已被证实是视网膜在光照应激下产生的副产物55,56。这些视黄醛异构体不参与已知的经典光转导级联通路,其代谢去向也尚不明确。然而,已有研究表明9-cis-视黄醛同样能够稳定地结合于视紫红质的配体结合口袋,形成异视紫红质(isorhodopsin)。异视紫红质的功能尚未被充分阐明,但研究显示其具有与基于11-cis-视黄醛的视紫红质相似的光敏感特性57,58。至少可以认为,9-cis-视黄醛能够稳定形成异视紫红质并进一步光异构化为全-trans-视黄醛,这一特性为其在我们的HPLC分析中未能检出提供了合理的解释56。另一方面,目前尚无证据表明13-cis-视黄醛参与任何已知的眼部生化通路,其在眼组织中的积累可能引发视网膜内的氧化应激55,59,60。
尽管9-cis-视黄醛通常不存在于小鼠组织中,但仍需指出,羟胺处理法并非分离和定量9-cis-视黄醛的可行方法。syn 9-cis-视黄醛与syn 13-cis-视黄醛的色谱峰会于11.2分钟时共洗脱。在预期存在较大量9-cis-视黄醛的情况下(例如外源性添加时),仅能对9-cis-视黄醛与13-cis-视黄醛的总量进行定量。对于定性鉴定,可采用不经羟胺处理组织的方法,从而实现13-cis-视黄醛与9-cis-视黄醛峰的完全分离。
除了眼组织外,该方法也可轻松应用于全身组织。尽管视黄醛的各种异构体通常在全身组织中不存在,但与视黄醇结合蛋白4结合的全-trans-视黄醇(holo-RBP4)是哺乳动物体内维生素A的主要转运形式,且可通过本方法在血液中便捷检测到全-trans-视黄醇。除血液外,全-trans-视黄醇通常也可在所有全身组织中检测到。因此,利用该方法可建立完整的全身组织范围内的类视黄醇谱型。
由于视黄醛(尤其是关键的视紫红质配体11-cis-视黄醛)极易发生光异构化,因此在上述任何步骤中都必须采取预防措施,以防止意外暴露于光照。除了房间照明和仪器面板等明显光源外,我们发现各种仪器上附属的发光二极管(LED)发出的散射光也是导致意外光照的主要来源,例如位于仪器后方(包括高效液相色谱仪本身)的LED(图6)。此外,我们发现专门设置的暗室对于视黄醛异构体及实验组织的正确处理至关重要。除了尽量减少光照外,我们还建议在动物安乐死后立即迅速处理组织,因为即使在无光条件下,视黄醛异构体也会发生降解。理想情况下,组织采集、提取和高效液相色谱分析应在同一天内完成。
未立即处理的组织必须避光保存于 -80 °C,且在处理前存放时间不应超过一周。如上所述,上述方法中流动相及提取步骤所用的所有溶剂均具有高度毒性、挥发性和易燃性。操作这些危险溶剂时,必须采用正确的操作程序和设备。在接触溶剂前,必须佩戴适当个人防护装备(PPE),例如丁基手套、经NIOSH认证的呼吸器和眼部防护装置,且所有溶剂转移操作均须在通风橱内进行。需注意,1,4-二氧六环在接触氧气后易生成爆炸性过氧化物,因此所有含1,4-二氧六环的溶剂容器必须严格密封,避免接触空气。
如果由于材料或设备不足而无法采用正相高效液相色谱法,则可使用更为常见的反相方法,以乙腈和水等挥发性较低的溶剂来检测和定量视黄醛和视黄醇。然而,这些方法无法分离异构体,仅能检测总的视黄醛或总的视黄醇44,54。
披露
作者声明无利益冲突。
致谢
本研究工作得到了美国国立卫生研究院国家眼科研究所(NIH-NEI)基金(EY030889 和 3R01EY030889-03S1)以及明尼苏达大学向 G.P.L. 提供的部分启动资金支持。我们还要感谢国家眼科研究所为我们提供了本论文中使用的11-cis-视黄醛标准品。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 试剂 | |||
| 1-辛醇,适用于HPLC,≥99.5% | Sigma-Aldrich, Millipore Sigma | 203-917-6 | |
| 1,4-二氧六环,适用于HPLC,≥99.5% | Sigma-Aldrich, Millipore Sigma | 204-661-8 | |
| 11-顺式-视黄醛 | 国家眼科研究所 | N/A | |
| 11-顺式-视黄醇 | Toronto Research Chemicals | TRC-R252105 | |
| 13-顺式-视黄醛 | Toronto Research Chemicals | TRC-R239900 | |
| 13-顺式-视黄醇 | Toronto Research Chemicals | TRC-R252110 | |
| 全反式-视黄醛 | Toronto Research Chemicals | TRC-R240000 | |
| 全反式-视黄醇 | Toronto Research Chemicals | TRC-R252002 | |
| 乙酸乙酯,适用于HPLC,≥99.7% | Sigma-Aldrich, Millipore Sigma | 205-500-4 | |
| 正己烷,HPLC级 | Fisher Scientific, Spectrum Chemical | 18-610-808 | |
| 甲醇(HPLC) | Fisher Scienctific | A452SK-4 | |
| 视黄醇棕榈酸酯 | Toronto Research Chemicals | TRC-R275450 | |
| 氯化钠(结晶/ACS认证) | Fisher Scientific | S271-500 | |
| 仪器 | |||
| 1260 Infinity II 分析型馏分收集器 | Agilent | G1364F | |
| 1260 Infinity II 二元泵 | Agilent | G7112B | |
| 1260 Infinity II 二极管阵列检测器 | Agilent | G7115A | |
| 1260 Infinity II 多柱温控箱 | Agilent | G7116A | |
| 1260 Infinity II 进样器 | Agilent | G7129A | |
| ST40R 制冷离心机 | Thermo Scientific | TSST40R | |
| Vacufuge Plus 离心浓缩仪 | Eppendorf | 22820168 | |
| 耗材 | |||
| 2 mL 棕色螺口小瓶 | Agilent | 5188-6535 | |
| 带PTFE/红色橡胶隔垫的压盖盖帽,11 mm | Agilent | 5183-4498 | |
| 一次性玻璃锥形离心管 | Millipore Sigma | CLS9950215 | |
| 螺口管,15 mL | Sarstedt | 62.554.502 | |
| 小瓶插入件,150 µL,带聚合物底脚的玻璃材质 | Agilent | 5183-2088 |
参考文献
- Palczewski, K., et al. Crystal structure of rhodopsin: A G protein-coupled receptor. Science. 289 (5480), 739-745 (2000).
- Rosenbaum, D. M., Rasmussen, S. G. F., Kobilka, B. K. The structure and function of G-protein-coupled receptors. Nature. 459 (7245), 356-363 (2009).
- Alhosaini, K., Azhar, A., Alonazi, A., Al-Zoghaibi, F. GPCRs: The most promiscuous druggable receptor of the mankind. Saudi Pharm J. 29 (6), 539-551 (2021).
- Hu, G. -M., Mai, T. -L., Chen, C. -M. Visualizing the GPCR network: Classification and evolution. Sci Rep. 7 (1), 15495(2017).
- Lerea, C. L., Somers, D. E., Hurley, J. B., Klock, I. B., Bunt-Milam, A. H. Identification of specific transducin α subunits in retinal rod and cone photoreceptors. Science. 234 (4772), 77-80 (1986).
- Gao, Y., Hu, H., Ramachandran, S., Erickson, J. W., Cerione, R. A., Skiniotis, G. Structures of the rhodopsin-transducin complex: Insights into G protein activation. Mol Cell. 75 (4), 781-790.e3 (2019).
- Zhou, X. E., Melcher, K., Xu, H. E. Structure and activation of rhodopsin. Acta Pharmacol Sin. 33 (3), 291-299 (2012).
- Robinson, P. R., Cohen, G. B., Zhukovsky, E. A., Oprian, D. D. Constitutively active mutants of rhodopsin. Neuron. 9 (4), 719-725 (1992).
- Kiser, P. D., Golczak, M., Palczewski, K. Chemistry of the retinoid (visual) cycle. Chem Rev. 114 (1), 194-232 (2014).
- Sani, B. P., Hill, D. L. [3] Structural characteristics of synthetic retinoids. Methods Enzymol. 189, 43-50 (1990).
- Lobo, G. P., Amengual, J., Palczewski, G., Babino, D., von Lintig, J. Carotenoid-oxygenases: Key players for carotenoid function and homeostasis in mammalian biology. Biochim Biophys Acta. 1821 (1), 78-87 (2012).
- Amengual, J., et al. Two carotenoid oxygenases contribute to mammalian provitamin A metabolism. J Biol Chem. 288 (47), 34081-34096 (2013).
- Harrison, E. H. Mechanisms involved in the intestinal absorption of dietary vitamin A and provitamin A carotenoids. Biochim Biophys Acta. 1821 (1), 70-77 (2012).
- Leung, M., et al. The logistical backbone of photoreceptor cell function: Complementary mechanisms of dietary vitamin A receptors and rhodopsin transporters. Int J Mol Sci. 25 (8), 4278(2024).
- Martin Ask, N., Leung, M., Radhakrishnan, R., Lobo, G. P. Vitamin A transporters in visual function: A mini review on membrane receptors for dietary vitamin A uptake, storage, and transport to the eye. Nutrients. 13 (11), 3987(2021).
- Harrison, E. H. Carotenoids, β-apocarotenoids, and retinoids: The long and the short of it. Nutrients. 14 (7), 1411(2022).
- Li, Y., Wongsiriroj, N., Blaner, W. S. The multifaceted nature of retinoid transport and metabolism. Hepatobiliary Surg Nutr. 3 (3), 126-139 (2014).
- D'Ambrosio, D. N., Clugston, R. D., Blaner, W. S. Vitamin A metabolism: An update. Nutrients. 3 (1), 63-103 (2011).
- Yamamoto, Y., et al. Interactions of transthyretin (TTR) and retinol-binding protein (RBP) in the uptake of retinol by primary rat hepatocytes. Exp Cell Res. 234 (2), 373-378 (1997).
- Kawaguchi, R., et al. A membrane receptor for retinol binding protein mediates cellular uptake of vitamin A. Science. 315 (5813), 820-825 (2007).
- Kiser, P. D., Golczak, M., Maeda, A., Palczewski, K. Key enzymes of the retinoid (visual) cycle in vertebrate retina. Biochim Biophys Acta. 1821 (1), 137-151 (2012).
- Radhakrishnan, R., et al. The role of motor proteins in photoreceptor protein transport and visual function. Ophthalmic Genet. 43 (3), 285-300 (2022).
- Solanki, A. K., et al. Loss of motor protein MYO1C causes rhodopsin mislocalization and results in impaired visual function. Cells. 10 (6), 1322(2021).
- Liu, X., Udovichenko, I. P., Brown, S. D. M., Steel, K. P., Williams, D. S. Myosin VIIa participates in opsin transport through the photoreceptor cilium. J Neurosci. 19 (15), 6267-6274 (1999).
- Insinna, C., Besharse, J. C. Intraflagellar transport and the sensory outer segment of vertebrate photoreceptors. Dev Dyn. 237 (8), 1982-1992 (2008).
- Krock, B. L., Mills-Henry, I., Perkins, B. D. Retrograde intraflagellar transport by cytoplasmic dynein-2 is required for outer segment extension in vertebrate photoreceptors but not arrestin translocation. Invest Ophthalmol Vis Sci. 50 (11), 5463-5471 (2009).
- Blaner, W. S. STRA6, a cell-surface receptor for retinol-binding protein: The plot thickens. Cell Metab. 5 (3), 164-166 (2007).
- Bouillet, P., et al. Developmental expression pattern of Stra6, a retinoic acid-responsive gene encoding a new type of membrane protein. Mech Dev. 63 (2), 173-186 (1997).
- Blomhoff, R., Norum, K. R., Berg, T. Hepatic uptake of [3H]retinol bound to the serum retinol binding protein involves both parenchymal and perisinusoidal stellate cells. J Biol Chem. 260 (25), 13571-13575 (1985).
- Kelly, M., von Lintig, J. STRA6: role in cellular retinol uptake and efflux. Hepatobiliary Surg Nutr. 4 (4), 229-242 (2015).
- Quadro, L., et al. The role of extrahepatic retinol binding protein in the mobilization of retinoid stores. J. Lipid Res. 45 (11), 1975-1982 (2004).
- Alapatt, P., et al. Liver retinol transporter and receptor for serum retinol-binding protein (RBP4). J Biol Chem. 288 (2), 1250-1265 (2013).
- Chawla, A., Repa, J. J., Evans, R. M., Mangelsdorf, D. J. Nuclear receptors and lipid physiology: Opening the X-files. Science. 294 (5548), 1866-1870 (2001).
- Heyman, R. A., et al. 9-cis retinoic acid is a high affinity ligand for the retinoid X receptor. Cell. 68 (2), 397-406 (1992).
- Allenby, G., et al. Retinoic acid receptors and retinoid X receptors: interactions with endogenous retinoic acids. Proc Natl Acad Sci USA. 90 (1), 30-34 (1993).
- Das, B. C., et al. Retinoic acid signaling pathways in development and diseases. Bioorg Med Chem. 22 (2), 673-683 (2014).
- Hernandez, R. E., Putzke, A. P., Myers, J. P., Margaretha, L., Moens, C. B. Cyp26 enzymes generate the retinoic acid response pattern necessary for hindbrain development. Development. 134 (1), 177-187 (2007).
- Yashiro, K., et al. Regulation of retinoic acid distribution is required for proximodistal patterning and outgrowth of the developing mouse limb. Dev Cell. 6 (3), 411-422 (2004).
- Duester, G. Families of retinoid dehydrogenases regulating vitamin A function. Eur J Biochem. 267 (14), 4315-4324 (2000).
- Tatum, V., Chow, C. K. Rapid measurement of retinol, retinal, 13-cis-retinoic acid and all-trans-retinoic acid by high performance liquid chromatography. J Food Drug Anal. 13 (3), (2020).
- Teerlink, T., Copper, M. P., Klaassen, I., Braakhuis, B. J. M. Simultaneous analysis of retinol, all-trans- and 13-cis-retinoic acid and 13-cis-4-oxoretinoic acid in plasma by liquid chromatography using on-column concentration after single-phase fluid extraction. J Chromatogr B. Biomed Sci App. 694 (1), 83-92 (1997).
- Egberg, D. C., Heroff, J. C., Potter, R. H. Determination of all-trans and 13-cis vitamin A in food products by high-pressure liquid chromatography. J Agric Food Chem. 25 (5), 1127-1132 (1977).
- Sudo, Y., et al. A microbial rhodopsin with a unique retinal composition shows both sensory rhodopsin II and bacteriorhodopsin-like properties. J Biol Chem. 286 (8), 5967-5976 (2011).
- Kane, M. A., Napoli, J. L. Quantification of endogenous retinoids. Methods Mol Biol. 652, 1-54 (2010).
- Landers, G. M., Olson, J. A. Rapid, simultaneous determination of isomers of retinal, retinal oxime and retinol by high-performance liquid chromatography. J Chromatogr A. 438, 383-392 (1988).
- Hubbard, R., Brown, P. K., Bownds, D. [243] Methodology of vitamin A and visual pigments. Methods Enzymol. 18, 615-653 (1971).
- Robeson, C. D., et al. Chemistry of vitamin A. XXIV. The synthesis of geometric isomers of vitamin A via methyl β-methylglutaconate1. J Am Chem Soc. 77 (15), 4111-4119 (1955).
- Robeson, C. D., Blum, W. P., Dieterle, J. M., Cawley, J. D., Baxter, J. G. Chemistry of vitamin A. XXV. Geometrical isomers of vitamin A aldehyde and an isomer of its α-ionone analog1. J Am Chem Soc. 77 (15), 4120-4125 (1955).
- Hubinger, J. C. Determination of retinol, retinyl palmitate, and retinoic acid in consumer cosmetic products. J Cosmet Sci. 60 (5), 485-500 (2009).
- Bhat, P. V., Co, H. T., Lacroix, A. Effect of 2-alkanols on the separation of geometric isomers of retinol in non-aqueous high-performance liquid chromatography. J Chromatogr A. 260, 129-136 (1983).
- Stancher, B., Zonta, F. Quantitative high-performance liquid chromatographic method for determining the isomer distribution of retinol (vitamin A1) and 3-dehydroretinol (vitamin A2) in fish oils. J Chromatogr. 312, 423-434 (1984).
- Zonta, F., Stancher, B. High-performance liquid chromatography of retinals, retinols (vitamin A1) and their dehydro homologues (vitamin A2): improvements in resolution and spectroscopic characterization of the stereoisomers. J Chromatogr A. 301, 65-75 (1984).
- van Kuijk, F. J., Handelman, G. J., Dratz, E. A. Rapid analysis of the major classes of retinoids by step gradient reversed-phase high-performance liquid chromatography using retinal (O-ethyl) oxime derivatives. J Chromatogr. 348 (1), 241-251 (1985).
- Kane, M. A., Folias, A. E., Napoli, J. L. HPLC/UV quantitation of retinal, retinol, and retinyl esters in serum and tissues. Anal Biochem. 378 (1), 71-79 (2008).
- Widjaja-Adhi, M. A. K., Ramkumar, S., von Lintig, J. Protective role of carotenoids in the visual cycle. FASEB J. 32 (11), 6305-6315 (2018).
- Ramkumar, S., Jastrzebska, B., Montenegro, D., Sparrow, J. R., von Lintig, J. Unraveling the mystery of ocular retinoid turnover: Insights from albino mice and the role of STRA6. J Biol Chem. 300 (3), 105781(2024).
- de Grip, W. J., Lugtenburg, J. Isorhodopsin: An undervalued visual pigment analog. Colorants. 1 (3), 256-279 (2022).
- Fan, J., Rohrer, B., Moiseyev, G., Ma, J., Crouch, R. K. Isorhodopsin rather than rhodopsin mediates rod function in RPE65 knock-out mice. Proc Natl Acad Sci USA. 100 (23), 13662-13667 (2003).
- Sparrow, J. R. Bisretinoids of RPE lipofuscin: Trigger for complement activation in age-related macular degeneration. Adv Exp Med Biol. 703, 63-74 (2010).
- Różanowska, M., Handzel, K., Boulton, M. E., Różanowski, B. Cytotoxicity of all-trans-retinal increases upon photodegradation. Photochem Photobiol. 88 (6), 1362-1372 (2012).
重印与许可
标签
