本研究介绍了一种在非麻醉的雄性C57BL/6小鼠中,通过脑电图(EEG)控制深睡眠或非快速眼动(NREM)睡眠阶段,实现脑内Aβ向周围淋巴系统(深部颈淋巴结,dcLNs)淋巴清除的新型便携式tPBM技术,适用于不同年龄的小鼠。
本文内容
摘要
摘要
脑膜淋巴管(MLVs)在清除大脑毒素方面发挥着重要作用。开发能够刺激MLV功能的创新技术,是治疗多种与MLV异常相关的脑部疾病(包括阿尔茨海默病和帕金森病、脑肿瘤、创伤性脑损伤以及颅内出血)的一个有前景的方向。睡眠是一种自然状态,在此状态下大脑的排水过程最为活跃。因此,在睡眠期间刺激大脑排水功能及MLVs可能产生最显著的治疗效果。然而,目前尚无此类商业化技术存在。
本研究介绍了一种新型便携式经颅光生物调节技术(tPBM),该技术在脑电图(EEG)监控睡眠状态下运行,旨在通过光刺激促进老年BALB/c小鼠脑内毒素(如可溶性淀粉样蛋白β(Aβ))的清除,并能够比较不同光学资源的治疗效果。该技术可在无需麻醉的自然条件下于小鼠的居家笼环境中使用,同时保持小鼠的运动活性。这些数据为开发无创且具有临床前景的光技术开辟了新的前景,可用于矫正与年龄相关的MLV功能及脑部引流过程的变化,并有效清除脑组织中的代谢产物和毒素。该技术既适用于睡眠脑功能的临床前研究,也适用于开发针对睡眠相关脑部疾病的临床治疗方案。
引言
脑膜淋巴管(MLVs)在清除脑组织中的毒素和代谢产物方面发挥着重要作用1,2,3。在多种脑部疾病(包括肿瘤、创伤性脑损伤、出血和神经退行性病变)中,MLVs的损伤常伴随其功能下降,从而促进这些病理过程的进展1,2,3,4,5,6。因此,开发能够刺激MLVs的方法,为有效治疗脑部疾病的新技术带来了广阔前景。近年来,已提出一种非侵入性的经颅光生物调节(tPBM)技术,可用于刺激MLVs并促进血液和Aβ等毒素从脑内清除5,7,8,9,10,11,12。值得注意的是,深度睡眠是激活脑内淋巴引流过程的天然因素13,14。基于这一事实,可以合理推测,在睡眠期间对MLVs进行tPBM干预可能比在清醒状态下产生更有效的治疗效果9,11,12,15。然而,目前尚无可用于睡眠期间实施tPBM的商业化技术16。此外,研究tPBM治疗效应的动物实验通常在麻醉状态下进行,以确保光能准确传递至脑组织。但麻醉会显著影响脑部的引流功能,从而降低研究结果的可靠性17。
Aβ 是正常神经活动的一种代谢产物18。在培养的大鼠皮层神经元中已证实,Aβ 以较高速率从神经元释放到细胞外空间(每神经元每秒释放 2-4 个 Aβ 分子)19。有证据表明,存在于细胞外和血管周围空间的可溶性 Aβ 对神经元和突触毒性最强20。可溶性 Aβ 在人体大脑中可在 1-2.5 小时内被迅速清除21。MLVs 是将可溶性 Aβ 从大脑中清除的通道1,7,其功能随年龄增长而下降,导致 Aβ 在老年大脑中积累1,22。有研究表明,大脑中 Aβ 水平的细胞外异常与衰老过程中的认知功能相关,并与阿尔茨海默病(AD)的发生发展有关23,24。因此,老年和年老的啮齿类动物被视为研究包括 AD 在内的淀粉样变性的转基因模型的替代方案25,26。
本研究介绍了一种原创的、可携带的经颅光生物调节(tPBM)技术,在脑电图(EEG)监测下作用于不同年龄的非麻醉雄性C57BL/6小鼠的深睡眠或非快速眼动(NREM)睡眠阶段,以促进脑内Aβ向周围淋巴系统(深部颈淋巴结,dcLNs)的淋巴清除。
方案
所有操作均按照 "实验动物护理和使用指南",欧盟关于用于科学目的动物保护的第2010/63/EU号指令,以及俄罗斯联邦科学与高等教育部的指南(Nº 742号,1984年11月13日),已获萨拉托夫国立大学生物伦理委员会批准(第7号协议,2022年9月22日)。
1. 硬件组装
- 将一块厚度为 1.5 mm 的箔片电木切割成 1.5 mm × 2 mm 的尺寸。该部件称为发光二极管(LED)印刷电路板(PCB)(图 1C)。
- 按照 图 1 所示,将 LED 焊接到 PCB 上。
- 将两根绞合铜线焊接到 LED 的引脚上,然后用套管覆盖。
- 打印出框架的 3D 模型(图 1A);将 LED(图 1B)和磁铁(图 1D)安装在框架上;将垫圈(图 1E)安装在小鼠头部。
- 按照以下步骤组装电路(图 2)。
- 首先,将电阻(图 2;R1)连接在 LED 阳极与 Arduino 的 5 V 端口之间。
- 接着,将 LED 阴极连接到金属氧化物半导体场效应晶体管(MOSFET)(图 2;Q1)的漏极,然后将 MOSFET 源极接地。
- 将下拉电阻(图 2;R2)连接在 MOSFET 栅极与地之间。最后,将 MOSFET 栅极连接到 Arduino 的第 3 引脚。
- 将液晶显示器(LCD)按键扩展板连接到 Arduino。
- 打印出外壳、盖板和按钮的 3D 模型。将带有 LCD 按键扩展板、MOSFET 和 LED 连接器的 Arduino 板插入外壳中,如 图 3 所示。
2. 软件指南(图4)
- 下载 Arduino 程序(.ino 文件),并通过 Arduino 集成开发环境(IDE)打开(补充代码文件 1)。
- 选择正确的通信(COM)端口,并烧录固件。
- 界面包含两列。使用 左 和 右 按钮在两列之间切换。选择指示符位于列的左侧。
- 屏幕左侧列为脉冲宽度调制(PWM)占空比选择区域。使用 上 和 下 按钮调节占空比。在 17 分钟的照射过程中,通过设置相应的 2%、4%、6% PWM 占空比,实现 10/20/30 Dj/cm2 的光生物调节剂量。
- 屏幕右侧列为 运行/关闭 区域。按键盘上的 右 按钮选择该列,然后按下 选择。当程序运行时,活动指示灯将闪烁,且 运行 按钮上的文字将变为 关闭。
注意:小鼠需经过为期 10 天的实验准备,包括植入脑电图(EEG)电极、在右侧侧脑室植入慢性导管以注射荧光标记的 Aβ,以及安装用于光生物调节的基板。
3. 脑电图记录系统植入(图5)
- 称取小鼠体重,并通过股部肌肉注射给予 Ketamine 和 Xylazine 混合物(分别为 100 mg/kg 和 10 mg/kg)进行麻醉。以 20 mg/mL 的浓度按 1.5 mL/kg 的剂量给予 Xylazine 作为术前镇痛。
- 当后肢回缩反射和尾部夹捏反应消失后,将小鼠置于立体定位仪中,并放置在加热垫上(图 5A)。
- 在眼睑处涂抹眼用软膏,以防止手术期间眼球干燥。必要时重复此操作。
- 使用剃毛器将从鼻骨至枕骨区域的头部剃毛,并用氯己定和酒精交替擦拭暴露的皮肤,各重复 3 次进行消毒。
- 使用直头解剖剪剪除头皮,用显微镊夹住并清理颅骨上的筋膜,再用棉签将其擦干。必要时使用止血剂。
- 使用直径为 1.3 mm 的钻头,在双侧颞骨上根据坐标钻两个孔:第一对螺钉的前后向(AP)坐标为 -1 mm,第二对螺钉的前后向(AP)坐标为 -3 mm。
- 将带导线的 EEG 螺钉放入酒精中浸泡 15 分钟,随后将其置于生理盐水中。
- 将四个镀银螺钉电极插入孔中,深度为 1 mm(图 5B)。
- 使用牙科丙烯酸树脂将螺钉固定在颅骨表面,使从螺钉引出的电极导线朝向动物鼻部(图 5C)。静置 15 分钟使牙科丙烯酸树脂固化。
- 使用牙科丙烯酸树脂将 EEG 记录传感器固定在动物鼻部。静置 30 分钟使牙科丙烯酸树脂完全固化(图 5D)。
- 使用弯头镊子将 EMG 电极放置在眼轮匝肌背部,并用牙科丙烯酸树脂固定。静置 15 分钟使树脂固化(图 5E)。
- 将 EEG 电极连接至传感器上的镀银凹槽,并使用焊台进行焊接。随后,用牙科丙烯酸树脂固定 EEG 电极(图 5F)。
- 手术后,将小鼠置于加热垫上以维持体温,直至其完全从麻醉中恢复。
- 术后将小鼠放入单独的饲养笼中,自由获取食物和饮水,并在术后 10 天内提供含布洛芬的饮水(40 mg/kg 溶于 200 mL 水中)以实现镇痛。
注意:每只动物均单独饲养,以防止小鼠相互干扰导致 EEG 记录系统变形。布洛芬通过饮水方式给予,以减少动物应激。
4. 光生物调节(PBM)用植入板的植入
- 在植入脑电图(EEG)记录系统7天后,称量小鼠体重,并通过股部肌肉注射给予氯胺酮和赛拉嗪混合物(分别为100 mg/kg和10 mg/kg)进行麻醉。以20 mg/mL浓度的赛拉嗪按1.5 mL/kg剂量给予术前镇痛。
- 当后肢回缩反射和尾部夹捏反应消失时,将小鼠固定于立体定位仪中。
- 在眼睑上涂抹眼用软膏,以防止手术期间眼球干燥。必要时重复此操作。
- 使用牙科丙烯酸树脂和Dumont镊子将直径为5 mm的金属板固定于颅骨枕骨部位。静置15分钟使牙科丙烯酸树脂硬化(图6)。
5. 慢性导管的制备
- 在胰岛素针头上标记一个距离斜面端2 cm的段落。
- 将胰岛素针头从斜面尖端一侧插入针头夹持器,直至标记段。
- 将一段2 cm长的PE-10聚乙烯导管套在针头剩余的整个长度上。
- 用生理盐水充满导管,并用塑料帽密封。
6. 将慢性导管植入右侧脑室
- 在植入PBM用基板后,使用钻头在坐标AP = -0.5 mm、ML = 1.2 mm处制作直径为1.5 mm的颅骨开窗孔。
- 将PE-10聚乙烯导管置于立体定位仪夹持器中,并插入小鼠颅骨内(DV = 2 mm)。随后使用牙科丙烯酸树脂固定导管,静置15分钟使其硬化(图7)。
- 手术后,将小鼠置于加热垫上以维持体温,直至其完全从麻醉中恢复。
- 之后,将小鼠放入单独的饲养笼中,自由获取食物和饮水,并在术后10天内提供含布洛芬的饮水(40 mg/kg,溶于200 mL水中)以进行镇痛。
注意:每只动物均单独饲养,以防止小鼠损坏脑电图记录系统。通过饮水给予布洛芬以减少动物应激。在恢复期(7天)内,对暴露的颅骨和软组织涂抹抗菌软膏,以防干燥。
7. 在非快速眼动睡眠脑电图监测下的经颅光生物调节治疗
- 将任意商用脑电图(EEG)记录系统连接至小鼠头部的连接器,并设定脉宽调制(PWM)占空比的要求值。
- 监测脑电图信号,并等待出现δ节律活动。若观察到非快速眼动(NREM)睡眠,则启动光生物调节(PBM)过程;当NREM睡眠转换为快速眼动(REM)睡眠或觉醒状态时,停止该过程。剂量随每次作用逐步增加,直至达到所需数值。
- 当达到所需的PBM剂量后,本次实验结束。
8. 小鼠脑内 Aβ 淋巴清除的共聚焦成像
- 将一根10 cm的导管连接到胰岛素针头上。
- 使用带有29 G针头的汉密尔顿注射器,准备5 µL体积的荧光标记β-淀粉样蛋白(FAβ),注入导管中。让导管保持连接在汉密尔顿注射器上。
- 固定小鼠肢体,并通过针头将导管连接至已植入的慢性导管。
- 将导管连接至微注射仪。随后,将小鼠放入单独的饲养盒中;
- 在微注射仪菜单中选择注射速率为0.1 µL/min,并按下开始按钮。
- 将FAβ注入右侧脑室。
- 给予FAβ后,使用LED进行61分钟的光生物调节(PBM),执行如下程序:光照17分钟,暂停5分钟,共循环61分钟。
- PBM结束后,通过尾静脉注射任意示踪剂以标记脑血管。
- 注射后,使用CO2安乐死舱对小鼠实施安乐死。
- 使用锋利的直剪刀,用直头无齿镊夹住皮肤,在气管沿线的皮肤上做一个小的横向切口。
- 用直剪刀沿颈部全长做纵向切口。
- 使用弯头镊子提起唾液腺,并小心地将其从结缔组织中分离。在切口的开放区域放置伤口牵开器,并固定,以便将周围组织向后推开。
- 使用两把弯头镊子从颈部两侧检查气管与胸锁乳突肌之间的区域。
- 当在每一侧检测到深部颈淋巴结(dcLN)时,使用钝头直镊取下dcLN,并从结缔组织上剪下。
- 将dcLN置于含有生理盐水的培养皿中,并用水平放置的盖玻片(25 mm × 50 mm × 0.17 mm)覆盖。
- 使用任意商用共聚焦显微镜获取完整dcLN的图像。
9. 脑组织裂解液中 Aβ 的分析
- 准备检测所需的样品。
- 使用 CO2 安乐死舱对小鼠实施安乐死。
- 将小鼠断头,去除头部皮肤,并剥离颅骨上的肌肉。
- 使用锋利的直剪刀从枕大孔向听道方向做两个切口。
- 用直镊子分离颅骨腹侧部分、枕骨以及构成中耳腔的骨骼。
- 用镊子将脑组织从顶骨和额骨上分离。
- 使用直剪刀去除上颌并剪除嗅球。
- 将脑组织置于生理溶液中。
- 用冷的磷酸盐缓冲液(PBS)冲洗脑组织,彻底去除多余血液,称重后进行匀浆处理。
- 配制 pH 7.2 的裂解缓冲液,其中包含 1.5 mm KH2PO4、8 mm Na2HPO4、3 mm KCl、137 mm NaCl、0.1% Tween20 和 10 mM EDTA,并加入新鲜配制的蛋白酶抑制剂混合物。
- 在冰上使用玻璃匀浆器将脑组织在新鲜裂解缓冲液中匀浆(每 200–500 mg 组织样品使用 1 mL 裂解缓冲液)。
- 使用超声波细胞破碎仪对所得悬浮液进行超声处理,直至溶液澄清。
- 将匀浆液在 10,000 × g 条件下离心 5 分钟。
- 使用单通道移液器(100–1000 µL)收集上清液,立即进行检测,或分装后储存于 ≤-20 °C 条件下。
- 准备以下材料:配备 450 nm ± 10 nm 滤光片的酶标仪;微量离心管;高精度单通道或多通道移液器及一次性吸头;用于吸干微孔板的吸水纸;洗涤液容器;0.01 mol/L(或 1x)磷酸盐缓冲液(PBS);去离子水或蒸馏水。
- 配制试剂。
- 使用前将试剂盒各组分及样品恢复至室温(RT;18–25 °C)。
- 用 1.0 mL 标准品稀释液溶解标准品,室温静置 10 分钟,并轻轻振荡(避免产生泡沫)。标准品储备液浓度为 300 pg/mL。准备 5 支试管,每管加入 0.6 mL 标准品稀释液,进行三倍系列稀释。
- 设置 5 个稀释标准品浓度点(300 pg/mL、100 pg/mL、33.33 pg/mL、11.11 pg/mL 和 3.70 pg/mL),最后一管仅含标准品稀释液作为空白对照(0 pg/mL)。
- 使用前将检测试剂 A 和检测试剂 B 原液短暂离心。分别用试剂 A 和 B 的稀释液按 100 倍稀释,配制成工作浓度。
- 将 20 mL 浓缩洗涤液(30x)与 580 mL 去离子水或蒸馏水混合,配制成 600 mL 的洗涤液(1x)。
- 使用无菌吸头吸取所需剂量的溶液,切勿将残余液体倒回原瓶中。
- 进行检测。
- 确定用于稀释标准品、空白对照和样品的微孔位置。
- 为标准品设置 5 个孔,空白对照设置 1 个孔。
- 分别向对应孔中加入 50 µL 标准品、空白对照和样品稀释液,随后立即向每孔加入 50 µL 检测试剂 A。
- 轻轻振荡酶标板(建议使用微孔板振荡器),并用封板膜覆盖。于 37 °C 孵育 1 小时。检测试剂 A 可能呈现浑浊状态,使用前可将其升温至室温并轻轻混匀至均匀透明。
- 吸除孔内液体,使用洗瓶、多通道移液器、多孔分配器或自动洗板机,每孔加入 350 µL 1x 洗涤液进行洗涤。静置 1–2 分钟后,将酶标板迅速倒扣在吸水纸上,彻底去除各孔中的残留液体。重复此步骤 3 次。
- 最后一次洗涤后,吸除或倾倒所有残留洗涤缓冲液。将酶标板倒置并在吸水纸上轻拍,确保完全去除洗涤液。
- 每孔加入 100 µL 检测试剂 B 工作液,用封板膜覆盖后于 37 °C 孵育 30 分钟。
- 重复上述吸液/洗涤步骤,共进行 5 次。
- 每孔加入 90 µL 底物溶液,并用新的封板膜覆盖。于 37 °C 避光孵育 10–20 分钟(不得超过 30 分钟)。加入底物溶液后,液体将变为蓝色。
- 每孔加入 50 µL 终止液以终止反应。加入终止液后,液体将变为黄色。轻敲酶标板侧面以混匀液体。若颜色变化不均,可轻轻敲击以确保充分混匀。
- 确保酶标板底部无水滴或指纹残留,且液体表面无气泡。立即在酶标仪上于 450 nm 波长处读取吸光度值。
- 计算结果。
- 计算每个标准品、对照和样品的复孔读数的平均值。以 Aβ 1-42 浓度的对数为 y 轴,吸光度为 x 轴绘制标准曲线。
- 通过回归分析绘制最佳拟合曲线。
- 若使用了稀释样品,则将标准曲线所得浓度乘以稀释倍数。
注:本研究中 ELISA 检测采用的是用于测定 Aβ 1-42 的试剂盒。
结果
第一步研究重点是确定有效光剂量(1050 nm LED)以促进清醒成年雄性BALB/c小鼠(2-3月龄,26-29 g)脑内荧光标记的Aβ通过淋巴系统清除至深颈部淋巴结(dcLNs)。根据我们先前关于经颅光生物调节(tPBM)对不同染料及红细胞从脑内清除作用的研究7,8,9,10,11,12,光剂量随机选择为10 J/cm2、20 J/cm2,和30 J/cm2。共聚焦成像结果如图8A-E所示,明确显示了tPBM对Aβ从脑部经淋巴系统清除至dcLNs具有剂量依赖性效应。由于在dcLNs中检测到更强的Aβ荧光信号,30 J/cm2光剂量被确定为比10 J/cm2和20 J/cm2光剂量更有效。
第二步的研究旨在利用便携式光照平台,通过不同波长(880 nm、1050 nm、1300 nm)和模式(1050 nm 连续和脉冲模式)但相同剂量(30 J/cm2)的光照,寻找最有效促进成年(2–3 月龄,26–29 g)清醒 BALB/c 雄性小鼠脑内荧光标记 Aβ 经淋巴系统清除的波长。图 9A–E 展示了各实验组深颈部淋巴结(dcLNs)的共聚焦成像结果。研究发现,与其它测试波长(880 nm 和 1300 nm)以及 1050 nm 连续模式相比,1050 nm 脉冲模式光照可显著增强荧光标记 Aβ 从脑部向深颈部淋巴结的清除效果。
在最后一步中,研究了在 EEG 监测非快速眼动睡眠(NREM)和清醒状态的条件下,1050 nm LED 脉冲模式照射在为期 10 天的经颅光生物调节治疗(tPBM)前后对老年小鼠脑内可溶性 Aβ 水平的影响。免疫分析结果显示,与成年雄性 BALB/c 小鼠(2–3 月龄,26–29 g)相比,老年雄性 BALB/c 小鼠(16–18 月龄,30–33 g)脑内的可溶性 Aβ 含量显著升高。在深度睡眠期间进行为期 10 天的 tPBM 治疗可有效将老年小鼠脑内的可溶性 Aβ 水平降低至成年小鼠脑内可溶性 Aβ 的水平,而在清醒状态下进行治疗则无此效果。图10).
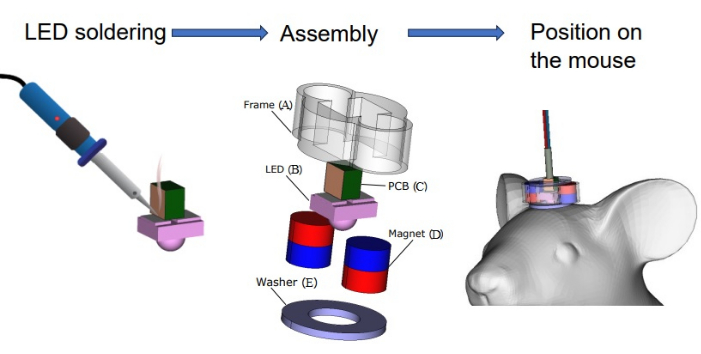
图1:硬件组装流程。(A)3D打印框架,(B)LED,(C)LED印刷电路板,(D)磁铁,(E)金属垫圈。请点击此处查看此图的放大版本。
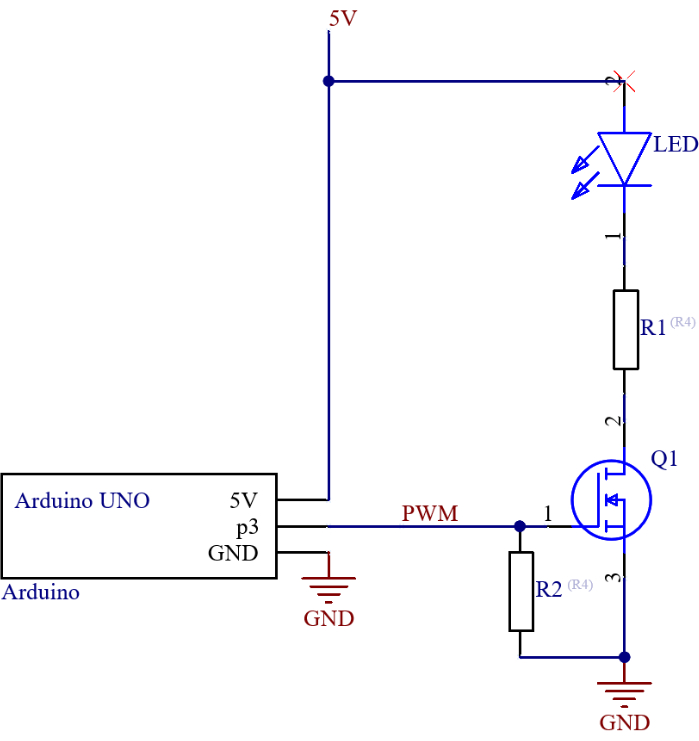
图2:LED 控制电路。 R1 — 电流调节电阻,R2 — MOSFET 栅极的下拉电阻,Q1 — n 沟道 MOSFET。 请点击此处查看此图的放大版本。
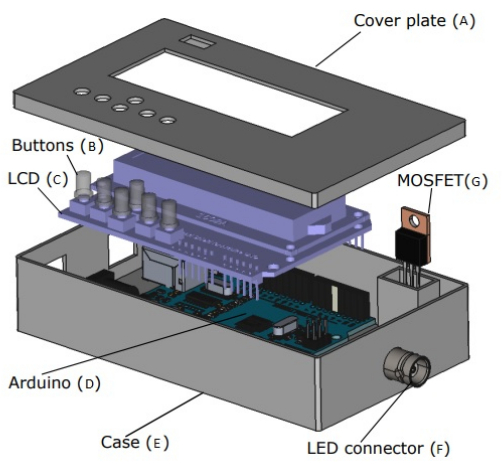
图3:外壳的三维视图。(A)3D打印的盖板,(B)3D打印的按钮,(C)Arduino用LCD按键扩展板,(D)Arduino主控板,(E)3D打印的外壳,(F)LED连接器,(G)沟道MOSFET。请点击此处查看此图的放大版本。
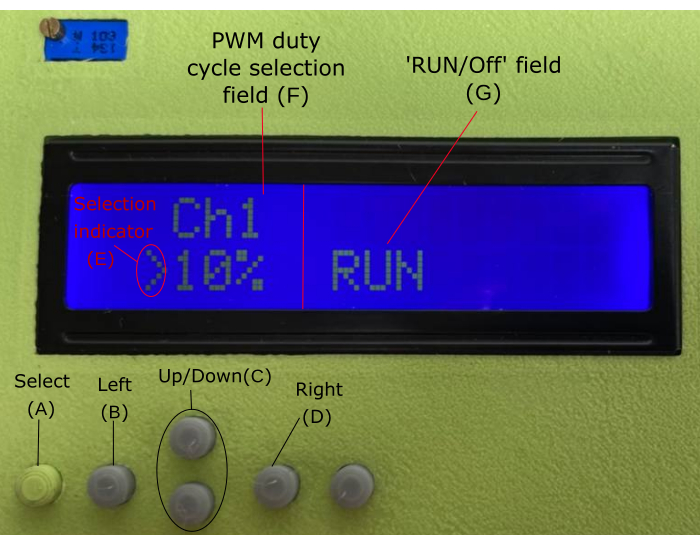
图 4:软件界面。(A)选择按钮,(B)左按钮,(C)上/下按钮,(D)右按钮,(E)选择指示符,(F)PWM 占空比选择区域,(G)运行/关闭区域。请点击此处查看此图的放大版本。
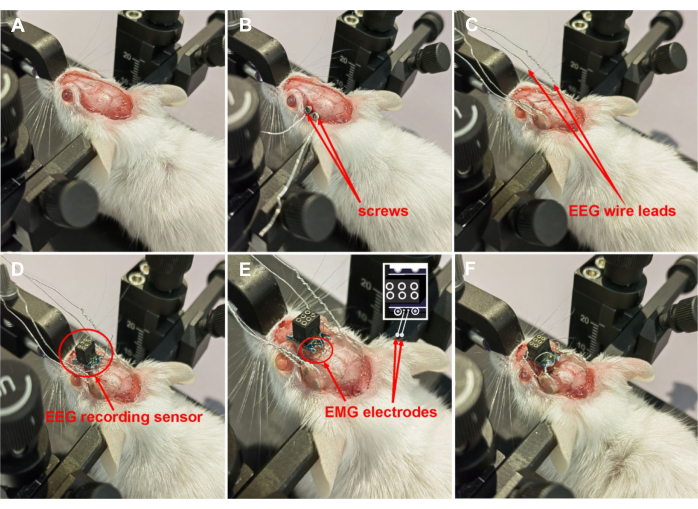
图5:脑电图记录系统的植入。(A)颅骨准备;(B)螺钉植入;(C)用牙科丙烯酸树脂固定螺钉;(D)脑电图记录传感器的固定;(E)在眼轮匝肌背部植入并固定肌电图电极;(F)将电极焊接到传感器的镀银凹槽中。请点击此处查看该图的放大版本。
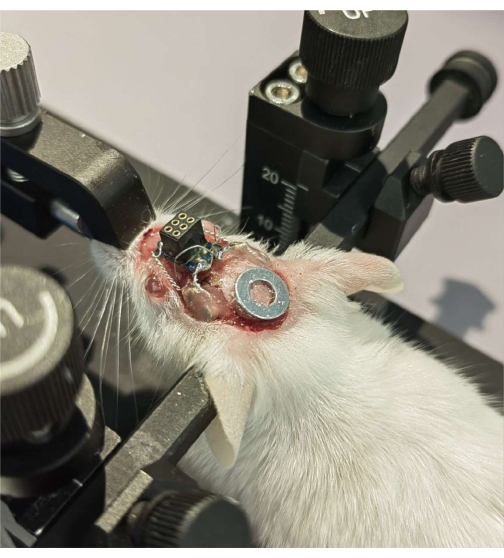
图 6:将 PBM 用固定板安装于颅骨枕骨部位。 请点击此处查看本图的放大版本。
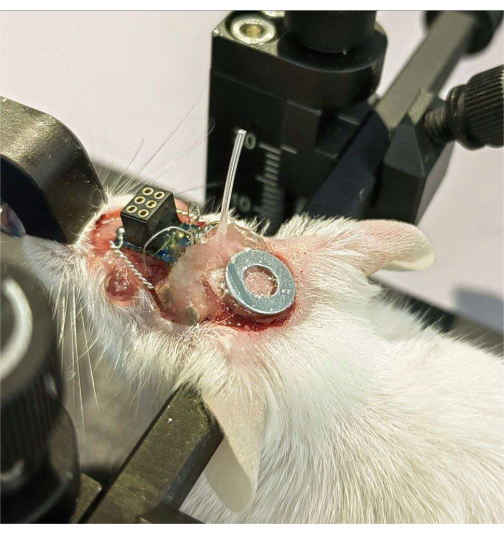
图 7:将慢性导管植入右侧脑室。 请点击此处查看该图的放大版本。
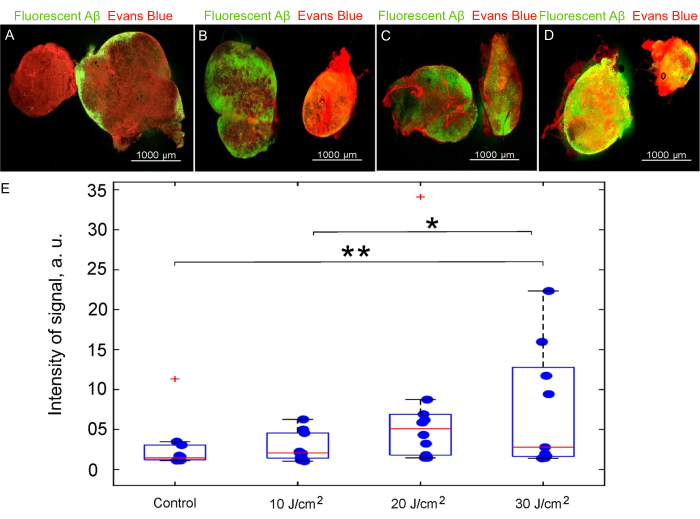
图8不同剂量LED 1050 nm照射对荧光标记Aβ从脑部向深部颈淋巴结(dcLNs)淋巴清除的影响 (A-D) 代表性图像显示来自 (A对照组和PBM组B10 J/cm²2, (C20 J/cm2,以及(D30 J/cm²2; (E) 定量分析各实验组小鼠dcLNs中荧光标记Aβ的累积情况(n = 8,单因素方差分析,Duncan事后检验,**p < 0.01,***p < 0.001) < 0.01,*p < 0.05). 请点击此处以查看此图的放大版本。
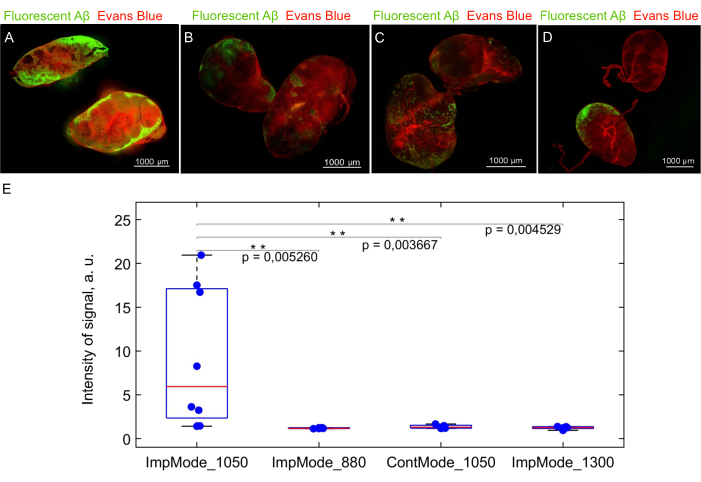
图9不同LED波长对荧光标记Aβ从脑部向深部颈部淋巴结清除的影响 (A-D) PBM组采用1050 nm脉冲模式(ImpMode_1050)的dcLNs代表性图像 A),880 nm(ImpMode_880, B),1300 nm(ImpMode_1300, C)和连续模式 1050 nm(ContMode_1050 nm, D); (E) 定量分析各实验组小鼠dcLNs中荧光标记Aβ的积聚情况(n = 8,单因素方差分析,Duncan事后检验,**p < 0.01,***p < 0.001) < 0.01). 请点击此处以查看此图的放大版本。
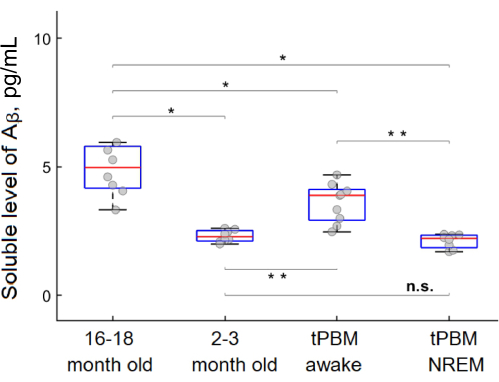
图10:脉冲模式下1050 nm LED光源的PBM效应(30 J/cm2)对成年和老年小鼠大脑中可溶性Aβ(pg/mL)水平在NREM睡眠期和清醒状态下的影响。 采用单因素方差分析(ANOVA)及Duncan事后检验,**p < 0.01,*p < 0.05。 请点击此处查看该图的放大版本。
补充代码文件 1:lcd1key.ino 请点击此处下载该文件。
讨论
MLV 是开发创新技术的重要靶点,用于调节大脑的引流功能并清除脑内细胞碎片和代谢废物,尤其是在 MLV 功能衰退的老年个体中尤为关键1,22。在稳态条件下,深度睡眠与大脑组织自然清洁的激活密切相关13,14。因此,可以合理预期,在深度睡眠期间刺激 MLV 的效果将优于清醒状态15,16。本文介绍了一种新型的、非侵入性且便携的技术——在 EEG 监测睡眠状态下,采用 tPBM 刺激老年雄性小鼠大脑中可溶性 Aβ 的淋巴清除。
该光平台体积小(7 mm × 11 mm)、重量轻(1 g),可牢固且稳定地安装在小鼠头部,同时保持其自然的运动活动。这还消除了在经颅光生物调节治疗(tPBM)过程中使用麻醉的需要。在深度睡眠期间进行tPBM时,可使用任何商用设备对睡眠阶段进行脑电图(EEG)监测。因此,我们的技术允许在动物的居家饲养笼中开展研究,最大限度地维持其最自然的生活条件。
在第一步中,随机选择波长为1050 nm的LED,用于研究光效应在清醒成年(2-3月龄)小鼠中促进荧光标记的Aβ从脑部经淋巴系统清除至深颈部淋巴结(dcLNs)的有效剂量。选择该波长是基于先前使用1267 nm激光有效刺激脑膜淋巴管(MLVs)的研究数据8,10,27,28,29,30,31,32,33,34。该波长可在脑组织及其脑膜中少量直接生成单线态氧,这是MLVs光生物调节(PBM)的作用机制之一8,28,34。然而,1267 nm激光和1050 nm LED的生物学效应均与单线态氧的激发生成有关35。实际上,1267 nm ± 20 nm激光和1065 nm ± 15 nm LED的波段均与氧分子从基态生成单线态氧的过程相关。1267 nm激光可直接将氧分子泵浦至第一激发单线态,而1065 nm LED对应的则是额外的振动能,该能量迅速衰减并以热的形式释放到环境中。此外,1065 nm波长处的水吸收率比1267 nm波长处低十倍,因此更适用于生物研究35。此外,1050 nm LED在市场上可广泛获得,且成本远低于稀有且昂贵的1267 nm激光器。需注意,本研究中所用1050 nm LED的发射带宽为40 nm,仅部分与单线态氧的吸收带重叠。然而,我们已证实使用1050 nm LED(30 J/cm2)进行经颅光生物调节(tPBM)可显著促进荧光标记Aβ从脑部向dcLNs的淋巴清除。根据dcLNs中Aβ荧光信号强度更高,确定30 J/cm2的光照剂量相较于10 J/cm2和20 J/cm2更为有效。因此,1050 nm LED在将tPBM技术应用于人类方面具有重要价值,这也符合当前以LED替代激光进行光生物调节的普遍趋势36,37。
第二步研究旨在回答何种光波长对成年清醒小鼠脑内荧光标记的 Aβ 经淋巴系统清除最为有效。该部分研究采用便携式光照平台,使用不同波长(880 nm、1050 nm、1300 nm)及模式(1050 nm 连续波与脉冲模式),且保持相同剂量(30 J/cm2)。选择这些波长的原因在于,880 nm 在临床实践中已广泛用于经颅光生物调节治疗(tPBM),而 1300 nm 属于新型昂贵发光二极管(LED),可能具有潜在临床意义。此外,仅针对 1050 nm LED 光源比较了脉冲模式与连续模式的效果。这些数据明确表明,与其他波长以及 1050 nm 连续模式相比,仅 1050 nm 脉冲模式 LED 可显著促进 Aβ 从脑组织向深颈部淋巴结(dcLNs)的淋巴清除。该结果与其他研究者的发现一致,后者也指出采用脉冲式光生物调节(PBM)更有利于实现有效的生物学效应38,39,40。
在最后一步中,当确定了有效波长、剂量和模式后,研究了在 EEG 监测非快速眼动睡眠(NREM)和清醒状态的条件下,脉冲模式下 1050 nm LED 经颅光生物调节治疗(tPBM)10 天疗程前后对老年小鼠脑内可溶性 Aβ 水平的影响。免疫分析结果显示,老年小鼠(16–18 月龄)脑内的可溶性 Aβ 含量显著高于成年小鼠(2–3 月龄)。值得注意的是,在深睡眠期间进行 10 天的 tPBM 治疗能够有效降低老年小鼠脑内的可溶性 Aβ 水平,使其达到成年小鼠脑内可溶性 Aβ 的水平,而在清醒期间进行治疗则无此效果。其他研究也观察到健康小鼠和大鼠随着年龄增长,脑组织中 Aβ 含量增加25,26,这可能与年龄相关的脑膜淋巴管(MLV)功能下降有关,导致这种毒性蛋白无法有效从脑组织中清除1,22。相比清醒小鼠,睡眠小鼠经 tPBM 治疗后更有效地清除脑组织中的可溶性 Aβ,这可归因于睡眠期间脑组织引流功能的自然激活。MLV 的形态随年龄发生显著变化,导致老年脑组织中代谢产物的淋巴清除能力下降22。然而,在睡眠期间进行 tPBM 治疗有助于恢复衰老小鼠脑组织中可溶性 Aβ 的淋巴清除能力,使其达到成年动物的水平。
考虑到光能在穿过颅骨时会发生散射,经颅光生物调节疗法(tPBM)的作用仅限于脑膜淋巴管(MLVs),而无法深入穿透至脑组织内部。然而,尽管目前尚未在人类和动物的脑组织中直接发现淋巴管,越来越多的证据正不断揭示脑淋巴系统存在的可能性41,42,43,44。这可以解释为何毒素(如血液成分和Aβ)能够从脑深部结构(如脑室系统、海马)被清除至MLVs,并进一步转运至外周(dcLNs)5,7。一个多世纪以来积累的知识表明,脑部引流系统与外周淋巴系统之间存在密切联系45。即使在中枢神经系统中尚未确立被广泛认可的淋巴网络的情况下,已有事实表明大分子物质可从脑深部向外周进行淋巴性清除1,2,3,4,5,6,7 。这也解释了为何tPBM尽管仅作用于MLVs,仍能促进血液成分和Aβ从脑内清除5,7。
综上所述,本研究提出了一种在脑电图(EEG)控制睡眠条件下、可便携使用的经颅光生物调节(tPBM)技术,通过老年小鼠脑内可溶性Aβ清除的实例,实现了对不同光学资源治疗效果的比较。该技术可在无需麻醉的情况下于小鼠的居家饲养笼内自然条件下使用,同时保持小鼠正常的自主运动活动。这些数据为开发无创且具有临床前景的光调控技术开辟了新的方向,可用于纠正与年龄相关的脑膜淋巴管(MLV)功能及脑部引流过程的改变,并有效清除脑组织中的代谢产物和毒素。所提出的促进脑部引流及淋巴系统清除脑内毒素的光刺激技术,由于光能穿过颅骨时会发生散射,因而对MLV的作用效果有限。因此,该技术可用于开发针对与MLV功能障碍相关脑部疾病的新治疗方法。MLV最显著的光刺激效应出现在深度(非快速眼动,NREM)睡眠期间,这要求在EEG监控下实施光生物调节(PBM),从而带来了某些技术与编程上的挑战,即需同时精确控制深度睡眠的起始时机与光照干预的施加。
披露
作者无任何利益冲突需要披露。
致谢
本研究由俄罗斯科学基金会资助(项目编号:23-75-30001)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.1% Tween20 | Helicon, 俄罗斯 | SB-G2009-100ML | |
| 导管 | Scientific Commodities Inc., 美国 | PE-10, 0.28 mm 内径 × 0.61 mm 外径 | |
| CO2 培养箱 | Binder, 德国 | CB-S 170 | |
| 共聚焦显微镜 | Nikon, 日本 | A1R MP | |
| 牙科丙烯酸树脂 | Zermack, 波兰-俄罗斯 | Villacryl S, V130V4Z05 | |
| 钻机 | Foredom, 俄罗斯 | SR W-0016 | |
| Dumont 镊子 | Stoelting, 美国 | 52100-07 | |
| 伊文思蓝染料 | Sigma-Aldrich, 圣路易斯, 密苏里州, 美国 | 206334 | |
| Hamilton | Hamilton Bonaduz AG, 瑞士 | 29 G 针头 | |
| 布洛芬 | Sintez OJSC, 俄罗斯 | 无 | 镇痛药物 |
| 胰岛素针头 | INSUPEN, 意大利 | 31 G, 0.25 mm x 6 mm | |
| 左旋美科抗菌软膏 | Nizhpharm | D06C | 外用,剂量为 40 mg/g,每日 1 次 |
| 微型镊子 | Stoelting, 美国 | 52102-02P | |
| 微量离心机 | Gyrozen, 韩国 | GZ-1312 | |
| 微量注射器 | Stoelting, 美国 | 53311 | |
| 钝头镊子 | Stoelting, 美国 | 52108-83P | |
| PINNACLE 系统 | Pinnacle Technology, 美国 | 8400-K3-SL | 用于记录小鼠脑电图(2 通道)和肌电图(1 通道)的系统 |
| 剃毛机 | Braun | Series 3310s | |
| 单通道和多通道移液器 | Eppendorf, 奥地利 | Epp 3120 000.020, Epp 3122 000.019 | |
| 氯化钠 | Kraspharma, 俄罗斯 | 无 | |
| 焊接站 | AOYUE, 中国 | 无 | |
| 立体定位仪 | Stoelting, 美国 | 51500 | |
| 直头解剖剪 | Stoelting, 美国 | 52132-10P | |
| 四环素 | JSC Tatkhimfarmpreparaty, 俄罗斯 | 无 | 眼膏 |
| 镊子 | Stoelting, 美国 | 52100-03 | |
| 超声波细胞破碎仪 | Biobase, 中国 | USD-500 | |
| 伤口牵开器 | Stoelting, 美国 | 52125 | |
| Xylanit | Nita-Farm, 俄罗斯 | 无 | 肌肉松弛剂 |
| Zoletil 100 | Virbac Sante Animale, 法国 | 无 | 全身麻醉剂 |
参考文献
- Da Mesquita, S., et al. Functional aspects of meningeal lymphatics in ageing and Alzheimer's disease. Nature. 560 (7717), 185-191 (2018).
- Chen, J., et al. Meningeal lymphatics clear erythrocytes that arise from subarachnoid hemorrhage. Nat Commun. 11, 3159(2020).
- Zou, W., et al. Blocking meningeal lymphatic drainage aggravates Parkinson's disease-like pathology in mice overexpressing mutated α-synuclein. Transl Neurodegener. 8, 7(2019).
- Hu, X., et al. Meningeal lymphatic vessels regulate brain tumor drainage and immunity. Cell Res. 30 (3), 229-243 (2020).
- Dong-Yu, L., et al. Photostimulation of brain lymphatics in male newborn and adult rodents for therapy of intraventricular hemorrhage. Nat Comm. 14 (1), 6104(2023).
- Bolte, A., et al. Meningeal lymphatic dysfunction exacerbates traumatic brain injury pathogenesis. Nat Commun. 11 (1), 4524(2020).
- Semyachkina-Glushkovskaya, O., et al. Mechanisms of phototherapy of Alzheimer's disease during sleep and wakefulness: the role of the meningeal lymphatics. Front Optoelectron. 16, 22(2023).
- Dongyu, L., et al. Photostimulation of lymphatic clearance of β- amyloid from mouse brain: new strategy for the therapy of Alzheimer's disease. Front Optoelectron. 16, 45(2023).
- Semyachkina-Glushkovskaya, O., et al. Mechanisms of phototherapy of Alzheimer's disease during sleep and wakefulness: the role of the meningeal lymphatics. Front Optoelectron. 16, 22(2023).
- Semyachkina-Glushkovskaya, O., et al. Intranasal delivery of liposomes to glioblastoma by photostimulation of the lymphatic system. Pharmaceutics. 15 (1), 36(2023).
- Semyachkina-Glushkovskaya, O., et al. Night photostimulation of clearance of beta-amyloid from mouse brain: New strategies in preventing Alzheimer's disease. Cells. 10 (12), 3289(2021).
- Semyachkina-Glushkovskaya, O., et al. Technology of the photobiostimulation of the brain's drainage system during sleep for improvement of learning and memory in male mice. Biomed Opt Express. 15 (1), 44-58 (2024).
- Fultz, N., et al. Coupled electrophysiological, hemodynamic, and cerebrospinal fluid oscillations in human sleep. Science. 366 (6465), 628-631 (2019).
- Xie, L., et al. Sleep drives metabolite clearance from the adult brain. Science. 342 (6156), 373-377 (2013).
- Semyachkina-Glushkovskaya, O., et al. Phototherapy of Alzheimer's disease: Photostimulation of brain lymphatics during sleep: A systematic review. Int J Mol Sci. 24 (13), 10946(2023).
- Semyachkina-Glushkovskaya, O., et al. Brain waste removal system and sleep: Photobiomodulation as an innovative strategy for night therapy of brain diseases. Int J Mol Sci. 24 (4), 3221(2023).
- Hablitz, L. M., et al. Increased glymphatic influx is correlated with high EEG delta power and low heart rate in mice under anesthesia. Sci Adv. 5 (2), 5447(2019).
- Fukumoto, H., et al. Primary cultures of neuronal and non-neuronal rat brain cells secrete similar proportions of amyloid beta peptides ending at A beta40 and A beta42. Neuroreport. 10 (14), 2965-2969 (1999).
- Moghekar, A., et al. Large quantities of Abeta peptide are constitutively released during amyloid precursor protein metabolism in vivo and in vitro. J Biol Chem. 286 (16), 15989-15997 (2011).
- Wells, C., Brennan, S., Keon, M., Ooi, L. The role of amyloid oligomers in neurodegenerative pathologies. Int J Biol Macromol. 181, 582-604 (2021).
- Savage, M., et al. Turnover of amyloid beta-protein in mouse brain and acute reduction of its level by phorbol ester. J Neurosci. 18 (5), 1743-1752 (1998).
- Ahn, J., et al. Meningeal lymphatic vessels at the skull base drain cerebrospinal fluid. Nature. 572 (7767), 62-66 (2019).
- Stevens, D., et al. Regional amyloid correlates of cognitive performance in ageing and mild cognitive impairment. Brain Commun. 4 (1), 016(2022).
- Ma, C., Hong, F., Yang, S. Amyloidosis in Alzheimer's disease: Pathogeny, etiology, and related therapeutic directions. Molecules. 27 (4), 1210(2022).
- Kobro-Flatmoen, A., Hormann, T., Gouras, G. Intracellular amyloid-β in the normal rat brain and human subjects and its relevance for Alzheimer's disease. J Alzheimers Dis. 95 (2), 719-733 (2023).
- Ahlemeyer, B., Halupczok, S., Rodenberg-Frank, E., Valerius, K., Baumgart-Vogt, E. Endogenous murine amyloid-β peptide assembles into aggregates in the aged C57BL/6J mouse suggesting these animals as a model to study pathogenesis of amyloid-β plaque formation. J Alzheimers Dis. 61 (4), 1425-1450 (2018).
- Zhinchenko, E., et al. Pilot study of transcranial photobiomodulation of lymphatic clearance of beta-amyloid from the mouse brain: Breakthrough strategies for nonpharmacologic therapy of Alzheimer's disease. Biomed Opt Express. 10 (8), 4003-4017 (2019).
- Semyachkina-Glushkovskaya, O., et al. Transcranial photobiomodulation of clearance of beta-amyloid from the mouse brain: Effects on the meningeal lymphatic drainage and blood oxygen saturation of the brain. Adv Exp Med Biol. 1269, 57-61 (2021).
- Semyachkina-Glushkovskaya, O., et al. Photobiomodulation of lymphatic drainage and clearance: Perspective strategy for augmentation of meningeal lymphatic functions. Biomed Opt Express. 11 (2), 725-734 (2020).
- Zhinchenko, E., et al. Photostimulation of extravasation of beta-amyloid through the model of blood-brain barrier. Electronics. 9 (6), 1056(2020).
- Semyachkina-Glushkovskaya, O., et al. Photostimulation of cerebral and peripheral lymphatic functions. Transl Biophotonics. 2 (1-2), e201900036(2020).
- Semyachkina-Glushkovskaya, O., et al. Photomodulation of lymphatic delivery of liposomes to the brain bypassing the blood-brain barrier: New perspectives for glioma therapy. Nanophotonics. 10 (12), 3215-3227 (2021).
- Semyachkina-Glushkovskaya, O., et al. Photomodulation of lymphatic delivery of Bevacizumab to the brain: The role of singlet oxygen. Adv Exp Med Biol. 1395, 53-57 (2022).
- Semyachkina-Glushkovskaya, O., et al. Transcranial photosensitizer-free laser treatment of glioblastoma in rat brain. Int J Mol Sci. 24 (18), 13696(2023).
- Blázquez-Castro, A. Direct 1O2 optical excitation: A tool for redox biology. Redox Biol. 13, 39-59 (2017).
- Spitler, R., Berns, M. Comparison of laser and diode sources for acceleration of in vitro wound healing by low-level light therapy. J Biomed Opt. 19 (3), 038001(2014).
- Sato, K., Watanabe, R., Hanaoka, H., Nakajima, T., Choyke, P., Kobayashi, H. Comparative effectiveness of light emitting diodes (LEDs) and Lasers in near infrared photoimmunotherapy. Oncotarget. 7 (12), 14324-14335 (2016).
- Keshri, G., Gupta, A., Yadav, A., Sharma, S., Singh, S. Photobiomodulation with pulsed and continuous wave near-infrared laser (810 nm, Al-Ga-As) augments dermal wound healing in immunosuppressed rats. PLoS One. 11 (11), e0166705(2016).
- Kim, H., et al. Pulse frequency dependency of photobiomodulation on the bioenergetic functions of human dental pulp stem cells. Sci Rep. 7 (1), 15927(2017).
- Chen, Z., et al. The pulse light mode enhances the effect of photobiomodulation on B16F10 melanoma cells through autophagy pathway. Lasers Med Sci. 38 (1), 71(2023).
- Mezey, E., et al. An immunohistochemical study of lymphatic elements in the human brain. Proc Natl Acad Sci U S A. 118 (3), e2002574118(2021).
- Chang, J., et al. Characteristic features of deep brain lymphatic vessels and their regulation by chronic stress. Research. 6, 0120(2023).
- Prineas, L. W. Multiple sclerosis: Presence of lymphatic capillaries and lymphoid tissue in the brain and spinal cord. Science. 203 (4385), 1123-1125 (1979).
- Semyachkina-Glushkovskaya, O., et al. Pilot identification of the Live-1/Prox-1 expressing lymphatic vessels and lymphatic elements in the unaffected and affected human brain. bioRxiv. , 458990(2021).
- Semyachkina-Glushkovskaya, O., Postnov, D., Kurths, J. Blood-brainbarrier, lymphatic clearance, and recovery: Ariadne's thread in labyrinths of hypotheses. Int J Mol Sci. 19 (12), 3818(2018).
重印与许可
