我们介绍一种用于测量视网膜色素上皮(RPE)细胞培养中耗氧率(OCR)的新型装置。该装置可在标准细胞培养板上使用标准培养基,在标准细胞培养箱中连续数周对RPE细胞进行OCR测量。
方法文章
高度分化且极化的视网膜色素上皮细胞培养物中耗氧率的长期监测
* These authors contributed equally
本文内容
摘要
摘要
线粒体代谢对视网膜色素上皮(RPE)的正常功能至关重要,RPE 是视网膜中一层单层细胞,对光感受器的存活具有重要作用。RPE 线粒体功能障碍是年龄相关性黄斑变性(AMD)和增殖性玻璃体视网膜病变(PVR)的典型特征,其中 AMD 是发达国家不可逆失明的首要原因,而 PVR 是视网膜脱离的一种致盲性并发症。RPE 退行性疾病已可通过高度分化且具有极性的 RPE 培养系统进行良好建模,以模拟体内(in vivo)RPE 的状态。然而,在此类培养系统中监测氧消耗率(OCR)——即线粒体功能的间接指标——一直存在困难,因为促进 RPE 理想极化和分化的培养条件不利于 OCR 的便捷测量。
本文介绍了一种新型系统Resipher,该系统可在标准细胞培养箱中,于最佳生长基质和生理培养基条件下,对高度分化的视网膜色素上皮(RPE)细胞进行长达数周的氧消耗率(OCR)监测。该系统通过测量细胞上方培养基中的氧浓度梯度来计算OCR。我们讨论了该系统相较于其他OCR检测方法的优势,以及如何在RPE培养中建立该系统的测量流程。同时,本文涵盖了使用该系统的关键技巧与注意事项,对数据解读的警示,以及针对异常结果的故障排除指南。
我们还提供一个在线计算器,可根据系统检测到的细胞培养基上方的氧气梯度,推算出RPE细胞培养所经历的缺氧、常氧或高氧水平。最后,我们回顾了该系统的两个应用:一是在增殖性玻璃体视网膜病变(PVR)模型中测量RPE细胞的代谢状态,二是研究RPE细胞在代谢上如何适应缺氧环境。我们预期,将该系统应用于高度极化和分化的RPE细胞培养,将有助于加深对RPE线粒体代谢在生理和疾病状态下的理解。
引言
视网膜色素上皮(RPE)是一层功能上终末分化的、高度极化的上皮细胞,形成视网膜中光感受器与其血液供应——即脉络膜毛细血管床——之间的屏障。与胶质细胞支持神经元的作用类似,RPE 执行多种功能以支持光感受器,包括吞噬光感受器外节段、向光感受器转运营养物质并提供代谢支持,以及分泌维持视觉功能所必需的多种生长因子,这些功能对于维持正常视觉至关重要。
视网膜色素上皮(RPE)的退化是多种常见视觉退行性疾病的基础。在年龄相关性黄斑变性(AMD)中,RPE发生死亡,导致其上方的光感受器继发性退化;而AMD是全球范围内不可治愈性视力丧失最常见的原因之一。在增殖性玻璃体视网膜病变(PVR)中,RPE则脱离其原本静止的终末分化状态,增殖并去分化为间充质样状态(即所谓的上皮-间充质转化[EMT]),同时伴随代谢改变。RPE的去分化不仅导致其对光感受器的支持功能丧失,还会诱发更显著的纤维化状态。这最终引起光感受器退化以及RPE介导的瘢痕形成,二者均导致视力丧失1,2。
视网膜色素上皮(RPE)对光感受器的支持作用在很大程度上是代谢性的,而代谢失调是包括年龄相关性黄斑变性(AMD)和增殖性玻璃体视网膜病变(PVR)在内的多种视网膜疾病的关键因素。RPE在光感受器与其氧气和营养来源——脉络膜毛细血管之间起到调控屏障的作用。因此,RPE选择自身代谢的物质,以及选择从脉络膜毛细血管传递给光感受器的物质,极大地决定了光感受器的代谢活动和存活状态。大量研究表明,RPE的正常功能高度依赖线粒体代谢,而光感受器则主要依赖糖酵解3。这引出了光感受器与RPE之间存在互补且相互交织的代谢状态的概念。具体而言,RPE会减少对光感受器优先利用的代谢底物的消耗,转而利用光感受器代谢产生的副产物以及光感受器未消耗的代谢物。在PVR和AMD等疾病中,有强有力证据表明RPE变得更加依赖糖酵解,而对线粒体代谢的依赖性降低;这种向糖酵解的转变可能导致光感受器缺乏所需的代谢物,从而引发退行性变4,5,6。鉴于RPE与光感受器代谢之间的高度相互依赖性,以及代谢改变在视网膜疾病中的重要作用,目前人们高度关注通过建模和调控RPE代谢来实现治疗目的。
尽管在活体(in vivo)条件下研究视网膜色素上皮(RPE)线粒体代谢是最理想的,但许多RPE线粒体代谢方面的研究实际上只能在体外(in vitro)培养系统中进行。在过去几十年中,高保真度RPE培养技术已取得显著进展,目前最优化的RPE培养体系已被用于人类临床试验中的细胞替代治疗7。为了维持这种高保真度的培养状态,RPE细胞需要在特定的培养基和特定的基质上生长数月,才能进行后续实验。在这些条件下,RPE培养细胞达到最大程度的分化和极化状态,接近活体(in vivo)中的RPE特性。然而,目前尚无任何设备能够专门在活体(in vivo)中直接测量RPE的线粒体代谢。尽管已利用电子顺磁共振(EPR)测氧技术实现了对视网膜毛细血管网络的活体(in vivo)氧监测8,但该方法无法用于RPE的分析。RPE在活体(in vivo)与体外(in vitro)条件下的代谢差异尚未被充分描述,但已有研究表明,RPE培养细胞具有较高的线粒体活性,与活体(in vivo)RPE相似3,9,提示利用高保真度RPE培养体系可深入揭示RPE线粒体代谢的特征。
由于所有线粒体代谢均会导致氧气消耗,因此测量视网膜色素上皮(RPE)的氧消耗率(OCR)可作为线粒体代谢的可靠指标。然而,在RPE培养体系中测量OCR一直存在困难,因为促进RPE最大程度极化和分化的培养条件,往往与现有技术(如Seahorse分析仪)所要求的长期精确OCR测量条件相冲突。在本方法学论文中,我们介绍了一种新型装置,称为Resipher(下文简称"该系统"),该系统能够在促进RPE最大程度极化和分化的培养条件下,连续数周对OCR进行实时监测。在现有OCR测量设备中,该系统首次实现了在最大程度促进RPE分化与极化的培养条件下便捷地进行OCR测量。
本文提供了将该系统用于视网膜色素上皮(RPE)培养的操作技巧,并随后展示了两个具体应用实例。首先,通过暴露于转化生长因子-β(TGFβ)诱导RPE上皮-间质转化(EMT),以模拟增殖性玻璃体视网膜病变(PVR)。1,10,11,12该系统用于监测视网膜色素上皮(RPE)代谢在上皮-间质转化(EMT)过程中的演变。其次,利用该系统探讨缺氧在RPE代谢中的作用。缺氧是年龄相关性黄斑变性(AMD)发病机制中的重要因素,因为脉络膜毛细血管丛随年龄增长而变薄13,14将该系统与缺氧培养舱结合,可模拟伴随衰老过程的轻度缺氧状态下视网膜色素上皮(RPE)线粒体代谢的改变。最后,本文介绍了一种基于Resipher数据的在线计算器,可用于判断RPE细胞培养处于缺氧、常氧还是高氧环境。此类信息对于从RPE代谢研究中得出任何结论至关重要 体外 视网膜色素上皮细胞培养研究
方案
有关建立人原代或iPSC-RPE培养物的实验方案,请参见以下参考文献15,16,17,18。这些方案中人组织的获取和使用已通过密歇根大学机构审查委员会(HUM00105486)的审查并获准。
1. 该系统在RPE培养中的通用应用
- 将人诱导多能干细胞(iPSC)来源的视网膜色素上皮(RPE)细胞或原代人RPE细胞接种于与系统兼容的96孔板中。
- 假设已在24孔细胞培养板上培养成熟的细胞,用磷酸盐缓冲液(PBS)洗涤细胞一次,然后加入500 µ0.25% 胰蛋白酶-EDTA 溶液材料表在细胞培养孵育箱中孵育10–40分钟,每5–10分钟检查一次,直至细胞变圆且几乎准备脱落。
- 轻轻吹打培养基使细胞从细胞培养塑料表面脱落,随后转移至3倍体积的细胞培养基(1,500 µ升/24孔),在离心机中以250 × g离心沉淀 × g 室温下持续5分钟。
注意:RPE细胞培养基的配方详见于 表1 以及在先前已发表的参考文献中可获取9,15,16,17,18. - 用含15%胎牛血清(FBS)的RPE细胞培养基重悬细胞,并用血细胞计数板计数细胞。
- 每96孔板每孔接种74,000个细胞(通常为225–300 × 105 细胞/平方厘米2),在使用高度特化的细胞外基质包被底物包被后(材料表按照制造商的说明进行操作。
注意:仅在与 Resipher 兼容的培养板上接种细胞(材料表)且仅限于与传感盖板上的探针阵列相对应的孔(32通道盖板为第3、4、9和10列;参见 材料表)。该系统的传感盖可配备4、32或96通道传感器(传感器位置见图示 图1A- D),且兼容多种标准细胞培养板。 - 由于边缘孔容易发生蒸发,从而显著影响氧气供应及氧消耗率(OCR)的检测结果,因此应避免在所有边缘孔(96孔板的A行和H行)接种细胞。此外,加入200 µ在96孔板的每个空孔中加入L的无菌水,以减少蒸发效应。
- 将培养板置于稳定的台面上静置10分钟,使细胞沉降,然后放回培养箱。24–72小时后更换培养基,替换为含5% FBS的标准RPE培养基。培养至少4周,每周更换培养基两次。
注意: 细胞在呈现色素沉着、鹅卵石样形态且高度致密时,即可用于实验图1E).
- 使用系统进行设置与数据采集
- 将传感盖板置于空的96孔接收板上,然后将其放回细胞培养孵育箱中。将设备与传感盖板对齐并安装,并通过提供的USB线缆将其连接至集线器(Hub)。此装置即构成一个Resipher系统。 "三明治" (图2A).
- 前往 Lucid 实验室网站 应用(https://lab.lucidsci.com/)并点击 新实验 右上角的按钮以创建新实验。
- 命名 实验标题 并输入任何相关 实验注意事项 针对特定研究(例如,正在使用的iPSC-RPE的传代次数)。
- 创建 良好培养条件 和 处理组例如,如果要检测培养基中不同血清浓度对OCR的影响,则应选择 血清 在 组名,然后输入将要使用的培养基血清浓度,通过点击添加更多血清百分比数值 + 按钮。指定哪些孔将接受特定的血清百分比,并为这些孔选择颜色模式。根据需要,通过点击添加更多组(例如,测试不同的实验变量) 添加组 按钮。
- 定义 培养板设置 并选择相应的 设备 和 板型. 点击 添加培养板 按钮并选择 设备;选择 培养板类型. 选择 处理 并点击相应的孔。
- 点击 立即开始 单击按钮以启动实验。请检查网站上的指示灯以及集线器上的LED灯是否正常工作。 实心绿色.
- 让系统运行15至60分钟,以确保每个传感器均得到适当校准,并能准确检测大气中的氧气浓度,该浓度应约为200 µ在含5% CO₂的完全加湿细胞培养箱中2 (图2Bi).
注意:如果在标准细胞培养箱设置中,任何传感器的读数偏离其他传感器平均值超过20%,则应考虑在数据分析中排除该孔,因为该传感器 有缺陷的图 2Bii).
注意:如果所有传感器的读数均偏离其他传感器平均值以及预期大气氧浓度超过20%,2 报告为 200 µ在标准细胞培养箱设置中,感应盖使用次数过多;应更换为新的感应盖(图 2Biii).
注意:获取 O2 实验开始前检测空气中的读数可显著提高后续故障排查的效率。若实验结束后发现某个孔的检测结果为异常值,而该孔的传感器存在校准偏差,则问题可能出在传感器本身,而非生物学重复样本。 - 将设备从感应盖上取下(但不要拔下设备上的USB线缆)。将设备倒置放入培养箱中,以使设备上的电机复位。在电机声音完全停止前(约20-30秒),请勿重复使用该设备。
注意:实验过程中,即使设备未置于检测盖上,也必须始终通过 USB 线缆将其与集线器保持连接。这可使设备持续监测并报告细胞培养箱内的环境状况。 - 将带有感应盖的培养板与一塊含有RPE细胞培养物的96孔板一同放回细胞培养操作台。用相同培养基和相同体积的培养基更换RPE培养板中各孔的培养液,以获取每个孔的基线OCR值。务必在所有不含RPE细胞的孔中加入无菌水,以帮助防止蒸发。
注意:通常情况下,我们建议 60-100 µ每96孔使用L型RPE培养基,依据数据显示,较低的培养基体积会导致营养物质迅速耗尽,而较高的体积则会引起意外的低氧状态9. - 将传感盖转移至含有细胞培养物的培养板中,同时将标准(非Resipher)盖转移至含有细胞培养物的空96孔接收板中,以保持标准盖的无菌状态,供实验过程中多个时间点使用。
- 将细胞培养板和传感盖放回细胞培养箱中。再次对准设备并将其安装到传感盖上,并通过提供的USB线缆连接至集线器(组装 "三明治")。检查网站界面和集线器上的所有指示灯是否均 实心绿色.
注意:O2 浓度数据将立即显示,而氧消耗率(OCR)数据需在积累足够的氧气2 数据收集已完成,约1小时。 - 让设备对每个孔的OCR至少测量12-24小时,以获取基线OCR。
注意:基础氧消耗率(OCR)会因多种因素而异,包括施加于细胞的培养基类型。 图2C,含有不同浓度FBS(0%、5%、15%)的标准RPE培养基的OCR值略有差异。此外,FBS浓度较高的培养体系在培养基加入细胞后,能够维持更长时间的线粒体活性,之后才因线粒体代谢物耗尽而导致OCR下降(曲线右侧)。 - 在获得基础 OCR 后,重复步骤 1.2.8–1.2.12,但将含有 RPE 培养物的培养板中的培养基更换为实验条件(通常, ± 一种药物或不同培养基条件的比较。
注意:常规的培养基更换也可采用相同方式进行。每次打开细胞培养箱时,都会对 OCR 读数造成显著干扰,因为 OCR 读数依赖于温度、湿度和 CO₂ 水平。2 浓度以及其他因素均会因打开培养箱门而暂时受到干扰。在将设备从感应盖上取下的任何过程中,无需在线暂停实验。当打开细胞培养箱门或更换被检测孔板的培养基后,通常需要2-4小时才能重新建立稳定的氧浓度梯度,并开始准确测量耗氧率(OCR)。 - 在获得数据后,减去 基线 在实验条件施加后,通过测定各孔的氧消耗率(OCR),以确定其OCR变化 ΔOCR 由处理所引发。
- 实验结束后,对传感盖进行灭菌并重复使用(可重复使用3-5次,但重复使用会导致性能下降)。灭菌时,将整个盖子浸入70%乙醇中,在细胞培养罩内放置10分钟,然后取出,置于柜中,探针面朝上(避免触碰 delicate 的探针尖端),待乙醇和水分完全蒸发后,再将传感盖放置于新的96孔接收板上。
- 拍摄明场图像,以将氧消耗率(OCR)值归一化为细胞数量。
注意:RPE 中的黑色素积累有助于基于明场显微镜下活体培养物的细胞数量简单计数来标准化氧消耗率(OCR)。- 取下装置并将其倒置,如步骤1.2.8所述。在细胞培养操作台中,将RPE培养板上的传感盖替换为标准的96孔板盖。
- 使用标准倒置显微镜,对每个孔进行明场成像。
注意:在不同孔之间保持成像区域的一致性(孔内的相对位置和物镜放大倍数)。 - 在细胞培养超净台中,将RPE培养板的标准96孔板盖替换为感应板盖,然后放回培养箱中继续监测。
- 使用 ImageJ 或其他软件对每个孔中的细胞数量进行计数。
- 将不同实验组的氧消耗率(OCR)归一化至细胞数量。该系统以 fmol 为单位报告 OCR∙(毫米)2)-1∙s-1- 每单位横截面积的耗氧量。因此,为将OCR标准化至每细胞,需将OCR除以每平方毫米的细胞数量2 (而非每孔细胞数)。同样,可将系统报告的OCR值乘以孔的横截面积(约31 mm²)2 对于标准96孔板)以得到单位为fmol的OCR∙s-1∙良好-1.
- 测定RPE生物能量参数的对照设置。
注意:为了确保该系统和RPE培养物对线粒体干预的反应具有可预测性,可以使用一些已明确靶向线粒体氧化磷酸化特定步骤的小分子进行验证。这些测试类似于使用Seahorse分析仪进行线粒体应激测试时所执行的步骤。10 并为RPE培养物提供生物能量学特征分析。- 在65培养基中培养RPE细胞 µ在含5% FBS的标准RPE培养基中培养,并测量24小时OCR以建立基线。
- 吸弃培养基,加入 65 µ含5% FBS 的标准 RPE 培养基与线粒体解偶联剂(3 µM羰基氰化物-p-三氟甲氧基苯腙 [FCCP] 或 500 nM Bam15, 材料表。在培养箱中孵育过夜。
注意:线粒体解偶联剂应显著增加耗氧率(OCR)。需确保增加后的OCR未达到或接近约275 fmol的理论最大扩散限制OCR值。∙(毫米)2)-1∙s-1 65 µ标准培养条件下培养基体积为 L。不同常用培养基体积对应的最大 OCR 值详见讨论部分。 - 过夜孵育后,吸除含线粒体解偶联剂的培养基,并更换为 65 µ含5% FBS的标准RPE培养基1 L。继续观察培养板24小时,以确定去除药物后RPE氧耗率(OCR)的恢复情况。
- 通过从处理前测得的氧消耗率(OCR)中减去处理后测得的OCR,计算解偶联剂对OCR的影响(图3).
注意:加入线粒体解偶联剂后OCR的增加表明细胞的线粒体呼吸储备能力19. - 为测量使用Seahorse分析仪进行线粒体应激测试时通常检测的其他线粒体参数,请按照上述相同步骤使用以下化合物:图4).
- 使用寡霉素,浓度为 1 µM 用于评估与ATP合成相关的呼吸作用。
- 使用抗霉素A和鱼藤酮,浓度均为1 µM 用于评估非线粒体呼吸。
注意:FCCP、寡霉素、抗霉素A和鱼藤酮可能对RPE具有毒性。如果这些药物引起明显的细胞死亡,则氧消耗率(OCR)的测量结果将不准确。因此,仅应在无明显细胞死亡的时间点进行OCR测量,通常是在添加药物后的最初几小时内。图4).
2. 测量经历上皮-间质转化的视网膜色素上皮细胞中线粒体代谢的变化
- 按照第1.2节所述的相同方案进行操作。
- 在获得基础OCR测量值后,向RPE培养物中添加TGF-β2(10 ng/mL)以诱导EMT,并持续监测OCR达3周。每2-3天更换含有新鲜TGF-β2的培养基(图5)。
- 每周至少两次,按照第1.3节的方法获取明场图像,以确保细胞数量未发生变化。若细胞数量发生变化,需将每个孔的OCR值归一化至相应的细胞数。
注意:该相同方案也可用于其他EMT诱导剂,以在培养期间细胞处于培养箱中时,长期监测OCR的变化。
3. 测定缺氧RPE中线粒体代谢的变化
注意:在低氧、常氧或高氧条件下应用该系统的方法与第1.2节相同,只是需将“夹心”结构置于放置于标准细胞培养孵育箱中的低氧舱(材料表)内。
- 在低氧培养箱的盖子上钻一个孔,用于穿过 USB-C 型电缆,并使用硅胶或填料进行密封(图6A).
- 在生物安全柜中将传感盖与细胞培养板组装,然后转移至低氧舱内。
- 设置 "三明治" (将培养板、传感盖和设备)放入缺氧室中。同时,在缺氧室内放置一个含有无菌水的培养皿,以帮助维持湿度。最后,放入便携式氧气浓度计2 低氧培养箱中的传感器(材料表。设置如图所示 图6A.
- 密封腔室并将其连接至装有低氧浓度 O₂ 的气瓶2 和标准细胞培养中的CO₂浓度2 (例如,1% O₂)2 和 5% CO2).
- 缓慢地用1% O₂气体置换缺氧 chamber 中的空气2/5% CO₂2 气缸中的空气,直至氧传感器显示 O2 所需浓度,通常介于1%至10%之间。
注意:便携式 O2 传感器需要时间达到平衡,因此应缓慢将气瓶中的气体加入低氧舱中。 - 关闭低氧室的进气阀和出气阀,将整个低氧室转移至培养箱中。
- 按照第1.2节中的步骤设置并启动实验。
注意:在将培养基加入细胞前,先在低氧舱中预平衡,可缩短细胞单层达到真正低氧状态所需的时间图6B).
4. 计算RPE单层细胞处的O2浓度,以确定细胞处于缺氧、常氧还是高氧条件
注意:默认情况下,该系统通过使用标准培养板及相应的单层细胞培养推荐感应盖,测量距培养孔底部约 1 至 1.5 mm 处的 O2 浓度(参见 https://lucidsci.com/docs/LucidScientific_Sensing_Lid_Selection_Guide.pdf)。尽管该系统并未直接测量细胞单层处的 O2 浓度,但可利用系统数据估算 RPE 层面的 O2 浓度。具体而言,已知在培养基液柱顶部(O2 可获得)与底部(O2 被消耗)之间存在氧气浓度梯度,可将菲克扩散定律与测得的 OCR 速率结合,外推细胞单层处的 O2 水平。我们提供了一个在线计算器用于此类估算: https://lucidsci.com/notes?entry=oxygen_diffusion(同时以开源交互式笔记本形式提供,地址为 https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture,该计算器的源代码可在 https://github.com/lucidsci/oxygen-diffusion-calculator 获取)。
- 计算器访问后,输入 微升为单位的培养基体积 (例如,100 µL).
- 输入气液界面处的饱和氧浓度(细胞上方培养基液柱的顶部)。该值约为185 µM 在标准大气压和5% O₂条件下2 和 95% 湿度。
注意:这也可从 O 测得2 通过系统探针在仅含培养基的孔(孔底部无细胞)中进行的测量。 - 在 流量输入,输入 通量/氧耗率 由系统报告。
- 根据这些数值, 培养基中每一高度处的稳态氧浓度 柱状图中的数值已计算并显示在图表中(图7)。该 x轴 图的横轴是 孔底部上方的高度(单位:mm)。该 y轴 是 计算的 O₂2 该高度处的浓度 (在 µM)
- O2 孔底部(细胞所在位置)的浓度在图线下方的行中报告。
注意:通常估计,RPE 在体内 观察到一个O2 浓度为 4-9%。每 10 µ氧的摩尔浓度2 在标准大气条件下相当于约 1% O₂2因此,细胞水平的常氧约为40-90 µ氧消耗率2. 培养基液柱越高,氧气浓度越低2 将位于视网膜色素上皮单层细胞的水平9因此,若细胞处于缺氧状态,可减少培养基体积;若细胞处于高氧状态,可增加培养基体积。
结果
Resipher 实验的“三明治”装置设置如图2A所示。带有32个探针的传感盖板对应96孔板上的第3、4、9和10列,置于细胞培养板与设备之间。连接至集线器后,设备会启动电机使传感盖板上下移动,测量细胞单层上方不同高度(通常为1–1.5 mm)处培养基中O2的浓度。因此,通过记录单层上方多个高度处的O2浓度,可连续测定O2梯度。基于梯度测量结果并应用菲克扩散定律,设备可自动计算探针高度范围上方至下方的氧通量,即细胞单层的耗氧率(OCR)。无论孔内为空(仅空气)、仅含培养基无细胞(仅培养基)或含有覆盖于细胞单层之上的培养基(培养基+细胞),传感盖板均可检测O2。为评估传感盖板中传感器的工作状态,可首先将其放置在空的(仅空气)96孔板上进行质量检查。若每个孔的传感器均正常工作,则报告的O2浓度应彼此一致且接近200 µM,该数值接近标准细胞培养孵育条件下大气中的预期O2浓度。图2Bi显示了八个探针在大气空气中的O2读数(以µM为单位报告,因默认单位换算假设探针处于37 °C液体环境中)。这些读数高度集中(±5%),且接近200 µM,表明全部八个传感器功能良好。在图2Bii中,使用了与图2Bi相同的传感盖板,但更换了不同的设备。此处根据异常曲线(以红色标示)检测出两个存在故障的设备传感器,提示该设备存在问题,需更换(或在实验中避免使用对应故障传感器的孔)。在图2Biii中,使用了与图2Bi相同的设备,但采用了两个不同的传感盖板。Lid1(左侧)各探针间变异性较高,提示该盖板的传感材料已降解,通常因其使用次数过多所致。Lid2(右侧)为新盖板,其读数集中且紧密分布在200 µM附近。利用该系统,可分析培养基中血清补充对RPE线粒体代谢的影响。如图2C所示,增加血清补充水平可轻微提升RPE的OCR水平。重要的是,较高水平的血清补充还可使线粒体代谢维持更长时间。即使不添加任何血清,OCR仍可持续约90小时,之后因线粒体代谢底物耗尽而导致OCR下降。因此,即使在无血清培养基条件下,每3.5天(每周两次)对96孔板每孔更换100 µL培养基,足以避免成熟、高度分化且具有极性的RPE培养物中营养物质的耗竭。
即使在所有孔中细胞数量和形态看似相同的情况下,不同孔之间的耗氧率(OCR)仍可能存在显著差异。因此,为了确定OCR的升高是由实验条件引起,还是仅仅源于孔与孔之间OCR基线水平的差异,必须进行归一化处理。归一化的第一步是确保各孔之间的细胞数量一致,具体操作如方案第1.3节所述。如果各孔间细胞数量存在差异,则需要将该孔的OCR值按细胞数量进行归一化。通常情况下,对于高度成熟且具有极性的视网膜色素上皮(RPE)培养物,各孔之间的细胞数量极为一致9。即便如此,各孔之间的OCR基线水平仍可能存在差异,如图3A所示。在此例中,在任何处理之前,各孔间的基线OCR差异可达每秒每平方毫米100飞摩尔(100 fmol/mm2/sec)。通过在处理前测量OCR,即可计算出实验处理所引发的ΔOCR,并将其与各孔间基线OCR的差异分离开来。本例中,实验比较了两种线粒体解偶联剂(FCCP与BAM15)与溶剂对照组的效果。当利用基线OCR进行归一化后,解偶联剂相对于对照组所引起的处理效应变得清晰可见(比较图3B与图3C)。通常而言,任何可能影响OCR的实验都应分为至少两个阶段:初始OCR测量阶段,用于建立基线OCR;以及处理阶段,用于确定ΔOCR。
为了验证RPE细胞培养物对线粒体干预产生预期反应,并建立RPE的生物能量谱,可在本系统中使用安捷伦Seahorse分析仪上“线粒体应激测试”所采用的经典小分子工具。首先,可通过线粒体解偶联剂来测量线粒体备用能力19。在RPE细胞培养中,线粒体解偶联剂BAM15相较于FCCP可诱导OCR更显著且持续的升高(图3C、D),且不引起毒性。Seahorse分析仪线粒体应激测试中可获取的其他参数,包括基础呼吸、ATP偶联呼吸、质子泄漏和非线粒体呼吸能力,均可通过本系统进行计算。Seahorse分析仪依赖于注射端口依次递送可抑制特定氧化磷酸化复合物的毒素,以推断上述参数;而Resipher系统不具备此功能。然而,每种线粒体毒素可分别加入不同的孔中,并基于与溶剂对照组处理孔相比的倍数变化来计算不同的呼吸参数。图4A比较了分别用线粒体解偶联剂BAM15、ATP合酶抑制剂寡霉素、复合物I和III抑制剂抗霉素/鱼藤酮以及溶剂对照(DMSO)处理的各孔之间的OCR差异。由于这些毒素在较长时间作用下可能诱导细胞死亡,而细胞死亡会影响OCR,因此OCR读数仅在处理数小时后获取。图4B以柱状图形式展示了溶剂对照组与各线粒体活性小分子处理孔之间OCR的差异,数据外推自图4A的最后时间点。图4B中的OCR值随后可用于计算RPE细胞培养的生物能量参数,如图4C所示。图4C生物能量谱中每种颜色编码的数值均来源于图4B中对应颜色编码的数值。因此,ATP偶联呼吸、质子泄漏、线粒体最大呼吸能力和非线粒体呼吸能力等参数均可通过OCR系统进行估算。每种线粒体活性小分子作用机制的总结见图4D。
在已通过RPE培养物展示该系统方案并完成对照实验以测定RPE生物能量特征的基础上,研究者可进一步探索该系统在RPE生物学与病理学中的实验应用。在增殖性玻璃体视网膜病变(PVR)——一种发生于视网膜脱离或眼外伤后的病症——中,RPE经历被称为上皮-间质转化(EMT)的剧烈转变:高度规则、铺路石样排列的RPE细胞失去其细胞间黏附,并转分化为具有收缩与运动能力的纺锤形间质细胞。1,2这会在视网膜上引发切向收缩力,可能导致视网膜脱离。RPE中上皮-间质转化(EMT)的经典诱导因子包括转化生长因子-β(TGFβ)和肿瘤坏死因子-α(TNFα)。10,11,12在三种哺乳动物TGFβ亚型中,TGFβ2是视网膜上皮-间质转化(EMT)最显著且最有效的诱导因子1,导致特征性的六边形视网膜色素上皮(RPE)细胞出现明显的细胞伸长,以及间充质标志物表达升高。TGFβ2在RPE中诱导的EMT反应伴随线粒体呼吸的抑制和糖酵解能力的继发性增强,这一点此前已通过Seahorse XFe96证实。10虽然Seahorse能够提供实时的生物能量谱,但它无法实现长期的OCR监测。因此,在本研究中首次应用OCR系统时(图5),在RPE细胞中通过TGFβ2诱导上皮-间质转化的过程中,线粒体呼吸在三周内被持续监测,从而允许 体外 对PVR过程中发生的代谢重编程进行建模。与使用Seahorse分析仪对RPE细胞EMT进行单时间点分析不同,该方法可对经历EMT的RPE细胞的代谢状态进行持续数周的追踪。显然,RPE反复暴露于TGFβ2会导致线粒体代谢持续进行性下降。既往使用Seahorse XF分析仪获得的数据表明,TGFβ2在24小时和72小时显著降低最大呼吸能力,但不影响基础OCR水平10. TGFβ2处理72小时后基础OCR未发生变化,这一点得到了本研究所用OCR系统的证实图5然而,本研究中OCR系统的长期数据显示,在暴露于TGFβ2 5天后,基础OCR水平开始下降,到20天时基础OCR的降低最为明显。这些结果揭示了先前Seahorse检测时间点未能捕捉到的基础OCR的长期变化。
在第二个应用中,该系统可用于监测视网膜色素上皮(RPE)细胞在线粒体代谢过程中在缺氧条件下的变化。由于年龄相关性黄斑变性(AMD)与脉络膜毛细血管层变薄及缺氧密切相关13,20,了解视网膜色素上皮(RPE)对亚毒性缺氧的适应性变化,将有助于揭示年龄相关性黄斑变性(AMD)的发病机制。为了在监测线粒体代谢的同时对RPE细胞培养物施加可控的缺氧环境,可将该系统置于缺氧舱内,再将缺氧舱放入细胞培养孵育箱中。为便于此设置,可在缺氧舱盖上钻一个小孔,使系统的USB线缆能够伸入缺氧舱内部。小孔应用腻子或硅胶密封图6A)。一种便携式O2 可将传感器置于缺氧舱内以监测大气中的 O₂2 水平,并确保缺氧舱密封完好。使用此装置,大气 O₂ 与舱内 O₂ 的平衡速率2 浓度和培养基 O2 浓度可以确定。在 图6B,用大气氧平衡的培养基2 置于无细胞的96孔板各孔中,并放入仅含5% O₂的缺氧舱内2 (~50 µM O2)。随着时间推移,每个孔中的培养基会与新的大气浓度达到平衡。培养基液柱高度越高(体积越大),平衡所需时间越长。 65 µL 96孔板每孔中培养基与大气O₂达到平衡2 大约需要5小时。然而,当培养基体积为100-时,平衡时间超过10小时200 µL这些结果强调了使用目标大气氧浓度预平衡培养基的重要性。2 缺氧实验中,在将培养基施加于细胞前的浓度
对于缺氧实验,重要的是确保 O2 低氧培养箱中的氧气水平保持稳定。在96孔板的一个边缘孔中不接种细胞或不加培养基,可使传感盖上的一个传感器持续监测大气中的O₂水平。2在 图6C,通过将单个孔暴露于空气中进行监测表明,缺氧培养箱存在缓慢泄漏,导致在30小时后,细胞所处环境的氧气浓度接近大气氧水平2 浓度。作为缺氧实验的最终对照,重要的是要确定 O2 溶解度在“新鲜”培养基和“条件化”培养基之间存在差异。如果细胞初始接种时所用培养基与已在细胞上作用较长时间的培养基之间溶解度不同,则O2 细胞上方培养基中的梯度会随着培养基在细胞上方停留时间的延长而发生变化,这反过来会影响OCR的计算。 图6D,将一块96孔板置于大气O₂环境中,该板包含空孔(“空气”)、无细胞但含有新鲜培养基的孔(“新鲜培养基”)以及无细胞但含有先前在RPE细胞培养物上孵育48小时的培养基的孔(“条件培养基”)2 以确保充分平衡。随后将培养板置于低氧培养箱中,氧气浓度约为3-4% O₂2 (30-40 µM)并使其达到平衡。最后,将培养板再次放回大气氧环境中2 浓度。O2 新培养基和条件培养基的浓度曲线相同,表明O2 新培养基与条件培养基之间的溶解度相同,证实随着营养物质的消耗以及代谢副产物分泌到培养基中,培养基成分随时间发生的变化并未显著改变O2 溶解度,从而不会意外影响耗氧率(OCR)。
由于细胞上方培养基液柱的高度会显著影响氧气2 RPE单层细胞的可用性9,确定特定培养基体积在RPE单层细胞处诱导的是低氧、常氧还是高氧状态非常重要。利用该系统的测量数据,结合在线计算器(https://lucidsci.com/notes?entry=oxygen_diffusion(以及以开源交互式笔记本形式提供于 https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture),该计算器的源代码位于 https://github.com/lucidsci/oxygen-diffusion-calculator),可估算RPE单层细胞处的氧气浓度。 图7 展示了交互式计算器的截图。RPE 体内 通常会观察到一个O2 4-9% 的浓度,相当于 O2 摩尔浓度约为 40-90 µM.
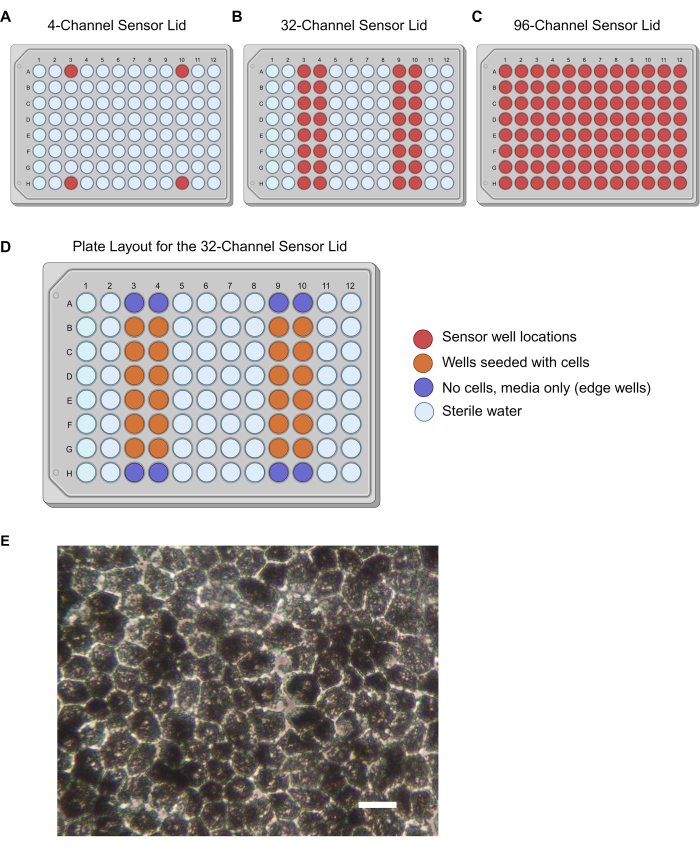
图1:不同传感盖板上传感器的位置、32通道传感盖板的孔板布局以及视网膜色素上皮(RPE)细胞形态。 各图显示了与不同传感盖板中传感器位置相对应的孔位:(A) 4通道、(B) 32通道和(C) 96通道盖板选项。(D) 推荐的32通道传感器盖板孔板布局。由于边缘效应,边缘孔中不应接种细胞,而应加入培养基(紫色孔)。细胞接种于橙色孔中。其余孔应加入无菌水(蓝色孔),以防止蒸发效应。(E) 成熟的RPE培养物,呈现六边形、紧密排列且具色素的细胞形态。比例尺 = 20 µm。缩写:RPE = retinal pigment epithelium。请点击此处查看该图的放大版本。

图2Resipher 系统“三明治”结构的建立与质量控制 (A感应盖可替换标准的96孔板盖,其探针插入对应的孔中。黑色设备通过磁铁紧密地固定在感应盖上。图中左侧图像显示了设备与感应盖的正确朝向。然而,右侧照片中的设备与感应盖已被侧向旋转,以便更好地展示其底部轮廓。B用于检测盖子和设备的质量控制。i,ii将相同的传感盖置于一个空的96孔接收板(仅空气)上,然后依次将两个不同的装置放置在传感盖上方。i第一个装置展示了八个探针的数据,变异度较低且O2 读数 ~200 µM,预期为大气中的 O2. (ii第二个装置展示了八个探针的数据,其中两个探针读数异常(红点)。iii) 使用一台设备搭配一个空的96孔板(仅空气)进行测试,并依次测试了两种不同的传感盖。绘制了16个探针的数据,结果显示Lid1(左侧)变异性较大,而Lid2(右侧)变异性较低。CRPE 培养物的 OCR 曲线图 100 µL 在含有不同血清浓度的培养基中监测120小时。无血清培养基中的RPE细胞(品红色)氧消耗率(OCR)较低,且OCR下降时间早于含较高血清浓度培养基中的细胞。缩写:OCR = oxygen consumption rate;RPE = retinal pigment epithelium。 请点击此处以查看此图的放大版本。
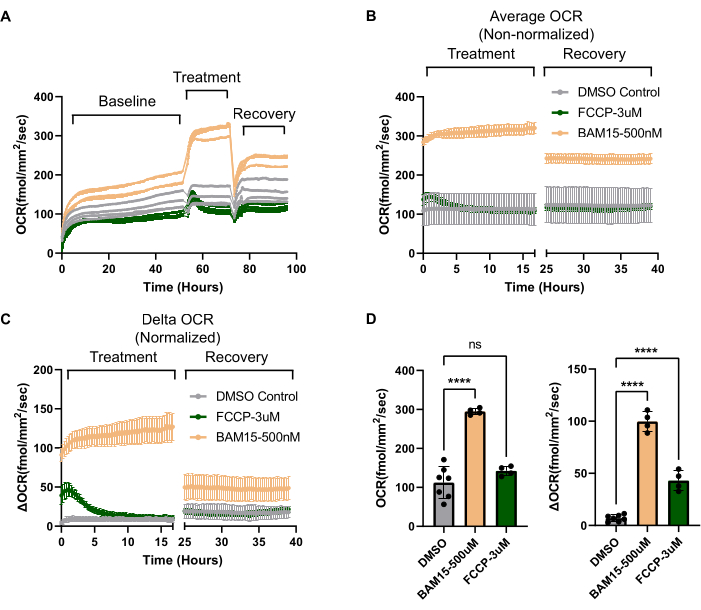
图 3:通过 OCR 系统独特展示的线粒体解偶联剂的长期效应。(A)随时间(小时)变化的原始 OCR 数据,显示初始 OCR(在 50 小时内建立)、处理阶段(加药后约 20 小时)和恢复阶段(洗脱药物后约 20 小时)。RPE 细胞分别用两种不同的线粒体解偶联剂 FCCP(3 µM,N = 4)或 BAM15(500 nM,N = 4)处理,并与 DMSO 溶剂对照组(0.6%,N = 7)进行比较。每条曲线代表一个单独的孔。(B)将(A)中各条件所有孔的平均 OCR 绘制成图,展示处理阶段和恢复阶段的数据。若不进行归一化(Y 轴为绝对 OCR 值),则难以观察到 FCCP 处理效应的幅度。(C)当将每条 OCR 曲线减去其处理前的 OCR 值时,可计算出 Delta OCR(Y 轴所示)。这种方法可排除各孔基础 OCR 的差异,从而单独分析处理对 OCR 的影响。通过使用 Delta OCR,FCCP 的效应变得明显。同时也可以看出,与 BAM15 相比,FCCP 对线粒体解偶联的作用持续时间较短。最后,与 FCCP 相比,即使在药物被洗脱后,BAM15 的暴露仍会诱导产生一种新的“适应”状态,表现为持续较高的 OCR。(D)将(B)和(C)中的数据以条形图形式展示,便于直接比较未归一化数据(左图,来自(B))与归一化数据(Delta OCR,右图,来自(C))。缩写:OCR = oxygen consumption rate;RPE = retinal pigment epithelium;FCCP = carbonyl cyanide-p-trifluoromethoxyphenylhydrazone;DMSO = dimethyl sulfoxide。请点击此处查看该图的放大版本。

图4利用OCR系统计算线粒体生物能量学参数。 (A) 利用Seahorse分析仪线粒体应激测试中所含的相同小分子,显示了RPE培养物在处理阶段前2.5小时的耗氧率(OCR)。(左图)ATP合酶抑制剂寡霉素(N = 3)、复合物I和III抑制剂抗霉素A/鱼藤酮(N = 7)或溶剂DMSO 0.4%(N = 4)。(右图)线粒体解偶联剂BAM15(N = 4)或溶剂DMSO 0.6%(N = 4)。B) 每个处理组最后三个时间点的平均值(A)中的红色方框)。C基于 Resipher 数据模拟的 Seahorse 分析仪线粒体应激测试生物能量谱示意图。模拟图中用颜色编码的数据点对应于(B)。所有呼吸参数均可使用Resipher数据和选定的小分子进行计算。D) 所用试剂作用机制示意图 图3 和 图4. 缩写:OCR = 氧消耗率;RPE = 视网膜色素上皮;DMSO = 二甲基亚砜;AA = 抗霉素A;Rot = 鱼藤酮 请点击此处以查看此图的放大版本。

图5:经TGFβ2诱导发生上皮-间质转化的视网膜色素上皮细胞的长期OCR监测。 成熟的原代人视网膜色素上皮(RPE)细胞培养物每2-3天接受10 ng/mL TGFβ2或溶剂对照处理。(A) 实时氧耗率(OCR)连续监测3周;(B) 随时间变化的ΔOCR定量分析(第19天减去第6天)。每组条件n = 6-7个孔,非配对t检验,* P < 0.05。缩写:OCR = 氧气消耗速率;RPE = 视网膜色素上皮;TGFβ2 = 转化生长因子β-2。请点击此处查看该图的放大版本。
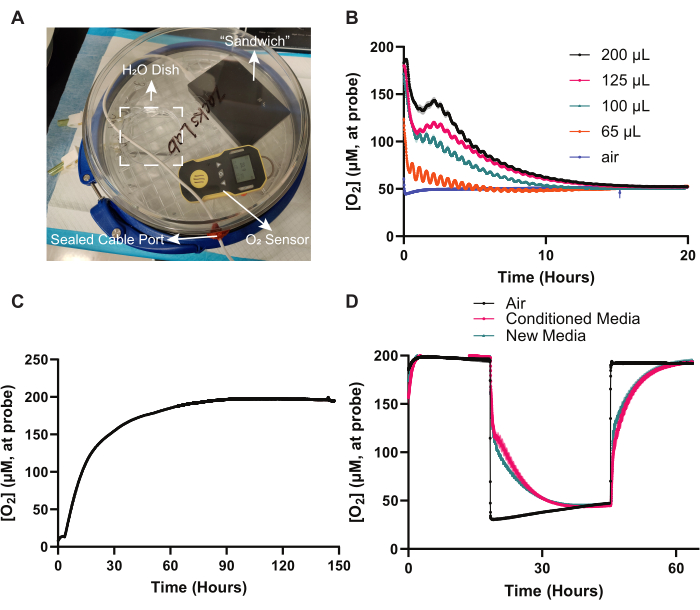
图6:监测RPE线粒体对缺氧的反应。(A)将OCR系统“三明治”结构在缺氧舱内组装,并通过盖子上钻出的孔将USB线连接至集线器,孔洞用硅脂或填料密封。缺氧舱内还放置了一皿无菌水以维持湿度,以及一个便携式O2传感器。在用较低O2浓度气体替换缺氧舱内气氛后,将整个系统置于细胞培养孵箱中。(B)培养基需要一定时间才能与气液界面之上的O2浓度达到平衡。将不同体积的、已与大气O2浓度平衡的RPE培养基加入96孔板的空孔(无细胞)中。随后将缺氧舱调节至5%(50 µM)O2。监测各孔培养基中O2浓度达20小时。培养基体积较大的孔达到5% O2平衡的速度较体积小的孔更慢。N = 8。(C)该系统可用于检测缺氧舱的漏气情况。将缺氧舱设定为1% O2,并将传感盖置于空孔(仅空气)上方。缺氧舱的进气口和出气口保持开放,舱内气氛在约90小时内重新平衡至大气O2水平。(D)新鲜培养基与上清液(“条件培养基”)具有相似的O2溶解度。这消除了因培养过程中培养基成分变化而导致O2溶解度差异的担忧,否则会影响OCR读数随时间的一致性。将相同体积(100 µL)的新鲜培养基(“新培养基”)或经细胞培养孵育48小时后的培养基(“条件培养基”)加入无细胞的孔中。OCR系统“三明治”最初暴露于大气O2水平,随后转移至缺氧舱(3–5% O2 或 30–50 µM),再重新转移回大气O2水平。通过空孔(仅空气)中的探头监测空气中O2水平。两种培养基在每次转换过程中的O2浓度变化完全一致,表明两种培养基的O2溶解度相同。N = 6。缩写:OCR = 氧消耗率;RPE = 视网膜色素上皮。 请点击此处查看该图的放大版本。

图 7:通过在线计算器确定的视网膜色素上皮(RPE)单层细胞处的 O2 浓度。 在线计算器的截图(https://observablehq.com/@lucid/oxygen-diffusion-and-flux-in-cell-culture)。详见正文部分关于如何使用该计算器确定 RPE 单层细胞处可利用氧量的说明。缩写:RPE = 视网膜色素上皮。请点击此处查看该图的放大版本。

图8:问题排查实验:蒸发、细胞状态不佳及OCR波动过大。(A)蒸发过度。 当某孔的OCR曲线出现异常时,首先点击系统在线界面中的环境选项卡(左图)。此处可监测湿度、温度和大气压。打开细胞培养箱门会暂时破坏湿度(见曲线上2小时和28小时处)。然而,从30小时开始,即使未开门,湿度曲线仍持续下降,提示细胞培养箱的水盘已干。任何湿度或温度的扰动都会影响OCR读数。(右图)低湿度会加剧蒸发。在右侧曲线中,发生快速蒸发的孔显示出传感器探针移动范围(位于RPE单层上方1 mm至1.5 mm)内顶部与底部之间O2浓度差异逐渐减小。这表明探针尖端已接近空气-培养基界面。当O2浓度读数“持平”在接近已知大气O2浓度(约200 µM)的数值时,说明探针尖端已完全脱离培养基液柱,仅采集空气样本。此时OCR读数不再有效,相关孔需立即更换培养基。(B)细胞状态不佳。 绘制每个孔单独的O2和OCR曲线有助于识别异常孔,通常由细胞状态不佳引起。此处,蓝色曲线代表的孔细胞状态不佳。N = 6个孔。(C)培养箱开门及换液操作。 培养箱开门期间大气湿度、温度、压力和CO2的变化,以及任何换液操作,都会暂时破坏孔内已建立的平衡O2梯度,导致这些图中早期和晚期出现异常的O2和OCR尖峰。N = 6个孔。缩写:OCR = 氧气消耗速率。请点击此处查看该图的放大版本。

图9:问题排查实验:培养基体积与归一化。(A) 培养基体积限制了最大可能的OCR。由于较高的培养基体积会导致视网膜色素上皮(RPE)单层细胞处的O2可用性降低,因此在96孔板的单个孔中,每一体积的培养基均存在一个最大OCR值。当OCR超过该值时,细胞水平的O2浓度实际上为0%(缺氧状态)。因此,若实验接近某一特定培养基体积下的最大理论OCR值,则降低培养基体积是有益的,以避免在整个实验过程中出现OCR“天花板效应”。图中展示了在各培养基体积下(标准96孔板中)可达到的最大理论OCR值。所有数值均使用第4节实验方案中讨论的在线计算器计算得出,并在图7中展示。(B) 合适的归一化方法。在研究某一变量对另一变量诱导线粒体代谢能力的影响时,采用Delta-Delta OCR实验设计最为理想。在(B)所示的设计中,测试了两种不同培养基促进棕榈酸β-氧化的能力。若发生脂肪酸的β-氧化,则线粒体OCR应显著增加。某些培养基可能比其他培养基更有效地促进棕榈酸的β-氧化。在OCR图左侧,将两种不同的培养基(培养基1 vs. 培养基2)分别加入RPE培养物的平行孔中,记录基础OCR值。随后向每种培养基类型的半数孔中加入棕榈酸。由此形成四种条件:培养基1 - 棕榈酸、培养基1 + 棕榈酸、培养基2 - 棕榈酸、培养基2 + 棕榈酸。记录每种新培养基条件下OCR的响应值。接着,将处理后阶段(处理阶段下方红色虚线框的平均值)的OCR值减去处理前的基础OCR值(基础阶段下方红色虚线框的平均值),得到Delta OCR柱状图(左下图)。最后,通过Delta-Delta OCR柱状图(右下图)确定培养基1与培养基2在促进β-氧化能力上的差异。在此图中,计算“培养基1 + 棕榈酸”的Delta OCR与“培养基1 - 棕榈酸”的Delta OCR之间的差值,并与“培养基2 + 棕榈酸”和“培养基2 - 棕榈酸”之间相应差值进行比较。此类实验设计与归一化方法可有效分离培养基1与培养基2在促进β-氧化方面的作用;该归一化策略的基本结构适用于任何研究一个变量对另一个变量改变OCR能力影响的实验。缩写:OCR = 氧消耗率;RPE = 视网膜色素上皮。请点击此处查看该图的放大版本。
表1:RPE细胞培养基配方。 请点击此处下载该表格。
讨论
视网膜色素上皮(RPE)的线粒体代谢在常见致盲性视网膜疾病(包括年龄相关性黄斑变性(AMD)和增殖性玻璃体视网膜病变(PVR))的发病机制中起关键作用。RPE线粒体代谢的建模研究 体外 可使其代谢状态与周围组织分离,同时以受控方式对组织施加不同的模拟疾病损伤。此类 体外 RPE 线粒体代谢的建模得益于高保真度的人原代和 iPSC-RPE 培养技术的发展,这些培养体系能够达到适当的分化状态和极性,从而更接近真实 RPE 的生理特性 体内. 尽管监测此类培养物中的氧消耗率(OCR)是监控线粒体代谢的理想方法,但OCR监测所需的装置通常无法满足形成高度极化且完全分化视网膜色素上皮(RPE)所需的培养条件。本文中,我们介绍Resipher作为一种新型系统,可通过对高度分化且极化的RPE培养物进行实时、长期的OCR评估,来监测RPE线粒体代谢。
已有其他方法用于监测RPE中的耗氧率(OCR)。Seahorse XF分析仪旨在通过急性调控线粒体功能来短时间监测OCR。然而,Seahorse检测要求细胞培养在专用培养板上,而这种培养板不利于维持RPE的高极性和分化状态21。Calton、Vollrath及其同事改进了Seahorse方法,将生长于微孔支持膜上的高度分化的RPE培养物切割成小片后放入Seahorse检测板中进行评估。但该方法仍仅适用于短期终点检测,因为在检测过程中细胞无法接触CO2,检测只能在非无菌条件下进行,且切割微孔膜会导致支持膜边缘区域的细胞随时间推移发生死亡和功能障碍22。Barofuse是一种无泵灌注系统,可将生长在微孔支持膜上的RPE条带装入灌注系统中,从而实现实时监测OCR23。与Calton、Vollrath及其同事改进的Seahorse装置类似,Barofuse在评估RPE时的主要局限性也在于需要切割微孔支持膜,并且检测仍为短期终点式。Oxygraph同样设计用于检测代谢干预后OCR的快速动力学变化24。尽管尚未用于RPE培养物,但若将其用于评估高度极化和分化的RPE培养物,其局限性将与Seahorse和Barofuse相同。
与这些其他方法不同,本文所述的OCR系统能够在标准细胞培养条件下,使用标准RPE培养基,在标准细胞培养板/基质中培养RPE细胞的同时,实时监测OCR2 培养箱,可对高度分化且具有极性的视网膜色素上皮(RPE)培养物进行便捷、高效的检测。除了系统可实时获取细胞耗氧率(OCR)变化数据外,在OCR监测周期结束后,同一组细胞还可用于其他后续检测。这使得实验具有高度灵活性,可在数周内反复检测某种干预措施对OCR的影响(例如——RPE上皮-间质转化诱导过程中的 图5)或可测试干预措施长期恢复效果的场景(例如——线粒体解偶联后的恢复情况 图3)或可监测初始干预后级联代谢变化的情况(例如——当培养基中的营养物质耗尽后,血清对耗氧率(OCR)的影响 图2)。本文中的OCR系统特别适用于测量高度极化和分化的RPE培养细胞中的OCR。这类培养细胞在功能上为终末分化、无分裂能力,细胞排列紧密且色素沉着显著,这意味着每个孔中的细胞数量几乎相同。9,从而在大多数实验中无需将OCR归一化至细胞数量。即使在需要归一化至细胞数量的情况下,由于RPE细胞色素沉着较重且细胞边界清晰,可通过明场成像进行非侵入性的简单细胞计数来实现归一化。对于涉及未分化RPE及RPE增殖的实验,例如EMT实验 图5,将每孔的耗氧率(OCR)根据细胞数量进行标准化,是了解其真实情况的必要步骤 "每细胞" OCR 是。
在视网膜范围之外,该系统已被用于研究多种细胞类型的细胞呼吸和代谢活性,包括胰岛细胞25、骨骼肌26、卵巢癌27、心肌细胞28,甚至整个生物体,如C. elegans29。利用本文所述的OCR系统对OCR进行实时、长期监测,揭示了这些不同疾病模型中生物能量转换和线粒体功能障碍的关键机制。
Resipher 系统确实存在局限性。其测定耗氧率(OCR)的方法在本质上不同于 Seahorse 分析仪、BaroFuse 或 Oxygraph 系统。该方法需要建立一个氧气(O2)梯度以计算 OCR,而该梯度的建立可能需要数小时。因此,其他系统中可实现的快速动力学实验,在本系统中无法完成。此外,与其他系统不同,Resipher 没有用于快速递送小分子或收集代谢物的注射端口。相反,必须在细胞培养操作台中移除传感盖,手动加入药物或更换培养基,并手动收集待分析的代谢物。
为建立并排查本文所述OCR系统实验中的问题,建议采取以下措施。首先,尽量减少蒸发。请记住,O2 RPE单层上方培养基柱中的梯度高度依赖于该液柱的高度9,并且系统根据 O 计算 OCR2 梯度。因此,如果存在显著的 由于实验过程中培养基液面因蒸发而降低,O2 梯度会发生变化,影响 OCR 读数。保持培养箱水盘充满水至关重要,同时建议在 96 孔板所有未使用的孔中也加入水。此外,由于板边缘孔的蒸发速率较高,因此在上述典型实验中,这些孔不接种细胞。OCR 系统上的湿度传感器可帮助监测培养箱内的湿度。在图 8A 中,实验过程中湿度的下降表明培养箱的水盘已无水。随着孔内蒸发加快,O2 孔中的浓度读数将逐渐升高并最终 "直线(心电图无波动)" 在大气氧浓度下2 浓度(约 200 µM)(图8A).
其次,确认 OCR 系统的"sandwich"结构已正确组装。设备底部和传感盖顶部的金属接触点应保持清洁,无任何阻碍充分接触的碎屑。设备与传感盖应平整、均匀地贴合在96孔板上,不得倾斜。连接设备与集线器的USB线缆不应受拉力,以免对"sandwich"结构产生扭矩,影响设备的正常运动。
第三,确保设备和感应盖传感器已校准。 图2B 详细介绍如何在每次实验开始时快速检查传感器功能是否正常。第四,在实验处理前,需确认某个特定孔未出现异常的耗氧率(OCR)值。在确认传感器正常工作后,测定所有细胞孔的基线OCR值,有助于判断某些孔中的细胞是否处于不健康状态。 图8B 显示多个孔正在进行基础OCR评估,其中蓝色孔明显表现出较低的OCR(因此,高O2 浓度)。该孔为异常值,应从实验操作中剔除。
第五,进行活跃的OCR读数时,尽量减少环境干扰。O2 梯度对温度、湿度和培养箱中 CO 的变化高度敏感2 水平和大气压。培养箱门的开启会显著影响这些因素,导致 OCR 读数出现暂时性干扰,直至培养基液柱的 O2 梯度恢复至平衡状态(图8C)。影响OCR的参数可在系统在线界面中进行监测 "环境" 标签图8A).
第六,确定实验所需的最适培养基体积。培养基体积不足可能导致过度蒸发(见上述第一个故障排除措施)或培养基中营养物质过早耗尽而产生假象,而培养基体积过大则会限制氧气2 RPE单层细胞的可利用性降低,引发缺氧9. 图7 是用于确定培养基体积对溶氧影响的在线计算器的截图2 RPE单层细胞处的浓度。特定培养基体积下可能达到的最大OCR显示在 图9A. 如果在特定实验中使用给定体积时的OCR速率接近图中所示速率 图9A,然后 O2 当RPE单层的氧浓度接近无氧状态(0%)时,需要使用较少的培养基体积。通常情况下,涉及RPE培养中线粒体高活性过程的实验,每96孔的培养基体积不应超过75 µL。
第七,进行适当的归一化处理,以分离实验干预对OCR的影响。由于不同孔的基线OCR可能存在差异,因此在实验干预前获取每孔的基线OCR读数至关重要。通过从实验干预后的OCR值中减去基线OCR值,获得净OCR变化值 "Delta OCR" 这展示了实验干预对OCR的影响。获取该结果的方法如下 "Delta OCR" 在……中得到展示 图3 和 图9B如果研究者关注一种实验干预对另一种实验干预诱导耗氧率(OCR)能力的影响,则需增加一个归一化步骤, "Delta-Delta OCR",是必需的。此类示例如图所示。 图9B,其中棕榈酸盐(一种实验干预)诱导OCR增加(通过诱导β-氧化)的能力取决于RPE细胞培养所用的培养基类型(第二种实验干预)。
最后,尽量降低污染风险。该系统通过将氧气传感器置入细胞上方的培养基中来监测耗氧率(OCR),但这会增加感染风险。实验过程中若出现OCR意外下降,或实验开始时OCR值异常偏低,可能提示存在污染。需要在细胞培养显微镜下主动监测培养板是否发生污染。如果重复使用检测用盖子,可能引起96孔板之间的交叉污染。为尽量减少此类交叉污染,在完成实验后、将检测盖用于新实验之前,应将整个盖子浸入70%乙醇中20分钟以进行去污处理(参见操作规程第1.2.15节)。
总之,本文介绍了一种利用名为Resipher的新型系统,通过检测氧消耗率(OCR)对高保真度视网膜色素上皮(RPE)培养物中的线粒体代谢进行实时、长期监测的实验方案。该方法可广泛应用于高度极化和分化的RPE培养体系,特别适用于研究分离RPE的生理代谢特性,以及疾病或干预条件下RPE代谢的改变。 体外 视网膜疾病模型,包括年龄相关性黄斑变性(AMD)和增殖性玻璃体视网膜病变(PVR)。
披露
Richard A. Bryan 和 Kin Lo 供职于 Lucid Scientific 公司,该公司生产 Resipher 系统。
致谢
我们感谢 Daniel Hass 博士和 Jim Hurley 博士提出测试 O 的想法2 新培养基与条件培养基中溶解度的对照实验。感谢Magali Saint-Geniez博士对本文稿提供的编辑意见。感谢Kellogg眼科中心仪器与电子服务核心实验室的Scott Szalay使用Resipher USB电缆对缺氧舱进行改装。HFT研究未使用任何联邦资金。电子服务核心实验室由美国国家眼科研究所P30 EY007003项目资助。本研究得到防盲研究组织(Research to Prevent Blindness, RPB)的无限制部门资助。J.M.L.M.获得干性年龄相关性黄斑变性James Grosfeld倡议项目、E. Matilda Ziegler盲人基金会、Eversight眼库资助、美国国家眼科研究所K08EY033420项目资助,以及Dee和Dickson Brown和David与Lisa Drews发现希望基金会的支持。D.Y.S.获得新南威尔士大学(UNSW)Scientia项目资助。L.A.K.获得Iraty奖、Monte J. Wallace、Michel Plantevin、美国国家眼科研究所R01EY027739项目资助以及美国国防部陆军医学研究获取活动VR220059项目的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.25% 胰蛋白酶-EDTA | Gibco | #25-200-056 | |
| 3,3',5-三碘-L-甲状腺原氨酸钠盐 | Sigma | T5516 | |
| 32通道 Resipher 盖 | Lucid Scientific | NS32-101A for Falcon | |
| 链霉菌来源的抗霉素 A | Sigma | A8674-25MG | 电子传递链复合体 III 抑制剂 |
| BAM15 | Sigma | SML1760-5MG | 解偶联剂,用于增强线粒体呼吸 |
| DMSO,细胞培养级 | Sigma-aldrich | D4540-100ML | 线粒体药物重悬用溶剂 |
| 细胞外基质包被基质: Synthemax II-SC | Corning | #3535 | 人源视网膜色素上皮细胞(hfRPE)用细胞外基质 |
| 细胞外基质包被基质:玻连蛋白 | Gibco | A14700 | 诱导多能干细胞来源的视网膜色素上皮细胞(iPSC-RPE)用细胞外基质 |
| FCCP | Sigma | C2920-10MG | 解偶联剂,用于增强线粒体呼吸 |
| 胎牛血清(Bio-Techne S11550H) | Bio-Techne | S11550H | |
| 氢化可的松-环糊精 | Sigma | H0396 | |
| 低氧培养箱 | Embrient Inc. | MIC-101 | |
| N1 培养基添加剂 | Sigma | N6530 | |
| 非必需氨基酸溶液 | Gibco | 11140050 | |
| O₂ 传感器 | Sensit technology 或 Forensics Detectors | P100 或 FD-90A-O2 | |
| 青霉素-链霉素 | Gibco | 15140-122 | |
| 重组人 TGFβ2 | Peprotech | 100-35B | 转化生长因子 β-2,用于诱导上皮-间质转化 |
| 鱼藤酮 | Sigma | R8875-1G | 电子传递链复合体 I 抑制剂 |
| 系统兼容性培养板 | Corning | #353072 | |
| 牛磺酸 | Sigma | T8691 | |
| αMEM(Eagle 培养基的 α 改良型) | Corning | 15-012-CV |
参考文献
- Shu, D. Y., Butcher, E., Saint-Geniez, M. EMT and EndMT: emerging roles in age-related macular degeneration. Int J Mol Sci. 21 (12), 4271(2020).
- Shu, D. Y., Lovicu, F. J. Myofibroblast transdifferentiation: the dark force in ocular wound healing and fibrosis. Prog Retin Eye Res. 60, 44-65 (2017).
- Hurley, J. B. Retina metabolism and metabolism in the pigmented epithelium: a busy intersection. Annu Rev Vis Sci. 7, 665-692 (2021).
- Wu, W., et al. Deficient RPE mitochondria energetics leads to subretinal fibrosis in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (8), 2420(2023).
- Hansman, D. S., et al. Metabolic reprogramming of the retinal pigment epithelium by cytokines associated with age-related macular degeneration. Biosci Rep. 44 (4), BSR20231904BSR20231904(2024).
- Li, K. X., et al. Modulation of pyruvate kinase M2 activity as a therapy in a primary RPE cell culture model of proliferative vitreoretinopathy. Invest Ophthalmol Vis Sci. 62 (8), 2213(2021).
- Gupta, S., et al. Progress in stem cells-based replacement therapy for retinal pigment epithelium: in vitro differentiation to in vivo delivery. Stem Cells Transl Med. 12 (8), 536-552 (2023).
- Wilson, D. F., et al. Oxygen distribution and vascular injury in the mouse eye measured by phosphorescence-lifetime imaging. Appl Opt. 44 (25), 5239-5248 (2005).
- Hass, D. T., et al. Medium depth influences O2 availability and metabolism in human RPE cultures. Invest Ophthalmol Vis Sci. 64 (14), 4(2023).
- Shu, D. Y., Butcher, E. R., Saint-Geniez, M. Suppression of PGC-1α drives metabolic dysfunction in TGFβ2-Induced EMT of retinal pigment epithelial cells. Int J Mol Sci. 22 (9), 4701(2021).
- Shu, D. Y., et al. Dimethyl fumarate blocks tumor necrosis factor-alpha-driven inflammation and metabolic rewiring in the retinal pigment epithelium. Front Mol Neurosci. 15, 896786(2022).
- Ng, P. Q., Saint-Geniez, M., Kim, L. A., Shu, D. Y. Divergent metabolomic signatures of TGFβ2 and TNFα in the induction of retinal epithelial-mesenchymal transition. Metabolites. 13 (2), 213(2023).
- Kar, D., et al. Choriocapillaris impairment is associated with delayed rod-mediated dark adaptation in age-related macular degeneration. Invest Ophthalmol Vis Sci. 64 (12), 41(2023).
- Curcio, C. A., Kar, D., Owsley, C., Sloan, K. R., Ach, T. Age-related macular degeneration, a mathematically tractable disease. Invest Ophthalmol Vis Sci. 65 (3), 4(2024).
- Maminishkis, A., et al. Confluent monolayers of cultured human fetal retinal pigment epithelium exhibit morphology and physiology of native tissue. Invest Ophthalmol Vis Sci. 47 (8), 3612-3624 (2006).
- Maminishkis, A., Miller, S. S. Experimental models for study of retinal pigment epithelial physiology and pathophysiology. J Vis Exp: JoVE. (45), e2032(2010).
- Zhang, Q., et al. A platform for assessing outer segment fate in primary human fetal RPE cultures. Exp Eye Res. 178, 212-222 (2019).
- Sharma, R., Bose, D., Montford, J., Ortolan, D., Bharti, K. Triphasic developmentally guided protocol to generate retinal pigment epithelium from induced pluripotent stem cells. STAR Protoc. 3 (3), 101582(2022).
- Marchetti, P., Fovez, Q., Germain, N., Khamari, R., Kluza, J. Mitochondrial spare respiratory capacity: Mechanisms, regulation, and significance in non-transformed and cancer cells. FASEB J. 34 (10), 13106-13124 (2020).
- Rosenfeld, P. J., Trivizki, O., Gregori, G., Wang, R. K. An update on the hemodynamic model of age-related macular degeneration. Am J Ophthalmol. 235, 291-299 (2022).
- Fitch, T. C., et al. Real-time analysis of bioenergetics in primary human retinal pigment epithelial cells using high-resolution respirometry. J Vis Exp: JoVE. (192), (2023).
- Calton, M. A., Beaulieu, M. O., Benchorin, G., Vollrath, D. Method for measuring extracellular flux from intact polarized epithelial monolayers. Mol Vis. 24, 425-433 (2018).
- Grumbine, M. K., et al. Maintaining and assessing various tissue and cell types of the eye using a novel pumpless fluidics system. J Vis Exp: JoVE. (197), (2023).
- Mu, C., Shearer, J. Protocol for measuring respiratory function of mitochondria in frozen colon tissue from rats. STAR Protoc. 4 (4), 102560(2023).
- Rocha, D. S., Manucci, A. C., Bruni-Cardoso, A., Kowaltowski, A. J., Vilas-Boas, E. A. A practical and robust method to evaluate metabolic fluxes in primary pancreatic islets. Mol Metab. 83, 101922(2024).
- Kanaan, M. N., et al. Cystine/glutamate antiporter xCT controls skeletal muscle glutathione redox, bioenergetics and differentiation. Redox Biol. 73, 103213(2024).
- da Veiga Moreira, J., et al. Methylene blue metabolic therapy restrains in vivo ovarian tumor growth. Cancers. 16 (2), 355(2024).
- McNally, L. A., Altamimi, T. R., Fulghum, K., Hill, B. G. Considerations for using isolated cell systems to understand cardiac metabolism and biology. J Mol Cell Cardiol. 153, 26-41 (2021).
- Misare, K. R., et al. The consequences of tetraploidy on Caenorhabditis elegans physiology and sensitivity to chemotherapeutics. Sci Rep. 13 (1), 18125(2023).
重印与许可
