本方案描述了使用腺相关病毒(AAV)载体进行细胞特异性标记的方法 体内 使用共焦扫描激光检眼镜(CSLO)进行成像。该方法可实现对不同类型视网膜细胞及其在视网膜功能与疾病中作用的研究。
本文内容
摘要
摘要
视网膜细胞过程的动态特性要求基因递送和活体监测技术不断进步,以加深对眼病的理解与治疗。本研究介绍了一种优化的腺相关病毒(AAV)方法,通过使用特定的血清型和启动子,实现对靶向视网膜细胞(包括视网膜神经节细胞(RGCs)和穆勒胶质细胞)的高效转染。借助共聚焦扫描激光检眼镜(CSLO)的精确定位能力,本文提出了一种非侵入性的体内成像方法,可连续观察AAV介导的绿色荧光蛋白(GFP)的长期表达。该方法避免了终末性操作,保持了观察的连续性和受试对象的健康状态。此外,可在AAV感染的RGCs中沿视觉通路追踪GFP信号至视顶盖(SC)和外侧膝状体核(LGN),从而实现直接绘制视觉通路的潜力。这些发现提供了一套详细的实验方案,并展示了该强大工具在实时研究视网膜细胞行为、疾病发病机制以及基因治疗干预效果中的应用,为活体视网膜及其连接特性提供了宝贵的见解。
引言
视网膜是中枢神经系统中唯一光学可及的部分,因此成为神经科学研究中一个重要的模型1。视网膜神经节细胞(RGCs)是视网膜的输出神经元,负责将视觉信息传递至大脑,在视觉功能中发挥关键作用。RGCs的丢失或功能障碍会导致视力受损甚至不可逆的失明,如青光眼及其他视神经病变中所见2。穆勒胶质细胞(Müller glia)是视网膜中的主要胶质细胞,对维持视网膜稳态至关重要,可为神经元提供结构和代谢支持,调节神经递质水平,并参与视网膜的修复与再生3。其功能障碍与多种视网膜疾病相关,包括糖尿病性视网膜病变4、年龄相关性黄斑变性5和眼部缺血综合征6。RGCs与穆勒胶质细胞之间存在密切的相互作用和相互依赖关系:穆勒胶质细胞为RGCs提供必要的支持,而RGCs的活动亦可影响穆勒胶质细胞的功能3,7。对RGCs和穆勒胶质细胞的研究对于理解视网膜功能以及开发多种视网膜疾病的有效治疗方法至关重要。
目前视网膜研究中的评估主要采用光学相干断层扫描(OCT)等技术来测量视网膜神经纤维层的厚度或轴突束的走行轨迹8,9尽管这些方法在检测RGC丢失方面具有重要价值,但由于分辨率有限,无法提供RGC形态及胶质细胞的详细视图。同样,尽管自适应光学扫描激光检眼镜(AO-SLO)等先进技术能够实现活体人视网膜中RGCs、光感受器和胶质细胞的细胞级成像10,其技术复杂性和可及性有限,使得它们主要局限于专业研究环境中。鉴于这些限制,迫切需要开发更易于获取且可靠的方法,以深入研究特定的视网膜细胞群体 体内.
因此,本实验方案旨在介绍一种适用于视网膜细胞研究的替代性成像方法。该方法结合了腺相关病毒(AAV)介导的细胞类型特异性标记技术与共焦扫描激光检眼镜(CSLO)成像的非侵入性优势。腺相关病毒(AAVs)是一种多功能的基因递送载体,以其低免疫原性以及能够转导多种细胞类型(包括分裂和非分裂细胞)而著称11。这使得AAV成为在复杂的视网膜环境中靶向特定细胞群体的理想工具。通过选用特定血清型和启动子的AAV载体,可在多种目标细胞类型(如视网膜神经节细胞(RGCs)和穆勒胶质细胞)中实现荧光蛋白的选择性表达。例如,AAV2在RGCs中具有较高的转导效率12,13,而AAV8在靶向光感受器细胞方面效果显著14,AAV9则在穆勒胶质细胞中表现出较强的转染能力15,并在多种视网膜细胞层中展现出广泛的转导效率。需要注意的是,AAV的有效性不仅取决于血清型的选择,还依赖于启动子,后者决定了外源基因表达的强度和细胞特异性,因此为实现最佳转导效果,需谨慎选择血清型与启动子组合。
对于RGC标记,本方案采用携带人源突触素(hSyn)启动子的AAV2。玻璃体内注射后,AAV2对RGC具有高效的转导能力。13,而hSyn启动子作为一种广泛存在的神经元特异性启动子,可在这些细胞中驱动外源基因的强效且特异性表达16对于穆勒胶质细胞,该方案采用由GfaABC1D启动子驱动的AAV9载体17,这表明在这些细胞中转基因表达水平较高15这种靶向标记方法使研究人员能够将这些细胞与周围的视网膜组织区分开来,并对其进行长期追踪,从而为 体内 视网膜细胞及其对生物环境变化反应的监测
共聚焦扫描激光检眼镜(confocal scanning laser ophthalmoscopy, CSLO)是一种无创成像技术,可提供活体视网膜的高分辨率图像,实现对荧光标记的视网膜细胞群体进行实时可视化18,19,20。该技术通过聚焦激光束扫描视网膜,收集穿过针孔的发射光,以消除离焦信号,从而获得对比度更高、更清晰的图像。本实验方案采用Heidelberg Spectralis CSLO系统,该系统已广泛用于活体动物的视网膜细胞成像,包括可视化转基因标记的视网膜神经节细胞(RGCs)21,22和小胶质细胞23的研究。通过使用HRA CSLO设备配备488 nm激光器及适当的滤光片,研究人员可在活体动物玻璃体内注射携带荧光报告基因的AAV载体后,对荧光标记的RGCs或Müller胶质细胞进行成像。该纵向成像方案每周进行一次,覆盖中央及周边视网膜,以追踪随时间发生的变化。为优先保障动物福利,本方案利用HRA CSLO设备的自动眼动追踪系统(ART),可在无需全身麻醉或接触镜的情况下实现精确图像采集。
本方案利用腺相关病毒(AAV)与共聚焦扫描激光检眼镜(CSLO)的联合优势,实现对特定视网膜细胞类型的长期监测 体内通过将AAV介导标记的细胞类型特异性与共聚焦扫描激光检眼镜(CSLO)的非侵入性、高分辨率成像能力相结合,该方法使研究人员能够研究视网膜神经节细胞(RGCs)和穆勒胶质细胞在不同刺激或干预下的动态变化。这些发现对于推动视网膜疾病新型诊断和治疗策略的开发具有重要意义。
方案
所有实验均遵循《眼科与视觉研究中动物使用ARVO声明》的规定,并经北京首都医科大学机构动物护理和使用委员会批准。所有实验均使用4周龄雄性C57BL/6J小鼠(体重15–20 g),饲养于温度受控的环境中,光照/黑暗周期为12小时/12小时。可自由获取标准啮齿类动物饲料和水 随意摄取本研究中所用试剂与设备的详细信息列于下文 材料表.
1. 腺相关病毒介导的视网膜细胞转染
注意:为了实现对视网膜神经节细胞(RGCs)的靶向转导,本实验方案采用AAV2-hSyn-eGFP,该载体含有hSyn启动子,可驱动增强型绿色荧光蛋白(eGFP)的高效表达。针对穆勒胶质细胞(Müller glia)的转导则使用AAV9-GfaABC1D-eGFP。为获得最佳的转导效率和强健的外源基因表达,建议用于小鼠玻璃体内注射的腺相关病毒(AAV)滴度至少为1 × 10¹² 病毒基因组(vg)/mL13。
- 进行AAV介导的视网膜细胞转染操作时,应严格遵守安全规程,防止意外暴露,确保工作环境安全。
- 涉及病毒载体的所有操作均应在经过认证的生物安全柜(BSC)内进行。操作人员在整个实验过程中必须穿戴适当的个人防护装备(PPE),包括实验服、手套和眼部防护装置。
- 所有锐器和生物危害性材料应按照机构安全规程妥善处置,以确保合规性并保护所有实验室人员的安全。
2. 病毒载体和动物的制备
- 取用保存在 -80 °C 的 AAV2-hSyn-eGFP 或 AAV9-GfaABC1D-eGFP 载体。使用前立即在冰上解冻,以保持病毒完整性。
- 以 50 mg/kg 剂量经腹腔注射戊巴比妥钠麻醉小鼠。在进行后续操作前,通过检测后肢足底反射确认麻醉深度。
- 修剪胡须,防止手术过程中干扰手术区域。用 20% 聚维酮碘溶液对眼眶区域消毒 2 秒,随后用无菌生理盐水彻底冲洗。
- 局部滴加一滴 0.5% 丙帕他卡因,以减轻不适并防止眼球不自主运动。
3. 病毒载体的处理与玻璃体内注射
- 取1 µL选定的AAV溶液(AAV2-hSyn-eGFP或AAV9-GfaABC1D-eGFP)转移至一片洁净且预冷的石蜡膜上,以避免温度波动影响病毒活性。
- 在眼科手术显微镜下,使用带有33 G斜面针头的Hamilton玻璃注射器吸取AAV溶液。
- 将小鼠置于显微镜下俯卧位,轻微倾斜头部以抬高拟注射的眼部。调节并优化显微镜放大倍数,清晰识别小鼠眼眶的上方区域。
- 将针头从角膜缘后方1-2 mm处的眼球上方巩膜边缘插入玻璃体腔。缓慢注射AAV溶液,以避免反流或压力引起的组织损伤。
注意:注射部位定位——在眼球的上方颞侧象限进行注射,位置约在角膜缘后方1 mm处。选择此位置可避开主要血管,并最大限度降低晶状体损伤风险。避免注射点过于靠近角膜缘,以防穿透虹膜或擦伤晶状体。避免血管区域——在注射前使用手术显微镜仔细检查预定注射部位是否存在可见血管。如发现血管,应轻微调整进针点以避开。进针时保持浅角度,与虹膜平行,进一步降低血管损伤风险。避免在同一区域重复注射,以减少视网膜下出血的风险。 - 保持针头留置30秒,使载体在玻璃体腔内充分扩散并沉降于视网膜表面,从而提高成功转导的概率。
- 缓慢撤出针头,以最大程度减少玻璃体反流的风险。
- 注射后立即在注射部位涂抹局部抗生素眼膏。确保眼膏均匀覆盖整个眼球表面,预防眼部感染和炎症。
注意:该抗生素 眼膏每克含1 mg地塞米松(Dexamethasone)、3500 IU硫酸新霉素(Neomycin Sulphate)和6000 IU硫酸多粘菌素B(Polymyxin B Sulphate)。 - 将小鼠置于加热垫上,以维持其在麻醉恢复期间的体温,并密切监测是否有任何痛苦或异常表现。待小鼠完全恢复且无并发症后,将其放回笼中,并提供正常的食物和饮水。
4. 在体 共焦扫描激光成像
- 动物准备
- 选择在玻璃体内注射 AAV2-hSyn-eGFP 或 AAV9-GfaABC1D-eGFP 后 4 周感染的小鼠。在眼球表面滴加一滴含有 0.5% 托吡卡胺和 0.5% 去氧肾上腺素的眼药水,使瞳孔扩张至约 2 mm 直径22。
注意:建议腺相关病毒(AAV)转导时间间隔至少为 4 周,以在玻璃体内注射后实现视网膜细胞的最佳荧光标记13。此外,在我们的视神经 crush(ONC)实验中,分别在感染后 4 周以及损伤后第 7 天和第 14 天对视网膜进行成像。选择这些时间点是为了同时捕捉 AAV 的初始表达以及 ONC 后视网膜变化的进展。 - 用一块干净的垫子覆盖成像平台,以避免操作过程中动物排泄物可能造成的污染。
注意:定制的成像平台为动物俯卧提供了充足的空间,确保稳定性,并在手动固定期间尽量减少移动,以获得最佳图像采集效果。 - 小心地将小鼠转移至成像平台上,在成像前给予 2–5 分钟的适应期,以最小化应激反应并促进其对成像环境的适应。
- 在第二位技术人员的协助下,轻柔地固定动物,同时在整个过程中保持其处于清醒状态。每成像 15 秒后提供 10 秒的休息间隔,以允许眨眼并维持角膜湿润。
注意:可轻柔擦拭头皮皮肤以诱导自发性眼睑抬起,避免使用强制性眼睑固定或夹子等额外装置,从而降低眼部损伤风险。不采用全身麻醉,以在长时间成像过程中保持光学清晰度,因为麻醉可能加重暂时性晶状体混浊。在整个操作过程中需平衡高质量图像采集与动物舒适性和安全性。整个操作应在 5 分钟内完成,以确保动物福利并维持成像质量。 - 通过微调焦旋钮(图 1B)和显微操作器(图 1C)调整头部姿势并对准相机镜头,以定位感兴趣区域(ROI),用于后续的 体内 成像。
- 选择在玻璃体内注射 AAV2-hSyn-eGFP 或 AAV9-GfaABC1D-eGFP 后 4 周感染的小鼠。在眼球表面滴加一滴含有 0.5% 托吡卡胺和 0.5% 去氧肾上腺素的眼药水,使瞳孔扩张至约 2 mm 直径22。
- 系统配置
- 在相机上安装非接触式 55° 广角镜头,以扩大眼底区域的视野。
- 将滤光轮设置到位置 A(血管造影),以启用红外(IR)和荧光血管造影(FA)成像模式(图 1A)。打开激光器和电源,激活共聚焦扫描激光检眼镜(CSLO)成像系统。
- 打开软件 Heidelberg Eye Explorer,点击菜单栏顶部的 新建患者 图标创建新的检查。输入相关动物信息,并在弹出窗口中接受默认的角膜曲率为 7.7 mm。
- 在控制面板屏幕上选择黄色的 开始 按钮(图 1E),以启动实时成像模式。
- 体内 CSLO 成像
- 在控制面板上选择 IR 模式(图 1G),使用 820 nm 激发波长进行自发荧光成像。为实现高分辨率成像,可通过窗口界面或手动控制面板(图 1F)激活 高分辨率(HR) 模式。
注意:红外反射(IR)成像通常是 CLSO 眼科成像的第一步,在荧光素血管造影(FA)之前获取,以提供基线视图。均匀照明、最少伪影以及对主要视网膜血管的清晰对焦,对于 z 平面对焦的可靠性及高质量 IR 图像的获取至关重要。 - 使用带 XYZ 显微操作器的操纵杆将镜头移向小鼠眼睛进行精细调节。检查光学透明度,并逆时针旋转灵敏度旋钮(图 1D),将眼底图像亮度降低至 40%–60%,从而避免眼底过曝并增强视网膜细节的可视化。
- 调节焦旋钮和显微操作器,直至在眼底清晰识别视盘和视网膜血管。
注意:最佳焦平面的标准包括:(1)眼底视野均匀照明,无暗角;(2)视盘周围照明均匀,无局部暗斑或畸变;(3)大视网膜血管管腔形态清晰,可见血流运动。 - 切换至 FA 模式(图 1H),使用激发波长为 488 nm 的固态蓝激光,并配合 500 nm 的阻挡滤光片。顺时针旋转灵敏度旋钮(图 1D),将眼底图像亮度提高至 50%–107%,以照亮目标视网膜区域。
- 将 ART 平均值(软件界面左下角的蓝色条)设置为至少 15,以提高信噪比。该功能对在同一位置获取的一系列 B 扫描进行平均,从而改善图像质量。
注意:虽然较高的 ART 平均值通常可通过平均化提升图像质量,但也会延长扫描时间。这种延长可能增加角膜脱水和动物疲劳的风险,这些因素在清醒动物成像时需仔细权衡。 - 重新对准视网膜内层,特别针对表达 GFP 的视网膜神经节细胞(RGCs)或 Müller 胶质细胞。进行精细调节,以确保目标细胞群(如 RGC 胞体和轴突,或 Müller 细胞胞体)的清晰照明。平衡成像灵敏度,以实现 GFP 阳性细胞的最佳可视化并防止信号过饱和。
注意:为获得 GFP 信号清晰度和亮度可比的图像,实验中所有小鼠的灵敏度采集参数应保持一致。 - 按下灵敏度旋钮(图 1D)以启动 ART 模式,该模式可在线生成实时平均图像。等待软件界面左下角的蓝色条(代表 ART 平均值)达到设定的 ART 值(≥ 20 帧),然后点击控制界面上的“采集”按钮以捕获眼底图像。
注意:在 ART 模式下,系统集成了眼动追踪功能,可在 体内 成像期间自动补偿轻微的眼球运动,从而持续聚焦于选定的视网膜焦平面。 - 一旦获得所需图像,通过按触摸面板上的 灵敏度 旋钮退出 ART 模式。
注意:为防止角膜干燥并允许自发眨眼,成像过程中每 15 秒实施一次 10 秒的休息间隔。 - 为观察鼻侧和颞侧视网膜区域,一边在屏幕上观察实时图像,一边水平移动相机头部。到达目标区域后,精细调节对焦,并按照步骤 2.3.1–2.3.8 所述开始成像过程。
注意:保持缓慢且受控的相机移动,同时确保眼底照明一致且明亮。若出现暗区,可使用显微操作器垂直调整相机位置并重新居中视网膜。 - 为成像上方视网膜,轻柔调整小鼠头部姿势至面朝上位置。适度向上倾斜相机头部,使其与上方视网膜区域对齐。根据需要重新调节对焦,并继续成像。
- 完成成像后,退出所有目标视网膜区域的采集窗口,图像将自动保存。在成像眼局部涂抹润滑剂,以维持角膜水合状态。
- 为开始对侧眼的检查,将动物重新放置于平台的对侧,并重复步骤 2.3.1–2.3.11。
- 在控制面板上选择 IR 模式(图 1G),使用 820 nm 激发波长进行自发荧光成像。为实现高分辨率成像,可通过窗口界面或手动控制面板(图 1F)激活 高分辨率(HR) 模式。
5. 图像处理与分析
- 图像导出与准备
- 打开 Heidelberg Eye Explorer 软件,选择质量良好的所需共焦扫描激光眼底成像(CSLO)会话。选择单张或连续的同一视网膜位置图像,并确保其灵敏度设置在时间上保持一致。
- 排除因聚焦不佳或角膜透明度差而导致的模糊图像,确保仅使用能够清晰显示视网膜结构的图像进行分析。将这些图像以 TIFF 格式导出,用于后续处理。
- 图像对齐与裁剪
- 根据相同的视网膜区域,按小鼠眼别对图像进行分组。
注:从 CSLO 系统获取的原始图像保存格式如下:TIFF 格式,尺寸为 1536 x 1536 像素,分辨率为 5.69 µm/像素,ART 值 ≥15。 - 对于随访检查,将图像导入合适的图像处理软件中。根据需要旋转并对齐图像,使其与基线图像的方向一致。在保存或导出处理后的图像时,使用能保持最高可能图像质量的设置,以尽量减少潜在的压缩伪影。
- 通过以血管结构和视盘作为解剖标志,将同一眼的时间序列 CSLO 图像旋转对齐至相应的基线图像。
注:仔细检查每张对齐后的图像,在进行裁剪前确保其满足以下标准:(1)完整捕获视网膜区域:图像必须完全包含目标视网膜区域,包括视盘和主要血管等关键解剖标志;(2)无运动伪影:图像应无因成像过程中眼球运动导致的模糊、条纹或结构重复;(3)最小化形变:图像应准确反映视网膜结构,无因成像角度或透镜效应引起的扭曲、拉伸或压缩伪影;(4)图像质量指标的平衡:评估背景噪声水平(无结构区域像素强度的标准差 < 5(0–255 尺度));信噪比(SNR > 20);照明一致性(六个图像象限间的变异系数 < 10%);图像均匀性(均质区域的变异系数 < 15%)。 - 选择对齐后的图像并以 TIFF 格式导出。对每个时间点,使用裁剪工具从质量合格的图像中随机选取并裁剪出 5–10 个区域(每个 300 x 300 像素),这些区域需包含 GFP 阳性细胞。将每个裁剪后的图像单独以 TIFF 格式导出,用于进一步分析。
- 根据相同的视网膜区域,按小鼠眼别对图像进行分组。
- 荧光强度测量
- 在 ImageJ/Fiji 中打开 裁剪后的 CSLO 图像(8 位灰度,300 x 300 像素)。
- 为检测荧光信号的整体变化,使用 分析 > 测量(或 Ctrl + M)测量每张裁剪图像的总荧光强度。记录 "平均值",该值代表整个裁剪图像的平均 GFP 荧光强度。
- RGC 定量分析
- 在 ImageJ/Fiji 中,使用 图像 > 调整 > 亮度/对比度 调整裁剪后 CSLO 图像的强度阈值,以在黑色背景下清晰显示单个白色胞体。
注:在审查整批裁剪图像后确定个性化的阈值,或应用一致的阈值算法(例如 ImageJ/Fiji 中的 Huang 方法5)。对于 Huang 方法:(1)将图像转换为 8 位灰度图像(图像 > 类型 > 8 位);(2)打开阈值工具(图像 > 调整 > 阈值);(3)选择 Huang 作为阈值方法;(4)预览分割结果并点击 应用。阈值将自动计算并在图像直方图中显示。 - 启用 细胞计数器 插件,点击每个 GFP 阳性的 RGC 胞体进行计数。记录分析区域内标记的细胞总数。对每个随访时间点的所有裁剪图像重复此过程。
- 在 ImageJ/Fiji 中,使用 图像 > 调整 > 亮度/对比度 调整裁剪后 CSLO 图像的强度阈值,以在黑色背景下清晰显示单个白色胞体。
- 数据分析
- 将细胞计数和荧光强度数据导出至电子表格或统计软件(例如 GraphPad Prism)。
- 根据相应的实验设计和假设进行适当的统计检验。解释结果并得出结论。
结果
根据所提供的实验方案,成功实现了对不同视网膜细胞的可视化与追踪 体内 通过结合AAV介导的基因递送与共焦扫描激光检眼镜(CSLO)技术。AAV2-hSyn-eGFP可有效转导视网膜神经节细胞(RGCs),在全视网膜范围内实现强烈的eGFP表达,该结果经CSLO确认,并通过与RGC特异性标志物RNA结合蛋白多剪接体(RBPMS)的共定位得到验证,后者特异性分布于节细胞层(图2 和 图3)。该方案还证实了利用 AAV9-GfaABC1D-eGFP 靶向穆勒胶质细胞的能力。共聚焦扫描激光检眼镜(CSLO)观察显示,eGFP 表达广泛,特异性分布于视网膜内层,与穆勒胶质细胞已知的主要分布区域一致。此外,GFP 阳性信号与穆勒胶质细胞标志物谷氨酰胺合成酶(GS)高度共定位,进一步验证了该方法的特异性(图2E,F 和 图3B)。这些结果再次证实了腺相关病毒(AAV)介导的基因递送在研究不同类型视网膜细胞中的广泛应用潜力。为验证其靶向穆勒胶质细胞的能力,使用了 AAV9-GfaABC1D-eGFP。共聚焦扫描激光检眼镜(CSLO)成像显示 eGFP 在视网膜内层广泛表达,且表达模式与已知的穆勒胶质细胞分布一致(图 2E,F)。这种选择性表达模式通过GFP信号与穆勒胶质细胞标志物谷氨酰胺合成酶(glutamine synthetase, GS)之间高度共定位的结果得到了进一步验证(图3B).
为了量化病毒靶向方法对RGCs和Müller胶质细胞的特异性和效率,进行了共定位分析,以比较GFP荧光与标准细胞类型标记物(图3B、D)。共分析了6只小鼠的眼睛。对于使用AAV2-hSyn-GFP靶向的RGCs,转导效率为64% ± 3%,转导特异性为68% ± 3%。对于使用AAV9-GfaABC1D-GFP靶向的Müller胶质细胞,转导效率为58% ± 2%,转导特异性为71% ± 2%。这些结果表明,这种AAV介导的基因递送方法能够实现对不同视网膜细胞类型的特异性标记,凸显了其在研究视网膜细胞和分子过程中的多功能性。
为评估共焦扫描激光检眼镜(CSLO)在长期监测视网膜细胞扰动中的适用性,在AAV2-hSyn-eGFP感染的小鼠中建立了短暂性视神经挤压(ONC)模型。在两周内观察到eGFP信号和视网膜神经节细胞(RGC)数量呈进行性下降(图 4RGC 存活率通过三个指标进行量化:CSLO 荧光强度, 体内 CSLO 图像的细胞计数,以及 离体 RBPMS阳性细胞的RGC计数。按照步骤4所述进行图像处理后,从每只视网膜(共6只眼)中截取至少10个感兴趣区域(ROIs),确保每个ROI涵盖相同的视网膜位置,并在每个时间点均显示出清晰的细胞信号。随后通过测量每个截取的ROI在各时间点内的平均荧光强度,定量CSLO荧光强度。 在体内, 通过在每个时间点手动计数同一裁剪后 ROI 内的单个 GFP 阳性 RGC,获得细胞计数。最后,收集视网膜进行 RBPMS 免疫染色,并对每只视网膜每个视网膜区域拍摄的 24 个定义区域内的 RBPMS 阳性细胞进行计数。在所有三种 RGC 存活指标(CSLO 荧光强度、 体内 细胞计数,以及 离体 RBPMS阳性细胞计数)以及ONC术后时间(p < 所有均为 0.001 图4C),表明RGC进行性丢失和退变。重要的是,不同实验组在初始RGC密度或下降速率方面均未观察到显著差异,说明ONC模型及成像方法具有良好的一致性。这些结果与既往关于ONC后RGC损伤的研究一致,验证了基于CSLO的该方案作为无创、可靠监测RGC健康状态工具的有效性。
为了进一步研究视网膜神经节细胞(RGC)轴突在视觉通路中的投射,采用双重标记方法,结合腺相关病毒(AAV)介导的eGFP标记与顺行示踪剂霍乱毒素亚基B(CTB)进行标记。24小鼠接受CTB玻璃体内注射,2天后处死并进行组织学分析。视神经中eGFP与CTB信号的共定位证实了RGC轴突的阳性示踪(图 5A为了进一步研究轴突损伤后信号的变化,对小鼠实施单侧视神经钳夹(ONC),该模型可造成急性视网膜神经节细胞损伤。25. 简而言之,小鼠经麻醉后,暴露一侧视神经,并在眼球后方约1 mm处用精细镊子夹压5秒,造成显著的视网膜神经节细胞(RGC)轴突切断及继发性退变。视神经夹伤(ONC)后,观察到eGFP和CTB荧光强度明显降低,表明神经纤维大量丢失及轴突运输功能受损。对脑组织切片的进一步分析显示,RGC投射至参与感觉运动整合与眼球运动的中脑结构——上丘(Superior Colliculus, SC),以及作为视觉信息向视觉皮层传递主要中继站的外侧膝状体核(Lateral Geniculate Nucleus, LGN)。ONC后,在损伤对侧观察到GFP荧光强度下降图5B-E这些发现表明,该方法在研究视网膜神经节细胞轴突变性及其投射模式定位方面具有实用价值 体内为传统侵入性示踪方法提供了一种潜在的替代方案。

图1共聚焦扫描激光眼底镜(CSLO)成像系统及用于活体视网膜成像的控制面板界面。 (A-D) 成像系统组件:这些图像展示了 HRA CSLO 设备的关键组件。A将滤光片拨杆设置为位置“A”,以进行红外反射(IR)和荧光素眼底血管造影(FA)联合成像。B) 调焦旋钮用于调节物镜的精细焦距。 (C显微操作仪可通过多个自由度(如X、Y、Z轴)和旋转,实现对光束在视网膜上精确定位、对准和照明。D) 灵敏度旋钮通过调节检测到的光信号的放大倍数,控制红外(IR)和荧光(FA)图像的亮度。按下该旋钮可启动图像平均功能,通过合并多帧图像以降低噪声并提高信噪比。 (E-H控制面板界面:截图显示了用于实时图像采集和可视化的CSLO控制面板设置。E启动采集控制面板。F建议使用高分辨率模式以获得最佳图像质量。G) 红外成像设置被突出显示,可用于观察视网膜结构和血管。HFA成像设置提供单点和多点荧光成像的选项,能够检测视网膜细胞内的荧光信号。 请点击此处以查看该图的放大版本。

图2: 体内 C57小鼠视网膜细胞经AAV转染后荧光标记的共聚焦扫描激光显微成像。 (A) 小鼠眼球经 AAV 转染后,采用 CSLO 进行纵向成像的实验时间线。B) C57小鼠视网膜上方区域和中央区域在表达AAV2-hSyn-eGFP 4周后的代表性共聚焦扫描激光眼底图像。比例尺: 500 µm. (C) 来自(的手工拼接视网膜全景图B) 展示了表达 eGFP 的视网膜细胞分布。比例尺: 500 µm. (D) 图(中框选区域的 CSLO 放大图像C)以及视网膜平铺片的相应共聚焦显微镜图像。eGFP(绿色)与RGC标记物RBPMS(红色)的共定位证实了AAV介导的视网膜神经节细胞表达(示例以圆圈标出)。比例尺: 50 µm. (E) AAV9-GfaABC1D-eGFP 注射后 4 周的 C57 小鼠视网膜手动拼接图像,显示穆勒胶质细胞特异性的 eGFP 表达。比例尺: 500 µm. (F) 图(E)中框选区域的放大CSLO图像及相应视网膜平铺片的共聚焦显微镜图像。eGFP(绿色)与 Müller 胶质细胞标志物谷氨酰胺合成酶(GS,红色)的共定位证实了AAV介导的Müller胶质细胞表达(示例以圆圈标出)。比例尺: 50 µm. 请点击此处以查看此图的放大版本。

图3:AAV介导的基因递送在小鼠视网膜中的细胞类型特异性。(A)C57小鼠在感染AAV2-hSyn-eGFP 4周后,视网膜切片和平铺片的免疫组织化学染色结果。GFP(绿色)与RBPMS(红色)的共定位证实了RGC特异性表达。比例尺:50 µm。(B)AAV2-hSyn-GFP在RGC中转导效率与特异性的定量分析。效率表示为视网膜平铺片中同时表达GFP的RBPMS阳性RGC所占的百分比。特异性表示为视网膜切片中同时为RBPMS阳性的GFP阳性细胞所占的百分比(n = 4只小鼠的6只眼睛)。(C)C57小鼠在感染AAV9-GfaABC1D-eGFP 4周后,视网膜切片和平铺片的免疫荧光染色结果。GFP(绿色)与GS(红色)的共定位证实了Müller胶质细胞特异性表达。比例尺:50 µm。(D)AAV9-GfaABC1D-GFP在Müller胶质细胞中转导效率与特异性的定量分析。效率表示为视网膜平铺片中同时表达GFP的GS阳性Müller胶质细胞所占的百分比。特异性表示为视网膜切片中同时为GS阳性的GFP阳性细胞所占的百分比(n = 3只小鼠的6只眼睛)。请点击此处查看该图的放大版本。

图 4:AAV2-hSyn-eGFP 小鼠急性视神经钳夹(ONC)后通过纵向共聚焦扫描激光检眼镜(CSLO)监测视网膜神经节细胞(RGC)存活情况。 (A)AAV 感染后急性视神经损伤实验时间线示意图。 (B)AAV2-hSyn-eGFP 小鼠在基线、ONC 后 7 天及 14 天对同一视网膜进行的纵向 CSLO 成像,显示表达 GFP 信号的 RGC。右侧展示方框区域的放大图像,并附代表性视网膜铺片共聚焦显微镜图像,用以展示 RGC 的形态与分布。比例尺:100 µm。 (C)通过测量细胞数量及 CSLO 荧光强度相对于基线的百分比变化,评估 ONC 后两周内 RGC 存活率(均值 ± 标准误)。各时间点组间差异无统计学意义(单因素方差分析)。线性回归分析显示,损伤后时间与基于 GFP 荧光的 RGC 存活指标之间存在显著负相关(r² = 0.945,p < 0.001)、RBPMS 染色(r² = 0.888,p < 0.001)、CSLO 细胞计数(r² = 0.511,p < 0.001)以及 CSLO 荧光强度(r² = 0.7486,p < 0.001)。每组每时间点 n = 6 只小鼠。 请点击此处查看该图的放大版本。
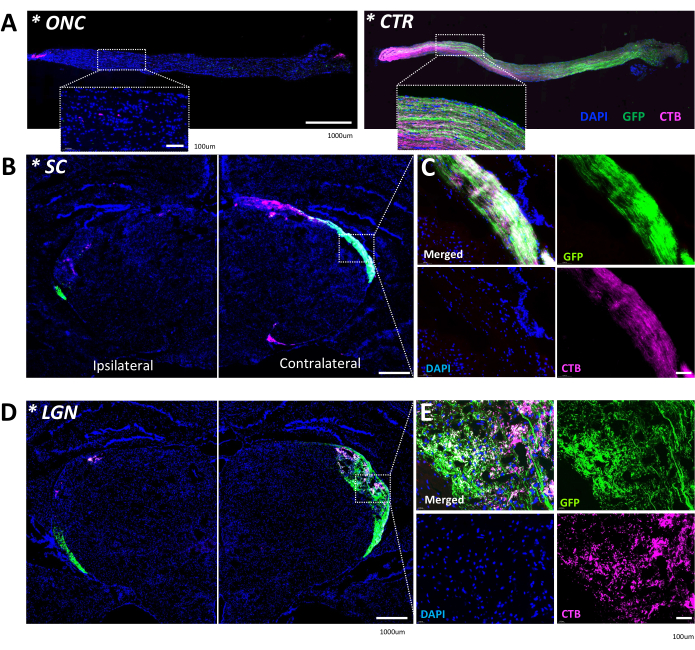
图 5:通过 AAV 辅助的视网膜神经节细胞(RGC)轴突投射在视觉通路中的定位图谱。(A)来自 AAV2-hSyn-eGFP 小鼠的一对视神经代表性荧光显微图像,显示 GFP 标记的 RGC 轴突(绿色)以及与顺行性轴突示踪剂霍乱毒素 B(CTB,品红色)的共定位。上图展示了整个视神经的概览(比例尺:1000 µm),下图则提供了方框区域的放大视图(比例尺:100 µm)。视神经损伤(ONC)后两周,GFP 和 CTB 信号在整个视神经中均显著减少(左侧),表明沿视觉通路的 RGC 轴突丢失和结构中断。(B)RGC 轴突向中脑上丘(SC)的投射。ONC 后两周的 AAV2-hSyn-eGFP 小鼠冠状脑切片显示 SC 内 GFP 标记的 RGC 轴突(绿色)和 CTB 染色(品红色)。左侧(L):对侧 SC;右侧(R):同侧 SC(ONC 损伤侧)。比例尺:1000 µm。(C)(B)中方框区域的放大视图,展示了 GFP 与 CTB 信号的共定位(合并图像),突出显示 RGC 轴突束及其在 SC 内的投射模式。比例尺:100 µm。(D)ONC 后 RGC 轴突向外侧膝状体核(LGN)的投射,显示 LGN 内 GFP 标记的 RGC 轴突(绿色)和 CTB 染色(品红色)。左侧(L):对侧 LGN;右侧(R):同侧 LGN(ONC 损伤侧)。比例尺:1000 µm。(E)(D)中方框区域的放大视图,突出显示 LGN 内 RGC 轴突束及其投射模式。比例尺:100 µm。 请点击此处查看该图的高清版本。
讨论
本方案详细介绍了一种稳定且易于实施的体内监测特定视网膜细胞群体的方法,结合了腺相关病毒(AAV)介导的基因递送与共焦扫描激光检眼镜(CSLO)成像技术的优势。该方法相较于传统手段具有多项优势,可促进在生理或病理条件下对视网膜细胞动态变化及其对损伤或疾病反应的纵向研究。
该方法的成功取决于多个关键步骤。首先,实现最佳的AAV转导效率对于在目标细胞群体中实现荧光报告基因的强效且特异性的表达至关重要。这一过程可能受到多种因素的影响,包括AAV血清型的选择、病毒滴度以及注射技术13,15,16。其次,在共焦扫描激光眼底成像(CSLO)过程中对动物进行恰当的操作与固定,对于减少运动伪影并保持图像质量至关重要。使用定制的成像平台并避免使用全身麻醉,有助于清晰且稳定地观察视网膜结构。第三,必须仔细优化CSLO成像参数,包括焦距、灵敏度和平均设置,以获得高分辨率、低噪声且信噪比最优的图像26。最后,为应对潜在的局限性并确保数据的可靠性,我们在研究设计中实施了严格的数据质量控制措施,并增加了动物数量。
Spectralis HRA CSLO 系统具备自动眼动追踪功能,可提升临床纵向成像效果。其自动实时(ART)追踪功能可在成像过程中锁定特定视网膜区域,减少运动伪影。在人类临床成像中,该系统还包含一种用于长期追踪同一解剖学视网膜位置的算法27。然而,由于人眼与啮齿类动物眼睛在解剖结构上存在显著差异,这些技术并未针对啮齿类动物研究进行优化。啮齿类动物的眼睛更小(直径为3-4 mm,而人类为24 mm),且缺乏黄斑等特定解剖标志,这给自动化追踪带来了独特挑战28。因此,研究啮齿类动物模型的科研人员主要依赖手动方法,利用血管分布模式和视神经乳头等解剖标志来定位特定视网膜区域,并在不同成像会话之间保持一致的成像平面13,22。这种做法不仅是因为啮齿类动物眼睛中可用的解剖标志有限,还因为实验干预可能引起显著的视网膜变化,从而干扰未针对这些特定挑战设计的自动化系统。因此,开发适用于啮齿类动物视网膜成像的专用眼动追踪与对准算法,是未来研究的一个关键方向。特别是将长期追踪算法适配于小型动物使用,有望显著提高纵向研究的精确性与可重复性。
虽然传统的组织学技术需要牺牲动物,无法进行纵向研究,但这种腺相关病毒(AAV)辅助的共焦扫描激光成像(CSLO)方法为监测视网膜细胞动态提供了非侵入性手段 体内该方法基于先前的研究,这些研究证明了cSLO成像在追踪视网膜特定细胞损伤后纵向变化方面的有效性,尤其是在利用转基因荧光蛋白标记的动物模型中。19,21,22,29这些研究凸显了共焦扫描激光检眼镜(CSLO)在可视化多种视网膜细胞事件方面的能力 体内包括细胞死亡、存活,以及可能的迁移或突起生长。本方案拓展了该技术的应用,用于研究腺相关病毒(AAV)介导的特定视网膜细胞群体的转导,使我们能够监测AAV递送及外源基因在视网膜内表达的长期效应,从而为视网膜疾病进展及治疗干预效果提供关键见解。目前临床评估主要通过光学相干断层扫描(OCT)测量视网膜神经纤维层厚度,以评估视网膜神经节细胞(RGC)轴突的丢失情况9,但其分辨率不足以评估单个视网膜神经节细胞(RGC)的形态或胶质细胞的参与情况。尽管自适应光学扫描激光检眼镜(AO-SLO)能够实现活体人视网膜的细胞级成像10,其复杂性及有限的可获得性主要限制了它在研究环境中的应用。此外,在自适应光学扫描激光检眼镜(AO-SLO)中区分不同胶质细胞类型通常需要额外的标记方法30该方法通过提供一种更全面且便捷的方法,用于随时间推移对单个视网膜神经节细胞(RGCs)及其他荧光标记的视网膜细胞群体进行可视化和追踪,从而克服了上述局限性。这为研究不同条件下细胞的响应机制开辟了新途径,有助于推动靶向治疗策略的开发。此外,将腺相关病毒(AAV)辅助的共聚焦扫描激光检眼镜(CSLO)成像与光遗传学技术相结合31 或钙成像32 可进一步加深对视网膜细胞功能及其在视觉信息处理、神经环路发育和再生中作用的理解。
尽管该方法具有优势,但仍需认识到一些局限性和潜在的故障排除问题。AAV转导效率可能存在变异,因此需要针对特定细胞类型或实验条件优化注射参数或病毒滴度。共焦扫描激光检眼镜(CSLO)成像可能受到角膜混浊、泪膜不稳定以及眼球运动等因素的影响,在图像采集过程中需要仔细监测并进行相应调整。此外,CSLO的穿透深度有限,仅能观察视网膜内层结构,可能无法显示光感受器等更深层的结构33。Spectralis cSLO系统能够清晰显示视网膜内不同的细胞特征和分布模式34。虽然在某些条件下,该成像方式可实现单细胞观察——如先前研究中在稀疏标记的Thy1-YFP小鼠中可视化单个视网膜神经节细胞(RGCs)所示22——但在标记密集的情况下,对单个细胞进行定量分析仍具挑战性。例如,在本研究中,通过AAV介导的视网膜感染实现RGCs的大规模eGFP标记,有时会妨碍对单个细胞的清晰识别,尤其是在表达水平不均和细胞重叠的区域。当对Müller胶质细胞成像时,这一挑战更为突出,因其细长的形态贯穿整个视网膜厚度35,使用cSLO难以在单一焦平面上完整捕捉单个细胞。因此,对AAV9介导的Müller胶质细胞感染效率的评估,主要依赖于通过CSLO成像分析整体转导模式和分布情况。
此外,尽管HRA系统中的ART平均技术能够提升图像质量,但扫描时间的延长带来了实际应用中的限制,尤其是在清醒动物成像过程中。选择ART平均值为15旨在平衡图像质量与扫描时长,在实现足够噪声抑制的同时保持合理的扫描时间。为尽量减少动物的不适与应激反应,需优化成像流程以提高效率,由经过培训且熟练掌握清醒动物操作与成像技术的人员执行实验,并在成像过程中密切监测动物是否出现不适或角膜干燥等迹象。这些措施对于保障数据质量与动物福利至关重要,凸显了在采用ART平均技术时兼顾二者的重要性 体内 清醒动物模型中的视网膜成像
通过认识这些局限性和潜在的变异来源,研究人员可以采取适当的措施来优化成像方案,最大限度地减少伪影,并确保其数据的可靠性和可重复性。
总体而言,这种易于实施且可快速开展的方法为研究视网膜神经节细胞(RGCs)与穆勒胶质细胞之间的复杂相互作用提供了强有力的手段,尤其是在损伤或疾病条件下的响应机制。通过使研究人员能够可视化并量化这些动态相互作用,该方法有助于揭示视网膜病理过程中潜在的新型细胞与分子机制。进而为开发靶向治疗策略及更有效的疾病应对措施提供了重要线索。
披露
作者无任何利益冲突需要披露。
致谢
本工作受到国家自然科学基金(82130029)资助。图2A 和 图4A 使用 BioRender.com 制作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 33 号针头 | Hamilton Corp., Reno, NV, USA | 7803-05 | 用于玻璃体内注射 |
| 0.5% 丙帕他卡因 | Santen Pharmaceutical Co., Ltd. | 局部麻醉剂 | |
| AAV2-hSyn-eGFP | OBiO Technology Corp., China | 病毒滴度:2.7 × 10¹² 病毒基因组 (vg)/mL | |
| AAV9-GfaABC1D-eGFP | WZ Biosciences Inc., China | 病毒滴度:4.5 × 10¹² 病毒基因组 (vg)/mL | |
| 聚维酮碘 | Healthy medical company | 001651 | 局部消毒剂 |
| 角膜巩膜镊(有齿) | 明仁眼科器械,中国 | MR-F301A | 用于玻璃体内注射时固定眼睑 |
| Dumont 05# 镊子 | FST | 51-AGT5385 | 用于视神经挤压 |
| GraphPad Prism | GraphPad Prism, USA | 图形绘制与统计分析 | |
| HRA Spectralis | Heidelberg Engineering, GmbH, Dossenheim, Germany | "IR" 和 "FA" 模式用于共焦扫描激光眼底成像(CSLO) | |
| Image J/Fiji | National Institutes of Health, USA | 图像处理 | |
| Maxitrol 抗生素眼膏 | Alcon Laboratories, INC. USA | 0065-0631 | 局部抗生素 |
| 微量注射器 | Hamilton Corp., Reno, NV, USA | 7633-01 | 用于玻璃体内注射 |
| 美多丽-P 滴眼液 | Santen Pharmaceutical Co.,Ltd, Japan | 散瞳 | |
| 眼科手术显微镜 | Leica AG, Heerbrugg, Switzerland | M220 | 用于外科手术 |
| 戊巴比妥钠 | Sigma Aldrich, USA | 57-33-0 | 全身麻醉剂 |
| PowerPoint | Microsoft Corporation, USA | 图像对齐与裁剪 | |
| VISCOTEARS 液体凝胶(卡波姆) | Dr. Gerhard Mann, Chem.-Pharm. Fabrik, Germany | 局部润滑剂 |
参考文献
- Cheung, C. Y., Ikram, M. K., Chen, C., Wong, T. Y. Imaging retina to study dementia and stroke. Prog Retin Eye Res. 57, 89-107 (2017).
- Ju, W. K., et al. Glaucomatous optic neuropathy: Mitochondrial dynamics, dysfunction and protection in retinal ganglion cells. Prog Retin Eye Res. 95, 101136(2023).
- Vecino, E., Rodriguez, F. D., Ruzafa, N., Pereiro, X., Sharma, S. C. Glia-neuron interactions in the mammalian retina. Prog Retin Eye Res. 51, 1-40 (2016).
- Llorián-Salvador, M., Cabeza-Fernández, S., Gomez-Sanchez, J. A., De La Fuente, A. G. Glial cell alterations in diabetes-induced neurodegeneration. Cell Mol Life Sci. 81 (1), 47(2024).
- Zhao, N., Hao, X. N., Huang, J. M., Song, Z. M., Tao, Y. Crosstalk between microglia and müller glia in the age-related macular degeneration: Role and therapeutic value of neuroinflammation. Aging Dis. 15 (3), 1132-1154 (2023).
- Minhas, G., Sharma, J., Khan, N. Cellular stress response and immune signaling in retinal ischemia-reperfusion injury. Front Immunol. 7, 444(2016).
- Miao, Y., Zhao, G. L., Cheng, S., Wang, Z., Yang, X. L. Activation of retinal glial cells contributes to the degeneration of ganglion cells in experimental glaucoma. Prog Retin Eye Res. 93, 101169(2023).
- Leung, C. K. S., et al. Diagnostic assessment of glaucoma and non-glaucomatous optic neuropathies via optical texture analysis of the retinal nerve fibre layer. Nat Biomed Eng. 6 (5), 593-604 (2022).
- Hood, D. C., et al. Detecting glaucoma with only OCT: Implications for the clinic, research, screening, and AI development. Prog Retin Eye Res. 90, 101052(2022).
- Burns, S. A., Elsner, A. E., Sapoznik, K. A., Warner, R. L., Gast, T. J. Adaptive optics imaging of the human retina. Prog Retin Eye Res. 68, 1-30 (2019).
- Dinculescu, A., Glushakova, L., Min, S. H., Hauswirth, W. W. Adeno-associated virus-vectored gene therapy for retinal disease. Hum Gene Ther. 16 (6), 649-663 (2005).
- Nickells, R. W., Schmitt, H. M., Maes, M. E., Schlamp, C. L. AAV2-mediated transduction of the mouse retina after optic nerve injury. Invest Ophthalmol Vis Sci. 58 (14), 6091-6104 (2017).
- Cao, X., Yung, J., Mak, H., Leung, C. K. S. Factors governing the transduction efficiency of adeno-associated virus in the retinal ganglion cells following intravitreal injection. Gene Ther. 26 (3-4), 109-120 (2019).
- Vandenberghe, L. H., et al. Dosage thresholds for AAV2 and AAV8 photoreceptor gene therapy in monkey. Sci Transl Med. 3 (88), 88ra54(2011).
- Gao, Y., et al. Develop an efficient and specific AAV-based labeling system for Muller glia in mice. Sci Rep. 12 (1), 22410(2022).
- Nieuwenhuis, B., et al. Improving adeno-associated viral (AAV) vector-mediated transgene expression in retinal ganglion cells: Comparison of five promoters. Gene Ther. 30 (6), 503-519 (2023).
- Kawabata, H., et al. Improving cell-specific recombination using AAV vectors in the murine CNS by capsid and expression cassette optimization. Mol Ther Methods Clin Dev. 32 (1), 101185(2024).
- Smith, C. A., Chauhan, B. C. In vivo imaging of adeno-associated viral vector labelled retinal ganglion cells. Sci Rep. 8 (1), 1490(2018).
- Smith, C. A., Chauhan, B. C. Imaging retinal ganglion cells: Enabling experimental technology for clinical application. Prog Retin Eye Res. 44, 1-14 (2015).
- Leung, C. K. S., et al. Longitudinal profile of retinal ganglion cell damage after optic nerve crush with blue-light confocal scanning laser ophthalmoscopy. Invest Ophthalmol Vis Sci. 49 (11), 4898(2008).
- Leung, C. K. S., et al. In vivo imaging of murine retinal ganglion cells. J Neurosci Methods. 168 (2), 475-478 (2008).
- Mak, H. K., Ng, S. H., Ren, T., Ye, C., Leung, C. K. S. Impact of PTEN/SOCS3 deletion on amelioration of dendritic shrinkage of retinal ganglion cells after optic nerve injury. Exp Eye Res. 192, 107938(2020).
- Kokona, D., Jovanovic, J., Ebneter, A., Zinkernagel, M. S. In Vivo imaging of Cx3CR1GFP/GFP reporter mice with spectral-domain optical coherence tomography and scanning laser ophthalmoscopy. J Vis Exp. (129), e55984(2017).
- Abbott, C. J., et al. Imaging axonal transport in the rat visual pathway. Biomed Opt Express. 4 (2), 364-386 (2013).
- Levkovitch-Verbin, H., et al. RGC death in mice after optic nerve crush injury: Oxidative stress and neuroprotection. Invest Ophthalmol Vis Sci. 41 (13), 4169-4174 (2000).
- LaRocca, F., et al. Optimization of confocal scanning laser ophthalmoscope design. J Biomed Opt. 18 (7), 076015(2013).
- Vienola, K. V., et al. Real-time eye motion compensation for OCT imaging with tracking SLO. Biomed Opt Express. 3 (11), 2950-2963 (2012).
- Geng, Y., et al. Optical properties of the mouse eye. Biomed Opt Express. 2 (4), 717-738 (2011).
- Bosco, A., Romero, C. O., Ambati, B. K., Vetter, M. L. In vivo dynamics of retinal microglial activation during neurodegeneration: Confocal ophthalmoscopic imaging and cell morphometry in mouse glaucoma. J Vis Exp. (99), e52731(2015).
- Joseph, A., Power, D., Schallek, J. Imaging the dynamics of individual processes of microglia in the living retina in vivo. Biomed Opt Express. 12 (10), 6157-6170 (2021).
- Chaffiol, A., et al. A new promoter allows optogenetic vision restoration with enhanced sensitivity in macaque retina. Mol Ther. 25 (11), 2546-2560 (2017).
- Li, L., et al. Longitudinal in vivo Ca2+ imaging reveals dynamic activity changes of diseased retinal ganglion cells at the single-cell level. Proc Natl Acad Sci U S A. 119 (48), e2206829119(2022).
- Bille, J. F. Optical Coherence Tomography (OCT): Principle and technical realization. High-resolution imaging in microscopy and ophthalmology: New Frontiers in Biomedical Optics. , Springer International Publishing. 59-85 (2019).
- Spaide, R. F., et al. Lateral resolution of a commercial optical coherence tomography instrument. Transl Vis Sci Technol. 11 (1), 28(2022).
- Franze, K., et al. Muller cells are living optical fibers in the vertebrate retina. Proc Natl Acad Sci U S A. 104 (20), 8287-8292 (2007).
重印与许可
标签
本文已发表
视频即将推出