本文介绍了一种评估植入物表面免疫调节潜力的详细实验方案 体外旨在提高现有实验方案的可靠性和可重复性,并推动进一步研究。通过使用人外周血单核细胞来源的巨噬细胞,检测其在钛材料表面培养时的分泌性细胞因子谱、mRNA表达及细胞表面标志物,以研究巨噬细胞的极化状态。
本文内容
摘要
摘要
异物反应(FBR)是一种由免疫介导的复杂愈合过程,在植入物与机体整合中起着关键作用。巨噬细胞作为免疫系统与植入物表面相互作用的第一道防线,在调控炎症与再生平衡中发挥双向作用。为了深入理解并评估植入材料与免疫反应之间的相互作用,需要可靠的 体外 方法与方案至关重要。在不同 体外 模型、原代单核细胞来源的巨噬细胞(MDMs)是研究巨噬细胞-植入物相互作用的优良模型。我们建立了一种实验方案,用于评估在植入物表面将MDMs极化为M1(经典活化)和M2(替代活化)巨噬细胞。我们从健康供体分离外周血单核细胞,并使用巨噬细胞集落刺激因子(M-CSF)将其分化为巨噬细胞。将已分化的巨噬细胞接种于植入物表面,并进一步诱导其向M1和M2亚型极化。M1极化通过添加干扰素(IFN)-γ和脂多糖(LPS)实现,而M2极化则在含有白细胞介素(IL)-4和IL-13的培养基中进行。我们采用酶联免疫吸附测定法(ELISA)评估巨噬细胞表型 酶联免疫吸附试验(ELISA)、共聚焦激光扫描显微镜(CLSM)以及基于分泌性细胞因子、细胞表面标志物和表达基因的定量实时聚合酶链式反应(qRT-PCR)。提取的RNA被逆转录为互补DNA(cDNA),并采用qRT-PCR对与M1和M2型巨噬细胞相关的mRNA进行定量。结果显示,与M2型巨噬细胞相比,M1型巨噬细胞表现出更高的促炎性肿瘤坏死因子(TNF-α)细胞因子和CCR7表面标志物的表达水平 巨噬细胞表现出更高水平的CD209和CCL13。因此,通过免疫染色并结合共聚焦激光扫描显微镜(CLSM)观察,CD209和CCR7被鉴定为M1和M2型巨噬细胞亚型的特异且可靠的标志物。进一步通过ELISA检测证实,M1型细胞中TNF-ɑ水平升高,M2型细胞中CCL13水平增加。所提出的标志物及实验体系可有效用于评估植入物的免疫调节潜力。
引言
可植入生物材料已成为治疗多种人类疾病的常规解决方案,并在生物医学研究中发挥着重要作用,包括组织工程、药物递送系统和植入物1,4。目前有多种由不同材料制成、具有不同结构和功能的植入物,例如髋关节假体、支架、网片、心脏瓣膜或牙科植入物。植入后,组织与植入物的接触会引发免疫反应,随后经历消退、组织重塑和稳态建立过程。这些过程受到所用生物材料的物理、化学和生物活性特性的显著影响。这些特性可能影响促炎和抗炎反应的强度与范围、纤维囊形成、组织降解以及愈合阶段3,4。为了支持并优化愈合过程及植入物的长期整合,当前研究的一个新兴方向是探究并调控植入物表面与免疫细胞之间的相互作用。
在多种免疫细胞中,巨噬细胞遍布全身,是炎症反应、抗病原体防御以及组织修复过程和维持组织稳态中的关键参与者5,6。根据其可塑性以及局部组织微环境的刺激信号,巨噬细胞能够极化为不同功能表型,这些表型在细胞代谢、细胞功能和细胞因子分泌谱方面表现出显著差异。经典活化的M1表型以分泌促炎性细胞因子(如IL-1β、IL-6和TNF-α)为特征,参与创伤和外来生物材料引起的初始及慢性炎症反应。相反,替代性活化的M2巨噬细胞由IL-4和IL-13等细胞因子触发,具有缓解炎症和促进组织修复的典型特征。M2极化的巨噬细胞可通过表达CD206等细胞表面标志物以及产生IL-10和IL-4等细胞因子加以识别7。类似地,已极化的巨噬细胞在新的微环境中也可重新编程自身表型。
许多关于细胞与生物材料相互作用的研究表明,巨噬细胞在针对可植入生物材料的免疫反应级联中以及在调控与植入物相关并发症愈合过程的机制中具有重要作用8,9,10。尽管近年来生物医学工程取得了显著进展,但仍需进一步研究以深入了解植入物如何调节巨噬细胞的行为及其极化状态11,12,13。
在细胞培养中,可将单核细胞来源的外周血单个核细胞(PBMCs)分化为贴壁的M0型巨噬细胞,随后分别使用LPS与IFN-γ或IL-4诱导其极化为M1或M2表型。之后 体外 通过与新型生物材料样本共孵育,可利用M1和M2型巨噬细胞不同的细胞表面受体及细胞因子谱,检测生物材料的免疫调节潜力 体外14,15本研究旨在开发一种 体外 可用于研究不同植入物表面诱导单核细胞来源巨噬细胞极化反应的实验方案。基因表达分析、显微镜技术及酶联免疫吸附测定 可用于确定生物材料调控下M1和M2型巨噬细胞的表型标志物及特异性细胞因子谱。因此,可阐明巨噬细胞与生物材料表面之间的复杂相互作用,并获得有助于深入理解巨噬细胞-生物材料相互作用的有价值信息。最后,一种标准化的 体外 实验方案通过最大限度减少变量,确保实验结果的可重复性、可靠性和可比性 实验设置的变异性
方案
人外周血来自健康献血者,采集过程遵循图宾根大学医学院伦理委员会批准的方案(伦理批准号:286/2021 BO)。人外周血单个核细胞(PBMC)采用密度梯度离心法分离,方法如前所述16。以下方案适用于从 24 mL 血液中分离 PBMC。该方案的示意图见图 1。
注意:应根据所用 M0 巨噬细胞的数量调整血容量。
从24 mL血液中获得总计35.46 ± 9.1百万个PBMCs,最终得到1.97 ± 0.46百万个M0巨噬细胞(n = 5)。所有试剂、耗材和设备均列于材料表中。缓冲液列于表1中。
1. 人血液单核细胞向巨噬细胞的分化
- 将分离的外周血单个核细胞(PBMCs)重悬于15 mL预热的单核细胞贴壁培养基中,并转移至一个T75细胞培养瓶中。
- 在37 °C、5% CO2条件下孵育90分钟,以促进细胞贴壁。
- 弃去上清液,用预热的完全培养基轻轻倾斜洗涤细胞一次,以去除未贴壁或贴壁不牢的细胞。
注意:贴壁的细胞为单核细胞,约占最初加入培养瓶的总PBMCs的10%。 - 向贴壁细胞中加入15 mL含有10 ng/mL巨噬细胞集落刺激因子(M-CSF)的完全培养基,孵育6天以促进其分化。
- 每隔2天更换一次新鲜的完全培养基,其中含10 ng/mL M-CSF。
2. 在钛种植体表面培养和极化单核细胞来源的巨噬细胞
注意:在分化第6天,将M0型巨噬细胞接种于不同刺激条件下的生物材料表面,培养48小时以获得完全极化的M1或M2型巨噬细胞。针对每种被检测的表面,分别使用三个圆片接种M0、M1和M2型巨噬细胞。以细胞培养处理过的塑料盖玻片作为对照表面。
- 从T75培养瓶中移除培养基,并用10 mL PBS洗涤细胞5分钟。
- 加入10 mL预热的细胞解离液,孵育30分钟,使贴壁细胞脱落。
- 轻轻敲击培养瓶使细胞进一步脱落,转移至50 mL离心管中;用10 mL PBS轻轻刮取残留细胞并收集至同一离心管。
- 将解离后的细胞转移至50 mL离心管中,在300 × g 条件下离心10分钟。
- 弃去上清液,将细胞沉淀重悬于5 mL预热的完全培养基中。
- 使用台盼蓝染色和血细胞计数板对细胞进行计数,以确定细胞数量和活率。
- 调整细胞密度,使每1 mL完全培养基中含有160,000个细胞,制备成细胞悬液。
- 将生物材料圆片在70%乙醇中进行超声清洗5分钟,随后在70%乙醇中灭菌30分钟。
- 将钛片干燥1–2小时,放入未经表面处理的24孔板中,每孔加入1 mL制备好的细胞悬液。
- 为获得M1极化巨噬细胞,加入终浓度分别为50 ng/mL的IFN-γ和10 ng/mL的LPS;为诱导M2极化,加入终浓度均为20 ng/mL的IL-4和IL-13。M0组细胞不添加任何极化因子。将细胞在37 °C、5% CO2条件下继续孵育48小时以诱导极化。
3. 使用 ELISA 表征极化巨噬细胞
注意:在极化的第2天,制备样品用于表征分析。分别通过检测TNF-ɑ细胞因子和CCL13趋化因子来表征M1和M2极化巨噬细胞。分泌蛋白的浓度均归一化至相应上清液中分泌蛋白的总浓度。
- 将上清液收集到1.5 mL离心管中,在300 ×g条件下离心5分钟。将上清液转移至新离心管中。
- 将圆片转移至新的24孔板中以进行后续实验。目的是去除未经处理的24孔板中已死亡或松散附着的细胞。
注意:在进行任何分析之前,应验证细胞在材料表面的存活率。细胞存活率可通过活/死细胞染色检测直接评估,或通过细胞增殖和细胞毒性实验间接评估。 - 根据试剂盒制造商提供的具体说明检测细胞因子和趋化因子。可立即检测细胞因子,或将样品在-80 °C保存以备后续检测。
注意:针对每种类型的试剂盒(需考虑ELISA试剂盒的灵敏度和检测限),应确定合适的样品稀释比例。在双辛可宁酸(BCA)法检测中,样品按1:5稀释;TNF-ɑ的M1样品按1:10稀释,CCL13的M2样品按1:12稀释。 - 根据制造商提供的标准曲线计算分泌型细胞因子/趋化因子的浓度。
- 使用BCA蛋白检测试剂盒测定总蛋白含量。
- 将分泌蛋白的浓度归一化为每毫克总蛋白的含量。
4. 使用共聚焦激光扫描显微镜表征极化巨噬细胞
注意:通过使用针对 CD209 和 CCR7 细胞表面标志物的抗体对极化巨噬细胞进行染色,进一步表征其特性。细胞核使用 DRAQ5 进行复染。CD68 或其他标志物可作为全巨噬细胞标志物使用。
- 用 800 µL PBS 洗涤细胞 2 次。将载片置于 400 µL 固定液中,室温(RT)孵育 20 分钟。
- 去除固定液后,用 400 µL PBS 洗涤 3 次。立即进行染色,或在 1 mL 储存液中于 4 °C 保存。
注意:采用此固定和储存方案,样品在固定后 1–6 周内仍可成功染色并成像。 - 进行下一步前,将载片储存后用 800 µL PBS 洗涤 2 次。
- 加入 400 µL 封闭液,室温孵育 30 分钟,以封闭非特异性结合位点。
- 弃去封闭液,加入用 400 µL 染色缓冲液稀释的一抗,室温孵育 1 小时。
- 采用双重染色免疫荧光法,在同一样品中检测 CCR7 和 CD209 的表达。为此,在同一染色步骤中联合使用来自不同物种(小鼠和兔)的一抗。
注意:为获得强信号并减少背景,需优化抗体浓度。CCR7 抗体终浓度为 10 µg/mL,CD209 抗体稀释比例为 1/400。
- 采用双重染色免疫荧光法,在同一样品中检测 CCR7 和 CD209 的表达。为此,在同一染色步骤中联合使用来自不同物种(小鼠和兔)的一抗。
- 去除一抗,用 400 µL 洗涤缓冲液洗涤 3 次。
- 加入用染色缓冲液稀释的荧光标记二抗,避光、室温孵育 1 小时。
注意:应优化二抗浓度,以获得最大特异性信号并减少背景。本研究中二抗染色浓度为 5 µg/mL。 - 去除上清液后,用洗涤缓冲液洗涤样品 3 次,每次 3 分钟。
- 加入含 10 µM DRAQ5 的 PBS,避光、室温孵育 15 分钟。
- 去除上清液,用 PBS 洗涤载片 1 次。
- 去除残留 PBS,加入 1 滴封片剂。
- 5 分钟后盖上盖玻片,室温避光干燥 1 小时。
- 样品干燥后,用透明指甲油封固边缘,并于 4 °C 避光保存,直至成像。
- 为获得细胞整体分布情况,使用 25 倍物镜进行成像。为进一步确定表面标志物的结构与定位,使用 63 倍物镜采集图像。
- 使用 ImageJ 软件定量分析 CCR7 和 CD209 的荧光强度。
注意:图像采集使用共聚焦激光扫描显微镜(CLSM)系统,配备光电倍增管(PMT)、氩离子激光器(488 nm)、DPSS 激光器(561 nm)和 HeNe 激光器(633 nm)。
5. 使用qRT-PCR对极化巨噬细胞进行表征
注意:为了获得足够的 RNA 用于 cDNA 合成,每个样本使用两个组织圆片进行 RNA 提取。
- 用 800 µL PBS 将圆盘清洗 2 次。
- 向第一个圆盘中加入 350 µL 裂解缓冲液,通过上下吹打裂解细胞。
- 将裂解液转移至第二个圆盘,并重复裂解过程。
- 向裂解液中加入 350 µL 70% 乙醇,上下吹打至均匀。
- 将裂解液转移至离心柱中,并按照制造商说明进行 RNA 提取。
- 使用 Nanodrop 或其他设备对 RNA 量进行定量。
- 对不同样本的 RNA 浓度进行归一化处理,并根据 RT-PCR 反转录系统说明书进行 cDNA 合成(第一链 cDNA 合成)。
- 使用 350 ng RNA 按照制造商方案合成 cDNA,并于 -20 °C 保存直至进行 qRT-PCR 分析。
注意:此处使用 350 ng 纯化 RNA,加入 4 µL RT Mix (5x),总体积为 20 µL。 - 在实时荧光定量 PCR 系统上使用 96 孔板进行 qRT-PCR,每孔反应体积为 15 µL(含 1x Syber green 主混合液、0.2 µM 正向引物和反向引物,以及 4.5 µL 1:10 稀释的 cDNA)。
注意:PCR 程序起始于加热盖(105 °C),随后进行三步循环:95 °C 初始变性 3 分钟,接着 95 °C 变性 15 秒、55 °C 退火 30 秒,共 40 个循环。 - 将各基因的表达水平相对于看家基因 GAPDH(或其他看家基因如 β-actin)进行归一化。
- 采用 2−ΔΔCt 法计算相对基因表达量,以培养在组织培养盖玻片上的 M0 细胞作为参照。表 2 列出了本研究中使用的所有引物。
6. 统计分析
- 所有数据均以均值 ± 标准误表示。重复进行所有检测(本研究中各项检测均重复五次),以确保可重复性。对于符合正态分布的数据,采用单因素方差分析(ANOVA)进行比较,并结合 Tukey 多重检验评估组间差异的统计学显著性。
- 对于非参数数据集,采用 Friedman 检验并结合 Dunn 多重比较检验进行分析。使用适当的数据分析软件处理数据,并将统计学显著性定义为 p 值小于 0.05。
结果
本研究结果表明,在钛表面上成功实现了单核源巨噬细胞(MDM)的分化与极化,并对M1或M2极化的巨噬细胞进行了表征。第一步中,我们采用共聚焦激光扫描显微镜(CLSM)对极化的MDM进行表征。根据我们的前期研究,CD209和CCR7被用作特异性标志物,以区分M1与M2极化的MDM。如图2A、B所示,MDM成功极化为M1和M2型巨噬细胞。在钛表面上,M1极化巨噬细胞中CCR7的表达强于M2极化巨噬细胞中特异性表达的CD209。此外,通过量化相对荧光强度,可将标志物明确归类至M1或M2亚型(图2C)。
图3展示了在钛片和盖玻片表面培养的MDM的代表性qRT-PCR分析结果。结果显示,在两种表面上的MDM均成功实现了极化,表现为M1型极化标志物(CCR7和TNF-ɑ)和M2型极化标志物(CD209和CCL13)的高表达。这一结果在蛋白水平上进一步得到验证:M1极化细胞中可检测到高水平的炎症性细胞因子TNF-α(图4A),而M2极化细胞中则可检测到高水平的趋化因子IL-13(图4B)。

图1:实验方案的示意图。 请点击此处查看此图的放大版本。

图2:利用共聚焦激光扫描显微镜(CLSM)对极化后的MDM进行表征。通过特异性抗体染色及共聚焦激光扫描显微镜(CLSM)分析,在接种后第2天使用CCR7和CD209抗体确认了M1和M2极化巨噬细胞的富集情况。根据荧光染色和CLSM分析结果,(A) 25倍放大和(B) 63倍放大下,M1细胞中CCR7(绿色)的表达水平高于M0或M2细胞;M2细胞则表现出显著的CD209表达模式(绿色)。(C) CCR7和CD209相对荧光强度的定量分析。细胞核使用DRAQ5染色(紫色)。结果代表了5次独立重复实验的典型数据。请点击此处查看该图的放大版本。
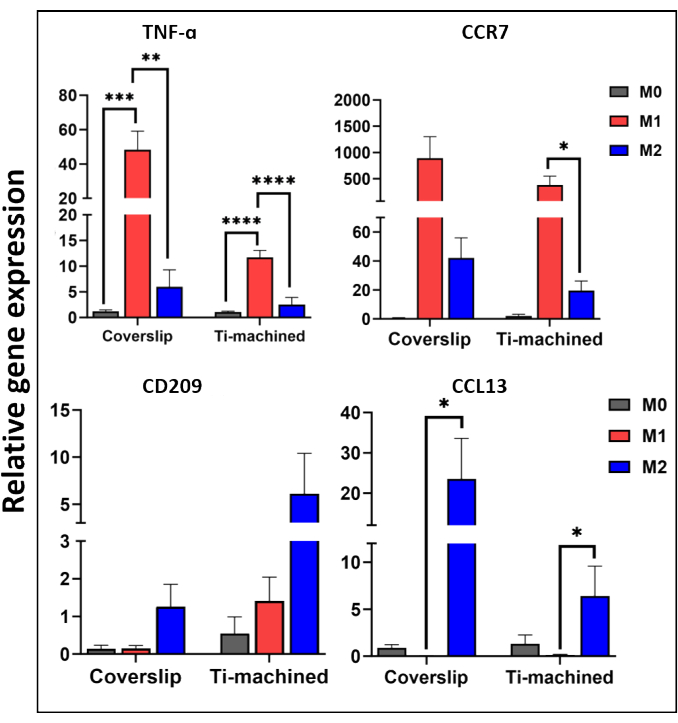
图3:利用基因表达谱对极化型单核源性巨噬细胞(MDMs)进行表征。 采用定量反转录聚合酶链反应检测与M1型(CCR7和TNF-ɑ)及M2型(CD209和CCL13)极化相关基因的mRNA水平。以GAPDH作为内参基因。数据以均值±标准误表示(n = 5)。 请点击此处查看该图的放大版本。

图 4:在钛表面和塑料盖玻片上培养的 M0、M1 和 M2 巨噬细胞产生细胞因子的情况。 (A)使用 ELISA 检测细胞培养上清液中的 TNF-ɑ 细胞因子水平,以及(B)CCL13 水平。细胞因子分泌量通过 BCA 法测定的总蛋白分泌量进行标准化。柱状图表示均值 ± 标准误(n = 5)。 请点击此处查看该图的放大版本。
| 缓冲液/溶液 | 成分 |
| 染色/封闭缓冲液 | PBS + 1% BSA + 0.1% Tween 20 |
| 洗涤缓冲液 | PBS + 0.1% Tween 20 |
| 固定缓冲液 | 含 3% 多聚甲醛(PFA)的 PBS |
| 储存缓冲液 | 含 1% 青霉素和链霉素的 PBS |
表1:缓冲液列表。
| 引物名称 | 上游引物序列 | 下游引物序列 |
| GAPDH | 5´-GAGTCAACGGATTTGGTCGT-3´ | 5´-TTGATTTTGGAGGGATCTCG-3´ |
| CCR7 | 5'- TGGTGATCGGCTTTCTGGTC-3' | 5'- CACCTTGATGGCCTTGTTGC-3' |
| CD209 | 5'- GGAGCAGAACTTCCTACAGC-3' | 5'- CAACGTTGTTGGGCTCTCCT-3' |
| CCL13 | 5´-ATCTCCTTGCAGAGGCTGAA-3´ | 5´-ACTTCTCCTTTGGGTCAGCA-3´ |
| TNF-ɑ | 5´- GCTGCACTTTGGAGTGATCG-3´ | 5´- TCACTCGGGGTTCGAGAAGA-3´ |
表2. qRT-PCR中所用引物的序列。
讨论
深入了解巨噬细胞的行为对于理解可植入材料的免疫调节特性至关重要。已有多个研究报道了巨噬细胞极化在体外(in vitro)表征中的异质性标志物、多种细胞模型及实验方案17,18,19,20。为了提高实验结果的可重复性、可靠性和可比性,必须采用标准化且经过验证的实验流程,并结合合适的细胞模型和共识性的表征标志物。因此,准确模拟植入材料的免疫调节特性,首先需要一个恰当的细胞模型。不同研究使用了多种多样的细胞模型,包括从组织中分离的巨噬细胞、由外周血单核细胞分化而来的巨噬细胞,以及永生化的单核细胞系。尽管从组织中分离的巨噬细胞可能更接近体内(in vivo)的真实状态,但其在技术操作和伦理方面均存在挑战21,22。巨噬细胞也常通过已建立的永生化单核细胞系获得,例如THP1细胞23,24,25,26。尽管这类细胞作为非衰老细胞的无限来源,可能在细胞反应上表现出更高的均一性,但它们通常来源于血液系统肿瘤患者,其生物学反应可能与正常细胞存在显著差异。例如,已有报道指出,单核细胞THP1细胞对M1型刺激因子反应更强,更倾向于表现出M1型特征22。本研究的结果与我们前期研究的结果一致(数据未在此展示)。
此外,由于血液来源的单核细胞被认为是组织驻留型巨噬细胞的前体细胞,且易于获得较高产量,因此可能作为巨噬细胞的一种可行替代来源27,28,29根据我们使用血液单核细胞来源的巨噬细胞的研究,发现这些细胞在钛片和细胞培养处理的盖玻片上对M1和M2刺激物均表现出相似的反应性。此外,它们表达了多种M1和M2共识标志物,部分标志物已在代表性结果中展示。结果表明,MDMs可作为一种可行的 体外 模拟种植体-巨噬细胞相互作用的模型。
为了进一步推动免疫调节研究,持续且特异的表征标志物至关重要。已有研究报道了多种用于巨噬细胞表征的标志物,这些标志物不仅在不同来源的巨噬细胞之间存在差异,甚至在同一来源的巨噬细胞之间也有所不同17,18,19,24。本文通过评估多种已报道的标志物,确定并验证了一组适用于人单核细胞来源巨噬细胞(MDMs)的M1和M2特征性标志物组合,并展示了其中一些最重要的关键标志物。
确定最合适的检测方法也是评估过程中的关键环节。通常用于评估细胞表面标志物的分析技术往往需要将细胞从生物材料上分离。然而,这一过程已被发现会通过损伤细胞表面标志物并对细胞造成损害,导致脱落细胞数量较少30。因此,需要细胞脱离的流式细胞术不适用于评估紧密黏附于植入物上的巨噬细胞。在本研究中,采用共聚焦激光扫描显微镜(CLSM)进行细胞表面标志物的检测。通过选用合适的标志物并优化染色流程,我们能够成功地相互比较M1和M2亚型,并与M0细胞进行对比表征 。需要注意的是,荧光染色为半定量方法,这是其局限性之一。当标志物在所有亚型中均有表达且无显著差异时,该局限性可能使细胞评估变得复杂。在测试多种标志物后,选择CCR7和CD209用于通过CLSM对单核细胞来源的巨噬细胞(MDMs)进行表征。结果显示,CCR7在M1亚型中表达持续较高,而CD209在M2亚型中表达持续较高。
在本研究的局限性范围内,结果突显了所实施方案在种植体表面极化巨噬细胞并对其基因表达、分泌蛋白及细胞表面标志物进行精确表征方面的实用性和有效性。此外,对所述标志物的分析揭示了稳定且特异的表达模式,可用于区分不同亚型的人源单核细胞来源巨噬细胞(MDMs)。 体外 然而,该模型并未充分反映人类巨噬细胞的表型多样性和可塑性。目前已有多种巨噬细胞亚型(M2a、M2b、M2c、M2d)被识别,这表明需要更丰富的巨噬细胞多样性研究 体外 用于研究不同生物材料及其特性(如理化性质)如何影响巨噬细胞可塑性与极化的模型31,32尽管无法完全复制其复杂的 在体 使用以下情境 体外 模型,使用所展示的方法可获得大量结果 体外 有效描述新型可植入生物材料免疫调节潜力的实验方案9最后但同样重要的是,有必要进一步建立和完善以明确表征 更复杂的巨噬细胞 体外 或 体内 涉及其他参与者在复杂生理环境中的作用的模型。总体而言,本研究将有助于开发和设计免疫调节性生物材料,以改善并促进有利的组织再生过程和植入物的成功整合,同时预防与植入物相关的慢性炎症。
披露
作者无任何利益冲突需要披露。
致谢
这些圆盘由德国巴特诺因阿尔-阿赫魏勒的Medentis Medical公司慷慨提供。作者感谢图宾根大学医院口腔与颌面外科部门的支持。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 24孔板,未处理 | Corning Incorporated (Kennebunk, USA) | 144530 | |
| 吸光度读数仪 Infinite F50 | TECAN Austria GmbH (Grödig, Austria) | TCAT91000001 | |
| 含0.5 mM EDTA的DPBS中的Accutase | EMD Millipore Corp. (Burlington, USA) | SCR005 | |
| 抗荧光淬灭荧光封片剂—水性,Fluoroshield | abcam (Cambridge, UK) | ab104135 | |
| Bio-Rad MJ Research PTC-200 Peltier梯度PCR仪 | Bio-Rad / MJ Research | 7212 | |
| 牛血清白蛋白(BSA) | VWR International bvba (Leuven, Belgium) | 422361V | |
| Centrifuge 5804 R 离心机 | Eppendorf SE (Hamburg, Germany) | 5804 R | |
| DC-SIGN (D7F5C) XP 兔单克隆抗体 | Cell Signaling Technology | 13193 | |
| 二甲基亚砜 | Sigma Aldrich Co. (St.Louis, MO, USA) | D2438-5X10ML | |
| DRAQ5 染色液 | Milteny Biotec (Bergisch Gladbach, Germany) | 130-117-344 | |
| 分子生物学级乙醇 ≥99.8% | Carl Roth GmbH + CO. KG (Karlsruhe, Germany) | 1HPH.1 | |
| 山羊抗小鼠IgG (H&L) 高度交叉吸附 二抗,Alexa Fluor Plus 488 | Invitrogen | A32723TR | |
| 山羊抗兔IgG (H+L) 交叉吸附二抗,Cyanine3 | Invitrogen | A10520 | |
| GraphPad Prism | GraphPad | 版本 9.4.1 | |
| 人CCR7抗体 | R&D Systems | MAB197 | |
| 人IFN-γ重组蛋白 | Invitrogen (Rockford, USA) | RIFNG100 | |
| 人IL-13 | Milteny Biotec (Bergisch Gladbach, Germany) | 5230901032 | |
| 人IL-4 | Milteny Biotec (Bergisch Gladbach, Germany) | 130-095-373 | |
| 人M-CSF | Peprotech (Cranbury, USA) | 300-25 | |
| Leica TCS SP5 | Leica Microsystems CMS GmbH (Mannheim, Germany) | https://www.leica-microsystems.com/products/confocal-microscopes/p/leica-tcs-sp5/ | |
| 大肠杆菌来源的脂多糖 | Sigma Aldrich Co. (Missouri, USA) | L4391-1MG | |
| Luna通用qPCR预混液 | New England Biolabs | NEB #M3003 | |
| LunaScript RT 超混试剂盒 | New England Biolabs | E3010L | |
| 淋巴细胞分离液 1077 | PromoCell (Heidelberg, Germany) | C-44010 | |
| MCP-4/CCL13 人ELISA试剂盒 | Invitrogen | EHCCL13 | |
| MicroAmp快速96孔反应板(0.1 mL) | Applied Biosystems (Waltham, USA) | 4346907 | |
| MicroAmp光学粘性封膜 | Life Technologies Corporation (Carlsbad, USA) | 4311971 | |
| MicroAmp防溅96孔底座 | Applied Biosystems (Waltham, USA) | 4312063 | |
| 微量离心机 CD-3124R | Phoenix Instrument (Germany) | 9013111121 | |
| 显微镜盖玻片,10 mm | Carl Roth GmbH, Karlsruhe, Germany | 4HX4.1 | |
| 单核细胞贴壁培养基 | PromoCell (Heidelberg, Germany) | C-28051 | |
| Multiply-Pro 管 Gefäß 0.5 mL,聚丙烯材质 | Sarstedt AG & CO (Nümbrecht, Germany) | 7,27,35,100 | |
| Nanodrop One | Thermo Scientific (USA) | ND-ONE-W | |
| QuantStudio 3 系统 | Life Technologies GmbH (St. Leon-Rot, Germany) | A28567 | |
| RNeasy 微量试剂盒 | Qiagen | 74007 | |
| RPMI 1640,1×,含L-谷氨酰胺 | Mediatech, Inc. (Manassas, USA) | 10-040-CV | |
| 无菌操作台,LaminarAir HB 2472 | Heraeus instruments (Hanau, Germany) | 51012197 | |
| 组织培养用盖玻片 13 mm(塑料) | Sarstedt Inc. (Newton, USA) | 83,18,40,002 | |
| 钛合金加工圆盘 12 cm | Medentis Medical (Bad-Neuenahr-Ahrweiler, Germany) | N/A | |
| TNF-α人ELISA试剂盒 | Invitrogen | KHC3011 | |
| 0.4% 台盼蓝溶液 | Carl Roth GmbH + Co. KG (Karlsruhe, Germany) | 1680.1 |
参考文献
- Othman, Z., Pastor, B. C., van Rijt, S., Habibovic, P. Understanding interactions between biomaterials and biological systems using proteomics. Biomaterials. 167, 191-204 (2018).
- Ikada, Y. Challenges in tissue engineering. J R Soc Interface. 3 (10), 589-601 (2006).
- Aamodt, J. M., Grainger, D. W. Extracellular matrix-based biomaterial scaffolds and the host response. Biomaterials. 86, 68-82 (2016).
- Batool, F., et al. Modulation of immune-inflammatory responses through surface modifications of biomaterials to promote bone healing and regeneration. J Tissue Eng. 12, 20417314211041428(2021).
- Mantovani, A., Biswas, S. K., Galdiero, M. R., Sica, A., Locati, M. Macrophage plasticity and polarization in tissue repair and remodelling. J Pathol. 229 (2), 176-185 (2013).
- Shrivastava, R., Shukla, N. Attributes of alternatively activated (M2) macrophages. Life Sci. 224, 222-231 (2019).
- Gordon, S., Taylor, P. R. Monocyte and macrophage heterogeneity. Nat Rev Immunol. 5 (12), 953-964 (2005).
- Mosser, D. M., Edwards, J. P. Exploring the full spectrum of macrophage activation. Nat Rev Immunol. 8 (12), 958-969 (2008).
- Murray, P. J., et al. Macrophage activation and polarization: nomenclature and experimental guidelines. Immunity. 41 (1), 14-20 (2014).
- Kzhyshkowska, J., et al. Macrophage responses to implants: prospects for personalized medicine. J Leukoc Biol. 98 (6), 953-962 (2015).
- Browne, S., Pandit, A. Biomaterial-mediated modification of the local inflammatory environment. Front Bioeng Biotechnol. 3, 67(2015).
- Piatnitskaia, S., et al. Modelling of macrophage responses to biomaterials in vitro: state-of-the-art and the need for the improvement. Front Immunol. 15, 1349461(2024).
- Rayahin, J. E., Gemeinhart, R. A. Activation of macrophages in response to biomaterials. Results Probl Cell Differ. 62, 317-351 (2017).
- Murray, P. J. Macrophage polarization. Annu Rev Physiol. 79, 541-566 (2017).
- Gordon, S., Pluddemann, A. Tissue macrophages: heterogeneity and functions. BMC Biol. 15 (1), 53(2017).
- Salma Iqbal, A. K. Characterization of in vitro generated human polarized macrophages. J Clin Cell Immunol. 6, 1-8 (2015).
- Hotchkiss, K. M., et al. Titanium surface characteristics, including topography and wettability, alter macrophage activation. Acta Biomater. 31, 425-434 (2016).
- Wang, Y., Zhang, Y., Sculean, A., Bosshardt, D. D., Miron, R. J. Macrophage behavior and interplay with gingival fibroblasts cultured on six commercially available titanium, zirconium, and titanium-zirconium dental implants. Clin Oral Investig. 23 (8), 3219-3227 (2019).
- Abaricia, J. O., Shah, A. H., Ruzga, M. N., Olivares-Navarrete, R. Surface characteristics on commercial dental implants differentially activate macrophages in vitro and in vivo. Clin Oral Implants Res. 32 (4), 487-497 (2021).
- Lu, W., et al. Improved osseointegration of strontium-modified titanium implants by regulating angiogenesis and macrophage polarization. Biomater Sci. 10 (9), 2198-2214 (2022).
- Murray, P. J., Wynn, T. A. Obstacles and opportunities for understanding macrophage polarization. J Leukoc Biol. 89 (4), 557-563 (2011).
- Nascimento, C. R., Fernandes, N. A. R., Maldonado, L. A. G., Junior, C. R. Comparison of monocytic cell lines U937 and THP-1 as macrophage models for in vitro studies. Biochem Biophys Rep. 32, 101383(2022).
- Freytes, D. O., Kang, J. W., Marcos-Campos, I., Vunjak-Novakovic, G. Macrophages modulate the viability and growth of human mesenchymal stem cells. J Cell Biochem. 114 (1), 220-229 (2013).
- Zhang, Y., et al. Macrophage type modulates osteogenic differentiation of adipose tissue MSCs. Cell Tissue Res. 369 (2), 273-286 (2017).
- Cerqueira, A., et al. Evaluation of the inflammatory responses to sol-gel coatings with distinct biocompatibility levels. J Biomed Mater Res A. 109 (9), 1539-1548 (2021).
- Zhang, Y., Cheng, X., Jansen, J. A., Yang, F., van den Beucken, J. J. Titanium surfaces characteristics modulate macrophage polarization. Mater Sci Eng C Mater Biol Appl. 95, 143-151 (2019).
- Nobs, S. P., Kopf, M. Tissue-resident macrophages: guardians of organ homeostasis. Trends Immunol. 42 (6), 495-507 (2021).
- Sreejit, G., Fleetwood, A., Murphy, A., Nagareddy, P. Origins and diversity of macrophages in health and disease. Clin Transl Immunology. 9 (12), e1222(2020).
- Parisi, L., et al. Preparation of human primary macrophages to study the polarization from monocyte-derived macrophages to pro-or anti-inflammatory macrophages at biomaterial interface in vitro. J Dent Sci. 18 (4), 1630-1637 (2023).
- Feuerer, N., et al. Macrophage retrieval from 3D biomaterials: A detailed comparison of common dissociation methods. J Immunol Regen Med. 11, 100035(2021).
- Shapouri-Moghaddam, A., et al. Macrophage plasticity, polarization, and function in health and disease. J Cell Physiol. 233 (9), 6425-6440 (2018).
- Sridharan, R., Cameron, A. R., Kelly, D. J., Kearney, C. J., O'Brien, F. J. Biomaterial based modulation of macrophage polarization: a review and suggested design principles. Mater Today. 18 (6), 313-325 (2015).
重印与许可
