本文介绍了一种利用三电极双室生物电化学系统表征乳酸菌介导的胞外电子传递(EET)的实验方案。我们以植物乳植杆菌(Lactiplantibacillus plantarum)和氧化还原介体1,4-二羟基-2-萘甲酸为例,演示该方法,并详细描述用于评估介导EET的电化学技术。
本文内容
摘要
摘要
许多细菌能够进行胞外电子传递(EET),即电子从细胞内转移至胞外的末端电子受体。该电子受体可以是电极,电子可通过氧化还原活性介体分子间接传递。本文介绍了一种研究介导型EET的实验方案 植物乳植杆菌一种在食品工业中广泛应用的益生菌乳酸菌,利用生物电化学系统进行研究。我们详细描述了如何组装一个三电极双室生物电化学系统,并提供了在可溶性介体存在条件下,使用计时安培法和循环伏安法表征电子传递(EET)的技术指导。我们展示了以1,4-二羟基-2-萘甲酸(DHNA)为介体的EET实验的代表性数据 L. plantarum 用于演示数据分析与解释。本方案中描述的技术可为电发酵和生物电催化领域开辟新的研究机遇。该电化学技术的最新应用包括 L. plantarum 展示了代谢通量向生成发酵终产物的方向加速,这些产物是食品发酵中关键的风味成分。因此,该系统有望被进一步开发用于改变食品生产中的风味或生产高价值化学品。
引言
生物电化学系统将微生物与电极相连接,可用于研究胞外电子传递(EET)机制,并为生物电催化提供可再生的途径1,2,3。天然具备EET能力的微生物被称为产电微生物(exoelectrogens),它们可将代谢过程中产生的电子传递给胞外的末端电子受体,例如铁(氢)氧化物和电极1。EET途径最初在Geobacter和Shewanella菌种中被表征4,5,此后已在多种细菌中发现此类途径。这些产电微生物在多种微生物电化学技术中发挥核心作用,例如利用废液流产生电能、固定CO2,以及通过电合成生产有价值的化学品1,6,7,8,9,10,11,12。
其中一种胞外电子传递菌是Lactiplantibacillus plantarum,一种革兰氏阳性乳酸菌13。L. plantarum 是一种广泛分布的益生菌,存在于多种环境中,包括人类和其他脊椎动物的肠道,以及肉类、谷物、蔬菜和多种发酵食品与饮料中14,15,16,17。其基因组编码了一种灵活的异型发酵代谢途径,使其能够成功适应这些多样化的环境。该菌已被广泛研究,在食品和健康工业中应用广泛,并被美国食品药品监督管理局(FDA)普遍认为是安全的18,19。因此,L. plantarum 有望成为基于胞外电子传递(EET)技术的有用平台。
近期研究 L. plantarum 已鉴定出一个多基因操纵子,该操纵子编码一种复杂的EET途径,最初在 单核细胞增生李斯特菌13,20。在 L. plantarum该操纵子表达的蛋白质在提供醌类电子介体1,4-二羟基-2-萘甲酸(DHNA)的条件下,可在生物电化学系统(BES)中促进胞外电子传递(EET)13该通路中的第一个关键蛋白是膜结合型NADH-泛醌氧化还原酶(Ndh2),其可氧化NADH并还原DHNA。DHNA可直接向电极传递电子,或通过辅助蛋白PplA间接传递电子。图1)13,21,22近期研究表明 L. plantarum 也可能使用其他在结构上与DHNA相似的醌类作为电子介体;然而, L. plantarum 无法产生DHNA或这些替代醌类,因此必须在环境中外源性提供介体,才能进行胞外电子传递(EET)13,22,23.

图 1:Lactiplantibacillus plantarum 外界电子转移(EET)中的电子流向。 Ndh2 将电子从 NADH 传递给醌类物质 DHNA。电子通过还原态醌直接或经由辅助蛋白 PplA 间接传递至电极,从而产生电流。缩写:FAD = 黄素腺嘌呤二核苷酸;FMN = 黄素单核苷酸;EET = 胞外电子转移;NADH = 还原型烟酰胺腺嘌呤二核苷酸;Ndh2 = NADH-醌氧化还原酶;DHNA = 1,4-二羟基-2-萘甲酸;PplA = 磷脂酶 A。请点击此处查看该图的放大版本。
本文提供了一种基于生物电化学系统(BES)的完整实验方案,用于表征植物乳杆菌(L. plantarum)中由二氢萘醌(DHNA)介导的胞外电子传递(EET)。该方法采用三电极双室系统,将细菌限制在工作电极区域,从而精确控制施加于细菌的电势,并避免工作电极与对电极之间的信号串扰。本方案历时5天,涵盖实验前准备、BES系统的组装、利用计时安培法(CA)和循环伏安法(CV)进行EET分析,以及实验后样品的处理与检测。该 protocol 可用于解析EET通路的作用机制,并构建用于电发酵和电催化反应的系统。
方案
注意:在以下实验方案中,双室BES装置将被称为“反应器”。
1. 培养基制备
- 准备植物乳杆菌(L. plantarum)培养基。
- 按照说明制备商业MRS(de Man Rogosa Sharpe)培养基,并根据表1所述配制mMRS培养基24。将mMRS的pH调节至6.5。使用0.22 µm滤膜过滤灭菌两种培养基,并于4 °C保存备用。
- 根据表2所述配制含甘露醇的化学成分明确培养基(mCDM)13,25,并将pH调节至6.5。每种反应器的阳极室需加入110 mL培养基,应准备足量培养基。通过0.22 µm滤膜过滤灭菌mCDM。
注意:mCDM应在使用当天新鲜配制。各组分溶液可预先配制,所有组分溶液均需经0.22 µm滤膜过滤灭菌后于4 °C保存。配制Wolfe维生素溶液时,灭菌前将pH调至11,并避光或用铝箔包裹保存。配制Wolfe矿物质溶液时,在加入氮川三乙酸(NTA)后将pH调至8,然后加入其余组分,灭菌后同样避光或用铝箔包裹保存。
- 配制1×PBS缓冲液,经高压灭菌后于4 °C保存,用于本实验方案。
- 按照说明配制商业M9培养基(表3),高压灭菌后保存于室温。准备足量培养基,以确保每个反应器的阴极室可加入110 mL。
2. 第1天:BES反应器组装及初始 L. plantarum 培养
注意:参见图2,了解BES反应器的示意图以及本方案中所述组装部件的详细图示。

图 2:BES 组件及组装示意图。(A)双室 BES 反应器的示意图。阳极室中的细菌(绿色)在醌类介体存在下将电子转移至工作电极(黑色圆圈)。电子通过电路流向阴极室,从而可通过恒电位仪测量阳极与阴极之间的电流。(B)完全组装好的 BES 反应器图像,包括阳极室中的 N2 进气和出气针。(C)拆解后反应器各部件的图像。缩写:BES = 生物电化学系统。请点击此处查看该图的放大版本。
- 组装并灭菌反应器。
- 准备工作电极和对电极。使用氧化铝砂纸打磨预先切割好的直径为1.0 mm的钛丝(用于工作电极和对电极),直至表面均匀发亮。用镊子将每根工作电极的一端弯成小钩状。将一块面积为16 cm2的碳毡圆片套在每根工作电极上,将导线在碳毡圆片中穿入穿出一次,并将圆片沿导线向下拉至钩子处固定。通过将导线刺穿橡胶隔垫并拉出几厘米,将工作电极和对电极固定在GL45瓶盖中。
- 组装成对反应器时,首先装配O型圈,并将已预先在水中浸泡过的阳离子交换膜(预先裁剪好)放入装配好的O型圈内。将带有膜的O型圈置于两个成对反应瓶的大底部开口之间。使用指旋式肘夹将反应瓶对、O型圈及膜夹紧至手指拧紧程度。向每个阳极室中放入一根磁力搅拌子,然后用装有橡胶隔垫的GL14瓶盖封闭每个瓶顶部的所有小开口。
注意:切勿过度拧紧肘夹或任何瓶盖,以免导致瓶子出现裂纹或破裂。 - 向每个反应瓶中加入110 mL去离子水(DI水),然后用配有电极的适当GL45瓶盖封闭各瓶。插入带有碳毡圆片工作电极的瓶盖时,应轻轻按压碳毡圆片顶部,使其保持在钩子上。
注意:新的碳毡具有疏水性,在初始组装时会排斥反应器中的水。高压灭菌将使碳毡转变为适合实验的亲水状态。 - 准备配有硅胶密封圈的GL14电极瓶盖。
- 在高压灭菌前,轻轻松开所有GL45瓶盖。对装有水的反应器和电极瓶盖进行高压灭菌以实现灭菌。灭菌完成后,让反应器冷却至室温。
- 培养L. plantarum NCIMB8826。在无菌条件下,从甘油保藏菌种表面刮取少量细菌,接种至3 mL商业MRS培养基中。在37 ˚C下静置培养过夜。
注意:L. plantarum不以氧气作为末端电子受体,因此无需通过振荡对培养基进行氧合26。然而,若使用其他微生物,培养条件可能有所不同。
3. 第2天:参比电极的制备、反应器的准备及实验启动 L. plantarum 传代培养
- 制备银/氯化银参比电极。
注意:这些步骤描述了文中所示 Ag/AgCl 参比电极的制备方法 材料表若使用不同的参比电极,用户应遵循制造商的说明。- 拆卸 Ag/AgCl 参比电极并打磨导线。轻轻将电极从玻璃外壳中拉出,并轻弹玻璃外壳以排空旧的 KCl 溶液。使用氧化铝砂纸轻轻打磨电极导线,直至表面均匀发亮,以去除氧化物。
- 将所有打磨好的参比电极丝收集到一个装有小型搅拌子的小烧杯中,加入100%次氯酸钠溶液至完全浸没电极丝。将烧杯置于搅拌平台上搅拌氯化30分钟,直至电极变为深灰色。氯化完成后,用去离子水彻底冲洗电极丝。
- 重新组装参比电极时,使用注射器将含有氯化银饱和的3 M KCl溶液完全注入玻璃外壳中,并轻轻敲击侧壁以排除任何气泡。使用同一注射器将KCl溶液注入电极导线帽中,然后将导线插入外壳内。将玻璃外壳底部置于实验台面上的纸巾上,将电极插入玻璃外壳中,然后用力下压帽盖以密封电极。将组装好的参比电极存放于盛有少量KCl溶液的烧杯中,直至使用为止,并对所有剩余参比电极重复上述步骤。
- 使用数字万用表测量自制的Ag/AgCl参比电极的电压。
- 将Ag/AgCl参比电极(相对于标准氢电极SHE,电位约为197 mV)的末端浅浸入盛有3 M KCl溶液的烧杯中。将万用表牢固连接至一支市售的饱和甘汞电极(SCE,相对于SHE电位为241 mV),该电极也浸没于同一KCl电解液中。
- 测量每个参比电极与饱和甘汞电极(SCE)之间的电位差。确认各参比电极与SCE的偏差在44 ± 10 mV范围内。对于超出该范围的参比电极,应进行拆解并重新组装。
- 用Parafilm密封盖子与玻璃外壳相接处的接缝。
- 准备反应器以进行实验。
- 在无菌生物安全柜中,将反应器中的高压灭菌水更换为相应培养基。倒出高压灭菌水。向阴极室注入 110 mL 高压灭菌的 M9 培养基。向阳极室注入 110 mL 新鲜配制的 mCDM。
- 安装参比电极。从每个阳极室上取下一个GL14盖帽,替换为已灭菌的电极盖帽(带硅胶密封圈的GL14盖帽)。用70%乙醇喷洒参比电极进行消毒,然后将一支参比电极穿过电极盖帽插入每个阳极室中。
注意:确保参比电极不与圆形碳毡直接接触。 - 从生物安全柜中取出反应器之前,应将所有瓶盖和夹子拧紧至手指拧紧程度,以防止泄漏。
- 将反应器连接至水泵系统。将每个反应器放置在相应的搅拌子平台上。使用橡胶管将各反应器的水夹套出水口依次连接,将两端的反应器分别连接至水泵的进水管和出水管。
注意:确保所有连接处紧密无泄漏,必要时使用扎带固定管路。 - 用水填充泵,并加入4-6滴水质调节剂。开启泵系统,将温度设定为30 ˚C。启动泵,观察水流通过所有反应器水套的情况,确保各连接处无泄漏。
- 打开搅拌平台,并将转速设置为220 RPM,持续搅拌。
- 将反应器连接至氮气鼓泡气体管路。将空气过滤器连接至一根4英寸、22 G的针头,并将该针头插入反应器阳极室顶部的隔垫,伸入培养基中,作为氮气进气口。另取一根1英寸、18 G的针头插入阳极室顶部隔垫,作为氮气出气口。将来自氮气源的气体管路连接至空气过滤器,并打开阀门,使气体缓慢地以气泡形式通过反应器。确保在整个实验过程中氮气持续通过所有阳极室,以维持厌氧条件。
注意:确保进样针远离碳毡圆片。气泡流不应与碳毡或参比电极接触。 - 将生物反应器连接到恒电位仪的导线上。将恒电位仪的工作电极、对电极和参比电极的鳄鱼夹导线分别连接至对应的电极。
注意:使用万用表检测导线/电流收集器与电极之间的电阻,以确保电连接正确,并尽量减少潜在的测量误差。
- 输入恒电位仪的预运行参数。
注意:关键的技术参数设置如下。参见 表4 有关每种技术的软件设置的详细列表。- 打开恒电位仪,并在计算机上初始化 EC-lab 软件。通过点击将恒电位仪连接至计算机 恒电位仪符号 左上方面板下方的按钮 设备连接后,设备名称将出现在下方文本框中,并带有绿色圆圈。
- 通过点击将连接到生物反应器的所有通道同步为一个组 编辑 标签,然后选择 同步. 点击相应的 通道编号框 | ok.
- 添加该技术 开路电压 (开路电压,OCV)连接到恒电位仪,方法是单击 + 按钮 参数设置 左侧面板。在蓝色设置框中,将其设置为测量工作电极电位(E我们相对于参比电极(RE)的电位,以时间间隔 d 记录时间t 每个 36 s 共计 3 h.
- 接下来,添加该技术 循环伏安法 (CV)连接到电化学工作站。设置E的初始电位我们 至 Ei 的 0 V 与扫描速率为 2 mV/s. 扫描至顶点电位(E1) 0.4 V 与RE反转至顶点电位(E2)的对比 -0.7 V 与RE相对。重复扫描,共进行两次扫描。
注意:在微生物电化学系统中,与金属材料或无机分子相比,微生物接种和生物膜形成可诱导产生更高的容量。在循环伏安扫描过程中,电位发生变化,同时存在作为背景的充电电流。为了获得较高的信噪比,需要采用较低的扫描速率,但这会延长扫描时间。由于我们扫描两个循环,覆盖1.1 V的宽电化学窗口,扫描速率为2 mV/s时,每个半循环最长可达9.1分钟,因此两个循环总共需要36.4分钟。进一步降低扫描速率将导致耗时过长。 - 添加该技术 计时安培法 (CA)。施加一个恒定电位 E我们 的 0.2 V 与RE相比的时间 t = 200 h,以时间间隔 d 记录时间t 每个 25-40 秒根据恒电位仪软件调整时间间隔,以获得所需细节水平。
注意:DHNA 的中点电位约为 -0.093 V(相对于 Ag/AgCl);因此,对工作电极施加相对于参比电极 0.2 V 的电位足以使电子从 DHNA 转移到电极。 - 输入所有参数后,按下按钮开始运行 绿色开始三角形根据软件提示,将文件保存为所需名称,然后单击 保存软件将开始运行技术1“OCV”。观察OCV曲线数分钟,确保所有反应器读数均为正值且信号稳定、彼此接近。让实验过夜运行,以完成OCV和初始CV(参见 补充图 S1 对于培养基对照组(CV),让CA运行至稳定状态。
- 在无菌条件下,传代MRS培养物 L. plantarum 1:200 稀释于 50 mL mMRS 中。37 ˚C 静置培养过夜。
注意:假设最终 OD 值达到一定水平,50 mL 过夜培养通常可获得足够用于六个反应器的细胞量600 反应器中光密度为0.2。根据实验规模的大小相应调整培养体积。
第3天:细胞与DHNA/DMSO的注射
- 洗涤细胞并将它们注入反应器中。
- 移除 mMRS L. plantarum 从培养箱中取出早晨的培养物。在无菌条件下,将培养物转移至50 mL锥形管中,并将培养物置于冰上。
- 用无菌的冷1× PBS洗涤细胞2次。具体操作为:在4 ˚C下,以4,000 × g离心5 min,使细胞沉淀。在无菌条件下,将细胞轻轻但充分地重悬于50 mL PBS中,然后按前述条件再次离心;重复该步骤完成第二次洗涤。最后一次离心后,将细胞重悬于冷PBS中,调节至OD600 = 11.
- 在无菌条件下,将重悬的细胞液 2 mL 加入每个反应器配备的带针头的 3 mL 注射器中。
- 在反应器工作站,取下细胞注射器的针帽,将针头插入反应器阳极室顶部。此时不要推动注射器活塞;对所有反应器重复此操作。待所有注射器就位后,推动活塞将细胞注入反应器,并从CA曲线记录注入时间。此体积的细胞产生的终末OD600 反应器中的值为0.2。所有注射器应弃置于生物危害盒中,针头应弃置于指定的锐器生物危害容器中。让电流在恒电流(CA)曲线中稳定至平稳状态,持续2-4小时。
注意:注射后,可在CA曲线上观察到电流波动。2-4小时后,这些波动将逐渐稳定为恒定电流。<2 µA 一小时内的电流变化),此时可注入 DHNA。
- 测量初始 pH 值并加入 DHNA。
- 配制 DHNA 溶液。在 1.5 mL 离心管中,配制 500 µL 20 mg/mL DHNA 溶液的制备:将 DHNA 粉末溶于 100% DMSO 中。用该溶液填充 3 支胰岛素注射器 110 µL DHNA 溶液和3支胰岛素注射器 110 µL 仅含 DMSO。
注意:尽管DHNA在水中具有轻微溶解性,但在此浓度下,DMSO是配制DHNA储备液更佳的溶剂。若使用其他介体,其溶剂可能有所不同。 - 在BES反应堆站,将实验反应堆标记为 + DHNA 以及溶剂对照反应器 - DHNA. 取下 DHNA 注射器的针帽,并将注射器插入指定为阳极室顶部的每个腔室 + DHNA. 将仅含DMSO的注射器插入指定为阳极室的每个腔室中 - DHNA此时不要按压注射器的活塞。
- 取0 h时间点样品用于样品分析。使用配有2英寸、21 G针头的3 mL注射器,通过未使用的带隔垫小帽从每个阳极室中采集2 mL培养基样品,转移至24孔深孔板中,用于测定0 h时间点(DHNA注射点)的pH值。如需要,从每个阳极室中取1 mL用过的培养基,经滤膜过滤 0.2 µm 过滤至洁净并标记的离心管中,用于通过高效液相色谱法(HPLC)或其他检测方法定量代谢物。将使用过的培养基样品于 -80 ˚C 保存。
- 压下所有DHNA和DMSO注射器的推杆,将试剂注入反应器中。从CA信号轨迹记录注射时间。妥善弃置所有注射器和针头。
- 测量并记录每个反应器的0 h pH样品。
- 配制 DHNA 溶液。在 1.5 mL 离心管中,配制 500 µL 20 mg/mL DHNA 溶液的制备:将 DHNA 粉末溶于 100% DMSO 中。用该溶液填充 3 支胰岛素注射器 110 µL DHNA 溶液和3支胰岛素注射器 110 µL 仅含 DMSO。
第5天:实验完成与样品采集
- 在DHNA注射24小时后进行电化学分析,并采集最终样品。
- 在DHNA注射24小时后结束恒电流(CA)实验。
- 根据步骤4.2.3采集24小时时间点的样品用于样品分析。
- 根据步骤3.3.4中描述的参数,对24小时时间点再次运行循环伏安法(CV)。
- 测量并记录每个反应器24小时样品的pH值。
- 拆卸并清洗反应器。
- 关闭恒电位仪,然后断开每个反应器的工作电极、对电极和参比电极导线。用纸巾擦去恒电位仪导线鳄鱼夹上的任何水分。
- 关闭氮气气流,断开气体导管,然后移除进气和出气针头。将所有针头妥善丢弃至锐器容器中。
- 关闭水泵,断开泵上的进水和出水管路,使水排入桶中。断开时,保持管路末端高于泵内水位,以防止水虹吸到地面上。从最后一个出水反应器开始,依次向前至第一个进水反应器,逐个断开每个反应器与水套管路的连接。
- 将所有反应器中的培养基排入大型生物危害容器中,并按照常规培养物漂白方法进行处理。
- 排空后,拆卸并清洗所有反应器部件。将阳离子交换膜和碳毡圆片丢弃至适当的生物危害废物容器中。使用70%乙醇清洗参比电极和钛丝,并将清洗后的参比电极置于盛有少量水的烧杯中保存。用温水和实验室洗涤剂轻轻清洗反应器瓶、瓶盖、O型圈和夹具,用去离子水彻底冲洗,并在存放前将所有部件风干。
第6天:电化学分析
注意:以下是针对本实验方案的数据绘图的一般性描述。有关分析和数据解释的更详细说明将在代表性结果部分提供。
- 进行恒电流分析(CA分析):将DHNA注射时间设定为0 h时间点。以0 h为起点,每隔36 s采集所有重复样本的电流密度(j,单位为µA/cm2)的平均值和标准偏差,并将其作为时间(h)的函数进行绘图。根据工作电极面积(16 cm2)计算电流密度。
- 进行循环伏安分析(CV分析):针对每种实验条件(仅培养基、DMSO或DHNA),绘制一条代表性的CV曲线,显示电流密度(j,单位为µA/cm2)随工作电极电位(EWE,单位为V)的变化关系。绘制所选CV运行中的第二个循环。
结果
计时安培法分析
通过图3所示的计时安培法(CA)数据可以观察到L. plantarum的胞外电子传递(EET)。该图中的电流密度曲线反映了L. plantarum向工作电极的电子转移过程。实验中,在相对于Ag/AgCl电极保持+200 mV恒定电位的条件下,我们连续监测了24小时内的电流密度(j)随时间的变化。当向搅拌的电解液中注入20 µg/mL DHNA后,首先观察到一个非生物性的DHNA氧化电流峰,随后生物电流密度迅速上升,并在约8小时达到峰值,为132.0 ± 2.47 µA/cm2。相比之下,注入DMSO后电流密度变化可忽略不计。这些结果突显了DHNA作为介体在促进L. plantarum与电极之间电子传递过程中的必要性和高效性。用户可通过调节BES中DHNA的浓度来调控电流输出。先前的研究也表明,L. plantarum在较宽的DHNA浓度范围内呈剂量依赖性响应,即使DHNA浓度低至0.01 µg/mL时仍能产生显著电流13,22。
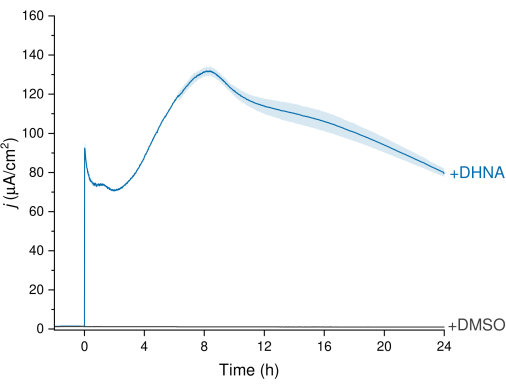
图3:DHNA介导的植物乳植杆菌(Lactiplantibacillus plantarum)胞外电子传递的计时电流分析。 将DHNA(20 µg/mL)或DMSO注入mCDM电解液(pH ~ 6.5)中,注射时刻定义为t = 0。j表示相对于工作电极面积的电流密度。实验在相对于Ag/AgCl电极为200 mV的条件下进行,使用碳毡电极(16 cm2)并持续搅拌。数据为三个BES反应器中实验结果的平均值±标准差。缩写:EET = 胞外电子传递;DHNA = 1,4-二羟基-2-萘甲酸;DMSO = 二甲基亚砜;mCDM = 含甘露醇的化学成分明确培养基。请点击此处查看该图的放大版本。
循环伏安法分析
为了进一步评估 DHNA 介导的 L. plantarum 胞外电子传递(EET),我们在 DHNA 注入后 24 小时进行了循环伏安法检测。此处展示了三种条件下的 CV 曲线:L. plantarum 加 20 µg/mL DHNA、L. plantarum 加 DMSO,以及含 20 µg/mL DHNA 的培养基。如图 4A所示,在含有 L. plantarum 的反应器中加入 20 µg/mL DHNA 后,在 50 mV 处出现了明显的氧化电流升高,而单独添加 DMSO 时未出现该现象。这些数据证实,添加氧化还原介体 DHNA 是促进 L. plantarum 与阳极之间电子传递所必需的。尽管我们在 L. plantarum + DMSO 的曲线中观察到多个较小的氧化还原峰,但这些峰与培养基对照组的峰相似,可能归因于 mCDM 培养基中氧化还原活性成分的作用(补充图 S1)。在图 4B中,我们比较了生物条件下(L. plantarum + DHNA)与非生物条件下(培养基 + DHNA)DHNA 的曲线。虽然两条曲线均在约 50 mV 处表现出明显的 DHNA 氧化峰,但仅在生物条件下观察到超过 50 mV 后电流的持续增加。该催化峰在 300 mV 时达到 129 µA/cm2 的电流密度,相比非生物条件下的曲线提高了 256%。这种周转型 CV 曲线是微生物胞外电子传递的典型特征27,表明在阳极处 DHNA 被氧化后,L. plantarum 细胞在电子供体(甘露醇)存在下可将其重新还原。此外,非生物条件下的曲线在约 -240 mV 和 -180 mV 处出现了新的氧化峰。先前研究表明,这些峰的出现可能是由于 DHNA 降解为 ACNQ(2-氨基-3-羧基-1,4-萘醌)所致21,28。我们在生物条件下的曲线中未观察到这些峰,表明 L. plantarum 细胞与 DHNA 的相互作用可能稳定了 DHNA 并防止其降解。需要注意的是,含 20 µg/mL DHNA 的培养基在 24 小时的曲线是根据本实验方案在未添加细胞的情况下单独进行的。
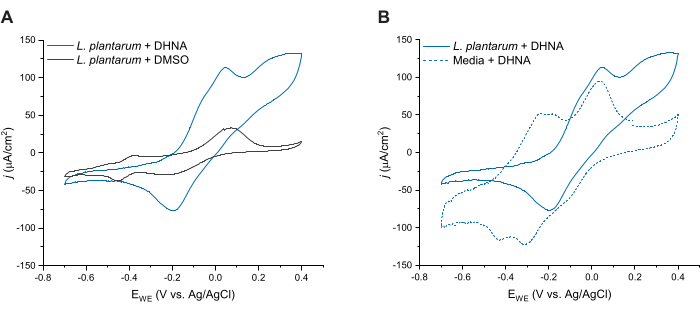
图4:典型的循环伏安曲线。 所有循环伏安(CV)实验均在含甘露醇的化学成分明确培养基(mCDM)中进行,以碳毡(16 cm2)作为工作电极,扫描速率为2 mV/s,并在实验过程中持续搅拌溶液。(A) 植物乳植杆菌(Lactiplantibacillus plantarum)在t = 24 h时,添加DHNA(20 µg/mL)或DMSO的CV曲线。(B) 在t = 24 h时,20 µg/mL DHNA在植物乳植杆菌(L. plantarum)(生物条件)或仅mCDM(非生物条件)中的CV曲线。缩写:CV = 循环伏安法;mCDM = 含甘露醇的化学成分明确培养基;DHNA = 1,4-二羟基-2-萘甲酸;DMSO = 二甲基亚砜。 请点击此处查看该图的放大版本。
pH分析
EET 活性在 L. plantarum 在24小时内导致pH值显著下降。如图所示 图5,样品的平均pH值为 L. plantarum 暴露于DHNA后降至3.33 ± 0.01(p = 6.85 × 10⁻⁶,n = 3),而样品的平均pH值为 L. plantarum 暴露于DMSO后降至6.50 ± 0.06(p = 0.0409,n = 3)。如先前研究所显示,该下降归因于发酵代谢的增强,这种情况发生在 L. plantarum 执行EET13. L. plantarum 通常通过糖酵解和发酵途径代谢甘露醇,产生乙酸、乳酸和乙醇作为发酵终产物,并通过底物水平磷酸化生成ATP29在EET条件下,发酵途径的代谢通量增加,从而提高BES培养基中终末发酵产物的产量13这种代谢转变导致含DHNA的反应器中培养基pH值下降速度较DMSO对照反应器更快。
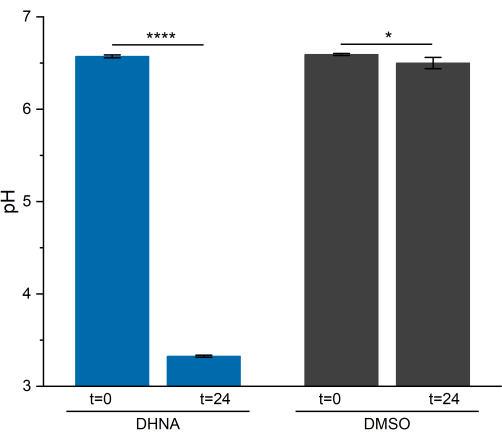
图 5:Lactiplantibacillus plantarum 生物电化学系统的 pH 分析。在恒电流电解过程中,于 t = 0 和 t = 24 h 采集样品。数值以三个重复生物电化学系统反应器的平均值 ± 标准差表示。显著性通过单尾t-检验确定。DHNA:P 值 = 6.85 × 10⁻⁶。DMSO:P 值 = 0.0409。缩写:DHNA = 1,4-二羟基-2-萘甲酸;DMSO = 二甲基亚砜。请点击此处查看该图的放大版本。
表1:制备mMRS培养基的成分24。 请点击此处下载该表格。
表2:mCDM培养基的配制成分。 本表格引自Tejedor-Sanz等13和Aumiller等25的研究。请点击此处下载该表格。
表3:M9培养基的配制成分。 请点击此处下载该表格。
表4:OCV、CA和CV技术的EC-Lab参数设置。缩写:OCV = 开路电压;CA = 计时安培法;CV = 循环伏安法。请点击此处下载该表格。
补充图 S1:代表性循环伏安法曲线图 植物乳植杆菌 仅含 DMSO 和 mCDM。 CV曲线 L. plantarum 在 t = 24 h 时加入 DMSO,在 t = 0 h 时仅使用 mCDM。所有 CV 实验均采用碳毡(16 cm)进行2以工作电极为2 mV/s的扫描速率进行循环伏安法测试,同时搅拌溶液。缩写:CV = 循环伏安法;mCDM = 含甘露醇的化学成分明确培养基;DHNA = 1,4-二羟基-2-萘甲酸;DMSO = 二甲基亚砜。 请点击此处下载此文件。
讨论
通过使用此处所述的三电极双室生物电化学系统,我们展示了对植物乳杆菌(L. plantarum)中由DHNA介导的胞外电子传递(EET)所产生的电流进行测量。这些BES实验可生成高质量数据;然而,BES系统较为敏感。因此,实验成功与否取决于操作者的精确性,尤其是在反应器和参比电极的组装、针头与电极在阳极室内的定位,以及阳离子交换膜的更换过程中。必须仔细组装反应器,确保在高压灭菌或实验过程中无水或培养基泄漏。若出现漏水,可通过确保阳离子交换膜被精确裁剪以完全贴合O型圈,并将卡箍拧至手指拧紧的程度来解决。此外,在高压灭菌过程中必须将碳毡圆片完全浸没于水中,使其充分润湿,从而在后续实验中具备亲水性。我们建议初次使用者在高压灭菌前,先将新组装并注满水的反应器静置2小时,检查主瓶连接处下方是否有缓慢渗漏的迹象。同时,确保参比电极正确组装,是实现不同反应器间数据可重复性的关键。若玻璃外壳内的聚四氟乙烯(Teflon)烧结片出现变色、开裂或干燥,可能导致参比电极电阻过高。此时,用户可通过更换玻璃外壳来恢复参比电极性能。
在实验过程中,确保阳极室内所有针头和电极的正确方位对实验成功至关重要。参比电极不得直接接触碳毡工作电极的任何部分。用户可通过从反应器上方轻轻旋转工作电极的钛丝来调节碳毡的位置。此外,用于氮气鼓泡的针头放置时,不应与反应室内的电极或反应室上方的电极/恒电位仪连接部分发生直接接触。氮气流应调节至不进入任一电极内部。最后,用户应确保搅拌子不与工作电极接触,可通过将工作电极置于搅拌子上方1-2 cm处来实现。若在开路电压(OCV)中观察到不稳定的信号,通常可通过确保电极和氮气流在反应器内的正确放置,以及检查恒电位仪导线与反应器电极之间的连接是否正确且牢固来解决。最后,根据我们的经验,电子介体(如DHNA)可能被保留在阳离子交换膜内,若重复使用次数过多,会导致较高的背景电流。我们建议在使用两到三次后更换阳离子交换膜,尤其是在研究介导的胞外电子传递(EET)时,以确保实验结果的可靠性。
与直接的胞外电子传递(EET)不同,介导的EET依赖电子穿梭体持续穿过细胞膜并在电极间扩散,从而形成此处所述的独特生物电化学系统(BES)设置。首先,在本方案中,我们选择双室BES而非单室系统,并使用阳离子交换膜分隔阳极室和阴极室。这种分隔可防止自由扩散的电子介体(DHNA)和微生物与阴极发生交叉干扰,确保微生物EET是还原电子介体和阳极的主要电子来源。该设计还允许对介体浓度/分布以及阳极施加的电势等参数进行精确控制。此外,在石墨棒、金属电极、玻碳或氧化铟锡(ITO)等多种可选材料中,我们选择碳毡作为阳极材料,原因是碳毡的三维多孔结构比其他电极具有更大的比表面积30,即使在高浓度条件下也能实现介体的高效利用。我们所采用的三电极双室BES系统可对介导型EET提供稳定且可重复的检测信号,即使在长期监测中亦表现良好;然而,该方法通量相对较低。本方案适用于在实验室规模下研究EET机制或测试EET原型应用。对于不同的基础研究或应用需求,研究人员也可考虑其他BES构型,例如便携式或印刷式BES31,32、互补金属氧化物半导体(CMOS)阵列33,或放大规模的BES系统34。
在本实验方案中,我们提供了最常用的电化学技术——计时安培法(CA)和循环伏安法(CV)的详细操作步骤。值得注意的是,其他电化学技术,如电化学阻抗谱(EIS)和差分脉冲伏安法(DPV),可通过分析电荷转移电阻和双电层电容,为生物电系统(BES)提供更深入的信息35,36,37。尽管本BES方案可用于胞外电子传递(EET)的测量,但结合代谢活性和细胞生物量的测定,对于全面分析仍至关重要。例如,L. plantarum等微生物在产生乳酸和乙醇等其他发酵副产物的同时,也将EET作为一种电子汇途径。此外,值得注意的是,细胞生物量的增长本身也起到电子汇的作用13。因此,定量测定消耗的电子供体(如甘露醇)、评估细胞生物量增长并监测发酵副产物,有助于更深入理解EET的效率及其生理学影响。细胞代谢物通常采用色谱法和酶学分析法进行定量,而细胞活力和生长情况则分别通过菌落形成单位计数和测定使用后培养基在600 nm处的光密度来评估13。还需注意的是,EET测量对实验条件的微小变化十分敏感,包括但不限于pH、温度、搅拌速度和氮气鼓泡速率38。因此,将测得的EET水平与生物分析测量结果进行归一化处理,可作为内部对照,有助于在不同日期进行的实验之间实现一致性的评估。
将电化学技术与其他生物分析测量方法相结合,介导的电子传递(EET)为电发酵和生物电催化开辟了新的机遇。传统上使用的有机、无机或酶类电催化剂由于成本较高,且易发生降解,因而面临诸多挑战。相比之下,利用微生物作为活体电催化剂,因其具备自我修复和自我复制能力,提供了一种成本更低且更具可扩展性的解决方案。39. 植物乳杆菌, 公认安全 乳酸菌是一种特别引人关注的底盘微生物。利用本方案中所述的相同电化学装置,我们此前已证明 L. plantarum 可在EET条件下发酵羽衣甘蓝汁,并加速代谢流以产生更多的发酵终产物,如乳酸、乙酸和琥珀酸13;这些有机酸是食品发酵过程中重要的风味化合物。这表明,通过使用电化学技术,可以研究介导的电子传递(EET)在 L. plantarum 有可能被利用来操控代谢流、改变食物风味或生产有价值的化学品。值得注意的是,本方案中介绍的电化学技术不仅可应用于 L. plantarum 但也可广泛适用于其他执行介导型电子传递(EET)的天然或人工改造微生物40,41可基于所用特定微生物的电子传递机制,选择不同的电子介体,例如黄素、二茂铁、中性红、铁氰化物、lawsone(2-羟基-1,4-萘醌)和甲萘醌22,42此外,本研究中建立的BES方案可扩展应用于以无介体电子传递(EET)方式进行代谢的产电微生物,正如先前研究所证实的那样 Shewanella 和 地杆菌 物种43,44应使用优化的培养基以支持特定微生物的细胞活性,从而促进其胞外电子传递(EET)性能。本方案针对DHNA介导的EET过程优化了各项参数 L. plantarum但当使用不同的微生物和电子介体时,预计会产生相应的调整。
披露
作者声明无竞争利益。
致谢
我们感谢Ajo-Franklin实验室成员在BES组装、维护、关键步骤及故障排除方面的深入讨论。本研究由美国陆军研究办公室资助,并在资助号W911NF-22-1-0239(资助人:C. M. A-F,支持R. A.)以及德克萨斯州癌症预防与研究所资助号RR190063(资助人:C. M. A-F,支持R. C.、S. L.和B. B. K.)下完成。图1使用BioRender.com制作。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1,4-二羟基-2-萘甲酸(DHNA) | 西格玛-奥德里奇 | 281255-25G | |
| 1.0 mm 直径钛丝 | 赛默飞世尔科技 | 045485.BY | 裁剪至合适尺寸用于工作电极和对电极 |
| 120-C 氧化铝砂纸 9" x 11" | 约翰逊研磨剂公司 | 10108-15 | |
| 3 mL 塑料注射器 | 赛默飞世尔科技 | 14955457 | |
| 用氯化银饱和的 3M KCl 溶液 | 密理博-西格玛 | 60137-250ML | |
| 6.35 mm 厚碳毡 | 赛默飞世尔科技 | 043200.RF | 裁剪成 16 cm2 圆片 |
| Ag/AgCl 参比电极 | CH Instruments | CH111 | |
| Air-Tite Premium 皮下注射针头 | 赛默飞世尔科技 | 14-817-102 | |
| AlK(SO)4 * 12H2O | 西格玛-奥德里奇 | 237086-100G | |
| 柠檬酸三钾铵 | 密理博-西格玛 | A1332 | |
| Avanti J-15R 离心机 | 贝克曼库尔特 | B99517 | |
| BD Precision Glide 针头,18 G x 1 英寸 | 赛默飞世尔科技 | 14-826-5G | |
| BD Precision Glide 针头,21 G x 2 英寸 | 赛默飞世尔科技 | 14-821-13N | |
| Bel-Art SP Scienceware Cleanware Aqua-Clear 水质调节器 | 赛默飞世尔科技 | 23-278339 | |
| 生物素 | 密理博-西格玛 | B4639 | |
| CaCl2 | 密理博-西格玛 | C4901 | |
| 泛酸钙 D-(+)- | 密理博-西格玛 | 1087009 | |
| 酪蛋白氨基酸 | 密理博-西格玛 | 2240-OP | |
| 阳离子交换膜 | Membranes International | CMI-7000 | 裁剪成适合 BES O 形圈的圆片 |
| CoCl2 * 6H2O | 密理博-西格玛 | C8661 | |
| CuSO4 * 5H2O | 密理博-西格玛 | C8027 | |
| 半胱氨酸盐酸盐 * H2O | 密理博-西格玛 | 30129 | |
| DMSO | 密理博-西格玛 | 5439001000 | |
| DS-11+ 分光光度计 | Denovix | N/A | |
| EC-Lab 软件 | BioLogic | N/A | |
| ECO E 4 S 加热循环器 | Lauda-Brinkmann | 货号:115 V;60 Hz : L001191 | |
| FeSO4 * 7H2O | 密理博-西格玛 | 215422 | |
| 叶酸 | 密理博-西格玛 | F8758 | |
| H3BO3 | 密理博-西格玛 | B6768 | |
| 带 BD Micro-Fine IV 针头的胰岛素注射器 | 赛默飞世尔科技 | 14-829-1A | |
| Lactiplantibacillus plantarum NCIMB8826 | N/A | N/A | 参考文献:Tejedor-Sanz 等,2022 |
| 乳杆菌 MRS 肉汤 | HiMedia | M369 | |
| M9 肉汤 | Milliport Sigma | 63011 | |
| 无水硫酸镁 | 密理博-西格玛 | 208094 | |
| 一水合硫酸锰 | 密理博-西格玛 | 221287 | |
| 甘露醇 | 密理博-西格玛 | M1902-1KG | |
| 梅特勒托利多 FiveEasy 台式 pH 计 | Hogentogler | F20-KIT | |
| MgCl2 * 6H2O | 密理博-西格玛 | M9272 | |
| MgSO4 * 7H2O | 密理博-西格玛 | M2773 | |
| Millex - GV 0.22 µm PVDF 膜过滤装置 | 密理博-西格玛 | SLGV004SL | |
| MnCl2 * 4H2O | 密理博-西格玛 | 203734 | |
| MnSO4 * H2O | 密理博-西格玛 | 221287 | |
| MOPS | 密理博-西格玛 | M1442 | |
| N2 气体 | Airgas | NI UHP300 | 使用前过滤 |
| Na2MoO4 * 2H2O | 密理博-西格玛 | 331058 | |
| Na2SO4 | 密理博-西格玛 | 238597 | |
| NaCl | 密理博-西格玛 | S9888 | |
| NH4Cl | 密理博-西格玛 | A9434 | |
| 烟酸 | 密理博-西格玛 | N-0761 | |
| 次氮基三乙酸(NTA) | 密理博-西格玛 | 72560 | |
| 对氨基苯甲酸 | 密理博-西格玛 | P9879 | |
| 磷酸盐缓冲液,10x 溶液 | 赛默飞世尔科技 | BP399-1 | |
| 磷酸氢二钾 | 密理博-西格玛 | P8281 | |
| 恒电位仪 | BioLogic | VMP-300 | |
| 蛋白酶蛋白胨 #3 | Bacto | 211693 | |
| 盐酸吡哆醇 | 密理博-西格玛 | P6280 | |
| 核黄素 | 密理博-西格玛 | 555682 | |
| RO10 磁力搅拌平台 | IKA | 3691000 | |
| 三水合乙酸钠 | 密理博-西格玛 | 935700 | |
| 搅拌子,卵形 | 赛默飞世尔科技 | 14-512-121 | 置于 BES 的阳极室中 |
| 盐酸硫胺素 | 密理博-西格玛 | V-014 | |
| 硫辛酸(α-硫辛酸) | 密理博-西格玛 | T-1395 | |
| 色氨酸 | 密理博-西格玛 | 9136 | |
| Tween80 | 密理博-西格玛 | P4780 | |
| 维生素 B12 | 密理博-西格玛 | V6629 | |
| 夹套式 MCF 装置,100 ml,NW25,2 x GL14 接口 | Adams & Chittenden Scientific Glass | NA | 定制 |
| 酵母提取物 | 密理博-西格玛 | Y1625 | |
| ZnSO4 * 7H2O | 密理博-西格玛 | Z0251 |
参考文献
- TerAvest, M. A., Ajo-Franklin, C. M. Transforming exoelectrogens for biotechnology using synthetic biology. Biotechnol Bioeng. 113 (4), 687-697 (2016).
- Chen, H., Dong, F., Minteer, S. D. The progress and outlook of bioelectrocatalysis for the production of chemicals, fuels and materials. Nat Catal. 3 (3), 225-244 (2020).
- Chen, H., et al. Fundamentals, applications, and future directions of bioelectrocatalysis. Chem Rev. 120 (23), 12903-12993 (2020).
- Lovley, D. R., Phillips, E. J. P. Novel mode of microbial energy metabolism: organic carbon oxidation coupled to dissimilatory reduction of iron or manganese. Appl Environ Microbiol. 54 (6), 1472-1480 (1988).
- Myers, C. R., Nealson, K. H. Bacterial manganese reduction and growth with manganese oxide as the sole electron acceptor. Science. 240 (4857), 1319-1321 (1988).
- Koch, C., Harnisch, F. Is there a specific ecological niche for electroactive Microorganisms. ChemElectroChem. 3 (9), 1282-1295 (2016).
- Zhao, J., et al. Microbial extracellular electron transfer and strategies for engineering electroactive microorganisms. Biotechnol Adv. 53, 107682(2021).
- Zhang, J., Li, F., Liu, D., Liu, Q., Song, H. Engineering extracellular electron transfer pathways of electroactive microorganisms by synthetic biology for energy and chemicals production. Chem Soc Rev. 53 (3), 1375-1446 (2024).
- Logan, B. E. Exoelectrogenic bacteria that power microbial fuel cells. Nat Rev Microbiol. 7 (5), 375-381 (2009).
- Logan, B. E., Rabaey, K. Conversion of wastes into bioelectricity and chemicals by using microbial electrochemical technologies. Science. 337 (6095), 686-690 (2012).
- Gu, L., Xiao, X., Yup Lee, S., Lai, B., Solem, C. Superior anodic electro-fermentation by enhancing capacity for extracellular electron transfer. Bioresour Technol. 389, 129813(2023).
- Boucher, D. G., et al. Bioelectrocatalytic synthesis: concepts and applications. Angew Chem Int Ed. 62 (46), e202307780(2023).
- Tejedor-Sanz, S., et al. Extracellular electron transfer increases fermentation in lactic acid bacteria via a hybrid metabolism. eLife. 11, e70684(2022).
- Martino, M. E., et al. Nomadic lifestyle of Lactobacillus plantarum revealed by comparative genomics of 54 strains isolated from different habitats. Environ Microbiol. 18 (12), 4974-4989 (2016).
- Fidanza, M., Panigrahi, P., Kollmann, T. R. Lactiplantibacillus plantarum-nomad and ideal probiotic. Front Microbiol. 12, 712236(2021).
- Duar, R. M., et al. Lifestyles in transition: evolution and natural history of the genus Lactobacillus. FEMS Microbiol Rev. 41 (Suppl_1), S27-S48 (2017).
- Kaushik, J. K., et al. Functional and probiotic attributes of an indigenous isolate of Lactobacillus plantarum. PLOS ONE. 4 (12), e8099(2009).
- Seddik, H. A., et al. Lactobacillus plantarum and its probiotic and food potentialities. Probiotics Antimicrob Proteins. 9 (2), 111-122 (2017).
- Siezen, R. J., et al. Phenotypic and genomic diversity of Lactobacillus plantarum strains isolated from various environmental niches. Environ Microbiol. 12 (3), 758-773 (2010).
- Light, S. H., et al. A flavin-based extracellular electron transfer mechanism in diverse Gram-positive bacteria. Nature. 562 (7725), 140-144 (2018).
- Tolar, J. G., Li, S., Ajo-Franklin, C. M. The differing roles of flavins and quinones in extracellular electron transfer in Lactiplantibacillus plantarum. Appl Environ Microbiol. 89 (1), e0131322(2023).
- Li, S., De Groote Tavares, C., Tolar, J. G., Ajo-Franklin, C. M. Selective bioelectronic sensing of pharmacologically relevant quinones using extracellular electron transfer in Lactiplantibacillus plantarum. Biosens Bioelectron. 243, 115762(2024).
- Blackburn, B., Alba, R., Hatch, A., Ajo-Franklin, C. M., Mevers, E. Understanding the Chemical Properties that Drive Extracellular Electron Shuttles. ChemRxiv. , (2024).
- De Man, J. C., Rogosa, M., Sharpe, M. E. A medium for the cultivation of Lactobacilli. J Appl Bacteriol. 23 (1), 130-135 (1960).
- Aumiller, K., et al. A chemically-defined growth medium to support Lactobacillus-Acetobacter sp. community analysis. PLOS ONE. 18 (10), e0292585(2023).
- Brooijmans, R. J. W., de Vos, W. M., Hugenholtz, J. Lactobacillus plantarum WCFS1 electron transport chains. Appl Environ Microbiol. 75 (11), 3580-3585 (2009).
- LaBelle, E., Bond, D. R. Cyclic voltammetry for the study of microbial electron transfer at electrodes. Bio-electrochemical systems: from extracellular electron transfer to biotechnological application. , (2009).
- Mevers, E., et al. An elusive electron shuttle from a facultative anaerobe. eLife. 8, e48054(2019).
- Dirar, H., Collins, E. B. End-products, Fermentation balances and molar growth yields of homofermentative Lactobacilli. Microbiology. 73 (2), 233-238 (1972).
- Huong Le, T. X., Bechelany, M., Cretin, M. Carbon felt based-electrodes for energy and environmental applications: A review. Carbon. 122, 564-591 (2017).
- Zhou, A. Y., Baruch, M., Ajo-Franklin, C. M., Maharbiz, M. M. A portable bioelectronic sensing system (BESSY) for environmental deployment incorporating differential microbial sensing in miniaturized reactors. PLOS ONE. 12 (9), e0184994(2017).
- Benjamin, S. R., de Lima, F., Nascimento, V. A. do, de Andrade, G. M., Oriá, R. B. Advancement in paper-based electrochemical biosensing and emerging diagnostic methods. Biosensors. 13 (7), 689(2023).
- Kumashi, S. R., et al. A CMOS multi-modal electrochemical and impedance cellular sensing array for massively paralleled exoelectrogen screening. IEEE Trans Biomed Circuits Syst. 15 (2), 221-234 (2021).
- Jadhav, D. A., et al. Scale-up of the bioelectrochemical system: Strategic perspectives and normalization of performance indices. Bioresour Technol. 363, 127935(2022).
- Kim, J., Cestellos-Blanco, S., Shen, Y., Cai, R., Yang, P. Enhancing biohybrid CO2 to multicarbon reduction via adapted whole-cell catalysts. Nano Lett. 22 (13), 5503-5509 (2022).
- He, Z., Mansfeld, F. Exploring the use of electrochemical impedance spectroscopy (EIS) in microbial fuel cell studies. Energy Environ Sci. 2 (2), 215-219 (2009).
- Okamoto, A., Hashimoto, K., Nealson, K. H., Nakamura, R. Rate enhancement of bacterial extracellular electron transport involves bound flavin semiquinones. Proc Natl Acad Sci U S A. 110 (19), 7856-7861 (2013).
- Zhang, X., Li, X., Zhao, X., Li, Y. Factors affecting the efficiency of a bioelectrochemical system: a review. RSC Adv. 9 (34), 19748-19761 (2019).
- Kornienko, N., Zhang, J. Z., Sakimoto, K. K., Yang, P., Reisner, E. Interfacing nature's catalytic machinery with synthetic materials for semi-artificial photosynthesis. Nat Nanotechnol. 13 (10), 890-899 (2018).
- Glasser, N. R., Saunders, S. H., Newman, D. K. The colorful world of extracellular electron shuttles. Annu Rev Microbiol. 71 (1), 731-751 (2017).
- Gemünde, A., Lai, B., Pause, L., Krömer, J., Holtmann, D. Redox mediators in microbial electrochemical systems. ChemElectroChem. 9 (13), e202200216(2022).
- Kundu, B. B., et al. Extracellular respiration is a latent energy metabolism in Escherichia coli. bioRxiv. , (2024).
- O'Brien, J. P., Malvankar, N. S. A simple and low-cost procedure for growing Geobacter sulfurreducens cell cultures and biofilms in bioelectrochemical systems. Curr Protoc Microbiol. 43 (1), A.4K.1-A.4K.27 (2016).
- Su, L., Fukushima, T., Ajo-Franklin, C. M. A hybrid cyt c maturation system enhances the bioelectrical performance of engineered Escherichia coli by improving the rate-limiting step. Biosens Bioelectron. 165, 112312(2020).
重印与许可
