本文介绍了一种在受精后至少1至7天内的任何阶段,对斑马鱼胚胎和幼鱼进行细胞移植的实验方案,可实现高时空分辨率的移植操作。
本文内容
摘要
摘要
发育与再生是通过基因编码的时空动态细胞相互作用过程实现的。通过在动物之间进行细胞移植,以追踪细胞命运并诱导供体与受体细胞在遗传、空间或时间特性上的不匹配,是研究这些相互作用本质的有力手段。例如,鸡和两栖类生物分别对发育和再生研究做出了关键贡献,这在很大程度上得益于它们易于进行移植操作。然而,这些模型的优势受到遗传可操作性较低的限制。同样,主要的遗传学模式生物在移植方面的适用性也相对较低。
斑马鱼是发育与再生研究的重要遗传学模型。尽管细胞移植在斑马鱼研究中较为常见,但通常仅限于在囊胚早期和原肠胚发育阶段移植未分化细胞。本文介绍一种简单且稳健的方法,可将斑马鱼细胞移植的时间窗口扩展至受精后至少1至7天内的任何胚胎或幼体阶段。该方法具有高度精确性,可在供体与受体动物中实现近乎完美的时空分辨率,甚至能够移植单个细胞。尽管本文重点展示了胚胎期和幼体期神经元的移植,分别用于研究神经发育与神经再生,但该方法同样适用于多种前体细胞和已分化细胞类型,以及广泛的研究问题。
引言
细胞移植作为发育生物学中的一项基础技术,拥有悠久而重要的历史。大约在20世纪初th 世纪,利用物理操作手段干扰发育过程的方法,包括移植技术,使胚胎学从一门观察性科学转变为实验性科学1,2在一项具有里程碑意义的实验中,汉斯·施佩曼(Hans Spemann)和希尔德·曼戈尔德(Hilde Mangold)将蝾螈胚胎的背唇异位移植到宿主胚胎的对侧,诱导邻近组织形成次级体轴。3该实验表明,细胞能够诱导其他细胞采取特定命运,此后,移植技术发展成为发育生物学中研究细胞潜能与细胞命运决定、细胞谱系、诱导能力、可塑性以及干细胞多能性等关键问题的有力方法。1,4,5.
近年来的科学进展进一步增强了移植技术的应用能力。1969年,Nicole Le Douarin 发现核仁染色可区分鹌鹑-鸡嵌合体中细胞的物种来源,从而实现了对移植细胞及其后代的追踪6。此后,随着转基因荧光标记技术和先进成像技术的出现,这一方法得到了显著提升5,并被广泛用于追踪细胞命运6,7、鉴定干细胞及其多能性8,9,以及追踪脑发育过程中的细胞迁移10。此外,分子遗传学的发展使得在不同基因型的供体与受体之间进行移植成为可能,从而支持对发育因子自主性与非自主性功能的精确解析11。
移植技术还对再生研究做出了重要贡献,特别是在具有强大再生能力的生物体(如涡虫和墨西哥钝口螈)中,通过阐明调控再生组织生长和模式形成的细胞身份及相互作用。移植研究揭示了再生过程中关于细胞潜能12、空间模式形成13,14、特定组织的贡献15,16以及细胞记忆作用12,17的基本原理。
斑马鱼由于其保守的遗传程序、高度可操作的遗传性、体外受精、产卵量大以及良好的光学通透性,已成为研究发育和再生(包括神经系统)的重要脊椎动物模型18,19,20。斑马鱼在早期发育阶段也极适合进行细胞移植。最常用的方法是在囊胚期或原肠胚期,将标记供体胚胎的细胞移植到宿主胚胎中,以生成嵌合体动物。在囊胚期移植的细胞会随着表层扩展的开始而分散,从而在整个胚胎中形成标记细胞和组织的嵌合分布21。而在原肠胚期进行移植时,随着胚盾的形成以及前后轴(A-P)和背腹轴(D-V)的确定,可根据粗略的命运图谱对移植细胞进行一定程度的靶向定位21。所获得的嵌合体在判断基因是否以细胞自主方式发挥作用、检验细胞命运决定以及描绘发育过程中组织运动和细胞迁移路径等方面具有重要价值5,11。嵌合斑马鱼可通过多种方法产生,包括电穿孔22、基因重组23、F0代转基因24以及诱变技术25,但细胞移植在细胞的空间、时间以及数量和类型操控方面提供了最高的灵活性与精确性。目前斑马鱼的细胞移植技术主要局限于早期阶段的前体细胞,仅有少数例外,包括脊髓运动神经元26,27、视网膜神经节细胞28,29以及受精后前10–30小时(hpf)内的神经嵴细胞移植30,以及成年斑马鱼中造血细胞和肿瘤细胞的移植5,31。若能将移植技术拓展至更广泛的年龄阶段、分化时期和细胞类型,将极大增强该方法在解析发育与再生过程中的应用潜力。
本文展示了一种灵活且稳健的技术,可用于斑马鱼胚胎和幼鱼(至少至受精后7天)的高分辨率细胞移植。通过在特定组织中表达荧光蛋白的转基因宿主和供体鱼,可分离单个细胞并以近乎完美的时空分辨率进行移植。斑马鱼胚胎和幼鱼具有良好的光学通透性,使得在宿主发育或再生过程中能够对移植的细胞进行活体成像。该方法此前已被用于研究时空信号动态如何影响胚胎中神经元身份的确定及轴突导向32,以及探究在幼鱼再生过程中,内在与外在因素如何协同调控轴突导向的机制33。尽管本文重点介绍分化神经元的移植,但该方法同样广泛适用于多种发育阶段和组织中的未分化及分化细胞类型,可用于发育与再生领域的诸多科学问题研究。
方案
本实验中涉及活体斑马鱼操作的所有步骤均已获得明尼苏达大学机构动物护理和使用委员会(IACUC)的批准,并严格遵循IACUC指南进行。
1. 移植装置的一次性初始设置(图1)
- 根据制造商的说明组装移植显微镜。
注:本实验方案使用配备40倍水浸物镜的直立荧光显微镜。 - 组装粗调和微调显微操作器,并按照制造商的说明将其安装在显微镜右侧。
注:由于载物台相对于针头在Z轴方向上不得移动,因此我们使用固定载物台的显微镜,并将显微操作器安装在显微镜底座上。若无固定载物台的显微镜,也可将显微操作器安装在载物台上。 - 将微电极夹持器连接至电极手柄,并安装到显微操作器上。
- 将三通旋塞的一端连接至微型注射泵,另一端通过色谱适配器连接聚乙烯管。
- 使用色谱适配器将聚乙烯管的另一端连接至微电极夹持器。
- 用轻质矿物油填充10 mL储液注射器,并将其安装在旋塞的上方接口。
- 从储液器中用矿物油填充微型注射泵及管路(液压管线),确保排除所有气泡。
注:装置组装完成后,液压管线仅需偶尔维护。可根据需要取下储液注射器并重新填充矿物油。
2. 准备胚胎推针。
- 剪取一段长约2 cm的钓鱼线,将其部分插入P1000移液器吸头的窄端,使约1.5 cm露出在外。用少量瞬干胶固定钓鱼线,并静置使其干燥。
3. 准备溶液。
- 制备1%低熔点琼脂糖胚胎培养基溶液(LMA):将低熔点琼脂糖溶于煮沸的胚胎培养基中。34将溶液分装至圆底试管中,每管1-2 mL,4 °C保存。
- 配制含青霉素-链霉素和三卡因的林格氏溶液(RPT):将以下成分混合,终浓度为 116 mM NaCl、2.9 mM KCl、1.8 mM CaCl2、5 mM HEPES(pH 7.2)、50 单位/毫升青霉素和 50 μg/mL 链霉素,搅拌至完全溶解,并通过真空滤器过滤。室温保存。使用前立即加入三卡因,使其终浓度为 0.02%。
4. 准备受体和供体动物以进行移植。
- 培育具有适当基因型且目标细胞带有荧光标记的宿主和供体动物,并使其生长至所需年龄。
注:在本实验的移植过程中,我们使用了 Tg(isl1:EGFPCAAX)fh474 作为供体动物32,Tg(isl1:mRFP)fh1 作为宿主动物35,并在受精后3天(3dpf)将供体的神经元移植至宿主的迷走神经运动核。 - 通过在每张载玻片上用透明指甲油绘制一个矩形轮廓来制备移植用载玻片(图2A)。指甲油可形成疏水屏障,用于在第4.8步中容纳RPT溶液。使用前需完全干燥。
注:载玻片可提前制备并长期保存。 - 将一份LMA(低熔点琼脂糖)融化:将装有LMA的离心管置于含有40 mL水的50 mL烧杯中,以50%功率微波加热1分钟,或直至完全融化。随后将LMA保持在40 °C的干浴加热器中。
- 若有必要,使用镊子去除宿主和供体动物的卵膜,并将其转移至盛有室温RPT的小培养皿中进行麻醉。等待5分钟,确保动物完全麻醉后再进行后续操作。
- 分别固定供体和宿主动物:使用巴斯德吸管和吸管泵将动物从RPT中转移至LMA中,再以少量LMA液滴将动物转移至载玻片上的指甲油轮廓内。尽量减少带入LMA中的RPT量,以防琼脂糖被稀释。在LMA凝固前,使用胚胎推针调整动物位置,确保每个动物的预定注射位点朝向右侧,且所有动物在垂直方向上对齐(图2B);待琼脂糖完全凝固(约5分钟)后继续下一步操作。
注:由于每只供体动物可提供多个细胞,建议在每张载玻片上固定一只供体动物和2–4只宿主动物,以提高效率。 - 使用手术刀在所有琼脂糖液滴的右侧、紧邻固定好的动物处,垂直切割一条直线(图2C)。用实验室擦拭纸清除载玻片上松动的琼脂糖碎片。
- 使用手术刀从琼脂糖中切出楔形缺口,以暴露针头插入位点(图2C)。用实验室擦拭纸清除载玻片上松动的琼脂糖碎片。
- 向载玻片上加入RPT,直至琼脂糖液滴完全浸没于液体中(图2D)。
- 将制备好的载玻片安装到移植显微镜上。在40倍物镜下使供体动物成像清晰:先将物镜下降至接触液面,再缓慢上移至所需焦平面。
注:在整个移植过程中必须保持物镜与液体接触(图3C)。 - 调节至目标荧光标记的供体细胞清晰对焦;然后将载物台向左移动,为定位移植针做准备。
注:此时不应调节显微镜的Y轴或Z轴,以确保在第5节中能够轻松重新定位到供体动物。
5. 准备受体针。
- 将微量移液管插入微量移液管拉制仪中,拉制出显微注射针。
注意:针尖的形状应类似于用于单细胞期斑马鱼胚胎注射或膜片钳实验的针头。我们使用的微量移液管拉制仪程序参数如下:PRESSURE = 500,HEAT = ramp + 80,PULL = 90,VELOCITY = 70,TIME = 250(参见材料表),但不同拉制仪的最佳参数可能需要通过实验经验确定。 - 在解剖显微镜下,将针尖与载物台测微尺的刻度对齐。以测微尺为测量参考,使用尖头镊子将针尖折断至内径略大于目标细胞直径的大小(图3A)。确保折断面尽可能平整,因为不规则边缘可能导致针头堵塞。注意:对于迷走运动神经元(直径5–7 µm),针头应折断至内径约10 µm,对应外径约20 µm。如有需要,可使用微针成型仪或微磨针仪进一步修整针尖的大小、形状和/或角度36。
- 使用装有轻质矿物油并配有移液管填充器的50 mL注射器,将矿物油完全充满针头(图3B),确保无气泡残留。将灌注好的针头放置一旁,待安装时使用。
注意:为确保无气泡,应将移液管填充器完全插入针头内部,并在缓慢抽出填充器的同时释放油液。 - 在移植装置上,旋转三通旋塞,使其长臂朝向微型注射泵,然后按压储液器注射器的推杆,以清除液压管路中的所有气泡。保持对推杆施加轻微压力(防止空气倒吸入管路),然后旋转三通旋塞,使其长臂朝向储液器注射器。
- 将针头插入针持中,注意避免引入气泡。调整针头角度,使其水平向左,且与水平面成10–15°角(图3C)。
- 使用粗调和微调显微操作器,在显微镜物镜下移动针尖,并将其调至焦点清晰(图3D)。
注意:在X和Y平面上对针头进行粗略定位时,可在移动针头的同时直接观察物镜下方区域,当针头位于物镜下方时会反射透射光束。随后可通过显微镜目镜进行精细定位。此步骤中不得调整显微镜载物台位置或焦距,应仅通过显微操作器将针尖移至当前焦平面内。 - 若液体正在流入或流出针尖,调节注射泵压力,直至在矿物油与任氏液之间形成稳定的弯月面(图3D)。
注意:若稳定后针尖仍残留油泡,可通过粗调显微操作器的X轴调节,将针头向右移动,使其尖端完全退出RPT,然后再向左移动,重新将其置于物镜下方。
6. 移植
注意:本部分的所有针头操作均应使用精细显微操作仪进行。
- 将载物台向右移动,直到重新看到供体动物,注意避免针头意外刺入。
- 重新将待移植细胞居中并对焦,使针头对准动物体外附近的细胞(图4A)。
注意:可能需要频繁切换明场与荧光模式,以确保正确对齐。使用中性密度滤光片有助于同时观察两者。 - 将针头插入供体动物体内。
注意:反复进出的针头动作有助于穿透皮肤。 - 立即使用微量注射泵重新稳定针尖处的油相弯月面,操作方法如步骤5.7所述。
- 将针尖置于目标细胞附近,并使用微量注射泵施加轻柔的负压(图4B)。
注意:在抽吸过程中进行轻柔的前后移动,有助于松动细胞。 - 当吸取足够数量的细胞后,将针头从供体中取出,并立即使用微量注射泵重新稳定针尖处的油相弯月面。
- 小心避免针头接触其他动物或琼脂糖,移动载物台使第一个受体动物进入视野。
- 将细胞植入区域居中并对焦,使针头对准动物体外该区域附近(图4C)。
- 将针头插入受体动物体内,并立即使用微量注射泵重新稳定针尖处的油相弯月面。
- 将针尖定位至沉积位点,使用微量注射泵施加轻柔压力,直至从针头中释放出预定数量的供体细胞(图4D)。
注意:若供体与受体细胞使用不同的荧光染料标记,此时使用多通道滤光片实现同时观察将非常有帮助。 - 将针头从受体中取出,并立即使用微量注射泵重新稳定针尖处的油相弯月面。
- 对所有剩余的受体重复步骤6.7–6.11。
7. 宿主动物恢复
- 升起40倍物镜,并使用粗调微操纵器将针头移回加载位置。
注意:针头可重复用于多个载玻片。 - 从移植显微镜上取下载玻片,将其置于解剖显微镜下。
- 用镊子小心地从LMA液滴中取出宿主动物,以卸下样本。使用玻璃巴斯德吸管将宿主动物转移至含有新鲜林格氏液(含青霉素/链霉素)的培养皿中。确保动物从麻醉状态恢复,并将其置于胚胎培养箱中直至准备成像。根据批准的方案对供体动物实施安乐死。
注意:我们的安乐死方法是将动物浸入冰浴中至少1小时,随后浸入500 mg/L次氯酸钠溶液中。
结果
通过在移植后适当时间点使用荧光显微镜观察宿主动物体内荧光标记的供体细胞,可直接观察到移植实验的结果。在此,我们在3 dpf时移植了单个前部迷走神经元。随后将宿主动物孵育12或48小时,麻醉后用LMA将样本固定在玻璃盖玻片上,并使用共聚焦显微镜进行成像(图5)。在移植后12小时(hpt),我们观察到一个成功移植的供体神经元(图5A)。可通过细胞位于宿主迷走神经运动核前部区域的宿主迷走神经元之间来确认其位置正确;此外,该细胞形态完整且健康,表现为延伸出数个短的神经突起(图5A)。在移植后2天(dpt),我们再次确认单个神经元已成功移植至宿主核团的正确位置(图5B)。此时,我们观察到该神经元已向第4咽弓延伸出新的轴突(图5B)。直接观察也可揭示实验失败的情况。在此示例中,我们观察到一个移植后2天的宿主,其体内未见供体神经元;仅可见一个小的绿色斑点,可能是移植后死亡的供体神经元碎片(图5C)。尽管移植成功率会因操作者经验以及移植细胞的数量和类型而异,但我们对在3–4 dpf进行的迷走神经运动神经元移植实验的成功率(定义为在移植后2–3天时,宿主体内存活并延伸出轴突的神经元)达到66%(n = 453次移植)33。
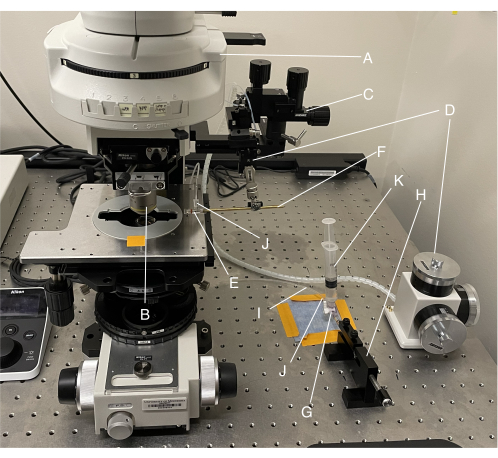
图1:移植装置的总体示意图。(A)直立式荧光显微镜;(B)40倍水浸物镜;(C)粗调微操纵器;(D)微调微操纵器;(E)微电极夹持器;(F)电极手柄;(G)三通旋塞阀;(H)微量注射泵;(I)聚乙烯管;(J)色谱适配器;(K)10 mL 储液注射器。请点击此处查看此图的放大版本。
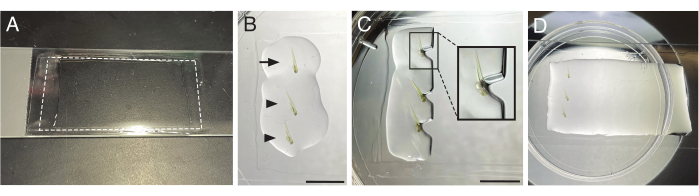
图 2:用于移植的动物固定方法。(A)一块3英寸×1英寸的磨砂玻璃载玻片,用透明指甲油在表面绘制出矩形轮廓(虚线所示)。(B)供体(箭头)和受体(箭头所指)动物被固定在琼脂糖液滴中,垂直排列,移植靶位(后脑)朝向右侧。(C)琼脂糖的右侧边缘及部分楔形区域被切除,以暴露移植靶位。插图:方框区域的放大图。(D)移植载玻片中充满含有青霉素-链霉素和三卡因的林格氏溶液。比例尺 = 5 mm。请点击此处查看该图的放大版本。
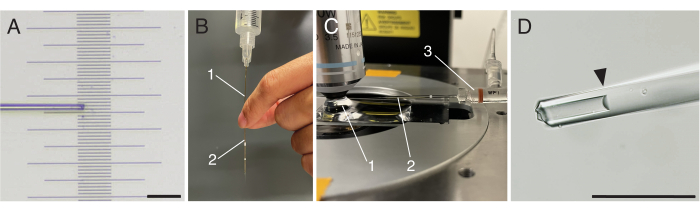
图3:移植针的制备。(A)置于载物台测微尺上方的断裂移植针。(B)将移液管填充器(1)插入移植针(2)中,以矿物油填充针管。(C)已准备好的移植载玻片及针头放置于移植显微镜上。1:40倍浸入式物镜与浸没载玻片之间的水弯月面;2:移植针;3:微电极夹持器。(D)断裂移植针尖端在40倍放大倍数下通过移植显微镜观察,可见稳定的油弯月面(箭头所示)。比例尺 = 100 µm 请点击此处查看该图的放大版本。
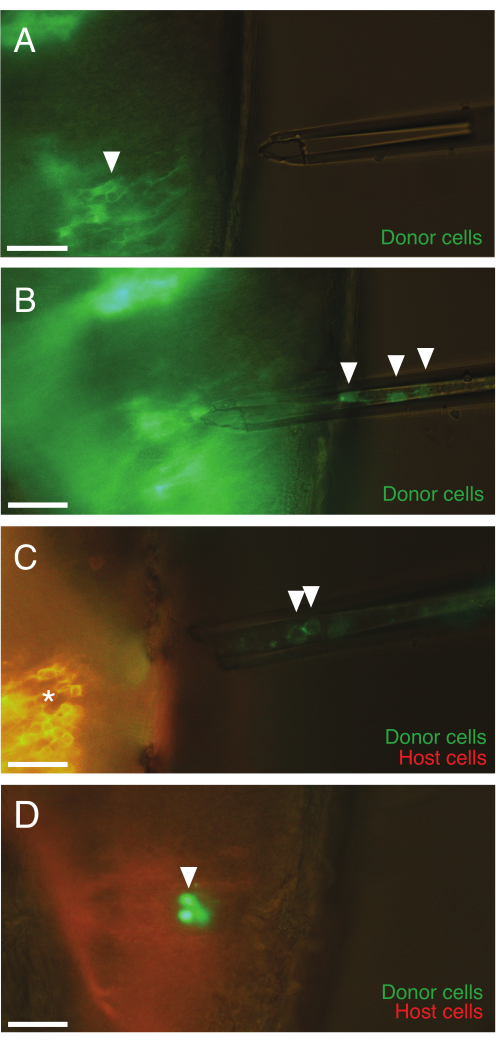
图 4:显微镜下的移植过程。(A)针头位于供体动物外部,对准迷走神经运动神经元(绿色,箭头)。(B)针头已插入供体动物内部,吸取了荧光标记的供体神经元(箭头)。(C)针头内含有多个供体神经元(箭头),位于受体动物外部,对准受体前部的迷走神经运动神经元(红色,星号)。(D)移植完成后,针头已撤出。一群表达 GFP 的移植供体神经元(箭头)已被注入受体体内。比例尺 = 30 µm 请点击此处查看该图的放大版本。
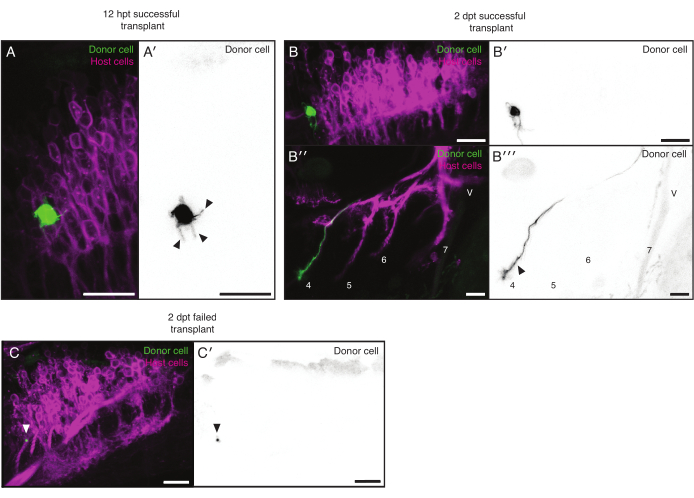
图 5:代表性结果。(A,B)成功的移植。(A)12 hpt 受体迷走神经运动核(紫色)的前部区域,其中包含一个供体神经元(绿色,A' 中为黑色)。该供体神经元已延伸出多个神经突(A' 中箭头所示)。(B)2 dpt 受体的迷走神经运动核(B-B')和咽部轴突分支(B''-B''',轴突分支已标注,紫色),其中包含一个供体神经元(绿色,B'、B''' 中为黑色)。该供体神经元已延伸出一条新的轴突至第4分支(箭头所示)。图 5A、B 来自不同的动物。(C)不成功的移植。 2 dpt 受体的迷走神经运动核(紫色),未见供体神经元;仅可见一小点绿色信号(C' 中为黑色),可能代表一个死亡供体神经元的残片(箭头所示)。比例尺 = 20 µm。缩写:dpt = 移植后天数;hpt = 移植后小时数。请点击此处查看此图的放大版本。
讨论
一百多年来,发育与再生生物学一直依赖移植实验来研究细胞信号传导和细胞命运决定的原理。斑马鱼模型已经代表了遗传学与移植方法的有力结合。在囊胚期和原肠胚期进行移植以产生嵌合体动物是常见的做法,但其可解决的科学问题类型有限。尽管已有报道分别在16-18小时(hpf)和30-33小时(hpf)进行胚胎脊髓运动神经元和视网膜神经节细胞的移植方法26,27,28,但晚期阶段的移植仍较为罕见。受这些前期工作的启发,本研究进一步增强了斑马鱼移植技术的应用能力,提出了一种适用于晚期胚胎和幼体阶段的移植方法,为在再生研究中应用该技术开辟了新途径,并整合了现代荧光转基因技术,以增强细胞的标记、转移和长期追踪效果。
本方案为移植多种不同分化阶段和年龄的细胞提供了新的机遇,包括在再生背景下的应用。例如,通过移植已分化的神经元,可用于研究信号动态如何通过改变神经元发育的空间和时间环境来影响其细胞身份32;用于研究神经元决定的时间机制26;作为损伤轴突并以单细胞分辨率追踪其再生过程的手段33;通过突变型至野生型的移植,研究受体在轴突再生过程中的细胞自主性作用33;以及研究靶标记忆在再生性轴突导向中的作用33。尽管目前我们的研究重点集中在神经元移植,但我们并未发现神经元具有任何使其特别适用于该方法的独特属性;相反,我们认为该方法可广泛适用于多种细胞类型。我们希望并预期研究人员将创造性地利用这一技术,在多种背景下探究发育与再生的动态过程。
本方案中的关键考虑因素包括细胞标记的选择、细胞对移植的适用性以及组织的可及性。明亮、稳定且永久的荧光标记对于供体细胞至关重要,有助于移植操作以及后续的追踪。可使用注射染料或转基因方法,但转基因标记通常更持久,并且对目标细胞更具特异性。抗光漂白能力也有助于延长进行移植操作的时间。供体细胞必须足够松散地贴附,并具有合适的形态,以便在不造成过度损伤的情况下,从周围组织或细胞外基质中被吸入针头。针对不同细胞类型可进行多种调整,包括调节针头孔径,其尺寸应略大于目标细胞的直径;在固定动物时适当调整其体位,以方便接近目标细胞;以及优化所需的吸力或物理扰动程度,以松动并吸起细胞。随着动物年龄增长,某些组织可能在视觉上和/或物理上变得难以接近,尽管目前尚无明确的年龄限制。例如,颅骨最终可能会限制对神经元的接触。可能的改进措施包括使用非色素型动物以更清晰地观察内部组织,或进行初步的小切口、调整微毛细管的厚度,或改变拉制针头的形状,以利于针头进入。
该方案的局限性包括某些类型和年龄的细胞不适合移植(如上所述),以及在移植过程中难以维持组织水平的结构。由于该操作要求在取出过程中将单个细胞从其周围环境中解离,细胞间的相互作用以及更高层次的结构将会丧失。在胚胎发生期间即已具备功能的先天免疫系统,可能会对移植部位的组织损伤或死亡细胞及碎片的存在产生反应,从而影响供体细胞的存活37,38。在较晚阶段,供体细胞还可能被适应性免疫系统排斥,后者在受精后3至6周开始具备功能39,40。通过将细胞移植到缺乏适应性或先天免疫系统的宿主体内,可避免这一问题41,42,43,44。
该实验方案中可能需要排查的潜在困难包括以下几点:首先,在抽吸和加压过程中,针头内的物质应平稳且灵敏地移动。若出现跳跃式或不一致的运动,可能是由于液压管路中存在气泡或针头部分堵塞所致;因此,在安装过程中应特别注意彻底清除针头和液压管路中的所有气泡。如果发现气泡,应使用粗调显微操作器将针头退回至装载位置,从持针器上取下针头,用矿物油冲洗针头和管路,然后重新组装。为减少针头堵塞,应避免造成锯齿状的针尖断裂。有时可通过将矿物油从针尖推出以冲出堵塞物,或完全撤回后再重新插入针头至肾小管穿刺位点(RPT)来解决堵塞问题;否则,应更换新针头。其次,在细胞脱离过程中可能会遇到困难。将针尖以一定角度折断形成斜面、在抽吸过程中来回移动针头,以及调节抽吸强度,均有助于松动细胞使其从组织上脱离。也可使用微型研磨器制备具有特定开口尺寸和角度的斜面针头36。最后,细胞在取出过程中可能受到损伤。严重受损的细胞会失去原有形态,在注射针内表现为小碎片或无定形的荧光团块。移植后细胞无法存活也可能是损伤的表现,可通过宿主体内缺乏荧光标记细胞的现象轻易检测到。若反复出现细胞损伤,可尝试增大针头内径,并限制施加的抽吸力度以降低剪切力。部分堵塞的针头也可能增加剪切力,从而导致细胞损伤。
披露
作者声明无利益冲突。
致谢
感谢Cecilia Moens在斑马鱼移植技术方面的培训;感谢Marc Tye在鱼类饲养方面的出色工作;感谢Emma Carlson对稿件提出的反馈意见。本研究工作由美国国立卫生研究院(NIH)资助,项目编号NS121595,授予A.J.I.。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 10 mL "储液注射器" | Fisher Scientific | 14-955-459 | |
| 150 mL 一次性真空滤器,0.2 µm,PES | Corning | 431153 | |
| 20 x 12 mm 加热模块 | Corning | 480122 | |
| 三通旋塞阀 | Braun Medical Inc. | 455991 | |
| 3 x 1 磨砂载玻片 | VWR | 48312-004 | |
| 40x 水浸物镜 | Nikon | MRD07420 | |
| 二水合氯化钙 | Sigma-Aldrich | C3306 | |
| 粗调操纵器 | Narishige | MN-4 | |
| 定制微量注射泵 | University of Oregon | N/A | 由俄勒冈大学机械车间制造(tsa.uoregon@gmail.com)。以下列出一种商用替代产品。 |
| Dumont #5 镊子 | Fine Science Tools | 1129500 | |
| Eclipse FN1 "移植显微镜" | Nikon | N/A | |
| 电极夹持器 | World Precision Instruments | 5444 | |
| Feather 无菌手术刀片,#11 | VWR | 21899-530 | |
| 精细显微操纵器,三轴油压式 | Narishige | MMO-203 | |
| HEPES,pH 7.2 | Sigma-Aldrich | H3375-100G | |
| 高精度 #3 型手术刀柄 | Fisher Scientific | 12-000-163 | |
| Kimble 一次性硼硅酸盐巴斯德移液管,宽口,5.75 英寸 | DWK Life Sciences | 63A53WT | |
| KIMBLE 色谱适配器 | DWK Life Sciences | 420408-0000 | |
| Kimwipes 擦拭纸 | Kimberly-Clark Professional | 34120 | |
| 轻质矿物油 | Sigma-Aldrich | M3516-1L | |
| LSE 数字干浴加热器,单模块,120 V | Corning | 6875SB | |
| 手动微量注射泵 | World Precision Instruments | MMP | 定制微量注射泵的商用替代品 |
| 微电极夹 | World Precision Instruments | MPH310 | |
| MicroFil 移液管填充器 | World Precision Instruments | MF28G67-5 | |
| 指甲油 | Electron Microscopy Sciences | 72180 | |
| 无核酸酶水 | VWR | 82007-334 | |
| P-97 Flaming/Brown 型微电极拉制仪 | Sutter Instruments | P-97 | |
| 青霉素-链霉素 | Sigma-Aldrich | p4458-100ML | 每毫升含 5,000 单位青霉素和 5 mg 链霉素 |
| 10 mL 移液管泵 | Bel-Art | 37898-0000 | |
| 氯化钾 | Sigma-Aldrich | P3911 | |
| 专业强力胶 | Loctite | LOC1365882 | |
| 圆底聚苯乙烯试管 | Falcon | 352054 | |
| 氯化钠 | Sigma-Aldrich | S9888 | |
| 载物台测微尺 | Meiji Techno America | MA285 | |
| 无针注射器,50 mL | BD Medical | 309635 | |
| 三卡因甲磺酸盐 | Syndel USA | SYNCMGAUS03 | |
| Trilene XL 光滑铸造钓鱼线 | Berkley | XLFS6-15 | |
| 聚乙烯管,No. 205 | BD Medical | 427445 | |
| UltraPure 低熔点琼脂糖 | Invitrogen | 16520050 | |
| Wiretrol II 校准微量移液器 | Drummond | 50002010 |
参考文献
- Solini, G. E., Dong, C., Saha, M. Embryonic transplantation experiments: Past, present, and future. Trends Dev Biol. 10, 13-30 (2017).
- Gilbert, S. F. A Conceptual History of Modern Embryology. , Springer. New York, NY. (1991).
- Spemann, H., Mangold, H. Induction of embryonic primordia by implantation of organizers from a different species. 1923. Int J Dev Biol. 45 (1), 13-38 (2001).
- Kretzschmar, K., Watt, F. M. Lineage Tracing. Cell. 148 (1), 33-45 (2012).
- Gansner, J. M., Dang, M., Ammerman, M., Zon, L. I. Chapter 22 - Transplantation in zebrafish. Methods in Cell Biol. 138, 629-647 (2017).
- Le Douarin, N. Details of the interphase nucleus in Japanese quail (Coturnix coturnix japonica). Bull Biol Fr Belg. 103 (3), 435-452 (1969).
- Ho, R. K. Cell movements and cell fate during zebrafish gastrulation. Dev Suppl. , 65-73 (1992).
- Le Douarin, N. M. Developmental patterning deciphered in avian chimeras. Development, Growth & Differentiation. 50, S11-S28 (2008).
- Wagner, D. E., Wang, I. E., Reddien, P. W. Clonogenic neoblasts are pluripotent adult stem cells that underlie planarian regeneration. Science. 332 (6031), 811-816 (2011).
- Balaban, E., Teillet, M. A., Le Douarin, N. Application of the quail-chick chimera system to the study of brain development and behavior. Science. 241 (4871), 1339-1342 (1988).
- Carmany-Rampey, A., Moens, C. B. Modern mosaic analysis in the zebrafish. Methods. 39 (3), 228-238 (2006).
- Kragl, M., et al. Cells keep a memory of their tissue origin during axolotl limb regeneration. Nature. 460 (7251), 60-65 (2009).
- Rojo-Laguna, J. I., Garcia-Cabot, S., Saló, E. Tissue transplantation in planarians: A useful tool for molecular analysis of pattern formation. Semin Cell Dev Biol. 87, 116-124 (2019).
- Tanaka, E. M. The molecular and cellular choreography of appendage regeneration. Cell. 165 (7), 1598-1608 (2016).
- Hu, Y., et al. Muscles are barely required for the patterning and cell dynamics in axolotl limb regeneration. Front Genet. 13, 1036641(2022).
- Wells, K. M., Kelley, K., Baumel, M., Vieira, W. A., McCusker, C. D. Neural control of growth and size in the axolotl limb regenerate. Elife. 10, e68584(2021).
- Otsuki, L., Tanaka, E. M. Positional memory in vertebrate regeneration: a century's insights from the salamander limb. Cold Spring Harb Perspect Biol. 14 (6), e040899(2022).
- de Abreu, M. S., et al. Zebrafish as a model of neurodevelopmental disorders. Neuroscience. 445, 3-11 (2020).
- Alper, S. R., Dorsky, R. I. Unique advantages of zebrafish larvae as a model for spinal cord regeneration. Front Mol Neurosci. 15, 983336(2022).
- Blader, P., Strähle, U. Zebrafish developmental genetics and central nervous system development. Hum Mol Genet. 9 (6), 945-951 (2000).
- Kemp, H. A., Carmany-Rampey, A., Moens, C. Generating chimeric zebrafish embryos by transplantation. J Vis Exp. (29), e1394(2009).
- Boulanger-Weill, J., et al. Functional interactions between newborn and mature neurons leading to integration into established neuronal circuits. Curr Biol. 27 (12), 1707-1720 (2017).
- Dong, J., Stuart, G. W. Transgene manipulation in zebrafish by using recombinases. Methods Cell Biol. 77, 363-379 (2004).
- Kawakami, K., Shima, A., Kawakami, N. Identification of a functional transposase of the Tol2 element, an Ac-like element from the Japanese medaka fish, and its transposition in the zebrafish germ lineage. Proc Natl Acad Sci U S A. 97 (21), 11403-11408 (2000).
- Hwang, W. Y., et al. Efficient genome editing in zebrafish using a CRISPR-Cas system. Nat Biotechnol. 31 (3), 227-229 (2013).
- Elsen, J. S. Determination of primary motoneuron identity in developing zebrafish embryos. Science. 252 (5005), 569-572 (1991).
- Elsen, J. Chapter 5 - Cellular methods: detailed procedure for transplanting single cells. The Zebrafish Book. , (2000).
- Poulain, F. E., Gaynes, J. A., Stacher Hörndli, C., Law, M. -Y., Chien, C. -B. Analyzing retinal axon guidance in zebrafish. Methods Cell Biol. 100, 3-26 (2010).
- Masai, I., et al. N-cadherin mediates retinal lamination, maintenance of forebrain compartments and patterning of retinal neurites. Development. 130 (11), 2479-2494 (2003).
- Raible, D. W., Elsen, J. S. Regulative interactions in zebrafish neural crest. Development. 122 (2), 501-507 (1996).
- White, R. M., et al. Transparent adult zebrafish as a tool for in vivo transplantation analysis. Cell Stem Cell. 2 (2), 183-189 (2008).
- Barsh, G. R., Isabella, A. J., Moens, C. B. Vagus motor neuron topographic map determined by parallel mechanisms of hox5 expression and time of axon initiation. Curr Biol. 27 (24), 3812-3825 (2017).
- Isabella, A. J., Stonick, J. A., Dubrulle, J., Moens, C. B. Intrinsic positional memory guides target-specific axon regeneration in the zebrafish vagus nerve. Development. 148 (18), 199706(2021).
- Westerfield, M. Chapter 1: General methods for zebrafish care. The Zebrafish Book. , (2000).
- Grant, P. K., Moens, C. B. The neuroepithelial basement membrane serves as a boundary and a substrate for neuron migration in the zebrafish hindbrain. Neural Dev. 5 (1), 9(2010).
- Konantz, J., Antos, C. L. Reverse genetic morpholino approach using cardiac ventricular injection to transfect multiple difficult-to-target tissues in the zebrafish larva. J Vis Exp. (88), e51595(2014).
- Novoa, B., Figueras, A. Zebrafish: model for the study of inflammation and the innate immune response to infectious diseases. Adv Exp Med Biol. 946, 253-275 (2012).
- Speirs, Z. C., et al. What can we learn about fish neutrophil and macrophage response to immune challenge from studies in zebrafish. Fish Shellfish Immunol. 148, 109490(2024).
- Trede, N. S., Langenau, D. M., Traver, D., Look, A. T., Zon, L. I. The use of zebrafish to understand immunity. Immunity. 20 (4), 367-379 (2004).
- Lam, S. H., Chua, H. L., Gong, Z., Lam, T. J., Sin, Y. M. Development and maturation of the immune system in zebrafish, Danio rerio: a gene expression profiling, in situ hybridization and immunological study. Dev Comp Immunol. 28 (1), 9-28 (2004).
- Wienholds, E., Schulte-Merker, S., Walderich, B., Plasterk, R. H. A. Target-selected inactivation of the zebrafish rag1 gene. Science. 297 (5578), 99-102 (2002).
- Petrie-Hanson, L., Hohn, C., Hanson, L. Characterization of rag1 mutant zebrafish leukocytes. BMC Immunol. 10, 8(2009).
- Roh-Johnson, M., et al. Macrophage-dependent cytoplasmic transfer during melanoma invasion in vivo. Dev Cell. 43 (5), 549-562 (2017).
- Bukrinsky, A., Griffin, K. J. P., Zhao, Y., Lin, S., Banerjee, U. Essential role of spi-1-like (spi-1l) in zebrafish myeloid cell differentiation. Blood. 113 (9), 2038-2046 (2009).
重印与许可
