用于研究可兴奋细胞的反应 体外该方案描述了利用基因工程构建的tet-on放电型HEK细胞这一简单可兴奋细胞模型,通过光学监测电穿孔引起的动作电位生成变化,以及跨膜电压的变化,并实现相关参数的自动提取。
本文内容
摘要
摘要
兴奋性细胞,例如 神经元和肌肉细胞可能成为基于电穿孔的快速新兴治疗技术的主要靶细胞。然而,即使在这些细胞并非主要靶点的治疗中,它们仍可能受到电脉冲的影响,从而引发不良副作用。因此,为了优化针对可兴奋与不可兴奋组织的电穿孔治疗,有必要研究电脉冲对可兴奋细胞、其离子通道及兴奋性的影响 体外为此,建立了一种光学监测方案,用于检测在基因工程构建的tet-on放电型HEK细胞这一简单可兴奋细胞模型中,因电穿孔引起动作电位生成变化的情况。通过使用一种荧光膜电位染料,在荧光显微镜下监测跨膜电压的变化,并利用MATLAB应用程序自动提取细胞反应的相关参数。由此,可研究不同电脉冲下可兴奋细胞的响应特性,以及兴奋性与电穿孔之间的相互作用 能够被高效地评估。
引言
在电穿孔过程中,高电压电脉冲会导致细胞质膜对原本不易通透的分子的通透性增加1。基于电穿孔的技术目前已被广泛应用于医学2、生物技术3和食品技术4等领域。
兴奋性细胞,例如 神经元和肌肉细胞是心脏、大脑及骨骼肌中快速发展的基于电穿孔治疗技术的主要靶细胞5此外,即使在这些细胞并非主要靶点的治疗中,它们也可能受到电脉冲的影响,从而引发疼痛、肌肉抽搐和神经损伤等不良副作用6即,电脉冲可引起可兴奋细胞的电刺激:激活电压门控离子通道并触发动作电位(AP)。然而,在较高电场下,细胞的质膜会发生通透化,导致离子电流通过膜上的孔道或缺陷额外增加7这种额外的离子电流在兴奋与电穿孔之间的复杂相互作用中影响细胞的兴奋性。因此,为了优化基于电穿孔的可兴奋与不可兴奋组织的治疗,有必要研究电脉冲对可兴奋细胞、其离子通道及兴奋性的影响。 体外.
在最近的一项研究中8,我们探索了Cohen等人开发的基因工程人胚胎肾(HEK)细胞9,10,作为研究可兴奋细胞电穿孔的有力工具。在这些原本不具备兴奋性的细胞中,表达了实现兴奋性所需的最少数量的钠离子和钾离子通道(NaV1.5 和 Kir2.1)。这些细胞中 Kir2.1 的表达由多西环素诱导的 tet-on 系统控制,从而可建立两种细胞亚型:具有兴奋性并能产生动作电位的 S-HEK 细胞(含有 NaV1.5 和 Kir2.1),以及无兴奋性且不产生动作电位的 NS-HEK 细胞(仅含 NaV1.5 通道)。这使我们能够比较电脉冲对同种细胞的可兴奋与不可兴奋亚型所产生的影响。与分离的原代可兴奋细胞、由胚胎干细胞或诱导多能干细胞分化的可兴奋细胞,以及来源于可兴奋组织的细胞系相比,S-HEK 细胞具有多项优势:易于操作、培养和扩增,具有明确的钠离子和钾离子通道,并能产生稳定而显著的动作电位(AP)8。
我们设计了一种利用荧光膜电位染料监测不同强度电脉冲所引发的跨膜电压(TMV)变化的实验方案。通过该方法,可研究电穿孔对S-HEK细胞动作电位(AP)产生过程的影响,以及S-HEK和NS-HEK细胞中跨膜电压的其他变化。简言之,每隔2分钟对S-HEK或NS-HEK细胞施加一次持续100 µs的单次电脉冲,并在每次脉冲前后约3秒内记录荧光信号的相对变化。所施加的脉冲电压逐步升高,首先在细胞中诱发动作电位 ,随后在更高电场强度下引发电穿孔。两次脉冲之间设置2分钟的间隔,旨在尽量减少连续脉冲可能带来的累积效应,同时保证实验时长足够短,以避免细胞状态恶化。图像处理通过定制的MATLAB应用程序实现自动化,用于提取膜电位染料荧光响应的相关参数,从而评估S-HEK和NS-HEK 细胞中跨膜电压的变化(包括动作电位以及由电穿孔引起的持续去极化) 。
方案
1. 试剂准备与细胞培养
- 通过在高糖 Dulbecco 改良 Eagle 培养基中添加 10% 胎牛血清、2 mM 谷氨酰胺、青霉素-链霉素(青霉素 100 U/mL,链霉素 100 µg/mL)、2 µg/mL 嘌呤霉素、5 µg/mL 杀稻瘟菌素以及 200 µg/mL 遗传霉素,配制细胞培养基。
- 配制磷酸盐缓冲液(PBS),其中含 137 mM NaCl、2.7 mM KCl、10 mM Na2HPO4 和 1.8 mM KH2PO4,pH 7.4。使用孔径为 0.22 µm 的无菌滤膜过滤该溶液。
- 配制 Tyrode 溶液,其中含 2 mM KCl、125 mM NaCl、2 mM CaCl2、1 mM MgCl2、10 mM HEPES、30 mM 葡萄糖,pH 7.3。另配制低钾 Tyrode 溶液,其中含 0.5 mM KCl、126.5 mM NaCl、2 mM CaCl2、1 mM MgCl2、10 mM HEPES、30 mM 葡萄糖,pH 7.3。将两种溶液均通过孔径为 0.22 µm 的无菌滤膜过滤。
- 在含有 5 mg 多聚-L-赖氨酸的小瓶中加入 5 mL PBS,配制 1 mg/mL 多聚-L-赖氨酸储存液。
- 将 2 mg/mL 多西环素储存液溶于蒸馏水中,并使用孔径为 0.22 µm 的无菌滤膜过滤。
- 将 25 µL 纯乙醇加入含有 100 nM - 73 µg 染料的试管中,配制 4 mM 电位敏感性染料 ElectroFluor630 储存液。
- 按照先前所述方法8,在 6 mL 细胞培养基中于 T25 培养瓶中培养基因工程改造的 HEK 细胞。培养基成分对光敏感,因此需避光保存(用铝箔包裹培养基瓶),并在低光照条件下进行传代操作。
- 每 3–4 天传代一次,将 3 × 10⁵ 或 5 × 10⁵ 个细胞接种至新的 T25 培养瓶中。使用血细胞计数板计数细胞。将主培养瓶中的细胞作为非兴奋性 NS-HEK 细胞维持培养,不添加多西环素,因为这些细胞无法耐受持续的 Kir2.1 表达。实验中使用传代次数低于 14 的细胞。
2. 样品制备
- 多聚-L-赖氨酸包被盖玻片腔室载玻片
- 用移液器向2孔盖玻片腔室载玻片的一个孔中加入1 mL PBS,再加入10 µL无菌的1 mg/mL多聚-L-赖氨酸溶液,并用移液器充分混匀。
- 在超净台中室温下孵育1.5小时。孵育结束后,直接去除含多聚-L-赖氨酸的PBS,无需进一步洗涤。
- 接种细胞
- 在1.5 mL离心管中,用培养基将多西环素储备液稀释至1:10。每孔需要30 µL的1:10多西环素稀释液(含3 µL多西环素储备液和27 µL培养基),根据实验孔总数计算所需总体积并进行配制。
- 吸除T25培养瓶中的培养基,加入2.5 mL胰蛋白酶-EDTA溶液,在37 °C、CO2培养箱中消化2分钟。
- 加入2.5 mL新鲜培养基,通过轻柔吹打使细胞从瓶壁脱落,充分混匀制成细胞悬液。
- 使用血细胞计数板对细胞进行计数,确定细胞悬液中的细胞密度。
- 根据所需细胞数量计算胰酶消化后细胞悬液的接种体积。对于2天培养,每孔接种2.5 × 10⁵个细胞;对于3天培养,每孔接种1 × 10⁵个细胞。必要时可调整具体细胞数量。
- 从1470 µL中减去上述计算所得的细胞悬液体积,得到所需培养基的体积。剩余30 µL用于加入1:10的多西环素稀释液。每孔总液体体积为1500 µL(包含细胞、多西环素和培养基)。
- 对于需诱导产生兴奋性S-HEK细胞的样品,将计算好的培养基体积和细胞悬液加入一个孔中,再加入30 µL的1:10多西环素稀释液。由于实验耗时较长(约40分钟),仅使用双孔腔室中的一个孔。在将腔室放入CO2培养箱前,轻柔吹打混匀。
- 对于非兴奋性NS-HEK细胞样品,将计算好的培养基体积加入孔中,再加入相当于S-HEK细胞所需细胞悬液体积90%的细胞悬液,且不添加多西环素。NS-HEK细胞的生长速度略快于S-HEK细胞。
- 将腔室置于37 °C、5% CO2培养箱中孵育2–3天,以进行后续实验。对于含多西环素的样品,此孵育时间足以使细胞获得兴奋性。
- 细胞标记
- 实验前,取3 µL膜电位染料储备液加入1.5 mL离心管中,将开口管置于超净台中室温放置,使乙醇挥发、染料干燥(约15分钟)。随后加入997 µL冷培养基(4 °C冰箱取出),溶解染料至终浓度为12 µM。
- 吸除孔中培养基,向细胞中加入1 mL膜电位染料溶液,置于4 °C冰箱中孵育20分钟。
- 移除膜电位染料溶液,并将其保存于离心管中以便后续重复使用(可在1天内用于最多六次连续实验)。
- 用Tyrode溶液轻柔洗涤细胞3次,最后一次洗涤后,向孔中加入1 mL低钾Tyrode溶液。
3. 电刺激与电穿孔
- 使用显微镜系统发出的TTL信号触发脉冲发生器,以实现脉冲传递与图像采集的同步。为产生高压脉冲,可使用定制的脉冲发生器11,或任何能够通过TTL信号进行外部触发的脉冲发生器。
注意:在本实验配置中,使用LAS X软件进行图像采集,该软件可设置为在延时成像过程中预设时间点发送TTL信号。 - 将两根直径为0.8 mm、内边缘间距为5 mm的平行Pt/Ir金属丝电极置于腔室底部,并将腔室固定在显微镜下。
- 将电极连接至脉冲发生器。使用电压探头和电流探头将脉冲发生器的输出端连接至示波器,以便验证实验过程中脉冲是否正确传递。
- 在明场下对细胞进行聚焦。对大致位于两电极中间区域的细胞进行成像。
- 使用40倍物镜以延时模式开始第一次荧光图像采集,记录整个视野范围内的荧光信号。相机应具备足够快的采集速度,以清晰捕捉动作电位的时间进程(理想情况下高于25帧/秒)。
- 以延时模式采集80幅图像,采集速率至少为25帧/秒,以分辨动作电位的实时变化过程。图像采集总时长约3 秒。在图像采集期间,使用635 nm的激发波长照射细胞,曝光时间为10 ms,并在约700 nm处检测发射光。在此次采集过程中不施加任何脉冲——该次采集将用于校正后续采集中的染料光漂白效应。此次采集完成后,等待2分钟。
注意:本实验采用27.8帧/秒(即36 ms周期),该周期指延时记录中第一幅图像采集开始至下一幅图像采集开始的时间间隔。
- 以延时模式采集80幅图像,采集速率至少为25帧/秒,以分辨动作电位的实时变化过程。图像采集总时长约3 秒。在图像采集期间,使用635 nm的激发波长照射细胞,曝光时间为10 ms,并在约700 nm处检测发射光。在此次采集过程中不施加任何脉冲——该次采集将用于校正后续采集中的染料光漂白效应。此次采集完成后,等待2分钟。
- 每隔2分钟,按照步骤3.5的方式记录一次延时图像。对于这些采集,在第10幅图像采集时刻(即324 ms)施加一个持续时间为100 µs的单脉冲。依次使用以下脉冲电压进行图像采集:63 V、75 V、88 V、100 V、125 V、150 V、175 V和200 V。根据施加电压与电极间距之比估算细胞所处的电场强度(E = 126、150、176、200、250、300、350和400 V/cm)。
注意:在较低电场强度下,脉冲将引发动作电位;而在较高电场强度下,脉冲将引发电穿孔,表现为持续性去极化。每批细胞样本的实验总时长约为40分钟(其中20分钟用于标记,20分钟用于显微成像)。
4. 数据分析
- 将延时录像导出为 TIFF 格式。
- 将单次实验(一个细胞样本)中所有施加电压的延时录像放入同一个文件夹中。将延时录像重命名为 MATLAB 程序可识别的电场 E 形式:Vcm(例如,126 V/cm 对应 126Vcm)。文件名其余部分可任意设定。对于实验开始时未施加脉冲的采集数据,使用 000Vcm 进行重命名。延时录像文件名示例:2022_1_20 1DOX 000Vcm、2022_1_20 1DOX 126Vcm、2022_1_20 1DOX 150Vcm 等。
- 打开应用程序,该程序可从
https://github.com/bor-kos/fluorescenceActionPotential 下载。点击 选择数据文件夹,以选择包含单次实验延时录像的文件夹。 - 选择用于后续数据分析的像素。为此,使用两个滑块分别设定膜结构清晰成像(紫色)的低阈值,以及从分析中排除碎片(高荧光大斑点)的高阈值(绿色)。
- 选择分析数据。在“分析”选项卡中,将显示提取参数的表格。表格右侧会显示每种电场强度 E 下的相对荧光随时间变化的曲线图。通过表格左上方的下拉菜单选择特定 E 对应的曲线图。
- 检查所有曲线图,并在出现错误峰检测时进行手动校正。在“分析”选项卡底部选择清除 AUTO 峰,以清除自动检测到的峰。点击曲线图,手动确定新的峰值时间点。
- 在“分析”选项卡底部选择重新运行 AUTO 峰检测,以再次执行自动峰检测。提取的参数将根据新确定的峰进行调整。
- 在“分析”选项卡右下角选择导出数据,将数据导出至同一文件夹,导出格式包括 .mat 文件、电子表格文件以及每种 E 对应的 PNG 图像。
结果
可兴奋细胞中TMV的变化 体外 通过电脉冲刺激后,可利用本方案对荧光信号进行光学监测,并通过分析荧光信号以提取其相关参数。
实验装置如图1A所示。实验中使用的典型100 µs电脉冲信号如图1B所示。置于显微镜下观察室中的细胞通常呈现如图1C(明场图像)和图1D(荧光图像)所示的形态。我们进行一项实验,每隔2 min对同一组细胞施加一次电压逐渐升高的电脉冲。需要注意的是,2 min的脉冲间隔时间可能不足以使细胞膜完全重新封闭并恢复,尤其是在使用最高幅度脉冲时,该条件下电穿孔效应显著。因此,可能会出现脉冲的累积效应。为避免此类累积效应,可延长脉冲间延迟时间,但这会减少可测试的脉冲幅度数量,同时需避免细胞在显微镜下停留过久。
实验中采集荧光图像后,使用自定义的 MATLAB 应用程序进行分析。首先确定像素阈值(图 2A);通过调整低阈值,可清晰显示细胞周围膜结构(紫色),而通过调整高阈值,可去除碎片信号(绿色)。随后,该程序计算每次递送的连续脉冲对应的所有阈值像素的平均荧光强度,从而获得荧光相对变化 F/F0 的时间依赖性信号。通过减去对照组时间序列记录中未施加脉冲时 F 线性下降的斜率,对信号进行染料光漂白校正(图 2B)。校正信号后,以应用内表格和校正后荧光信号图的形式提取响应参数(图 2C)。在极少数情况下,算法可能未能检测到明显的峰值,或将伪噪声信号误判为阳性信号。针对这些情况,用户可手动选择荧光信号中的相应点作为峰值,或删除被错误检测的假峰值(图 2D——删除在施加电脉冲前异常检测到的小峰值)。
利用 MATLAB 应用程序,我们可以获得烟草花叶病毒(TMV)在可兴奋的 S-HEK 细胞(图 3A)和不可兴奋的 NS-HEK 细胞(图 3B)中对电脉冲响应的图像。提取的响应参数如下(表 1):峰的数量(NoPeaks)、平均峰间时间(当检测到多个峰时,MPPT)、最大响应(MR)、到达首个峰的时间(TtFP),以及从峰到达 25%、50%、75% 和 90% 恢复所需的时间(分别为 T25、T50、T75、T90)。这些参数可用于评估对不同电脉冲的响应(例如,确定不同电场强度 E 的电脉冲所触发的峰数量,图 3C),以及兴奋性与电穿孔之间的相互作用。
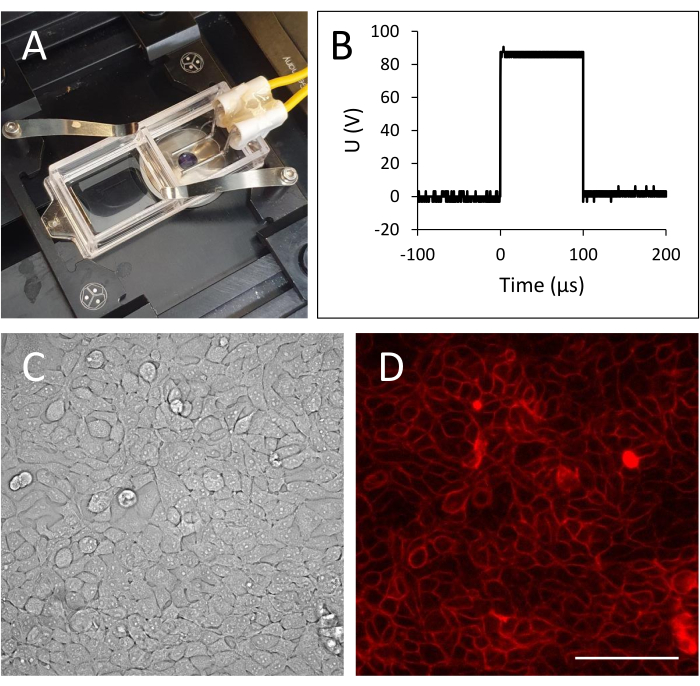
图1:实验装置、波形及S-HEK细胞。(A)显微镜载物台上腔室的图像。(B)本研究中所用脉冲波形示例(电压(U)随时间变化)。(C, D)S-HEK细胞图像((C):明场,(D):荧光),比例尺:100 µm。请点击此处查看该图的放大版本。
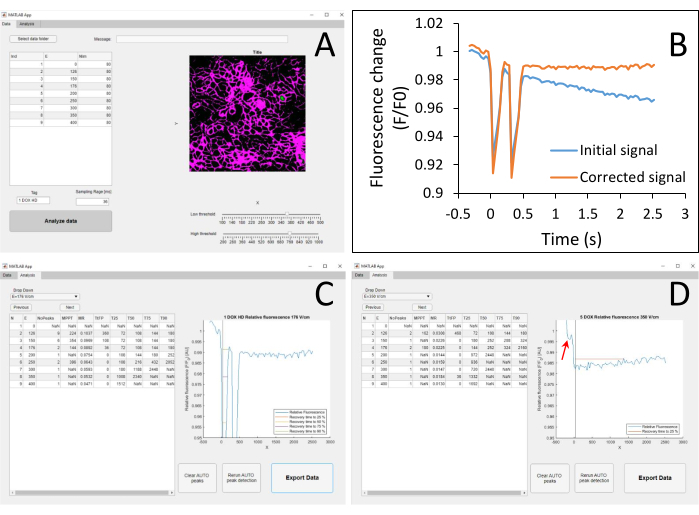
图2:数据分析应用。(A)应用程序界面图像——阈值设定。(B)原始与校正后荧光变化信号的图谱。(C)应用程序界面图像——提取的数据。(D)峰检测的手动校正(去除电脉冲施加前异常检测到的小峰,以红色箭头标示)。请点击此处查看该图的放大版本。
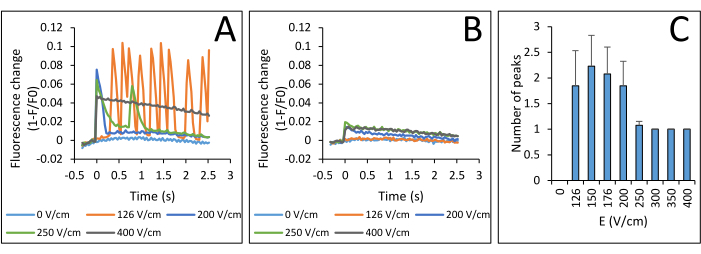
图3:代表性结果。(A, B)使用不同幅度的100 µs电脉冲在(A)可兴奋的S-HEK细胞和(B)不可兴奋的NS-HEK细胞中触发TMV变化,结果来自代表性实验。为清晰起见,仅显示对施加脉冲序列中选定脉冲的响应。(C)由不同幅度的100 µs脉冲触发的TMV响应参数:示例显示峰值数量。结果以平均值±标准误表示,实验次数:N = 13。请点击此处查看该图的放大版本。
| 序号 | 电场强度 (V/cm) | 峰数量 (-) | 最大功率点跟踪时间 (ms) | 归一化电阻 (-) | 达到最终电位时间 (ms) | 25% 上升时间 (ms) | 50% 上升时间 (ms) | 75% 上升时间 (ms) | 90% 上升时间 (ms) |
| 1 | 0 | ||||||||
| 2 | 126 | 9 | 224 | 0.104 | 360 | 72 | 108 | 144 | 180 |
| 3 | 150 | 6 | 354 | 0.097 | 108 | 72 | 108 | 144 | 180 |
| 4 | 176 | 2 | 144 | 0.089 | 36 | 72 | 108 | 144 | 180 |
| 5 | 200 | 1 | 0.075 | 0 | 108 | 144 | 180 | 252 | |
| 6 | 250 | 2 | 396 | 0.064 | 0 | 108 | 216 | 432 | 2052 |
| 7 | 300 | 1 | 0.059 | 0 | 180 | 1188 | 2448 | ||
| 8 | 350 | 1 | 0.053 | 0 | 1008 | 2340 | |||
| 9 | 400 | 1 | 0.047 | 0 | 1512 |
表1:由不同幅度的100 µs脉冲触发的烟草花叶病毒(TMV)反应参数。
讨论
S-HEK 细胞是一种具有明确钠离子通道 NaV1.5 和钾离子通道 Kir2.1 的简单可兴奋细胞模型9。这使我们能够深入研究可兴奋细胞对施加电脉冲的响应,并将实验数据与基于 S-HEK 细胞中表达通道的已知理论特性所建立的数学模型相联系。在我们之前的研究中8,我们从实验和理论两方面描述了这些细胞对持续时间为 100 µs、电场强度 E 逐渐增加的电脉冲的响应。在较低 E 条件下,S-HEK 细胞产生单个或多个动作电位;而在较高 E 条件下,动作电位持续时间延长,并转变为持续性去极化。由于这种持续性去极化在这些细胞的非兴奋性版本(NS-HEK)中也明显可见,因此被认为归因于电穿孔及其相关的非选择性离子电流增加。
使用荧光电位染料被证明是研究可兴奋细胞动作电位和电穿孔的一种非常有效的方法。与传统的电生理学方法(如膜片钳技术)相比,光学测量更加方便、节省时间,且不需要特殊的技术技能。此外,使用高压电脉冲不会干扰测量过程,而这一点在膜片钳测量中可能成为问题12。然而,该实验方案的主要缺点与染料本身的性质有关。由于染料会发生光漂白,所捕获的荧光信号需要进行校正。染料会自发扩散进入细胞,因此来自细胞膜的信号随时间逐渐减弱。基于这一原因,该染料适用于监测动作电位及其他跨膜电位的短期变化(在本实验中约为3秒)。由于该染料支持比率成像13,此类成像可避免部分染料扩散带来的问题,但代价是成像速度降低。在本实验配置下,比率成像速度过慢,无法准确捕捉动作电位的波形。此外,所测得的染料荧光变化仅能提供关于跨膜电位变化的定性信息;尽管如此,该染料可通过校准实现定量测量。
使用定制的 MATLAB 应用程序进行自动图像分析,使我们能够在短时间内分析大量数据,并高效提取烟草花叶病毒(TMV)响应的有价值特征。该应用程序被配置为捕获视野中所有细胞膜的荧光信号。这种方法提高了信噪比,但代价是丢失了关于 TMV 在单个细胞水平上变化的信息。 此外,相邻细胞的细胞膜难以区分。然而,HEK 细胞内源性表达间隙连接,使其在电学上相互连接。如先前研究中提出的数学模型所示8,由于细胞之间的电连接,视野内的细胞彼此足够接近,能够同时触发动作电位(AP)。此外,动作电位沿细胞单层以高速传播(根据 5 倍物镜放大率成像估算,速度约为 34 mm/s)8,9。考虑到视野的边长(约 0.33 mm),动作电位通过该距离所需时间约为 10 ms,短于我们的图像采集周期。因此,使用当前的放大倍数和记录速度无法观察到动作电位的传播效应。尽管如此,动作电位从电极传播到视野仍可能导致施加脉冲与捕获到的动作电位之间存在延迟8。
在先前的研究8以及本出版物中,描述了持续时间为100 µs的脉冲对兴奋性与电穿孔之间相互作用的影响。然而,本方案可进行调整,用于研究具有其他参数(如不同持续时间、电压、数量、重复频率或波形)的电脉冲,或用于其他可兴奋细胞。
披露
作者声明不存在利益冲突。
致谢
本工作由斯洛文尼亚研究与创新署(ARIS)在研究项目 P2-0249、基础设施项目 I0-0022 以及研究项目 J2-2503 框架下提供支持。部分工作由 ARIS 和卢布尔雅那大学通过初创研究项目资助提供支持。部分工作由欧洲联盟和 ARIS 通过 NextGenerationEU 及 NOO 资助,在项目 MN-0023 框架下提供支持。部分工作由欧洲联盟通过欧洲研究理事会(ERC)启动资助(编号 101115323 - REINCARNATION)和玛丽·斯克沃多夫斯卡-居里学者项目(编号 893077 - EPmIC)提供支持。然而,所表达的观点和意见仅为作者(们)的观点,不一定反映欧洲联盟或欧洲研究理事会的立场。欧洲联盟或资助机构均不对这些观点承担责任。作者感谢哈佛大学 Adam E. Cohen 团队慷慨提供 tet-on 可兴奋 HEK 细胞,以及 Duša Hodžić 在细胞培养实验室中的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1.5 mL 离心管 | Ratiolab | 5615000 | |
| 2孔Nunc Lab-Tek II腔室载玻片系统,#1.5盖玻片,德国产 | 赛默飞世尔科技 | 155379 | |
| ADP305 差分电压探头 | Teledyne LeCroy | ||
| AP015 电流探头 | Teledyne LeCroy | ||
| 杀稻瘟菌素 | 赛默飞世尔科技 | A1113903 | |
| CO2培养箱 | PHCbi | MCO-230AICUV | |
| 多西环素 | Sigma-Aldrich/Merck | D9891 | |
| 杜尔贝科’s 改良伊格尔’高糖生长培养基 | Sigma-Aldrich/Merck | D5671 | |
| ElectroFluor630 (Di-4-ANEQ(F)PTEA) | 电位探针 | 31795 | |
| 胎牛血清 | Sigma-Aldrich/Merck | F2442 | |
| 遗传霉素 | 赛默飞世尔科技 | 10131035 | |
| 谷氨酰胺 | Sigma-Aldrich/Merck | G7513 | |
| 层流罩 | Iskra Pio | MC 15-2 | |
| MATLAB | Mathworks | ||
| 青霉素–链霉素 | Sigma-Aldrich/Merck | P07681 | |
| 聚-L-赖氨酸氢溴酸盐 | Sigma-Aldrich/Merck | P9155-5MG | |
| 脉冲发生器 | 定制 | 参见参考文献11 | |
| 嘌呤霉素 | 赛默飞世尔科技 | A1113803 | |
| T25 25 cm²² 组织培养瓶 | TPP | 90026 | |
| Tet-on 诱导型HEK细胞脉冲式表达 | 美国典型培养物保藏中心 ATCC | CRL-3479 | |
| Thunder Imager Live Cell 系统用于荧光显微镜观察 | Leica Microsystems | ||
| 胰蛋白酶-EDTA 溶液 | Sigma-Aldrich/Merck | T3924 | |
| WavePro 7300A 示波器 | Teledyne LeCroy |
参考文献
- Kotnik, T., Rems, L., Tarek, M., Miklavčič, D. Membrane electroporation and electropermeabilization: Mechanisms and models. Ann Rev Biophys. 48 (1), 63-91 (2019).
- Yarmush, M. L., Golberg, A., Serša, G., Kotnik, T., Miklavčič, D. Electroporation-based technologies for medicine: principles, applications, and challenges. Ann Rev Biomed Eng. 16, 295-320 (2014).
- Kotnik, T., et al. Electroporation-based applications in biotechnology. Trend Biotechnol. 33 (8), 480-488 (2015).
- Mahnič-Kalamiza, S., Vorobiev, E., Miklavčič, D. Electroporation in food processing and biorefinery. J Memb Biol. 247 (12), 1279-1304 (2014).
- Reddy, V. Y., et al. Pulsed field or conventional thermal ablation for paroxysmal atrial fibrillation. New Engl J Med. 389 (18), 1660-1671 (2023).
- Cvetkoska, A., Maček-Lebar, A., Trdina, P., Miklavčič, D., Reberšek, M. Muscle contractions and pain sensation accompanying high-frequency electroporation pulses. Sci Rep. 12 (1), 8019(2022).
- Tung, L., Tovar, O., Neunlist, M., Jain, S. K., O'neill, R. J. Effects of strong electrical shock on cardiac muscle tissue. Ann New York Acad Sci. 720 (1), 160-175 (1994).
- Batista Napotnik, T., et al. Genetically engineered HEK cells as a valuable tool for studying electroporation in excitable cells. Sci Rep. 14 (1), 720(2024).
- McNamara, H. M., Zhang, H., Werley, C. A., Cohen, A. E. Optically controlled oscillators in an engineered bioelectric tissue. Phys Rev X. 6 (3), 031001(2016).
- Tian, H., et al. Video-based pooled screening yields improved far-red genetically encoded voltage indicators. Nat Methods. 20 (7), 1082-1094 (2023).
- Sweeney, D. C., et al. Quantification of cell membrane permeability induced by monopolar and high-frequency bipolar bursts of electrical pulses. Biochim Biophys Acta Biomembranes. 1858 (11), 2689-2698 (2016).
- Pakhomov, A. G., et al. Long-lasting plasma membrane permeabilization in mammalian cells by nanosecond pulsed electric field (nsPEF). Bioelectromagnetics. 28 (8), 655-663 (2007).
- Lee, P., et al. In vivo ratiometric optical mapping enables high-resolution cardiac electrophysiology in pig models. Cardiovasc Res. 115 (11), 1659-1671 (2019).
重印与许可
