本明确的实验方案描述了一种实时高通量显微镜技术,用于在体外可视化并定量人中性粒细胞胞外诱捕网(NET)的释放。in vitro 该可重复的方法可用于研究在不同NET形成诱导剂刺激下NET释放的特征和动力学过程,并可评估NET形成拮抗剂的药理学效应。
本文内容
摘要
摘要
中性粒细胞通过多种机制在先天免疫防御中发挥重要作用,其中包括以一种称为NETosis的过程释放中性粒细胞胞外诱捕网(NETs)。然而,在过去二十年中,人们逐渐认识到NETs在组织中的积聚参与了多种炎症性和自身免疫性疾病的病理生理过程。因此,针对NETosis拮抗剂的研发日益受到关注。与此同时,多种检测和分析NETosis的方法相继建立,这些方法各具优势与局限性,且存在变异性和缺乏标准化的问题。本文介绍一种基于实时显微镜的定量人源NET释放的方法,可实现对NETosis过程以及NET抑制作用的高通量研究。该方法采用基于表面积的半自动分析技术,能够识别NETs,并将其与未形成NET的活化中性粒细胞区分开来。我们证明,非生理性NETosis诱导剂钙离子载体(calcium ionophore)和佛波酯-12-肉豆蔻酸-13-乙酸盐(phorbol-12-myristate-13-acetate, PMA)可诱导释放具有不同特征和动力学行为的NETs。此外,我们还展示该方法可用于研究在疾病相关刺激物作用下的NET释放,包括免疫复合物、N-甲酰甲硫氨酰-亮氨酰-苯丙氨酸(fMLF)、单钠尿酸晶体和焦磷酸钙晶体。为说明该方法在研究NETosis拮抗剂中的实用性,我们采用了CIT-013——一种全球首创的靶向抑制NET释放的单克隆抗体。CIT-013靶向瓜氨酸化组蛋白H2A和H4,可高效抑制NET释放,其IC50为4.6 nM。相比之下,其他测试的抗组蛋白抗体则缺乏此类抑制NETosis的能力。综上所述,我们证明该实验方案能够实现对NETs特异性、可靠且可重复的高通量定量,从而促进对NET释放特征、动力学过程以及NETosis拮抗剂药理学性质的研究。
引言
中性粒细胞在血液中含量丰富,并在感染或炎症时迁移至组织。它们通过多种防御机制在固有免疫防御中发挥重要作用,以保护宿主免受微生物侵害。中性粒细胞可通过吞噬作用、脱颗粒、活性氧(ROS)生成以及通过一种称为 NETosis 的过程释放去浓缩的染色质——即中性粒细胞胞外诱捕网(neutrophil extracellular traps, NETs)来杀灭病原体。1NETs 是由染色质构成的胞外结构,其上结合有颗粒蛋白和钙卫蛋白等成分2,3,并在受到多种分子刺激时释放4NETosis 大致可分为两种主要途径:依赖 NADPH 氧化酶和不依赖 NADPH 氧化酶5,6,7此外,肽基精氨酸脱亚胺酶4(PAD4)介导的组蛋白N端尾部精氨酸瓜氨酸化与NETosis密切相关,并促进染色质去浓缩 最终导致去浓缩的染色质被释放到细胞外环境。
尽管中性粒细胞胞外诱捕网(NET)的释放参与病原体清除,但大量研究表明,异常且持续的NET释放与多种炎症性疾病(包括急性肺损伤)的发生发展相关8,类风湿关节炎(RA)9血管炎10,以及化脓性汗腺炎11. NETs 在疾病中的有害作用具有多面性,因为 NETs 具有促炎性,是自身抗原的来源,对周围组织具有细胞毒性,可触发免疫性血栓形成,并促进破骨细胞分化及骨侵蚀9,12,13. 小分子PAD4抑制剂对NETosis通路的药理学抑制表明,靶向NETosis的治疗药物在治疗由NET积聚驱动发病机制的疾病中具有潜在应用价值14. 我们并未靶向PAD4酶,而是采用了一种首创的抑制NETosis的人源化抗瓜氨酸化组蛋白单克隆抗体CIT-013,该抗体可特异性结合瓜氨酸化的组蛋白H2A和H415CIT-013 具有独特的双重作用机制,既能抑制 NET 释放,又能增强巨噬细胞介导的 NET 吞噬作用16. CIT-013及其前体分子在多种与NET相关的炎症小鼠模型中表现出治疗功效17.
为了研究中性粒细胞胞外诱捕网(NET)的释放,多年来已开发出多种方法,例如但不限于:1)使用细胞膜非通透性DNA示踪剂结合免疫荧光酶标仪进行DNA检测;2)基于酶联免疫吸附试验(ELISA)检测上清液中的DNA以及与NET特异性蛋白结合的DNA复合物;3)通过免疫组织化学方法检测NET相关分子与胞外DNA的共定位;4)采用流式细胞术检测正在形成NET的中性粒细胞。上述每种方法均有其各自的优势与局限性。我们开发了一种基于显微镜的实时高通量方法,用于定量人源NET的释放,该方法采用一种细胞膜非通透性的DNA染料16,18。本方法所述技术能够以简便、可靠且可重复的方式研究NETosis的动力学特征和特性,并可用于评估NETosis拮抗剂(如CIT-013)的药理学性质。
方案
所有献血者均按照《赫尔辛基宣言》的规定签署知情同意书,研究按照Citryll人类研究伦理指南进行。
注意:所有涉及人血及分离中性粒细胞的操作均须在超净工作台内无菌条件下进行。若实验方案中未特别说明离心机的刹车和加速设置,则默认均设为最大档。
1. 从血液中分离中性粒细胞
- 使用肝素锂管采集健康志愿者的外周血,并将血液转移至一个新的50 mL离心管中。
- 用1×DPBS冲洗肝素锂管,然后将冲洗液转移至与血液相同的50 mL离心管中。确保最终血液与DPBS的体积比为1:1。通过移液操作混合血液与DPBS,以获得均匀的溶液。
- 向另一个新的50 mL离心管中加入13 mL密度梯度溶液,然后用25 mL移液管缓慢地将1:1稀释的血液沿管壁叠加在密度梯度溶液之上,总体积最多加至50 mL。
- 在室温(RT)下以400 × g 离心40分钟,使用最小加速度和最低刹车强度。
注意:此时会形成分层,从上到下依次为:1. 血浆;2. 外周血单个核细胞(PBMCs);3. 密度梯度溶液;4. 红细胞/中性粒细胞。 - 首先用10 mL移液管弃去上层血浆,然后尽可能用塑料巴氏德移液管弃去PBMC层和密度梯度溶液层,注意不要扰动下方的红细胞/中性粒细胞层。
- 轻轻振荡离心管使红细胞/中性粒细胞层重悬,并用25 mL移液管将其在15 mL的1×DPBS中重悬。
- 加入25 mL的6%右旋糖酐/0.9% NaCl溶液,通过倒置混匀10次,然后将离心管直立放置于室温下静置25分钟。
注意:此时会形成分层,从上到下依次为:1. 中性粒细胞;2. 红细胞。 - 用10 mL移液管将中性粒细胞层转移至一个新的50 mL离心管中,在室温下以500 × g 离心10分钟。
注意:操作需谨慎,因为中性粒细胞沉淀中仍含有少量红细胞,且沉淀未牢固贴附于管底。 - 倾去上清液,用10 mL移液管将细胞沉淀在10 mL的氯化铵-氯化钾(ACK)裂解缓冲液(155 mM NH4Cl,10 mM KHCO3,0.1 mM Na2EDTA;pH = 7.2)中重悬,随后立即加入40 mL ACK裂解缓冲液。
- 在室温下持续倒置混匀孵育,直至溶液变为半透明(通常需要1–5分钟,不同供体间可能存在差异),然后在室温下以350 × g 离心10分钟。
- 弃去上清液,缓慢地逐滴加入5 mL含L-谷氨酰胺并补充10%(v/v)热灭活胎牛血清(FBS)、50 U/mL青霉素和50 µg/mL链霉素的培养基(以下简称10%培养基),加在中性粒细胞沉淀上方,注意不要使中性粒细胞悬浮。此步骤可有效去除中性粒细胞沉淀中的大部分红细胞。
- 轻轻旋转50 mL离心管,使位于中性粒细胞沉淀上方的大部分红细胞重悬于10%培养基中,随后通过倾倒法弃去上清液。
- 将中性粒细胞沉淀在10 mL的10%培养基中重悬,待完全悬浮后,补加至50 mL的10%培养基。在室温下以350 × g 离心10分钟。
- 弃去上清液,将细胞沉淀在10 mL的10%培养基中重悬。
2. 中性粒细胞染色以通过流式细胞术检测纯度
- 为确定细胞浓度,将中性粒细胞悬液与0.4%台盼蓝溶液按1:1比例稀释,并使用明场细胞计数仪对中性粒细胞进行计数。
注意:也可采用其他计数方法。 - 将1 × 10⁵个中性粒细胞转移至含有10%培养基的V型底96孔板的各孔中,在室温下以400 × g离心3分钟。
- 弃去上清液,将细胞重悬于50 µL含1%(w/v)牛血清白蛋白(BSA)和0.1%(v/v)NaN3的1×DPBS中(以下简称FACS缓冲液),并加入Fc受体阻断剂(50倍稀释)。
- 在室温下孵育15分钟,随后加入50 µL FACS缓冲液,其中包含50倍稀释的APC-Cy7标记的小鼠抗人CD45抗体、600倍稀释的PerCP-Cy5.5标记的小鼠抗人CD16抗体、133倍稀释的FITC标记的小鼠抗人CD66b抗体以及500倍稀释的可固定活力染料eFluor 506。
注意:CD45在白细胞上表达;CD66b仅在粒细胞中表达;CD16在中性粒细胞中高表达,在嗜酸性粒细胞中低表达,在嗜碱性粒细胞中不表达。 - 在室温避光条件下孵育30分钟,然后以400 × g离心3分钟。
- 弃去上清液,将细胞重悬于175 µL FACS缓冲液中,并在室温下以400 × g离心3分钟。重复此步骤一次。
- 弃去上清液,将中性粒细胞沉淀重悬于175 µL FACS缓冲液中,使用流式细胞仪系统及配套软件分析样品。
3. 使用流式细胞术分析软件进行中性粒细胞纯度分析
注意:流式细胞术数据分析使用 材料表 中列出的流式细胞术分析软件进行。
- 按照以下逐步操作进行设门:
- 在FSC-A vs. Time图中设置时间门,以选择细胞流正常的区域。
- 在SSC-A vs. FSC-A图中设置细胞门,以选择细胞并排除碎片。
- 在FSC-A vs. AmCyan-A 图中设置活细胞门,以选择活细胞。
- 在FSC-A vs. APC-Cy7图中设置白细胞门,以选择CD45+细胞。
- 在FITC vs. PerCP-Cy5.5图中设置中性粒细胞门,以区分CD66b+CD16+(中性粒细胞)、CD66b-CD16+(嗜酸性粒细胞)和CD66b-CD16-(嗜碱性粒细胞、单核细胞和淋巴细胞)。
- 在FSC-H vs. FSC-A 图中设置单细胞门,以选择单个中性粒细胞。
- 通过将单个中性粒细胞表示为细胞门内细胞的频率来确定中性粒细胞纯度。
注意:继续实验前,中性粒细胞纯度需超过85%。
4. 活细胞成像显微镜技术
注意:该检测方法已针对多种96孔成像板以及不同的NETosis刺激物和拮抗剂进行了优化。以下方案描述了该方法的总体流程,具体细节可参考所附表格进行调整。
- 通过将0.01%的聚-L-赖氨酸用无菌H2O按1:10比例稀释,制备0.001%的聚-L-赖氨酸溶液。
- 向每孔中加入0.001%的聚-L-赖氨酸溶液,并在37 °C下孵育至少1小时。
注意:每孔体积取决于96孔成像板(表1)。 - 用200 µL DPBS洗涤各孔3次,以去除多余的聚-L-赖氨酸。 所有步骤均在超净工作台中进行。取下板盖,在超净工作台中打开培养板,使孔内空气干燥至完全干燥(约1小时)。
- 计算实验所需的中性粒细胞数量,并将多余细胞转移至15 mL离心管中。在室温下以350 × g离心10分钟。
注意:每孔中性粒细胞的数量因96孔成像板类型而异(表1)。细胞密度已优化,以确保单个细胞之间有良好的分离,这是准确分析所必需的。若中性粒细胞密度过高,细胞和中性粒细胞胞外诱捕网(NETs)将与邻近细胞和NETs重叠,从而影响分析质量。 - 弃去上清液,并将中性粒细胞重悬于不含酚红、并补充有2%(v/v)胎牛血清(FBS)、50 U/mL青霉素、50 µg/mL链霉素、10 mM HEPES和1 mM CaCl2的培养基中(以下简称NET检测缓冲液)。
- 制备以下工作液。
- 在NET检测缓冲液中配制80 nM的DNA染料。
- 在NET检测缓冲液中配制NET形成刺激物。
- 在NET检测缓冲液中配制NET形成拮抗剂。
注意:上述工作液的浓度为孔中所需终浓度的4倍。NET形成刺激物和NET形成拮抗剂的推荐浓度各不相同(表2和表3)。
- 向每孔中加入用NET检测缓冲液配制的4倍浓度DNA染料。
- 向相应孔中加入用NET检测缓冲液配制的4倍浓度NET形成刺激物;对于无刺激物的孔或含有包被免疫复合物(cIC;见表2中的方案)的孔,仅加入NET检测缓冲液。
- 向相应孔中加入用NET检测缓冲液配制的4倍浓度NET形成拮抗剂;对于无拮抗剂的孔,仅加入NET检测缓冲液。
- 向每孔中加入中性粒细胞悬液。
注意:每孔中4倍浓度DNA染料、4倍浓度NET形成刺激物(在NET检测缓冲液中)、4倍浓度NET形成拮抗剂(在NET检测缓冲液中)、中性粒细胞数量及中性粒细胞悬液体积均取决于所用96孔成像板(表1)。加样时应避免产生气泡。 - 将培养板在室温下以100 × g离心2分钟,并将96孔成像板放入置于37 °C、5% CO2培养箱中的活细胞显微镜分析系统中。
注意:在孵育开始的第一分钟内,96孔成像板底部可能会产生冷凝水。 应使用纸巾将其擦除。
5. 设置活细胞显微成像分析系统的软件以进行图像采集
注意:相差显微镜图像和免疫荧光图像由活细胞显微成像分析系统采集,并由其分析软件控制。
- 打开活细胞显微成像分析系统软件并点击 连接到设备。进入 用户名 和 密码. 点击 安排采集时间 并点击 加 按钮(启动添加容器)。随后选择 按计划扫描 并点击 下一步.
- 从零开始创建新容器,选择 新 在 创建血管 部分并点击 下一步选择 标准 在 扫描类型 部分并点击 下一步.
- 选择以下扫描设置,然后单击 下一步: 单细胞水平: 无; 图像通道:相差 和 绿色 采集时间 100 ms); 目标:20倍.
- 选择要扫描的适当类型容器 血管选择 部分并点击 下一步.
- 如果使用 96 孔板 #1,请选择 康宁,平板,96孔,N/A,3603,康宁96孔(黑/白)微孔板.
- 如果使用 96 孔板 #2,请选择 Nunc,96 孔板,N/A,152028,96 孔 Nunc 光学底(黑/白)微孔板.
- 指定容器的位置 抽屉 并单击 下一步. 在 扫描模式 选择需要扫描的孔,设置每孔图像数量(每孔扫描4张图像以获得代表性概览),然后单击 下一步.
注意:请勿选择空孔,因为这会影响自动对焦。 - 在容器记录部分输入包括平板名称在内的容器相关信息,然后点击 下一步选择 推迟分析至后续阶段 在 分析设置 部分并点击 下一步.
- 为血管定义扫描时间表 扫描时间表 部分。选择 创建新时间表,按以下间隔进行扫描 并选择 1小时选择 停止扫描 和 00:05 小时 第一次扫描后,单击 下一步 并点击 添加到日程安排 当扫描信息正确时。
- 当需要编辑扫描计划时,双击 扫描时间表 屏幕顶部。右键点击 扫描时间表 并根据需要进行编辑和调整。点击 软盘 保存扫描计划的图标。
注意:在同一实验中对多个容器(培养板)进行成像时,可通过点击加号按钮(Launch add vessel)并选择将额外的容器添加到现有的扫描程序中 定时扫描,然后点击 下一步. 可从零新建一个容器(参见本方案第5.2步)、复制现有容器,或使用先前已扫描的容器。这将导致以与前一块培养板相同的频率和设置进行连续扫描。
- 当需要编辑扫描计划时,双击 扫描时间表 屏幕顶部。右键点击 扫描时间表 并根据需要进行编辑和调整。点击 软盘 保存扫描计划的图标。
6. 使用活细胞显微成像分析软件进行活体成像显微镜 NETs 检测分析
注意:使用活细胞显微镜分析软件来分析相差和免疫荧光图像 (材料表)。若不使用此系统,也可利用公共领域的软件包进行类似的NET分析4,18,19,20。
- 打开活细胞显微镜分析软件,点击连接至设备。输入用户名和密码,然后点击查看最近扫描结果。通过双击实验的容器名称,打开需要分析的实验。
- 点击启动分析,选择创建新的分析定义,然后点击下一步。
- 在分析类型部分选择基础分析器,点击下一步。在图像通道部分,选择绿色,取消选择相差,然后点击下一步。
- 打开图像图层窗口,选择绿色,取消选择相差。在绿色部分关闭自动缩放,并手动设置绿色通道的最小值和最大值,以区分中性粒细胞胞外诱捕网(NETs)与背景。
注意:相差图像可根据需要开启或关闭。例如,用于判断NETs是否被释放到细胞外环境中。 - 打开 容器扫描时间 窗口,选择NETs应存在的合适容器扫描时间。选择一组能够代表实验内变异性的图像(包括含有NETs的阳性对照孔图像和不含NETs的阴性对照孔图像)。这些图像将用于预览和优化分析设置。点击 下一步。
- 打开分析定义设置窗口,开始调整绿色通道的分析参数,确保NET结构被准确勾勒,同时避免出现假阳性或假阴性的NET识别。使用以下设置,并点击预览当前或预览全部,将设置应用于当前图像或所有图像。
- 对象名称选择NETs。
- 分割方式选择无背景扣除 - 自适应。
- 阈值GCU选择3至5之间(根据实验情况调整)。
- 边缘分割选择开启(介于-10至0之间)。
- 清理设置选择填充孔洞:100 µm2 和 调整大小:-1像素。
- 滤波器设置根据实验情况选择,推荐的截断值为:面积:>200 µm2,平均强度:<24.6,总强度:>7000。
注意:根据所用设置被选中的结构将以品红色轮廓标出。将鼠标悬停在这些结构上,可查看对象参数的更多信息(如面积、偏心率、总强度和平均强度),有助于优化与NET参数纳入或排除标准相关的分析。请检查多张图像(来自阳性和阴性对照孔),以验证分析设置是否正确。
- 当NET分析设置正确后,点击下一步。在扫描时间与孔位部分选择需要分析的时间点和孔位,点击下一步。在保存并应用分析定义部分输入定义名称,点击下一步。确认分析信息无误后,点击完成。
注意:若需分析多个培养板,或使用先前实验的分析定义,请启动分析后选择复制现有分析定义或使用现有分析定义,然后点击下一步。选择合适的现有分析定义并点击下一步。后续分析流程中,若选择的是复制现有分析定义,则跳转至步骤6.4;若选择的是使用现有分析定义,则跳转至步骤6.7。 - 通过点击目标容器内的分析结果,打开实验分析。随后打开图表指标窗口。
- 点击加号按钮(创建指标)。数据可表示为NET汇合百分比(被标记为NET的图像区域百分比)或产NET中性粒细胞百分比(NET数量除以细胞总数)。
- 若以NET汇合百分比表示数据,在指标部分选择面积,在数值部分选择汇合度。若以产NET中性粒细胞百分比表示数据,在指标部分选择对象计数,在数值部分选择每张图像。
- 点击确定。在用户自定义指标部分选择NETs面积汇合度 (%)或NETs对象计数每张图像 (Per Image)。在选择扫描部分选择所有需要分析的时间点。在选择孔位部分选择所有需要分析的孔位,然后点击导出数据。
- 在图表导出部分选择以下设置。
- 选择将每次扫描显示为独立表格(列为:1, 2…,行为:A, B…)。
- 选择显示行和列标签。
- 选择所有扫描合并为一个文件,点击浏览以调整文件位置和名称。
- 选择在文件头包含实验详情。
- 选择将数据分解为单张图像。
- 点击导出,将数据导出为".txt"文件,该文件可导入电子表格软件进行进一步分析。
注意:为计算产NET中性粒细胞的百分比,需先确定t = 0时的中性粒细胞数量。为此,请继续执行以下实验步骤。 - 返回步骤6.1,启动额外分析,以统计t = 0时图像中的中性粒细胞数量。
- 在步骤6.3中,在图像通道部分选择相差,取消选择绿色。
- 在步骤6.4中,在容器扫描时间部分选择t = 0。
- 在步骤6.5中,取消选择绿色,选择相差,并根据需要调整相差通道设置。
- 在步骤6.6中,添加对象名称,在分割部分选择经典汇合度,将分割调整设为0(背景),将填充孔洞调整为100 µm2,并将面积调整为50 µm2。
- 在步骤6.7中,在选择扫描部分选择t = 0。
- 在步骤6.8中,打开中性粒细胞计数分析。
- 在步骤6.9中,在用户自定义指标部分选择对象计数每张图像 (Per Image)。
- 最后,使用以下公式计算产NET中性粒细胞的百分比:(NET数量 / t = 0时中性粒细胞数量) × 100%。
结果
结合不可渗透的DNA染料,实时高通量显微镜技术可用于研究中性粒细胞胞外诱捕网(NETosis)的动力学、特征及其潜在的分子通路,并能够评估可能抑制NET释放的化合物。在此方法中,NET被定义为DNA染料阳性且表面积显著大于健康中性粒细胞(图1A)的结构,表明染色质已释放至细胞外环境18。基于表面积的分析使我们能够区分NET与质膜完整性受损的活化中性粒细胞,后者表现为强烈的细胞内DNA染色(图1A)。
钙离子载体(A23187)和佛波酯(PMA)常用于诱导中性粒细胞胞外诱捕网形成(NETosis) 体外尽管这些刺激物并非生理性的,但它们具有重要价值,因为它们可激活不同的NETosis通路,并确保在不同供体间以较低变异性稳定诱导NETosis。A23187可触发钙离子内流,导致PAD4活化,并释放富含瓜氨酸化组蛋白的NETs;而PMA则激活NADPH氧化酶复合物,引发活性氧(ROS)的产生,进而释放瓜氨酸化组蛋白水平较低的NETs。5,16,21NETosis 反应的速度和强度取决于每种刺激物的浓度(图1B,C),其中A23187诱导的NETosis速度更快,而PMA导致更高比例的中性粒细胞释放NETs(图1D-F). 由 A23187 刺激产生的 NETs(中性粒细胞胞外诱捕网)图1D;红色箭头)与PMA诱导的NETs不同(图1D;黄色箭头),表现为在中性粒细胞质膜外更为弥散,而PMA诱导的NETs则更靠近中性粒细胞质膜。此外,A23187刺激导致出现通透性增加但不形成NETs的DNA染料阳性中性粒细胞(图1D;蓝色箭头),其未将DNA释放到细胞外空间。可渗透且DNA染料阳性的非NETosis中性粒细胞的检测依赖于A23187的浓度图1G)且无论使用何种浓度的PMA诱导NETosis,该现象几乎均不存在(图1D,H)。除了使用非生理性的NETosis刺激物A23187和PMA外,该检测方法也适用于研究与疾病相关的NETosis诱导因素。例如,用可溶性免疫复合物(sIC)或焦磷酸钙沉积病(CPPD)中的晶体激活中性粒细胞后,其NET释放量较无刺激条件下显著增加。当使用包被的免疫复合物(cIC)、fMLP以及单水尿酸钠(MSU)晶体激活中性粒细胞时,也观察到NET水平升高的趋势。图1I);然而,对于这些刺激,我们观察到明显的供体间差异。
药理学抑制NETosis通路及与NETosis相关的酶表明,靶向NETosis的治疗手段可能对那些因NET积聚显著驱动病理进程的疾病具有治疗效果14,17,22,23,24。这种实时显微镜NET检测方法是一种简便、可靠且可重复的研究NETosis拮抗剂的高通量方法。为说明这一点,我们使用了一种同类首创的人源化单克隆抗体CIT-013,该抗体可高亲和力地靶向瓜氨酸化组蛋白H2A和H415,16。A23187可激活NETosis通路,导致释放含有瓜氨酸化组蛋白的NETs,随后CIT-013靶向这些NETs以发挥其抑制NETosis的功能16。事实上,CIT-013完全抑制了A23187诱导的NET释放(图2A 和 补充视频1),其IC50为4.6 nM(图2B)。CIT-013的NETosis抑制能力具有独特性,因为其他商业化的靶向不同(非)瓜氨酸化组蛋白的抗体均无法抑制NET的释放(图2C)。
此前,我们已证明CIT-013的一个高度相似的前体分子(仅相差两个氨基酸,但以相同亲和力结合类似表位)可阻断由活化血小板、痛风性关节液以及类风湿关节炎(RA)关节液等生理刺激所诱导的NETosis17。在此,我们显示CIT-013可抑制sIC诱导的NET释放(图2D)。此类刺激诱导的NETosis的抑制具有重要的治疗意义,尤其体现在系统性红斑狼疮(SLE)、类风湿关节炎(RA)及其他自身免疫性疾病中;在这些疾病中,血清或关节液中的自身抗体促进免疫复合物(IC)的形成,进而触发NETosis25,26。
综上所述,这些数据表明,这种实时高通量显微镜方法适用于研究中性粒细胞胞外诱捕网(NET)释放的动力学特征和相关特性,并可用于研究NETosis的抑制剂。尽管该方法已针对人中性粒细胞的使用进行了优化,但经过适当改进后,也可能适用于研究其他物种的中性粒细胞。本检测所生成的数据为将CIT-013作为治疗由NET驱动的疾病的强效且具有疗效的疗法提供了关键的理论依据。

图1实时高通量显微镜技术用于研究中性粒细胞胞外诱捕网的释放。 从健康志愿者血液中分离出的中性粒细胞经 A23187 或 PMA 刺激以激活 NETosis 通路。通过实时高通量显微镜结合细胞膜非通透性 DNA 染料观察 NET 的释放,并利用活细胞显微成像分析系统软件根据表面积进行定量分析。A) 非刺激性健康中性粒细胞(灰色)、细胞外中性粒细胞胞外诱捕网(NETs)以及通透化后经细胞内DNA染色的非NET形成中性粒细胞(绿色)的表面积分析。B,C) 使用所示浓度的 A23187 或 PMA 刺激中性粒细胞后,随时间推移对 NET 释放量进行定量分析(n = 2)。D) 不同时间点对 A23187(红色箭头)和 PMA(黄色箭头)刺激产生 NET 释放的代表性图像。蓝色箭头指示的是未发生 NET 释放的通透性中性粒细胞示例。E) 随时间变化的NET释放量以NET汇合率的百分比表示(n = 5)。统计分析在 t = 240 min 时进行。F) 随时间变化的 NET 释放量,以产 NET 中性粒细胞的百分比表示(n = 2)。G, H) 使用所示浓度的 A23187 或 PMA 刺激中性粒细胞后,随时间推移对可渗透的非网状中性粒细胞进行定量分析(n = 2)。I) 可溶性免疫复合物(sIC)、包被免疫复合物(cIC)、fMLP、单钠尿酸(MSU)晶体以及钙焦磷酸盐沉积病(CPPD)中所含晶体诱导的中性粒细胞胞外诱捕网(NET)释放量在 t = 240 min 时的定量分析(n = 8–28)。结果以均值 ± 均值标准误表示。**P < 0.01,以及****P < 0.0001,采用Dunnett多重比较检验的单因素重复测量方差分析(B),Kruskal-Wallis 检验结合 Dunn 多重比较检验(I)。图示 A-F 经 van der Linden 等人许可进行了修改16. 请点击此处以查看此图的放大版本。
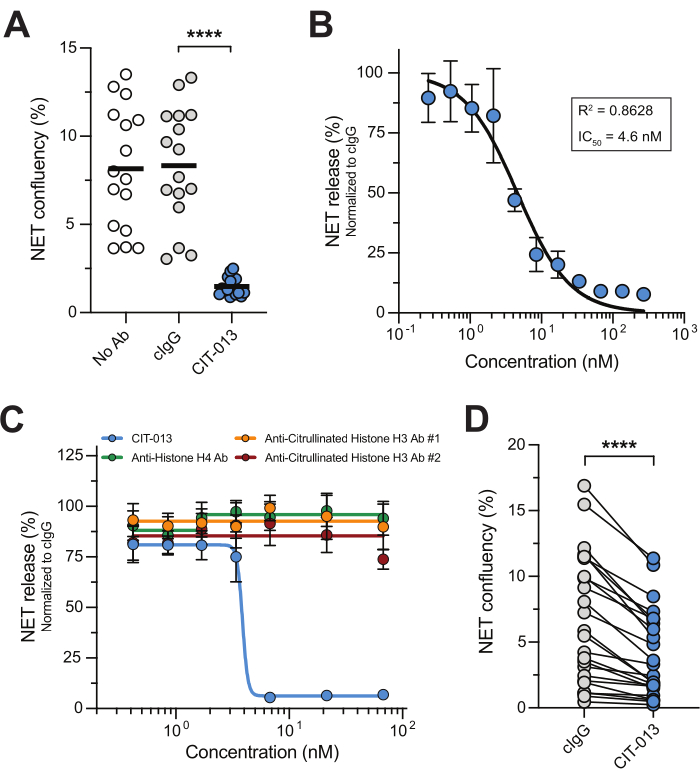
图2:CIT-013抑制NET释放。(A)在t = 240 min时,无抗体(No Ab)或存在CIT-013或同型对照抗体(cIgG)条件下,A23187诱导的NET释放的定量分析。(B)在t = 240 min时,CIT-013对A23187诱导的NET释放的剂量依赖性抑制作用(n = 3)。数据以cIgG为基准进行归一化处理(设为100% NET释放)。(C)在t = 240 min时,存在指定浓度的CIT-013、抗组蛋白H4抗体、抗瓜氨酸化组蛋白H3抗体#1或抗瓜氨酸化组蛋白H3抗体#2条件下的A23187诱导NET释放的定量分析(n = 6)。(D)在存在CIT-013或cIgG条件下,可溶性免疫复合物(ICs)在t = 240 min时诱导的NET释放的定量分析。结果以均值±均值标准误差表示。****P < 0.0001,采用Tukey多重比较的重复测量单因素方差分析(A)或双尾Wilcoxon配对符号秩检验(D)。图A、B和D经van der Linden等人16许可修改。 请点击此处查看该图的放大版本。
| 96孔板 #1 | 96孔板 #2 | |
| 每孔中0.001%聚-L-赖氨酸溶液的体积 | 50 µL | 100 µL |
| 每孔中中性粒细胞悬液的体积 | 50 µL | 87.5 µL |
| 每孔中的中性粒细胞数量 | 2 x 10⁴ 个细胞 | 3.5 x 10⁴ 个细胞 |
| 每孔中NET检测缓冲液内4倍浓缩(= 80 nM)DNA染料的体积 | 50 µL | 87.5 µL |
| 每孔中NET检测缓冲液内4倍浓缩NETosis刺激物的体积 | 50 µL | 87.5 µL |
| 每孔中NET检测缓冲液内4倍浓缩NETosis拮抗剂的体积 | 50 µL | 87.5 µL |
表1:针对不同96孔成像板优化的体积与细胞数量。
| 工作溶液浓度(4倍浓缩) | 终浓度 | |
| 钙离子载体(A23187) | 50 µM | 12.5 µM |
| PMA | 16 nM | 4 nM |
| fMLP | 4 µM | 1 µM |
| 单钠尿酸(MSU)晶体 | 400 µg/mL | 100 µg/mL |
| 焦磷酸钙沉积病(CPPD)晶体 | 400 µg/mL | 100 µg/mL |
| 可溶性免疫复合物(sIC) | 1. 在DPBS中将人血清白蛋白(HSA)配制成5 µg/mL,加入至含282.5 µg/mL多克隆兔抗HSA抗体的DPBS溶液中。 | |
| 2. 37 °C孵育至少90分钟。 | ||
| 3. 涡旋混匀后,向相应孔中加入50 µL sIC溶液。 | ||
| 包被型免疫复合物(cIC) | 1. 在96孔板的相应孔中加入含10 µg/mL HSA的DPBS溶液。 | |
| 2. 4 °C过夜孵育。 | ||
| 3. 用200 µL含0.05% Tween-20的DPBS洗涤孔3次(后文简称PBS/0.05%Tween)。 | ||
| 4. 用200 µL含1%(w/v)牛血清白蛋白的PBS/0.05% Tween溶液封闭孔(后文简称封闭缓冲液)。 | ||
| 5. 室温下轻柔振荡(400 rpm)孵育120分钟。 | ||
| 6. 用200 µL PBS/0.05% Tween洗涤孔3次。 | ||
| 7. 向相应孔中加入含多克隆兔抗HSA抗体的封闭缓冲液50 µL。 | ||
| 8. 室温下轻柔振荡(400 rpm)孵育60分钟。 | ||
| 9. 用200 µL PBS/0.05% Tween洗涤孔3次。 | ||
| 10. 最后用200 µL DPBS洗涤孔3次。此时孔板已准备好进行实验方案中第4.7步操作。 | ||
表2:NETosis刺激物的推荐浓度。
| 工作溶液浓度(4倍浓缩) | 终浓度 | |
| 抗鸡卵溶菌酶抗体(对照抗体;cIgG) | 80 nM | 20 nM |
| CIT-013 | 80 nM | 20 nM |
表3:NETosis拮抗剂推荐浓度。
补充视频 1。中性粒细胞在存在 cIgG(左侧)或 CIT-013(右侧)的情况下用 A23187 刺激,并使用细胞膜非通透性 DNA 染料随时间观察 NET 的释放。在 CIT-013 存在时,NET 的释放受到抑制。该视频为 DNA 染料(绿色)与相差图像的叠加。本视频已获 van der Linden 等人16许可使用。请点击此处下载该视频。
讨论
自2004年发现中性粒细胞胞外诱捕网(NETs)以来,已开发出多种实验策略用于研究NET的释放 体外,其中免疫荧光显微镜是最常用于定量NETosis的技术27,28尽管显微镜技术可用于观察中性粒细胞胞外诱捕网(NET)的释放,但其存在局限性,因为对固定时间点图像进行非自动化的显微定量分析准确性较差,且容易受到观察者偏倚的影响。另一种用于研究NET释放的技术是多光谱成像流式细胞术。29,30,可检测大量形成网状结构的中性粒细胞,并采用无偏倚分析方法,但该方法主要针对NETosis早期阶段的中性粒细胞,无法定量已释放中性粒细胞胞外诱捕网(NETs)的细胞。许多关于NETosis动力学的研究采用DNA染料结合荧光酶标仪来定量NET的释放。31该技术无法区分中性粒细胞外陷阱(NETs)与具有细胞内DNA染色的活化或正在死亡的中性粒细胞,因此不适用于NET释放的定量分析及NETosis拮抗剂的研究。上述情况强调了目前用于研究NETosis的方法虽有价值,但仍存在局限性。
本研究中描述的实时显微镜方法解决了以往报道技术中存在的诸多问题。该方法可实现无偏倚、半自动化、高通量、可重复且准确的中性粒细胞胞外诱捕网(NET)定量。事实上,该方法能够最大限度地减少移液操作带来的假象,例如NETs被拉伸的形态学特征18,,并可通过DNA释放的独特形态学特征和动力学过程,区分NETosis与坏死及凋亡18,32。此外,该方法还为研究不同调控性细胞死亡的生化通路提供了机会,例如在坏死性凋亡的中性粒细胞中NET的形成,这些细胞可产生符合NETs功能和表型标准的结构33。
本方案中有多个关键步骤需要遵循,以成功实现中性粒细胞胞外诱捕网(NETs)的定量。首先,每孔中接种的细胞数量必须准确,这是精确量化NETs的重要前提。当中性粒细胞密度过高时,细胞和NETs会与邻近的细胞及NETs发生重叠,导致难以区分,从而影响定量的准确性。其次,当NETs释放到细胞外环境时,必须使用低浓度、无毒且不能穿透细胞质膜的DNA结合染料进行染色。可穿透细胞膜的DNA结合染料容易诱导中性粒细胞活化或细胞死亡。第三,每孔需采集多张图像,以获得在异质性中性粒细胞群体中NET释放情况的代表性概览。第四,在 t = 0 时中性粒细胞的相差图像对于校正每幅图像中的中性粒细胞数量并计算发生NET形成的中性粒细胞百分比至关重要。
尽管这种实时、高通量显微镜方法相较于其他NET检测方法具有诸多优势,但该方法仍存在局限性,因为据我们所知,目前尚无可用的荧光染料来检测其他NET组分以确认NET的释放。虽然可使用荧光标记抗体来检测额外的NET组分,但可能产生非预期效应,因为抗体-免疫复合物会影响中性粒细胞的活化及可能的NETosis过程。因此,我们倾向于不在本实验体系中使用额外抗体,而建议改用已被充分证实的NETosis诱导刺激物。当使用尚未明确验证的NETosis诱导刺激物时,我们建议在进行活细胞成像实验前,先采用ELISA方法检测与NET特异性蛋白(如瓜氨酸化组蛋白)结合的DNA。其次,由于健康供体之间存在个体差异,中性粒细胞对不同NETosis刺激物的反应可能因健康人群的异质性而表现出实验内和实验间的变异。为尽量减少实验变异,必须在采血后1小时内完成中性粒细胞的分离,并立即用于实验,因为中性粒细胞寿命较短,无法冻存保存。此外,必须验证并采用标准化的中性粒细胞分离方案,以最大程度减少细胞活化。中性粒细胞属于敏感性细胞,在纯化过程中可能因机械性或其他类型的应激而改变其对刺激物的反应性。中性粒细胞的活化状态和NET释放可能受到采血针类型、采血管种类、孵育温度、离心速度以及从采血到中性粒细胞分离时间等因素的影响34,35,36,37。另一种可考虑的中性粒细胞分离方法由Krémer等人36描述,该方法采用无需红细胞裂解的阴性免疫磁珠分选技术。该方法所获得的中性粒细胞更接近全血中的原始状态,可能有助于避免纯化过程中的细胞活化。上述因素均提示,不同研究团队所得数据在比较时需格外谨慎。
总体而言,所述的实时高通量显微镜方法能够以可重复且高效的方式对中性粒细胞胞外诱捕网(NETs)进行准确定量,可用于研究NET释放的特征、程度和动力学过程,并可实现对NETosis拮抗剂活性的探究。作为后者的示例,我们使用了人源化抗瓜氨酸化组蛋白H2A和H4单克隆抗体CIT-013,该抗体目前正处于临床开发阶段。
披露
作者为Citryll公司员工,并拥有经济利益。
致谢
作者感谢 Paul Vink 在管理与活体成像显微技术相关的部分项目工作中所提供的帮助。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| A-23187 游离酸(钙霉素) | Thermo Fisher | A1493 | |
| 氯化铵(NH4Cl) | Sigma Aldrich | A9434 | |
| 抗鸡卵溶菌酶抗体(对照抗体;cIgG) | CrownBio | C0001 | |
| APC-Cy7 标记的小鼠抗人 CD45 抗体(克隆号 2D1) | Biolegend | 368515 | 终浓度使用量为 1 µg/mL |
| BD FACSCantoTM II 系统 + FACSDiva 软件(版本 8.0.1) | BD | n/a | 流式细胞仪系统 |
| 牛血清白蛋白(BSA)第五组分 | Roche | 10735108001 | |
| CaCl2(1 M) | VWR | E506 | |
| 焦磷酸钙沉积病(CPPD)晶体 | InvivoGen | lrl-cppd | |
| Cellometer Auto T4 明场细胞计数仪 + 分析软件(版本 3.3.9.5) | Nexcelom Bioscience | n/a | 明场细胞计数仪 |
| CIT-013 | Citryll B.V. | n/a | |
| Corning 黑色 96 孔板,透明底 | Corning | 3603 | 96 孔板 #1 |
| 葡聚糖 T500 | Pharmacosmos | 551005009006 | |
| DPBS(1x) | Gibco | 14190-144 | |
| 胎牛血清(FBS) | Serena | S-FBS-SA-015 | |
| Ficoll | GE Healthcare | 17-1440-02 | 密度梯度溶液 |
| FITC 标记的小鼠抗人 CD66b 抗体(克隆号 G10F5) | eBioscience | 17-0666-42 | 终浓度使用量为 1.5 µg/mL |
| 可固定的活死染料 eFluor 506 | eBioscience | 65-0866-14 | |
| 流式细胞术分析软件 | FLowJo | Version 10.8.0 | |
| fMLP | Sigma Aldrich | 47729-10MG-F | |
| HEPES(1M) | Gibco | 15630-080 | |
| 人血清白蛋白(HSA) | VWR | 31020 | |
| Human TruStain FcX | Biolegend | 422302 | Fc 受体封闭剂 |
| IBIDI 96 孔板,透明底 | IBIDI | 89626 | 96 孔板 #2 |
| IncuCyte SX3 + 分析软件(版本 2022B Rev1) | Satorius | n/a | 活细胞显微分析系统 |
| 单钠尿酸盐晶体 | InvivoGen | tlrl-msu | |
| 小鼠抗组蛋白 H3(瓜氨酸化 R2 + R8 + R17)抗体 | Cayman | 17939 | 克隆号 11D3;简称 #1 |
| 小鼠抗组蛋白 H4(K8Ac + K12Ac + K16Ac)抗体(克隆号 KM-2) | Absolute Antibodies | Ab01681-2.0 | |
| Na2EDTA | Sigma Aldrich | E5134 | |
| NaCl(0.9%) | B. Braun | 25900 | |
| 青霉素(5000 U/mL)- 链霉素(5000 µg/mL) | Gibco | 15070-063 | |
| PerCP-Cy5.5 标记的小鼠抗人 CD16 抗体(克隆号 3G8) | Biolegend | 302027 | 终浓度使用量为 0.33 µg/mL |
| PMA | Sigma Aldrich | P1585 | |
| 多克隆兔抗 HSA 抗体 | Sigma Aldrich | A0433-2ml | |
| 聚-L-赖氨酸(0.01%) | Sigma Aldrich | P4832 | |
| 碳酸氢钾(KHCO3) | Sigma Aldrich | 237205 | |
| 兔抗组蛋白 H3(瓜氨酸化 R2 + R8 + R17)抗体 | Abcam | ab281584 | 多克隆抗体;简称 #2 |
| 含 GlutaMAXTM 添加剂的 RPMI 1640 培养基 | Gibco | 61870-010 | 含 L-谷氨酰胺的培养基 |
| 不含酚红的 RPMI 1640 培养基 | Gibco | 11835-030 | 不含酚红的培养基 |
| 叠氮化钠(NaN3) | Sigma Aldrich | S2002 | |
| 无菌 H2O | Gibco | 15230204 | |
| Sytox Green 核酸染料 | Thermo Fisher | S7020 | DNA 染料 |
| 台盼蓝溶液(0.4%) | Gibco | 15250-061 | |
| Tween-20 | Sigma Aldrich | P1379 | |
| BD Vacutainer 肝素锂采血管(17 IU/mL) | BD | 367526 |
参考文献
- Brinkmann, V., et al. Neutrophil extracellular traps kill bacteria. Science. 303 (5663), 1532-1535 (2004).
- De Bont, C., Pruijn, G. J. M. Citrulline is not a major determinant of autoantibody reactivity to neutrophil extracellular traps. Philos Trans R Soc Lond B Biol Sci. 378 (1890), 20220249(2023).
- Urban, C. F., et al. Neutrophil extracellular traps contain calprotectin, a cytosolic protein complex involved in host defense against Candida albicans. PLoS Pathog. 5 (10), e1000639(2009).
- Hoppenbrouwers, T., et al. In vitro induction of NETosis: Comprehensive live imaging comparison and systematic review. PLoS One. 12 (5), e0176472(2017).
- Kenny, E. F., et al. Diverse stimuli engage different neutrophil extracellular trap pathways. ELife. 6, e24437(2017).
- Parker, H., Dragunow, M., Hampton, M. B., Kettle, A. J., Winterbourn, C. C. Requirements for NADPH oxidase and myeloperoxidase in neutrophil extracellular trap formation differ depending on the stimulus. J Leukoc Biol. 92 (4), 841-849 (2012).
- Neeli, I., Radic, M. Opposition between PKC isoforms regulates histone deimination and neutrophil extracellular chromatin release. Front Immunol. 4, 38(2013).
- Bosmann, M., Ward, P. A. Protein-based therapies for acute lung injury: targeting neutrophil extracellular traps. Expert Opin Ther Targets. 18 (6), 703-714 (2014).
- Papayannopoulos, V. Neutrophil extracellular traps in immunity and disease. Nat Rev Immunol. 18 (2), 134-147 (2018).
- Shiratori-Aso, S., Nakazawa, D. The involvement of NETs in ANCA-associated vasculitis. Front Immunol. 14, 1261151(2023).
- Byrd, A. S., et al. Neutrophil extracellular traps, B cells, and type I interferons contribute to immune dysregulation in hidradenitis suppurativa. Sci Transl Med. 11 (508), eaav5908(2019).
- Kimball, A. S., Obi, A. T., Diaz, J. A., Henke, P. K. The emerging role of NETs in venous thrombosis and immunothrombosis. Front Immunol. 7, 236(2016).
- O'Neil, L. J., et al. Neutrophil extracellular trap-associated carbamylation and histones trigger osteoclast formation in rheumatoid arthritis. Ann Rheum Dis. 82 (5), 630-638 (2023).
- Li, M., et al. A novel peptidylarginine deiminase 4 (PAD4) inhibitor BMS-P5 blocks formation of neutrophil extracellular traps and delays progression of multiple myeloma. Mol Cancer Ther. 19 (7), 1530-1538 (2020).
- Chirivi, R. G. S., et al. Anti-citrullinated protein antibodies as novel therapeutic drugs in rheumatoid arthritis. J Clin Cell Immunol. S6, 006(2013).
- Van der Linden, M., et al. Anti-citrullinated histone monoclonal antibody CIT-013, a dual action therapeutic for neutrophil extracellular trap-associated autoimmune diseases. MAbs. 15 (1), 2281763(2023).
- Chirivi, R. G. S., et al. Therapeutic ACPA inhibits NET formation: a potential therapy for neutrophil-mediated inflammatory diseases. Cell Mol Immunol. 18 (6), 1528-1544 (2021).
- Van der Linden, M., Westerlaken, G. H. A., Van Der Vlist, M., Van Montfrans, J., Meyaard, L. Differential signalling and kinetics of neutrophil extracellular trap release revealed by quantitative live imaging. Sci Rep. 7 (1), 6529(2017).
- Hoffmann, J. H. O., Schaekel, K., Gaiser, M. R., Enk, A. H., Hadaschik, E. N. Interindividual variation of NETosis in healthy donors: introduction and application of a refined method for extracellular trap quantification. Exp Dermatol. 25 (11), 895-900 (2016).
- Silva, L. M., Moutsopoulos, N., Bugge, T. H., Doyle, A. Live imaging and quantification of neutrophil extracellular trap formation. Curr Protoc. 1 (7), e157(2021).
- De Bont, C. M., Koopman, W. J. H., Boelens, W. C., Pruijn, G. J. M. Stimulus-dependent chromatin dynamics, citrullination, calcium signalling and ROS production during NET formation. Biochim Biophys Acta Mol Cell Res. 1865 (11 Pt A), 1621-1629 (2018).
- Gajendran, C., et al. Alleviation of arthritis through prevention of neutrophil extracellular traps by an orally available inhibitor of protein arginine deiminase 4. Sci Rep. 13 (1), 3189(2023).
- Biron, B. M., Chung, C. -S., O'Brien, X. M., Chen, Y., Reichner, J. S., Ayala, A. Cl-Amidine prevents histone 3 citrullination and neutrophil extracellular trap formation, and improves survival in a murine sepsis model. J Innate Immun. 9 (1), 22-32 (2017).
- Perdomo, J., et al. Neutrophil activation and NETosis are the major drivers of thrombosis in heparin-induced thrombocytopenia. Nat Commun. 10 (1), 1322(2019).
- Lood, C., et al. Neutrophil extracellular traps enriched in oxidized mitochondrial DNA are interferogenic and contribute to lupus-like disease. Nat Med. 22 (2), 146-153 (2016).
- Kraaij, T., et al. A novel method for high-throughput detection and quantification of neutrophil extracellular traps reveals ROS-independent NET release with immune complexes. Autoimmun Rev. 15 (6), 577-584 (2016).
- De Buhr, N., Von Köckritz-Blickwede, M. How neutrophil extracellular traps become visible. J Immunol Res. 2016, 1-13 (2016).
- Brinkmann, V., Laube, B., Abu Abed, U., Goosmann, C., Zychlinsky, A. Neutrophil extracellular traps: How to generate and visualize them. J Vis Exp. (36), e1724(2010).
- Zhao, W., Fogg, D. K., Kaplan, M. J. A novel image-based quantitative method for the characterization of NETosis. J Immunol Methods. 423, 104-110 (2015).
- Gavillet, M., et al. Flow cytometric assay for direct quantification of neutrophil extracellular traps in blood samples. Am J Hematol. 90 (12), 1155-1158 (2015).
- Sil, P., Yoo, D., Floyd, M., Gingerich, A., Rada, B. High throughput measurement of extracellular DNA release and quantitative NET formation in human neutrophils in vitro. J Vis Exp. (112), e52779(2016).
- Gupta, S., Chan, D. W., Zaal, K. J., Kaplan, M. J. A high-throughput real-time imaging technique to quantify NETosis and distinguish mechanisms of cell death in human neutrophils. J Immunol. 200 (2), 869-879 (2018).
- D'Cruz, A. A., et al. The pseudokinase MLKL activates PAD4-dependent NET formation in necroptotic neutrophils. Sci Signal. 11 (546), eaao1716(2018).
- Nash, G., Abbitt, K., Tate, K., Jetha, K., Egginton, S. Changes in the mechanical and adhesive behaviour of human neutrophils on cooling in vitro. Pflugers Arch. 442 (5), 762-770 (2001).
- Hundhammer, T., Gruber, M., Wittmann, S. Paralytic impact of centrifugation on human neutrophils. Biomedicines. 10 (11), 2896(2022).
- Krémer, V., Godon, O., Bruhns, P., Jönsson, F., De Chaisemartin, L. Isolation methods determine human neutrophil responses after stimulation. Front Immunol. 14, 1301183(2023).
- Freitas, M., Porto, G., Lima, J. L. F. C., Fernandes, E. Isolation and activation of human neutrophils in vitro. The importance of the anticoagulant used during blood collection. Clin Biochem. 41 (7-8), 570-575 (2008).
重印与许可
