本方案详细介绍了Zn的制备方法2+-受限培养基、培养容器和种子培养物以生产 Zn2+-结核分枝杆菌中受限制的核糖体。微量的Zn2+ 导致 Zn2+限制生长,我们描述了用作生物指示剂以验证锌的形态发生特征2+ 局限性 体外 在模式细菌中, 耻垢分枝杆菌, 以及人类病原体 M. tuberculosis.
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
使用Mycobacterium smegmatis作为分枝杆菌锌限制生长条件下的一种生物指示剂
* These authors contributed equally
本文内容
摘要
摘要
许多细菌在锌缺乏条件下构建替代型核糖体2+通过替换锌实现限制性生长条件2+与锌结合的核糖体蛋白2+-非依赖型旁系同源基因。由于Zn2+ 实验室中的污染很常见。为解决这一问题,有时会在培养基中添加螯合剂,但这种方法会干扰生物体对逐渐变化的 Zn 的生理响应2+ 局限性,并与核糖体休眠相关。本文详细介绍了用于锌2+-limited 条件下生长,而无需添加螯合剂。采用该方法,模式细菌 Mycobacterium smegmatis,经历依赖于替代核糖体的形态发生。由于形态发生在锌存在时可被调控且仅在锌条件下发生2+限制性条件, M. smegmatis 可作为生物指示剂,用于验证具有生物学意义的生长条件。三种生物指示表型(细胞密度、细胞长度和辅酶F420 荧光)来指示 Zn2+ 野生型中的限制因素被描述,并概述了无法构建替代核糖体的缺失突变体在这些生物标志物上的变化。由于痕量锌2+ 污染难以在每批培养基中得到有效控制,且锌的精确定量2+ 在每次培养基制备过程中进行检测均过于繁琐,因此监测该生物指示表型是验证锌制备的一种可行方法2+受限生长培养基。为帮助确定Zn的合适培养条件2+-限制性生长和替代核糖体生成过程中,针对锌的生物指示表型变化进行了分析2+-污染或严重含锌2+缺锌的Zn制备物2+-有限培养基中也适用。有关实现 Zn 的更多细节2+限制性生长与替代性核糖体生成 M. tuberculosis 呈现了相关的生物指示表型。总体而言,本文所述的详细操作步骤和生物指示表型将有助于标准化分枝杆菌中具有翻译活性的替代核糖体的制备。
引言
锌离子(Zn2+锌(Zn)是一种必需的微量元素,也是微生物培养基的标准组分。然而,许多细菌能够耐受 Zn2+ 环境中的锌限制2+限制性条件普遍存在;土壤1,海洋2以及宿主内的生态位3 通常为 Zn2+-受限。因此,大多数细菌已进化出机制以克服锌2+ 局限性并维持细胞功能4. 参与维持锌稳态的系统2+ 稳态受到严格的转录调控5 并参与清除 Zn2+ 使用高亲和力 Zn2+ 导入系统,动员细胞内锌2+ 储备,并替换某些 Zn2+-与替代性 Zn 结合的蛋白质2+-非依赖型旁系同源基因6后一种情况的一个示例是 Zn2+-非依赖的核糖体蛋白(RPs)旁系同源基因,这在Zn中是一种常见特征2+细菌中的响应性调控子4. 这些高度分歧的 Zn2+-独立的 RPs 与它们的 Zn 相区别2+通过破坏Zn来结合旁系同源物2+结合CXXC基序7超过一半的已测序原核生物基因组中包含至少一对重复的核糖体蛋白(RPs),其中, 在许多情况下,一个RP结合Zn2+,而其旁系同源基因则不会8. 虽然C+/C-表示法(表示富含半胱氨酸的Zn2+结合基序)通常用于指代这些旁系同源的核糖体蛋白(RP)配对7,Zn2+-独立的RPs也被描述为初级(Prim)Zn的替代(Alt)版本2+结合RP旁系同源物,因为AltRPs在Zn条件下作为核糖体生物合成的替代RP2+-limited 条件在某些细菌中具有重要意义,且该关键词具有更优的检索性9,10,11.
由于AltRP的表达受到Zn2+的严格调控,因此可以合理推测,在Zn2+受限的情况下,AltRP的表达在功能上可对依赖Zn2+的核糖体蛋白起到冗余作用。事实上,这一特性已在模式土壤细菌Bacillus subtilis中得到证实:在Zn2+受限条件下,通过释放表面的原核核糖体蛋白(PrimRP)L31并以替代性核糖体蛋白(AltRP)L31取而代之,可恢复其生长12,13。然而,某些AltRP与核心PrimRP为旁系同源,例如S14,这意味着它们的整合是在核糖体生物合成过程中必需的12,13。利用AltRP重建核糖体是一个不可逆且耗能较高的过程。尽管这些核心AltRP可能有助于从核糖体中释放Zn2+,但也有可能部分AltRP在Zn2+受限环境中进化出了额外的功能。这一推测得到了以下观察结果的支持:AltRP与其旁系同源的PrimRP存在显著差异;AltRP基因的序列同源性通常在不同物种间的同源基因中更高,反而低于同一物种内结合Zn2+的PrimRP基因序列7,10。由于编码高度分歧的AltRP的基因处于Zn2+依赖性的转录调控之下,因此它们不受严格调控且高度保守的核糖体超级操纵子所施加的选择压力的影响14。核糖体机器遗传信息与AltRP之间选择压力的解耦,使得这些核糖体蛋白(RPs)的进化轨迹不同于同源的PrimRP,从而可能允许相同AltRP在不同细菌中发生谱系特异性的进化10,15。AltRP在细菌中广泛存在,且其遗传调控与典型核糖体蛋白相分离,这引发了一个有趣的问题:将AltRP整合入细菌核糖体是否赋予了含AltRP的核糖体(即Alt-核糖体)某种特殊性质?
分枝杆菌是研究替代型核糖体(Alt-ribosomes)机制特性的理想细菌类群。首先,分枝杆菌拥有一个高度保守的altRP操纵子,其中包含四个编码替代型核糖体蛋白(AltRPs)的基因:S14-2、S18-2、L28-2 和 L33-28,9。分枝杆菌的AltRPs与其主要核糖体蛋白(PrimRP)同源物存在显著差异;在全部四对PrimRP/AltRP中,某一AltRP基因在不同分枝杆菌物种间的相似性均高于其在同一物种内的PrimRP对应基因10。AltRPs在分枝杆菌内部也表现出谱系特异性的进化特征,例如结核分枝杆菌(Mycobacterium tuberculosis)和牛分枝杆菌(M. bovis)中的AltRPs S18-2和L28-2,其C末端具有其他分枝杆菌中不存在的独特序列10。其次,这一亲缘关系密切的细菌类群中既包含非致病性成员,也包含致病性成员,它们存在于多种多样的环境中,从土壤(例如M. smegmatis)到多种宿主,包括人类(例如M. tuberculosis)、牛类(例如M. bovis)、水生生物(例如M. marinum)以及禽类(例如M. avium)等。分枝杆菌中altRP操纵子的高度保守性、特定AltRP基因的谱系特异性进化,以及该类群成员所处环境的巨大差异,为解析AltRP功能及Alt-核糖体机制特性的保守性与谱系特异性进化提供了独特的机会。尽管原核生物基因组中广泛存在AltRPs,但目前仅在少数几种细菌中对AltRPs和Alt-核糖体的功能进行了研究9,10,11,12,13,16,17,18,19。建立一个标准化系统,并采用特定指标来验证分枝杆菌中Zn2+限制性生长条件,将有助于提升实验结果的可靠性,并推动核糖体研究领域对Alt-核糖体的理解。
Zn2+ 是一种微量元素;因此,即使在配制培养基时未添加 Zn2+,化学试剂和水中微量的 Zn2+ 污染仍会贡献其生物可利用性。水或化学试剂中所含 Zn2+ 的痕量水平在不同实验室之间可能存在显著差异,从而影响 Zn2+ 限制性生长的实验结果。对进行常规生长测定的大多数实验室而言,每次独立配制培养基时都经验性地定量 [Zn2+] 过于繁琐,但若能建立一种机制以彻底消除生长培养基中 Zn2+ 污染的可能性,则具有内在的重要价值。为此,本文提供了一种详细的方法,用于制备化学成分明确的 Zn2+ 限制性培养基(ZLM)、培养容器以及种子培养物,以实现 M. smegmatis 和 M. tuberculosis 的 Zn2+ 限制性生长及替代型核糖体(Alt-ribosome)的生产。在 ZLM 中培养后,通过检测关键的形态发生特征(以 OD600 测定的细胞密度、细胞长度以及辅酶 F420 的荧光强度)来验证是否成功实现了 Zn2+ 限制。辅酶 F420 是一种脱氮蝶呤辅因子,在产甲烷菌和分枝杆菌的分解代谢及抗氧化应激防御中具有重要作用20,21。重要的是,由于该辅因子含量丰富,分枝杆菌在 420 nm 激发光照射下会呈现自发荧光22。尽管 [Zn2+] 与 F420 荧光之间的分子关联尚不明确,但监测培养物中 F420 荧光是一种可行且可靠的生物指示方法。
在 M. smegmatis 中,生物指示表型出现在野生型细菌中,而缺失 altRP 操纵子的缺失突变株则不会经历相同的形态发生程序,因此可作为差异性生物指示剂10。 尽管 M. tuberculosis 在 Zn2+ 限制条件下不表现出与 M. smegmatis 相同的形态发生程序,但 M. tuberculosis 对 Zn2+ 限制具有强烈且全局性的响应,并在此方法下表现出关键的生物指示表型23。因此,本文所定义的系统能够在相同的生长条件(即 Zn2+ 限制)下生成 Prim-和 Alt-核糖体,从而有助于解析 Alt-核糖体功能及其在塑造细菌生理过程中的作用。该生长方法已被用于解析活性 Alt-核糖体的结构,并证明其在野生型 M. smegmatis 中的翻译活性24。 进一步支持该生长方法和生物指示表型能够凸显 AltRP 在 Zn2+ 限制期间生物学功能的是:AltRP 的表达对于 Zn2+ 依赖的形态发生至关重要,并对 Zn2+ 限制条件下的 M. smegmatis 转录组和蛋白质组产生显著影响10,25。 相同的方法经过对接种量和培养时间的微小调整后,也可用于生成 Zn2+ 限制条件下的 M. tuberculosis 培养物9,23。本文详细描述了在 M. smegmatis 和 M. tuberculosis 中实现 Zn2+ 限制性生长的实验方案及生物指示表型,重点放在 M. smegmatis 上,因为该细菌对培养基中的 Zn2+ 污染更为敏感,且相较于生长缓慢的病原体更易于获得。
访问受限。请登录或开始试用以查看此内容。
方案
注意:本研究中使用的小鼠品系为野生型 M. smegmatis mc2 155(由波士顿儿童医院Robert Husson博士惠赠)以及ΔaltRP 缺失突变株(源自 Prisic 实验室)10)。根据当地的生物安全法规和可用资源,它们可以在生物安全二级(BSL2)或生物安全一级(BSL1)实验室中进行培养。本实验方案以BSL2实验室条件编写。若在BSL1实验室中操作,可使用本生灯配合无菌操作技术替代生物安全柜。此外,若研究人员希望加入其他菌株或实验条件,需根据所检测培养物的总数计算所需培养基的体积。操作致病性 M. tuberculosis H37Rv(Mtb-H37Rv;由波士顿儿童医院Robert Husson博士惠赠)时,须在三级生物安全实验室(BSL3)内佩戴呼吸防护设备(如PAPR或N95口罩)。培养H37Rv等高毒力分枝杆菌时,不得重复使用培养瓶。营养缺陷型 M. tuberculosis mc26206(Mtb-Aux)为减毒株,可在BSL2实验室中操作(由阿尔伯特·爱因斯坦医学院William R. Jacobs Jr.博士惠赠)。
1. 锥形瓶的准备
注意:锌离子(Zn2+)限制性生长条件应在可重复使用(可高压灭菌)的聚碳酸酯250 mL三角烧瓶中实现。请勿使用玻璃烧瓶进行锌离子(Zn2+)限制性培养,或需自行严格验证并比较酸洗程序,方可参考本方案中所述结果19。全新烧瓶足以满足锌离子(Zn2+)限制性生长条件的要求,但实验中切勿将新旧烧瓶混用。若烧瓶出现破损迹象(通常出现在接缝处)或已使用超过约20次,应予以丢弃。定期检查瓶盖上的滤膜是否发生降解,若完整性受损则应丢弃。如配有可旋紧在瓶盖顶部并覆盖滤膜的金属盖,若存在此类部件,应将其丢弃。本方法概述了清洗烧瓶并准备其重复使用时所采取的预防措施。
- 永久标记烧瓶,确保同一组烧瓶仅用于 Zn2+-限制条件;另标记一组烧瓶用于 Zn2+-充足培养。使用不同颜色进行标记有助于防止混淆。
- 切勿让培养残留物在烧瓶中干燥。倾倒培养液后应立即向烧瓶中加水(例如 100 mL)。若培养结束时未收获培养物,应在记录本方案所述的生物指示表型后,将全部培养物倒入含 10% 终浓度次氯酸钠的液体废液容器中排空烧瓶。
- 将含水并盖好盖子的烧瓶在液体循环模式下高压灭菌(至少 121 °C、15 psi)20 分钟。
- 高压灭菌后,使用非离子低泡洗涤剂并用软毛刷充分刷洗烧瓶。指定专用刷子仅用于清洗 Zn2+-限制培养所用的烧瓶。确保烧瓶清洁,无任何残留物或碎屑。瓶盖不得刷洗或使用肥皂,应以去离子水轻轻冲洗。
- 先用自来水充分冲洗烧瓶,随后用去离子水(II 或 III 级)冲洗三次,并至少再用超纯水(I 级,25 °C 时电阻率为 18.2 MΩ-cm,总有机碳 ≤ 5 ppb)冲洗一次。
- 将烧瓶倒置垂直放置,防止底部积水。不要使用标准的壁挂式实验室晾干架,因其会使烧瓶倾斜并导致少量水积聚。使用普通器皿架即可。让烧瓶和瓶盖完全干燥。
- 干燥后,将瓶盖拧紧至烧瓶上,并用铝箔包裹瓶盖。在铝箔上贴一张高压灭菌指示胶带,以标明无菌状态,并保护瓶盖滤膜免受灰尘污染。
- 将清洗干净的烧瓶再次高压灭菌(至少 121 °C、15 psi)20 分钟,随后启动后真空干燥程序(如高压灭菌器具备此功能)。将烧瓶存放在干燥且防尘的环境中。
2. Zn2+限制培养基(ZLM)的制备
注意:仅使用塑料烧杯、量筒及任何其他器具来制备培养基。指定一套专用的实验器具,仅用于制备限锌(Zn2+)培养基。每次使用前后,均需用超纯(I型)水彻底冲洗所有器具。使用高纯度的化学试剂,并尽可能从同一家供应商购买。
- 制备 Zn2+不含额外添加锌的限量Sauton培养基2+ 盐26 通过将以下化学品与约950 mL超纯水在1 L塑料烧杯中(内含搅拌子)混合:
0.5 g KH2PO4 (0.05%;分子量:136.09)
0.5 g MgSO₄4 x 7H2O (0.05%;分子量:246.48)
2 g 柠檬酸,无水(0.2%;分子量:192.12)
4 g L-天冬酰胺,99%(0.4%;分子量:132.12)
60 mL 甘油(6%)
189 µL1 M 柠檬酸铁铵(0.005%;MW: 265)- 使用一次性塑料50 mL血清移液管加入甘油。通过在培养基中上下移液约10次,充分冲洗移液管,直至其中无残留甘油。
注意:甘油黏度很高,难以准确量取。 alternatively,也可将甘油倒入量筒中,用约30 mL超纯水反复冲洗数次,并将洗涤液加入培养基中。若采用此方法,初始体积应减少(约600 mL),以便在加入甘油及量筒冲洗液后,最终体积不超过约950 mL。
- 使用一次性塑料50 mL血清移液管加入甘油。通过在培养基中上下移液约10次,充分冲洗移液管,直至其中无残留甘油。
- 将培养基体积补至约950 mL,并充分混匀。L-天冬酰胺溶解需要数分钟,需等待无白色絮状物残留后再进行下一步操作。
注意:柠檬酸铁铵溶液使培养基呈淡黄色。 - 在塑料容器(例如 15 mL 离心管)中,用超纯水配制 15 mL 新鲜的 NaOH 溶液(约 10% w/v)。
- 使用前用超纯水彻底冲洗pH计,并仅将pH计的感应球泡浸入培养基中。调节pH时,将pH计置于培养基内并轻轻搅拌。用一次性塑料移液管加入新配制的NaOH,调节至pH 7.4。
注意:培养基的初始 pH 值呈强酸性。需要大量 NaOH 溶液才能将 pH 升至中性范围。最初加入 4–6 mL NaOH 溶液;当 pH 达到约 6.5 后,改为逐滴加入 NaOH 溶液。切勿超过目标 pH 值 7.4。若发生此情况,不得使用 HCl 或其他酸重新调节——应弃去该培养基。建议专用一台 pH 计用于 ZLM 的制备,避免用于测量其他可能污染探针的培养基或缓冲液的 pH 值。 - 将培养基转移至量筒中,用超纯水定容至终体积 1 L。通过滤膜过滤除菌培养基 0.2 µm 一次性过滤瓶
- 无菌加入 2.5 mL 经滤膜除菌的 20% Tween-80 溶液(终浓度 0.05%)。储存于 4 °C 避光保存,最长可达6个月。
3. Zn2+限制生长在 M. smegmatis
注意:由于不同批次的 ZLM 培养基中 Zn2+ 含量存在差异,实验中所有培养物必须使用同一批次的培养基,或将多个批次的培养基充分混合后使用。除建立培养物所需的培养基外,还需额外准备约 100 mL 用于洗涤和标准化种子培养物。
- 所有操作均须在生物安全柜中进行。在开始生长实验前 18 小时准备种子培养物。避免使用过度生长或发生结团的种子培养物。每种菌株准备一份种子培养物即可。
- 无菌操作向 50 mL 生物反应管中加入 5 mL 7H9-ADC 培养基(Middlebrook 7H9 肉汤,含 0.05% Tween 80 和 10% ADC 增补剂[终浓度:0.5% 牛血清白蛋白、0.2% 葡萄糖、0.085% NaCl,可选 0.0003% 过氧化氢酶])。
- 无菌操作将 10 µL 冻存甘油菌种(按文献26方法制备)直接加入培养基中。拧紧管盖。
- 将试管牢固地置于摇床培养箱中,倾斜约 45° 角,使振荡时液体上升至试管约一半高度。
- 在 37 °C 下以 120 rpm 振荡培养约 18 小时。
- 检查过夜培养的种子培养物,确保培养液均匀浑浊且无明显结团。过夜培养物在 600 nm 处的光密度(OD600)理想值约为 0.5–0.8。
- 将用于过夜培养的生物反应管中的培养物在室温下以 3,000 × g 离心 5 分钟,使细胞沉淀。
- 倒出或吸除上清液,并用 5 mL ZLM 重悬。重复离心和重悬步骤两次,共洗涤三次。
- 在离心步骤期间,用 70% 乙醇将比色皿完全充满以进行灭菌。将装满乙醇的比色皿在生物安全柜中静置 10 分钟,然后用移液器以 ZLM 充分冲洗 3 次。
注:细胞归一化过程需要时间和练习才能高效完成。通过在乙醇灭菌的比色皿中直接进行细胞归一化,可显著加快该过程。 - 根据研究中包含的菌株数量准备足够数量的比色皿;例如,本方案需要两个灭菌比色皿,一个用于野生型,另一个用于 ΔaltRP 突变株。
- 在离心步骤期间,用 70% 乙醇将比色皿完全充满以进行灭菌。将装满乙醇的比色皿在生物安全柜中静置 10 分钟,然后用移液器以 ZLM 充分冲洗 3 次。
- 经 ZLM 洗涤三次后,将每份细胞沉淀重悬于 2 mL ZLM 中。
- 使用比色皿,以 600 µL ZLM 空白校准分光光度计。该比色皿无需灭菌。将此比色皿保留备用,在归一化每种培养物(即每种菌株)前用于校准分光光度计。
- 每次处理一种菌株,将步骤 3.5 中洗涤后的 600 µL 细胞转移至步骤 3.4.1 准备的灭菌比色皿中,测定初始 OD600。若 OD600 超过 1,则进入步骤 3.8;若 OD600 低于 1,则执行子步骤 3.7.1 和 3.7.2。
- 若步骤 3.7 测得的初始 OD600 低于 1,将比色皿中的全部培养物收集后,加回离心管中剩余的洗涤后种子细胞中,按步骤 3.3 再次离心。将细胞沉淀重悬于比步骤 3.5 更小的体积中(例如 1 mL),以提高细胞密度,并重复步骤 3.7。
- 若步骤 3.7.1 后 OD600 仍低于 1,则表明培养物密度不足;需从步骤 3.1 重新开始实验。延长培养时间或增加接种量,使过夜培养物终密度达到 OD600 ≈ 0.5–0.8,如步骤 3.2 所述。
- 根据步骤 3.7 测得的 OD600,使用以下公式计算需加入比色皿中 600 µL 洗涤细胞的 ZLM 体积,以获得 OD600 = 1:
ZLM 体积(μL)= (初始 OD600 - 1) × 600 μL - 将步骤 3.8 计算出的 ZLM 体积加入步骤 3.7 准备的比色皿中,用移液器反复吹打 5–10 次充分混匀,重新测定 OD600。
- 根据以下子步骤调整 OD600,使其在 OD600 = 1 的 ±5% 范围内。建议使用两支移液器,其中一支(P1000 规格)专用于混匀培养物,以减少每次调整所消耗的枪头数量。
- 若 OD600 高于 1,逐滴加入 ZLM(每次约 50 µL),用移液器上下吹打 5–10 次充分混匀后测定 OD600。根据需要重复此过程,直至培养物 OD600 落在 ±5% 范围内。
- 若归一化过程中 OD600 低于 1,从步骤 3.5 中加入更多洗涤后的细胞(起始约 20 µL),用移液器上下吹打 5–10 次充分混匀后测定 OD600。根据需要重复此过程(若 OD600 超过 1,则按步骤 3.10.1 加入更多 ZLM),直至 OD600 落在 ±5% 范围内。
- 在细胞归一化过程中,确保比色皿中液体体积不超过约 1.5 mL,以防止在分光光度计中溢出。必要时可在稀释时移除部分培养物。同时确保比色皿中培养物体积高于分光光度计准确测定 OD600 所需的最小体积。大多数分光光度计要求至少 600 µL。
- 对研究中包含的所有菌株和条件重复细胞归一化步骤(3.6–3.10)。
- 根据实验所需烧瓶总数,无菌操作向 250 mL 塑料锥形瓶(按步骤 1 方法准备)中加入 50 mL ZLM。
- 通过无菌操作,直接从比色皿中取 50 µL OD600 = 1 的归一化培养物接种至烧瓶中,使终浓度 OD600 = 0.001(归一化接种物 1:1000 稀释)。
- 对于在无 Zn2+ 限制条件下培养的培养物(即 Zn2+ 充足培养基 ZRM),直接向培养烧瓶中加入 30 µL 无菌 10 mM ZnSO4(用 1 M 无菌母液新鲜配制),使终浓度为 6 µM ZnSO4。
- 在 37 °C 下以 100 rpm 振荡培养 3 天至静止期(接种日为第 0 天)。
- 每天生长期间,使用单色器或滤光片型微量板读数仪,取 200 µL 培养物加入 96 孔平底微量板中,测定以下生长参数。加样后立即读取数据,防止细胞沉降。
注:无需预热读板仪,因为绝对荧光值不如比值和荧光扫描结果重要,且小体积样本在读板过程中会迅速与室温平衡。若盖子上出现冷凝,可从板底部读取荧光,尽管底部读数的荧光强度总体较低。- 细胞密度(即 OD600):为报告微量板读数仪测得的 OD600,需建立标准曲线,将固定体积(例如 200 µL)下微量板光程长度的读数转换为标准 1 cm 光程长度的值。
- 辅因子 F420 的荧光(激发 420 nm/发射 475 nm):对于滤光片型微量板读数仪,使用最接近的滤光片组(例如 激发 430 nm/发射 488 nm)和黑色 96 孔微量板。
- 测定 375 nm 处的背景荧光(激发 375 nm/发射 475 nm)
- 若使用单色器,以 5 nm 步长在激发 230–440 nm 范围内进行荧光强度扫描,固定发射波长为 475 nm。
- 若使用单色器,使用以下公式计算 375 nm 与 420 nm 荧光强度的百分比:
F375/420 (%) = (F375/F420) × 100
4. 记录和测量细胞长度
- 第3天,观察并记录细胞长度。使用无尘擦拭布清洁载玻片和盖玻片。用移液器吸取10 µL培养液滴加到载玻片上,然后将盖玻片直接覆盖在培养液上。轻轻按压盖玻片,使培养液均匀铺展并几乎充满盖玻片下方的整个区域。制备后应立即观察,以防止样品干燥。
注意:如果培养液不易铺展,可能存在杂质影响良好接触,且液体流动会导致难以清晰对焦捕获细胞图像。此时应重新制备新的载玻片。 - 使用配备100倍油镜和10倍目镜(总放大倍数1000倍)及相机附件的复式显微镜(或微分干涉差显微镜,见下文)观察制备好的样品。
注意:使用微分干涉差(DIC)显微镜成像可显著增强对比度,使细胞更易于观察10。若条件允许,建议使用此类显微镜获取高质量图像。对于常规分析及Zn2+限制性生长状态的验证,标准的复式光学显微镜已足够。 - 拍摄载玻片上多个清晰对焦、处于同一焦平面(即细胞全长可见)且静止不动的细胞区域图像。在载玻片的不同区域(或同一培养物的多个载玻片)拍摄足够数量的图像,确保至少测量100个细胞。
- 使用相同的显微镜和物镜,拍摄校准载玻片的图像。
- 在Fiji27软件中,使用直线工具在校准载玻片图像上沿刻度线画一条直线。选择 分析 > 设置比例尺,输入已知距离和单位。勾选 全局 选项,以便将该比例尺应用于所有后续图像和测量。
- 打开显微镜照片。使用直线工具在细胞长度方向画一条线,然后按键盘上的 M 键进行测量。每种培养物至少测量100个细胞。
- 将Fiji弹出窗口中生成的长度数据复制到电子表格软件中,或保存为逗号分隔值(.csv)文件,用于统计分析。
5. 培养锌离子(Zn2+)限制条件下结核分枝杆菌(M. tuberculosis,Mtb)的改良方法
注意:与 Mtb-H37Rv 相比,Mtb-Aux 无法合成 L-亮氨酸和 D-泛酸,因此需在培养基中添加这两种补充物28Mtb-Aux 的补充物不影响 Zn2+ 局限性,且两种菌株在ZLM中表现出相似的表型23该方案改编自先前已发表的方案23,主要区别在于培养时间为8天而非10天,以减少细胞成团并促进单细胞富集,这是巨噬细胞感染等下游应用所必需的。其他次要差异请参考原始文献23接种方法不同于 M. smegmatis 由于启动生长所需的接种量要大得多 M. tuberculosis.
- 对于 Mtb-Aux,所有培养基中需额外补充 50 µg/mL L-亮氨酸和 48 µg/mL D-泛酸。使用 0.2 µm 滤器对 50 mg/mL L-亮氨酸和 48 mg/mL 泛酸钙的 1000 倍浓缩储备液进行过滤除菌,然后加入已灭菌的培养基中。
- 在生物安全柜中,将 1 mL 解冻的甘油菌种细胞无菌加入 14 mL 圆底螺帽管中的 4 mL 7H9-ADC 培养基(用于 Mtb-Aux)或 50 mL 生物反应管中的 7H9-ADC 培养基(用于 Mtb-H37Rv)。
- 在 37 °C 静置培养,直至菌液 OD600 达到约 1,大约需要 1 周时间。每天在生物安全柜中打开管盖,用移液器吹打数次以混匀菌液,进行通气处理。
- 将 1 mL 静置培养物接种至装有 50 mL 7H9-ADC 培养基的 250 mL 透气塑料锥形瓶中。每种菌株和条件(例如野生型在 ZLM 和 ZRM 中)进行生物学重复实验时,一份 50 mL 的 7H9-ADC 培养物已足够。接种前请静置培养物 5–10 分钟,使大团块(即细胞的大聚集体)沉降至管底,取上层菌液进行接种,以避免引入大团块。
注:若接种时含有大团块,将导致菌液出现团块状生长,影响后续培养物的归一化和实验重复性。 - 在 37 °C、100 rpm 振荡条件下培养,直至菌液 OD600 达到 0.5–0.8(对数中期),大约需要 3–5 天。
- 将菌液转移至 50 mL 离心管中,在室温下以 3,000 × g 离心 10 分钟收集菌体。用移液管吸除 40 mL 上清液,再用 P1000 移液器吸除剩余上清液。
注:此步骤至关重要,可减少 7H9-ADC 培养基中 Zn2+ 的残留。 - 用 5 mL ZLM 重悬菌体沉淀,并在离心管中补加 ZLM 至总体积为 50 mL。
- 再次在室温下以 3,000 × g 离心 10 分钟收集菌体,弃去上清液。按照步骤 5.7 所述方法,将菌体沉淀重悬至终体积 50 mL。
- 测定洗涤后种子菌液的 OD600,并根据以下公式计算在 50 mL 培养体系中达到起始 OD600 0.05(Mtb-H37Rv)或 0.08(Mtb-Aux)所需的接种体积:
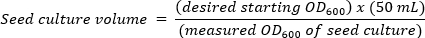
注:Mtb-Aux 在起始 OD600 为 0.05 时生长不稳定,因此采用较高的 OD600 0.08 以确保生长一致性。 - 将步骤 5.9 计算出的种子菌液体积分装至新的 50 mL 离心管中,并用 ZLM 补足至 50 mL。将洗涤并归一化后的菌液从离心管中倾注至步骤 1 中准备好的塑料三角烧瓶中。每种菌株和条件的所有生物学重复均使用同一离心管进行操作。
- 对于在无 Zn2+ 限制条件下培养的菌液(即 Zn2+ 充足培养基 ZRM),直接向培养瓶中加入 30 µL 无菌的 10 mM ZnSO4,使终浓度为 6 µM ZnSO4。
- 将培养瓶置于 37 °C、100 rpm 振荡条件下培养 8 天。在整个培养过程中,按照步骤 3 所述方法测定 OD600 和 F420 荧光值。若在培养初期几天内菌液出现团块状(即菌液不呈均匀浑浊,且可见明显团块),则应弃去该培养物。
注:理想情况下,在培养初期菌液应主要为浮游状态(即肉眼不可见大团块)。结核分枝杆菌菌液,尤其是 ZLM 培养的菌液,随着培养时间延长会逐渐形成更多团块,至对数后期可见团块以片状漂浮于培养基表面,此现象符合预期23。
访问受限。请登录或开始试用以查看此内容。
结果
生物指示剂表型 M. smegmatis
野生型 M. smegmatis 在ZLM中培养并达到Zn的培养物2+-与在锌限制条件下培养的细胞相比,生长受限的细胞表现出三种主要的生物指示表型2+-营养充足条件下:[1] OD值降低600,[2] 细胞伸长,以及 [3] 420 nm 处峰值荧光降低。缺失 AltRPs 的突变体(ΔaltRP) 不具有相同的 Zn2+-依赖的形态发生与野生型相同10, 及其在 Zn 中的独特表型2+-限制性培养基可作为差异性生物指示剂。因此,应首先在ZRM和ZLM中培养的野生型中评估全部三种生物指示指标。如果观察到预期的Zn2+-limited野生型表型被观察到,ΔaltRP 缺失菌株应随后进行评估。在ZLM中生长并不总能达到Zn2+-受限条...
访问受限。请登录或开始试用以查看此内容。
讨论
填补关于替代核糖体(Alt-ribosomes)机制基础知识空白的主要障碍在于难以实现Zn2+限制性条件 体外痕量锌2+ 实验室环境中的污染很常见;因此,获得可重复的锌(Zn)结果具有挑战性2+受限生长条件具有挑战性。Zn2+ 污染可能来自多个来源,尽管最重要且最常见的污染和变异来源是用于冲洗实验器具和配制培养基的超纯水。超纯水系统应得到妥善维护,并在冲洗实验器具或用于配制培养基前,先放水冲洗1分钟。未用超纯水充分清洗或冲洗的烧瓶可能导致锌2+ 污染,这会表现为同一批ZLM中某些培养瓶的细胞密度增加,而其他培养瓶则无此现象。可使用全新的培养瓶来评估Zn的来源是否存在问题2+ 污染来自重复使用的烧瓶或培养基。Zn2+ ZLM 中的污染应通过增加用于制备培养基的物品的冲洗次数,以及使用专门的一套材料来制备 ZLM 予以纠正。如果这些措施均无法成功获得预期的生物指示剂表型,则 [Zn2+] 在超纯水中,应定量检测ZLM,以排除水源为Zn的可能性
访问受限。请登录或开始试用以查看此内容。
致谢
本研究由美国国家科学基金会(NSF)CAREER奖1844854、美国肺脏协会创新奖IA-937538以及美国国立卫生研究院(NIH)国家过敏与传染病研究所R21 AI109293资助,资助对象为S.P。Allexa D. Burger的现任职单位为美国夏威夷州火奴鲁鲁市夏威夷大学马诺阿分校太平洋生物科学研究中心。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1000 mL 真空过滤系统,标准系列 | VWR | 10040-440 | |
| 125 mL 锥形摇瓶 | Greiner Bio-One | 679501 | |
| 14 mL 培养管,塑料,带双位置盖 | VWR | 60818-725 | |
| 250 mL 锥形摇瓶 | Greiner Bio-One | 679502 | |
| 40X-1000X 实验室双目光学生物显微镜 | Omax | M82EZ | |
| 50 mL 生物反应管,无菌 | VWR | 76211-286 | |
| 50 mL 高性能离心管,带标志盖 | VWR | 89039-656 | |
| Alcojet 低泡粉末洗涤剂 | Alconox | 1404 | |
| 柠檬酸铁铵(III),棕色 | Thermo Scientific | AAA1119930 | 分子量:265 g/mol,配制 1M 溶液时将 1.325 g 加入 5 mL 超纯水中;避光保存于 4 °C |
| 牛血清白蛋白 | Thermo Scientific | J10857-A1 | |
| D-泛酸钙 | Thermo Scientific | AC243300050 | |
| 过氧化氢酶 | Sigma-Aldrich | C1345-10G | |
| 无水柠檬酸,结晶状 | Fisher Scientific | BP339-500 | |
| 无水葡萄糖 | Fisher Scientific | D14-500 | |
| Difco Middlebrook 7H9 肉汤 | BD Diagnostics | 271310 | |
| DiluPhotometer OD600,用于细胞密度测定和 Bradford 检测 | Implen | OD600-10 | |
| GENios FL 微孔板读板仪 | Tecan | 已停产 | |
| 甘油 | Fisher Scientific | G33-4 | |
| Infinite M200 PRO 多功能微孔板读板仪 | Tecan | LGE140213-20BL | |
| L-天冬酰胺 | Thermo Scientific | AAB2147336 | |
| L-亮氨酸 | Thermo Scientific | A1231122 | |
| Macrofire SP CCD 相机 | Optronics | 与 Olympus 显微镜配合使用 | |
| 七水硫酸镁 | VWR | 97062-134 | |
| Milli-Q Direct 8 水纯化系统 | Millipore | C85358 | |
| Moticam X3 | Motic | 已停产,由 Moticam X5 Plus 取代;与复合显微镜配合使用 | |
| 油酸 | Thermo Scientific | 031997-14 | |
| Olympus BX51 正置显微镜 | Olympus | 已停产,由 BX53M 取代 | |
| 磷酸二氢钾 | Fisher Scientific | BP362-500 | |
| 半微量双面一次性塑料比色皿 | VWR | 97000-590 | |
| 氯化钠,晶体 | VWR | VW1494-01 | |
| 氢氧化钠 | Fisher Scientific | S318-500 | |
| 吐温 80 | MP Biomedicals | 103170 | |
| 七水硫化锌,结晶状/ACS 级 | MP Biomedicals | 219145290 |
参考文献
- Alloway, B. Soil factors associated with zinc deficiency in crops and humans. Environ Geochem Health. 31 (5), 537-548 (2009).
- Middag, R., de Baar, H. J. W., Bruland, K. W. The relationships between dissolved zinc and major nutrients phosphate and silicate along the GEOTRACES GA02 transect in the west Atlantic ocean. Global Biogeochem Cycles. 33 (1), 63-84 (2019).
- Corbin, B. D., et al. Metal chelation and inhibition of bacterial growth in tissue abscesses. Science. 319 (5865), 962-965 (2008).
- Panina, E. M., Mironov, A. A., Gelfand, M. S. Comparative genomics of bacterial zinc regulons: Enhanced ion transport, pathogenesis, and rearrangement of ribosomal proteins. Proc Natl Acad Sci. 100 (17), 9912-9917 (2003).
- Outten, C. E., O’Halloran, T. V. Femtomolar sensitivity of metalloregulatory proteins controlling zinc homeostasis. Science. 292 (5526), 2488-2492 (2001).
- Merchant, S. S., Helmann, J. D. Elemental economy: microbial strategies for optimizing growth in the face of nutrient limitation. Adv Micro Physiol. 60, 91-210 (2012).
- Makarova, K. S., Ponomarev, V. A., Koonin, E. V. Two C or not two C: recurrent disruption of Zn-ribbons, gene duplication, lineage-specific gene loss, and horizontal gene transfer in evolution of bacterial ribosomal proteins. Genom Biol. 2 (9), RESEARCH 0033(2001).
- Yutin, N., Puigbò, P., Koonin, E. V., Wolf, Y. I. Phylogenomics of prokaryotic ribosomal proteins. PLoS One. 7 (5), e36972(2012).
- Prisic, S., et al. Zinc regulates a switch between primary and alternative S18 ribosomal proteins in Mycobacterium tuberculosis. Mol Microbiol. 97 (2), 263-280 (2015).
- Dow, A., Prisic, S. Alternative ribosomal proteins are required for growth and morphogenesis of Mycobacterium smegmatis under zinc limiting conditions. PLoS One. 13 (4), e0196300(2018).
- Chen, Y. X., et al. Selective translation by alternative bacterial ribosomes. Proc Natl Acad Sci. 117 (32), 19487-19496 (2020).
- Natori, Y., et al. A fail-safe system for the ribosome under zinc-limiting conditions in Bacillus subtilis. Mol Microbiol. 63 (1), 294-307 (2007).
- Gabriel, S. E., Helmann, J. D. Contributions of Zur-controlled ribosomal proteins to growth under zinc starvation conditions. J Bacteriol. 191 (19), 6116-6122 (2009).
- Wolf, Y. I., Rogozin, I. B., Kondrashov, A. S., Koonin, E. V. Genome alignment, evolution of prokaryotic genome organization, and prediction of gene function using genomic context. Genom Res. 11 (3), 356-372 (2001).
- Akanuma, G., et al. Evolution of ribosomal protein S14 demonstrated by the reconstruction of chimeric ribosomes in Bacillus subtilis. J Bacteriol. 203 (10), e00599(2021).
- Owen, G. A., Pascoe, B., Kallifidas, D., Paget, M. S. B. Zinc-responsive regulation of alternative ribosomal protein genes in Streptomyces coelicolor involves Zur and σR. J Bacteriol. 189 (11), 4078-4086 (2007).
- Li, Y., et al. Zinc depletion induces ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 115 (32), 8191-8196 (2018).
- Li, Y., Corro, J. H., Palmer, C. D., Ojha, A. K. Progression from remodeling to hibernation of ribosomes in zinc-starved mycobacteria. Proc Natl Acad Sci. 117 (32), 19528-19537 (2020).
- Graham, A. I., et al. Severe zinc depletion of Escherichia coli. J Biol Chem. 284 (27), 18377-18389 (2009).
- Greening, C., et al. Physiology, biochemistry, and applications of F420- and Fo-dependent redox reactions. Microbiol Mol Biol Rev. 80 (2), 451-493 (2016).
- Gurumurthy, M., et al. A novel F 420 -dependent anti-oxidant mechanism protects Mycobacterium tuberculosis against oxidative stress and bactericidal agents. Mol Microbiol. 87 (4), 744-755 (2013).
- Patino, S., et al. Autofluorescence of mycobacteria as a tool for detection of Mycobacterium tuberculosis. J Clin Microbiol. 46 (10), 3296-3302 (2008).
- Dow, A., et al. Zinc limitation triggers anticipatory adaptations in Mycobacterium tuberculosis. PLoS Pathogens. 17 (5), e1009570(2021).
- Tobiasson, V., Dow, A., Prisic, S., Amunts, A. Zinc depletion does not necessarily induce ribosome hibernation in mycobacteria. Proc Natl Acad Sci. 116 (7), 2395-2397 (2019).
- Dow, A., Burger, A., Marcantonio, E., Prisic, S. Multi-omics profiling specifies involvement of alternative ribosomal proteins in response to zinc limitation in Mycobacterium smegmatis. Front Microbiol. 13, 811774(2022).
- Singh, A. K., Reyrat, J. Laboratory maintenance of Mycobacterium smegmatis. Curr Protoc Microbiol. Chapter 10, Unit10C.1(2009).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Meth. 9 (7), 676-682 (2012).
- Sampson, S. L., et al. Protection elicited by a double Leucine and Pantothenate auxotroph of Mycobacterium tuberculosis in Guinea pigs. Infect Immunity. 72 (5), 3031-3037 (2004).
- Cheeseman, P., Toms-Wood, A., Wolfe, R. S. Isolation and properties of a fluorescent compound factor420, from Methanobacterium strain M.o.H. J Bacteriol. 112 (1), 527-531 (1972).
- Wayne, L. G., Hayes, L. G. An in vitro model for sequential study of shiftdown of Mycobacterium tuberculosis through two stages of nonreplicating persistence. Infect Immunity. 64 (6), 2062-2069 (1996).
访问受限。请登录或开始试用以查看此内容。
重印与许可
