蛋白酶对细菌致病至关重要,可促进侵袭并逃避宿主免疫。以单步法提取细菌胞质和膜蛋白并保持其活性状态极具挑战性。本视频文章展示了从钩端螺旋体(Leptospira)中提取全细胞蛋白,用于明胶酶谱分析,以检测和表征明胶酶。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
本文内容
摘要
摘要
致病菌的蛋白酶通过主动降解宿主的细胞外基质(ECM)组分和细胞屏障、调节宿主免疫应答以及破坏宿主防御系统,促进病原体的侵袭和致病过程。这使得蛋白酶成为最具毒力的分子之一,因此对其鉴定和表征对于疾病预防与控制至关重要。许多细菌还具有外膜结合型蛋白酶。由于这些蛋白酶定位于外膜内,将其以活性形式分离和表征面临重大技术挑战。本研究中,我们展示了一种单步法,用于从钩端螺旋体(Leptospira)中提取胞质和外膜相关的明胶酶,并通过酶谱法检测其酶活性。该方法利用脱氧胆酸钠破坏细胞膜以释放结合蛋白,同时使用6-氨基己酸将释放的膜蛋白以天然构象溶解。此外,我们展示了钩端螺旋体明胶酶的酶谱分析结果。该策略为从多种细菌病原体中分离、纯化和表征金属蛋白酶、胶原酶和明胶酶提供了一个通用的技术框架。
引言
大多数细菌病原体在致病过程中侵入并扩散至靶器官时,必须接触宿主的细胞外基质(ECM)。胶原蛋白是动物组织ECM中的主要成分1。明胶酶是一类作用于胶原蛋白及其水解产物明胶的蛋白酶。ECM的降解主要由一组蛋白酶执行,其中包括胶原酶和明胶酶2,3。细菌病原体利用胶原酶和明胶酶重塑或降解宿主ECM,以利于其侵袭和致病过程4,5。细菌来源的ECM降解酶是疫苗和药物靶向的潜在候选分子5。
细菌蛋白酶以分泌形式和膜结合形式存在6,7,8,9。许多细胞酶提取方法在分离膜结合型细菌明胶酶和胶原酶时效果不佳,因为这些方法可能无法有效保持膜结合蛋白的天然构象。同样,也存在仅针对膜结合蛋白酶和明胶酶的特异性提取方法。传统的总蛋白(包括膜蛋白)提取方法通常使用去垢剂和变性离子,这可能会影响酶的活性。因此,一种能够维持酶活性和溶解性的提取方法对于电泳分离至关重要,并可实现酶谱分析以检测蛋白酶活性。
脱氧胆酸钠是一种离子型去污剂,可通过破坏细胞膜裂解细胞,从而释放细胞内容物及膜蛋白。6-氨基己酸能够以其天然形式溶解所释放的膜蛋白。使用6-氨基己酸进行溶解的优势在于其不影响电泳过程。本文展示了利用脱氧胆酸钠和6-氨基己酸提取细胞内及膜结合型细菌蛋白酶,并将其稳定于天然可溶形式10,11,12。该方法可有效溶解来自细胞和膜的蛋白质,且可直接用于后续实验,不会干扰电泳分析13,14。根据具体应用需求,可通过改变活化缓冲液中使用的蛋白酶抑制剂和金属离子,进行多种酶学特性表征。
访问受限。请登录或开始试用以查看此内容。
方案
1. 细菌明胶酶的提取
注意:试剂和材料的配制详见表1。
- 在含有10 mg/mL牛血清白蛋白的Ellinghausen McCullough Johnson Harris(EMJH)培养基中,于30 °C条件下培养该生物体。取处于对数生长期中期、含3.5 × 10⁸ 个细胞/mL的10 mL Leptospira 培养物用于蛋白酶提取13,14。使用暗视野显微镜下Petroff-Hausser计数板进行直接显微镜计数,以观察对数生长期中期的生长状态。
- 在6,000 × g 条件下离心10分钟收集细胞,并将上清液弃入容器中,在121 °C下高压灭菌60分钟以进行去污处理。
- 将沉淀重悬于1 mL洗涤缓冲液中,转移至1.5 mL微量离心管,在6,000 × g 条件下离心5分钟。重复此洗涤步骤一次。
- 向来自10 mL培养物的Leptospira沉淀中加入100 µL提取缓冲液,涡旋振荡5分钟以提取蛋白质。随后在4 °C下孵育1小时继续提取。在4 °C、15,000 × g 条件下离心10分钟收集提取的蛋白质,将沉淀弃入容器中,在121 °C下高压灭菌60分钟以进行去污处理。
- 将蛋白提取物与等体积的2×上样缓冲液混合后,直接用于zymography分析。
- 采用Bradford法测定蛋白浓度。
- 若蛋白浓度较低,可通过丙酮沉淀法进行浓缩:将蛋白样品与4倍体积的丙酮混合以促进沉淀,并在-20 °C下过夜孵育。次日,在10,000 × g 条件下离心10分钟,将所得沉淀在空气中干燥,然后重悬于PBS中或溶解于所需缓冲液中,于-20 °C保存不超过1个月。长期保存或运输时可采用冷冻干燥法。
注意:由于提取物中含有活性蛋白酶且未添加蛋白酶抑制剂,样品中的蛋白质可能发生降解。
2. 明胶酶的酶谱分析
- 明胶共聚丙烯酰胺凝胶的制备
- 分离胶
- 按所需用量将各组分加入50 mL烧杯中配制分离胶混合液。向3.86 mL水中加入2.5 mL Tris-HCl(pH 8.8)、0.1 mL 10%明胶储备液、3.34 mL丙烯酰胺-双丙烯酰胺溶液(ABA)、0.1 mL 10% SDS、0.006 mL TEMED和0.1 mL 10%过硫酸铵,充分混匀,避免产生泡沫和气泡。所提及的系统(常规玻璃板;18 × 8 cm)需要10 mL分离胶混合液。
注意:若明胶来自冷冻分装样品,需完全融化至溶液澄清无结块。过硫酸铵应在灌胶前立即加入,因为一旦加入即刻启动聚合反应。 - 将分离胶混合液倒入制胶腔,液面高度应低于加样孔底部标记约3–5 mm。避免混入气泡。
- 缓慢加入适量水,在胶表面形成约1 mm厚的均匀水层,并去除气泡。静置1小时使胶完全凝固。
注意:可通过观察水层与凝胶之间的相分离现象确认凝胶形成;即使倾斜胶板,凝胶也不会流出。
- 按所需用量将各组分加入50 mL烧杯中配制分离胶混合液。向3.86 mL水中加入2.5 mL Tris-HCl(pH 8.8)、0.1 mL 10%明胶储备液、3.34 mL丙烯酰胺-双丙烯酰胺溶液(ABA)、0.1 mL 10% SDS、0.006 mL TEMED和0.1 mL 10%过硫酸铵,充分混匀,避免产生泡沫和气泡。所提及的系统(常规玻璃板;18 × 8 cm)需要10 mL分离胶混合液。
- 浓缩胶
- 通过混合以下组分配制浓缩胶。向10 mL烧杯中的1.84 mL水中加入2.5 mL Tris-Cl(pH 6.6)、0.35 mL ABA、0.03 mL 10% SDS和0.006 mL TEMED。厚度为1 mm的8 × 10 cm系统需要3 mL浓缩胶混合液。
- 将制胶装置倾斜,用窄条滤纸从一角吸除凝胶顶部的水分。
- 向步骤2.1.2.1所述混合液中加入0.03 mL 10% APS,混匀时避免产生气泡。
- 将浓缩胶倒入已凝固的分离胶上,立即插入梳子,确保梳齿下方无气泡,浓缩胶厚度控制在分离胶与梳齿底部之间3–5 mm。静置至少3小时,确保明胶完全聚合和交联。
- 取出下部垫片,将凝胶固定于电泳装置中。
- 缓慢将凝胶放入含有1×电极缓冲液的电泳槽中,确保凝胶底部无气泡滞留。
- 分离胶
- 样品制备
- 向提取物中加入等体积的上样缓冲液,在37 °C孵育30分钟,使SDS充分结合蛋白质。以含2 µL人血清与等体积上样缓冲液的样品作为阳性对照。
- 加样
- 使用细尖移液器或Hamilton注射器(0.5–1 mL)小心将样品加入加样孔中。缓慢加入电极缓冲液,填充剩余加样孔、凝胶上层及电泳槽上室,注意不要扰动已加载的样品。
注意:每次使用Hamilton注射器前后应彻底清洗,防止样品交叉污染。
- 使用细尖移液器或Hamilton注射器(0.5–1 mL)小心将样品加入加样孔中。缓慢加入电极缓冲液,填充剩余加样孔、凝胶上层及电泳槽上室,注意不要扰动已加载的样品。
- 电泳运行
- 以每块凝胶6 mA的电流开始电泳,运行至染料前沿进入分离胶后,将电流提高至每块凝胶12 mA,继续电泳直至染料前沿距凝胶底部约1 cm处。
注意:电泳时间可能因ABA浓度及目标蛋白大小而异。
- 以每块凝胶6 mA的电流开始电泳,运行至染料前沿进入分离胶后,将电流提高至每块凝胶12 mA,继续电泳直至染料前沿距凝胶底部约1 cm处。
- 标记标准蛋白条带方向
- 电泳结束后,使用玻璃板分离工具或塑料刮刀小心拆开玻璃板,通过切除凝胶右下角标记样品加载方向,并通过在附近打孔或扫描凝胶的方式标记预染蛋白Marker条带位置。
- 酶活性的复性
- 将凝胶完全浸入含Triton X-100的复性溶液中,置于凝胶托盘内,在室温下静置孵育30分钟,不摇动。
注意:Triton X-100可使蛋白复性,因为zymogram凝胶中已分离的蛋白可能因SDS存在而变性并丧失活性。
- 将凝胶完全浸入含Triton X-100的复性溶液中,置于凝胶托盘内,在室温下静置孵育30分钟,不摇动。
- 蛋白酶活性孵育
- 将复性溶液更换为完全浸没凝胶的活化缓冲液,在37 °C恒温培养箱中孵育18小时。
注意:可根据需要,在活化缓冲液中添加特定蛋白酶的抑制剂或激活剂,以表征蛋白酶活性。
- 将复性溶液更换为完全浸没凝胶的活化缓冲液,在37 °C恒温培养箱中孵育18小时。
- zymogram染色
- 孵育结束后,移除活化缓冲液,用清水短暂冲洗凝胶1分钟,以去除残留的Triton X-100,防止振荡时产生泡沫。
- 向托盘中加入染色液,确保凝胶完全浸没。以低速轻轻振荡,避免损伤凝胶。持续染色至凝胶整体变为蓝色。
- 用清水冲洗凝胶表面1分钟,去除多余染料。加入脱色液并轻轻振荡。多次更换新鲜脱色液,直至蓝色背景上的蛋白水解条带达到理想对比度。
注意:脱色过程中应持续观察凝胶,防止过度脱色,确保蛋白水解条带可见并可记录。 - 使用凝胶成像系统或文档扫描仪扫描凝胶,并通过与蛋白标准品比较确定蛋白条带的分子质量。
访问受限。请登录或开始试用以查看此内容。
结果
结果展示了钩端螺旋体蛋白和人血清中明胶酶的酶谱。如图1所示,蛋白酶在蓝色背景上表现为白色透明条带。这些条带代表共聚的明胶被降解因而未被染色的区域,而凝胶其他区域因含有明胶而被染成蓝色。此外,结果还显示,尽管明胶本身也是一种蛋白质,但由于其与丙烯酰胺共聚,因此在电泳过程中不会被洗脱。这说明了共聚以及正确配比和充分聚合时间的重要性。
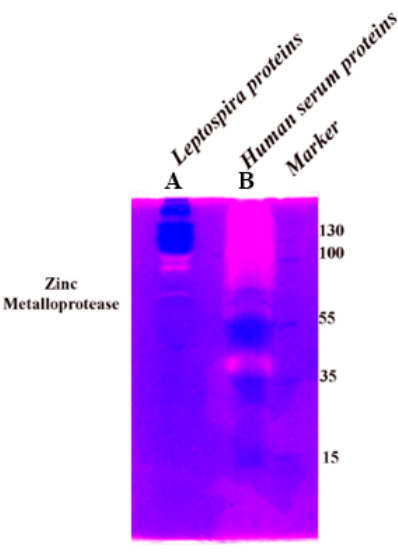
图1:显示明胶酶活性的酶谱图。 在未消化明胶形成的蓝色背景中,含有钩端螺旋体(Lepto...
访问受限。请登录或开始试用以查看此内容。
讨论
在制备丙烯酰胺凝胶的过程中,明胶与丙烯酰胺聚合物基质共聚。因此,共聚的明胶被固定在凝胶内部,在电泳过程中不会发生迁移,即使它是一种蛋白质。电泳结束后,使用脱氧胆酸钠和6-氨基己酸缓冲液提取的天然蛋白质会根据其质量和电荷进行分离。去除SDS后,这些蛋白质在Triton X-100存在下复性,并恢复其活性。在天然条件下,根据各种明胶酶的需求,酶会降解共聚的明胶,导致该区域无法被考马斯亮蓝染色。染色后的凝胶经扫描后,可通过密度测定法对这些条带进行定量分析。
本实验所采用的提取方法足以从细菌细胞中提取处于天然状态的总蛋白。由于蛋白酶具有水解特性,在生物系统中通常受到严格调控,因此它们可能以无活性的酶原形式被合成并储存。这些酶可能需要通过多种方法进行激活,例如使用4-氨基苯汞乙酸盐(APMA)。该方法适用于提取天然蛋白质,用于蛋白质纯化、多种酶活性分析以及酶谱分析。
通过向激活缓冲液中添加蛋白酶抑制剂,例如乙二胺四乙酸(EDTA)、乙二醇双(2-氨基乙基醚)四乙酸(EGTA)、苯甲基磺酰氟(PMSF)、1,10-邻菲啰啉(o-PA)、亮...
访问受限。请登录或开始试用以查看此内容。
披露
作者声明无利益冲突。
致谢
作者感谢新德里科学技术部科学与工程研究委员会(SERB)通过资助编号SR/S0/HS/0108/2012对MGM的支持
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 6-氨基己酸 | Merck | A2504 | |
| 乙酸 | Sigma | 695092 | |
| 丙酮 | Sigma | 32201 | |
| 丙烯酰胺 | Sigma | A-3553 | |
| 过硫酸铵 | Sigma | A-3678 | |
| 双丙烯酰胺 | Sigma | M7279 | |
| 牛血清白蛋白V组分(BSA) | Sigma | A-8022 | |
| 溴酚蓝 | Sigma | B-8026 | |
| CaCl2 | Merck | C4901 | |
| 考马斯亮蓝 | Sigma | 1.12553 | |
| 脱氧胆酸钠 | Sigma-Aldrich | D6750 | |
| Ellinghausen–McCullough–Johnson–Harris (EMJH) 培养基,Difco | Difco | 279410 | |
| 明胶 | Merck | G9382 | |
| 甘油 | Merck | G5516 | |
| 甘氨酸 G8790 | Sigma | G-8898 | |
| 钩端螺旋体问号群哥本哈根血清型菌株 Fiocruz L1-130 (ATCC BAA-1198) ,保存于ICMR-RMRC Portblair生物样本库 | 保存于ICMR-RMRC Port Blair生物样本库 | 最适生长温度 30 °C | |
| 氯化镁 M8266 | Sigma | M8266 | |
| 甲醇 | Sigma | 17995-7 | |
| 磷酸盐缓冲液 | Sigma | P4417 | |
| 制胶分离工具 | Wonder Wedgle | ||
| 转子 | Thermoscientific | FIBERLite F15 8x50 cy | |
| 十二烷基硫酸钠(SDS) | Sigma | L-4396 | |
| TEMED | Sigma | T-9281 | |
| 吐温X-100 | Sigma-Aldrich | T8787 | |
| Trizma碱(TRIS) | Sigma | T6066 |
参考文献
- Yue, B. Biology of the extracellular matrix. J Glaucoma. 23 (8 Suppl 1), S20-S23 (2014).
- Cabral-Pacheco, G. A., et al. The roles of matrix metalloproteinases and their inhibitors in human diseases. Int J Mol Sci. 21 (24), 1-53 (2020).
- Ambili, M., Jayasree, K., Sudhakaran, P. R. 60K gelatinase involved in mammary gland involution is regulated by β-oestradiol. Biochim Biophys Acta. 1403 (3), 219-231 (1998).
- Zhang, Y. -Z., Ran, L. -Y., Li, C. -Y., Chen, X. -L. Diversity, structures, and collagen-degrading mechanisms of bacterial collagenolytic proteases. Appl Environ Microbiol. 81 (18), 6098-6107 (2015).
- Duarte, A. S., Correia, A., Esteves, A. C. Bacterial collagenases - A review. Crit Rev Microbiol. 42 (1), 106-126 (2016).
- Madathiparambil, M. G., Cattavarayane, S., Perumana, S. R., Manickam, G. D., Sehgal, S. C. Presence of 46 kDa gelatinase on the outer membrane of Leptospira. Curr Microbiol. 62 (5), 1478-1482 (2011).
- Kramer, R. A., Zandwijken, D., Egmond, M. R., Dekker, N. In vitro folding, purification and characterization of Escherichia coli outer membrane protease OmpT. Eur J Biochem. 267 (3), 885-893 (2000).
- Kum, S. L., Ho, J. C. S., Parikh, A. N., Liedberg, B. Amphiphilic membrane environments regulate enzymatic behaviors of Salmonella outer membrane protease. ACS Bio Med Chem Au. 2 (1), 73-83 (2022).
- Sarma, A., et al. Extracellular proteome analysis shows the abundance of histidine kinase sensor protein, DNA helicase, putative lipoprotein containing peptidase M75 domain and peptidase C39 domain protein in Leptospira interrogans grown in EMJH medium. Pathogens. 10 (7), 852(2021).
- Seddon, A. M., Curnow, P., Booth, P. J. Membrane proteins, lipids and detergents: not just a soap opera. Biochim Biophys Acta. 1666 (1-2), 105-117 (2004).
- Levy, D., Gulik, A., Seigneuret, M., Rigaud, J. L. Phospholipid vesicle solubilization and reconstitution by detergents. Symmetrical analysis of the two processes using octaethylene glycol mono-n-dodecyl ether. Biochemistry. 29 (40), 9480-9488 (1990).
- Lichtenberg, D., Ahyayauch, H., Alonso, A., Goñi, F. M. Detergent solubilization of lipid bilayers: a balance of driving forces. Trends Biochem Sci. 38 (2), 85-93 (2013).
- Schägger, H., Cramer, W. A., von Jagow, G. Analysis of molecular masses and oligomeric states of protein complexes by blue native electrophoresis and isolation of membrane protein complexes by two-dimensional native electrophoresis. Anal Biochem. 217 (2), 220-230 (1994).
- Schägger, H., von Jagow, G. Blue native electrophoresis for isolation of membrane protein complexes in enzymatically active form. Anal Biochem. 199 (2), 223-231 (1991).
- Zeug, A., et al. Current microscopic methods for the neural ECM analysis. Prog Brain Res. 214, 287-312 (2014).
- Madathiparambil, M. G., et al. A zymography analysis of proteinase activity present in Leptospira. Curr Microbiol. 62 (3), 917-922 (2011).
访问受限。请登录或开始试用以查看此内容。
重印与许可
