本文介绍了在小鼠和大鼠中使用物理束缚应激诱导应激反应的操作步骤,并讨论了在啮齿类动物模型中选择和使用束缚应激时应考虑的其他因素。
本文内容
摘要
摘要
在所有动物物种中,暴露于应激条件下均会引发应激反应。使用啮齿类动物模型研究应激影响的一种方法是束缚应激实验。多年来,束缚应激已被用于研究应激对生理学、遗传学、神经生物学、免疫学及其他系统的影响。由于该方法操作简便、成本低廉,并可通过多种方式调整应激的强度和持续时间,因此已有大量文献在小鼠和大鼠中采用束缚应激进行研究。例如,本研究展示了先前发表的数据,说明束缚应激对转基因小鼠血浆皮质酮水平以及光遗传学诱导的去甲肾上腺素释放的影响。急性束缚应激可升高血浆皮质酮水平,但在经历重复束缚应激的小鼠中,该效应减弱。然而,在终纹床核中,仅在重复束缚应激组中观察到刺激诱导的去甲肾上腺素释放增加。这些数据强调了束缚参数对依赖性测量指标的重要影响。本文还包含了对大鼠中束缚应激的进一步描述,以供比较。最后,讨论了束缚参数(如急性与慢性)以及动物受试者特征(品系、性别、年龄)的影响。
引言
由于压力是普遍存在的体验,关于压力暴露后反应改变机制的研究几十年来一直是持续的研究领域1。这些研究开始区分压力的不同方面:某些压力经历可能有助于增强对急性应激源的适应性和反应能力,而另一些长期或反复、不可预测的压力暴露则可能导致生理和行为功能的不良改变。许多对应激源的反应会影响大脑功能、下丘脑-垂体-肾上腺(HPA)轴、自主神经系统的交感与副交感分支以及免疫系统。应激源暴露会引发促肾上腺皮质激素释放因子(CRF)释放增加,从而促进促肾上腺皮质激素(ACTH)以及糖皮质激素(如灵长类和其他多数哺乳动物中的皮质醇,以及啮齿类动物中的皮质酮)的分泌2。此外,作为交感神经系统反应的一部分,肾上腺素和去甲肾上腺素也会在全身及大脑中释放3。这些化学信号随后与多种生理系统相互作用,包括免疫功能、代谢、生殖以及神经元的反应性4。
应激性经历与多种状况相关,包括焦虑和抑郁程度升高、学习与记忆功能改变、决策能力和执行功能受损,以及物质使用障碍易感性增加等。上述每种效应均取决于应激源的参数以及经历应激的个体特征4。应激源的性质,如急性或慢性、可控或不可预测,会显著影响所观察到的结果。这些应激特征在人类经历与动物模型之间表现出一致性。因此,在动物研究中建立应激模型时,必须审慎选择适合该物种、性别和状态的应激暴露参数。
尽管已有多种应激源可用于啮齿类动物研究(包括社会隔离应激或社会挫败等心理社会应激、皮质醇或育亨宾给药等药理学应激、足底电击和束缚等物理应激,以及结合或交替不同条件的多模式应激),但本文的重点是束缚应激在小鼠和大鼠中的应用。与其他应激方式相比,束缚应激可能更受青睐,因其操作简便、成本低廉、可适用于不同体型的啮齿类动物,能够灵活调整为急性或长期实验,并且极少对实验对象造成不良伤害5。尽管本文主要关注束缚应激暴露所诱导的持久性变化,但也有部分研究利用啮齿类动物的束缚模型来探究束缚期间发生的机制和行为,包括与逃避应激源相关的主动应对行为6,7,8,9。本文的目标是提供评估束缚应激对小鼠或大鼠影响的方法学考量。
方案
实验和方案已获得北卡罗来纳大学教堂山分校(小鼠)和费尔菲尔德大学(大鼠)机构动物照护与使用委员会(IACUC)的批准,并遵循美国国立卫生研究院(NIH)的指南10。
1. 小鼠的束缚应激
注意:在研究应激对生理和神经系统的效应时,小鼠具有多种优势。由于转基因小鼠品系广泛可用,使得针对基因与应激暴露之间相互作用的机制研究易于实现。无论使用转基因小鼠还是野生型小鼠,均建议考虑其背景品系的影响。此外,由于小鼠体型较小且可群养,相较于其他物种在空间利用上更具优势。
- 束缚应激暴露
- 将小鼠随机分配至笼内对照组、急性束缚应激组或慢性束缚应激组。
- 确定应激暴露的持续时间。对于急性应激,采用单次持续5分钟至12小时的束缚处理,小鼠被限制在束缚装置内。对于慢性应激,每次束缚时长应与急性应激相同,但需每日重复,持续时间可短至3天,长至21天。
注意:由于小鼠在束缚期间无法接触食物和水,需考虑笼内对照组动物是否也应限制食物和水的获取。 - 改造50 mL圆锥形离心管,添加通风孔。
- 使用配备1/8"钻头的电钻,在每个离心管周围均匀打孔,确保管内各区域均有空气流通。
- 打孔位置应确保无论小鼠在管内朝向如何,均能获得空气。改造后应确保无锋利边缘残留。
注意:这些改造后的离心管适用于大多数成年小鼠(约20–40 g),但可能无法有效束缚体型较小/年幼的小鼠或体型较大的品系。
- 在独立于动物饲养区和行为测试区的实验室内,将接受束缚处理的小鼠放入已改造的离心管中,并盖上管帽,将小鼠固定在管内,持续指定的束缚时间。
注意:测试室的具体设计可根据实验设施的空间条件进行调整;房间内可配备通风橱和其他实验设备、实验台/工作台,或仅为一间空置的操作室。但无论房间配置如何,多次束缚暴露期间,束缚室的环境应保持一致,以避免环境因素引起应激反应的改变11。 - 将束缚管水平放置于平坦表面上。如有需要,可用实验室胶带或移液器托盘/试剂槽固定管体,防止其随小鼠活动而滚动。
注意:在应激条件下,小鼠会发出超声波叫声。需考虑实验设计是否要求对不同束缚个体之间进行声音隔离12。皮质酮及其他应激反应标志物具有昼夜节律性,因此应考虑光照条件和应激施加的时间。各应激组的束缚处理应在每天相同时间进行,建议在光周期早期进行13,14,15。本研究所采用的方案中,小鼠在开灯后约3小时开始束缚。 - 在束缚应激期间,至少每20分钟监测一次每只动物,观察其是否出现异常反应(如呼吸缓慢、无活动)。若发现异常,应立即将小鼠从束缚管中取出,联系兽医,并将其排除在研究之外。
- 将小鼠放回笼内,并提供食物和水的获取。
2. 大鼠的束缚应激
注意:作为体型较大的啮齿类动物,大鼠在研究应激影响时具有一些需要考虑的优势。与小鼠类似,大鼠也有多种品系,对施加的应激具有不同的反应16,17。此外,由于大鼠体型更大,使其在某些行为学测量中更易于操作,例如药物自我给药实验。
- 束缚应激暴露
- 将大鼠随机分配至笼内对照组、急性束缚应激组或慢性束缚应激组。
- 确定应激暴露的持续时间。对于急性应激,采用单次持续5分钟至12小时的束缚;对于慢性应激,每次束缚时长应与急性应激相同,但需每日重复,持续3天至21天不等。
注意:由于大鼠在束缚期间无法获取食物和水,需考虑笼内对照组动物是否也应限制食物和水的获取。 - 若使用市售的束缚管,请按以下步骤操作。
注意:市售的大鼠束缚管有多种类型,包括金属丝制、容器式以及塑料/有机玻璃管,后者可选择圆底或平底设计。所有类型均易于使用。- 将大鼠放入装置中,插入根据动物体型调整的堵头并固定。放置时应确保大鼠被紧密固定,无法头尾翻转,但可顺畅呼吸。
注意:此类装置专为大鼠束缚设计,无需额外改装即可保障呼吸。本研究使用尾静脉采血用束缚装置(材料表),其管下平台配有吸盘以固定装置。该装置的额外优势在于,大鼠尾部可伸出装置外,便于在放入或取出动物时进行操作,或在束缚期间进行尾静脉采血。
- 将大鼠放入装置中,插入根据动物体型调整的堵头并固定。放置时应确保大鼠被紧密固定,无法头尾翻转,但可顺畅呼吸。
- 在与动物饲养区和行为测试区分离的实验室内,将需进行束缚处理的动物放入束缚管中,持续指定时间。将束缚管水平放置于平坦表面上。
注意:在应激条件下,大鼠会发出超声波叫声。需考虑实验设计是否需要对其他被束缚动物进行声音隔离。 - 在束缚应激期间,至少每20分钟监测一次动物状态,观察其是否出现异常反应(如呼吸缓慢、无活动)。若发现异常,应立即将大鼠从束缚管中移出,联系兽医,并将其排除出研究。
- 将大鼠放回笼内,并提供食物和水的获取。
3. 应激评估
- HPA轴激活的测量
- 如适用,在束缚应激暴露或从笼中取出后,迅速将实验对象断头,以采集躯干血至肝素化试管中。
- 通过离心分离血浆,并将血浆样本储存在 -80 °C。使用酶联免疫吸附测定(ELISA)试剂盒分析血液中的皮质酮水平。
注意:尽管皮质酮常被用作应激暴露严重程度的指标,尤其是急性应激,但皮质酮水平并不总是与应激诱导的行为变化相关6。此外,调控皮质酮释放的HPA轴反应在反复暴露于相同应激源时会出现适应性减弱18。相比之下,促肾上腺皮质激素(ACTH)可能是评估急性应激强度更可靠的指标4。ACTH在应激停止后约一小时内仍保持升高,但严重且持续时间较长(约> 2 h)的应激可能导致其分泌衰竭。
- 行为学效应
- 如适用,在束缚应激暴露或从笼中取出后,使用适当的行为任务评估啮齿类动物的行为表现。
注意:有关束缚对各种行为模型影响的进一步信息可参见讨论部分。
- 如适用,在束缚应激暴露或从笼中取出后,使用适当的行为任务评估啮齿类动物的行为表现。
- 神经生物学
- 作为替代或补充方法,可在束缚应激暴露或对照处理后评估神经生物学功能。多种检测方法可用于研究束缚应激对细胞、突触及神经环路的影响。根据所选检测方法,可植入 in vivo 测量装置,或采集脑组织以进行选定的分析。
注意:McEwen及其同事已全面综述了应激对细胞类型特异性蛋白合成及表观遗传修饰的影响1。这些基因和蛋白质的改变可诱导可塑性,从而改变突触连接和神经环路。为开展此类研究,可在应激暴露后采集脑组织,进行基因组学、蛋白质组学、离体生理学及其他相关分析。或者,可通过in vivo测量技术(如微透析、快速扫描循环伏安法(FSCV)、光纤光度法等)评估神经生物学变化。这些方法可在束缚应激暴露后2,19 ,甚至在束缚过程中8,9,20,记录神经化学物质释放和神经元活动。用于研究束缚应激神经生物学机制的工具正在迅速扩展,为深入理解应激的复杂性提供了新的视角。
- 作为替代或补充方法,可在束缚应激暴露或对照处理后评估神经生物学功能。多种检测方法可用于研究束缚应激对细胞、突触及神经环路的影响。根据所选检测方法,可植入 in vivo 测量装置,或采集脑组织以进行选定的分析。
结果
在先前发表的一项研究21中,本论文所述的束缚应激操作被用于评估束缚应激对皮质醇和去甲肾上腺素调控的影响,这属于方案3.3中提到的应激诱导神经生物学改变的广泛可能性范畴。在本研究中,我们采用了上述小鼠束缚方案。有关超出本文束缚操作重点的更多细节,例如脑区选择依据、光遗传学刺激参数或快速扫描循环伏安法(FSCV)等,可在所引用的论文中找到。
我们使用了表达通道视紫红质的雄性和雌性转基因小鼠(DBH:Cre+/-::Ai32+/-),该蛋白在去甲肾上腺素能神经元中特异性表达,并通过离体快速扫描循环伏安法(FSCV)21检测终纹床核(BNST)中刺激诱导的去甲肾上腺素释放。小鼠分别接受急性束缚(2小时)和慢性束缚(每天2小时,持续5天)处理,对照组小鼠置于正常饲养笼中,束缚方法如方案1所述。暴露处理后,部分小鼠采集血液用于皮质酮分析,方法见方案3.1。急性束缚应激后,小鼠的皮质酮水平显著升高,但重复应激后的反应减弱(见图1)。另取小鼠用于评估束缚应激对去甲肾上腺素释放的影响。在最后一次应激暴露后24小时,迅速取出脑组织并制备脑片,以记录BNST中的去甲肾上腺素释放。有趣的是,急性束缚并未影响刺激诱导的去甲肾上腺素释放,但重复应激暴露在多种刺激参数下均导致刺激诱导的去甲肾上腺素释放显著增加(见图2)。这些结果与先前利用方案2所述方法研究束缚应激对大鼠去甲肾上腺素释放影响的研究结果一致17,22。

图1:家庭笼养对照组(未处理)小鼠以及急性(单次)和慢性(重复)束缚应激后血浆中的皮质酮水平。在经历一次2小时的急性束缚应激后,小鼠血浆皮质酮水平较未处理组和重复应激组均显著升高。结果以均值 ± 标准误表示。N = 每组5–6只小鼠。**p < 0.05,***p < 0.005。本图经许可修改自 Schmidt 等人21。 请点击此处查看该图的放大版本。
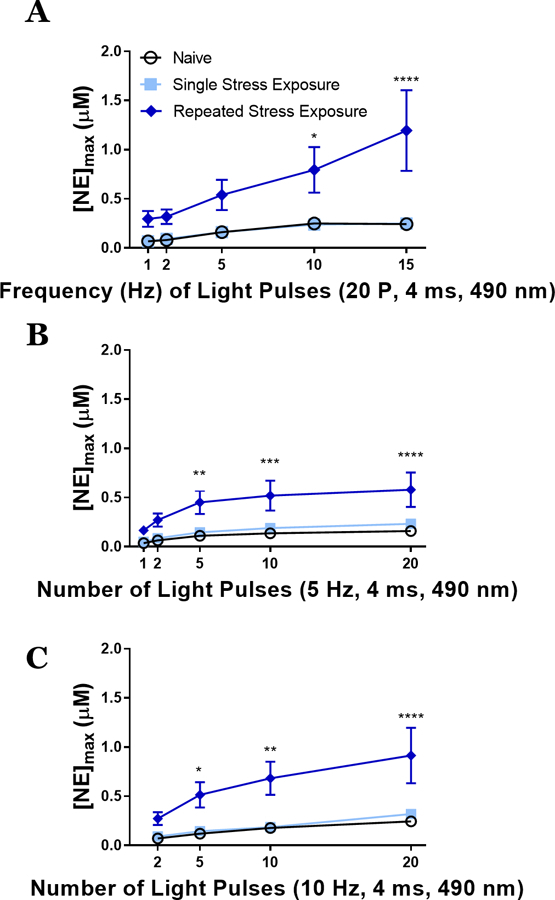
图 2:慢性(重复)束缚应激后,光遗传学刺激的去甲肾上腺素释放增加。 在最后一次应激暴露后的第二天,采用离体快速扫描循环伏安法测量小鼠终纹床核中光遗传学刺激诱导的去甲肾上腺素释放。(A) 在重复应激组中,20 次脉冲(20 P)刺激在不同频率(Hz)下释放的去甲肾上腺素更多。(B, C) 在 5 Hz (B) 或 10 Hz (C) 的固定频率下,改变脉冲次数(2–20)的刺激显示,重复应激组的去甲肾上腺素释放量更高。数据以均值 ± 标准误表示;每组 n = 5–6 只小鼠,每组提供 7–8 片脑片。*p < 0.05,**p < 0.05,***p < 0.005,****p < 0.0001。本图经许可修改自 Schmidt 等人21。 请点击此处查看本图的放大版本。
讨论
为了研究应激对啮齿类动物模型生理、神经生物学及行为功能的影响,必须采用能够对啮齿类动物产生应激的条件。其中需要考虑的因素之一是能够引发受试动物应激反应的条件。限制活动是一种经过验证的方法,可诱发啮齿类动物产生与人类应激效应相匹配的生理和行为反应。采用与本方案类似的方法,限制活动已被用于评估多种与精神疾病模型相关的分子、细胞、内分泌和生理反应,这些疾病包括焦虑、抑郁、疼痛以及物质使用障碍1,19。此处展示了一项已发表研究的数据,作为啮齿类动物限制活动的示例,但限制活动的影响远不止于此特定示例,其可涉及大量因变量的测量。限制活动可能被选作应激源,是因为其在小鼠和大鼠中易于操作、建立成本低廉,并可根据所使用的参数灵活调整以诱发不同程度的应激反应。
与其他诱发应激的方法相比,束缚法在实验设计中存在一些需要考虑的局限性4,23。值得注意的是,束缚应激并不总是引发其他物理应激源(如间歇性足底电击)所观察到的行为改变24。这些不一致的结果可能是由于束缚应激具有可在多种环境中实施的优势,而足底电击则更局限于配备电击栅地板的测试装置内进行。应激环境对最终效应具有显著影响11。此外,传统束缚管或束缚装置内的限制是一个缺点,因为它在束缚过程中限制了对实验对象的操作和接触。为克服这一局限,已开发出新型束缚装置,例如"REcording Signal TRansients ACCessible IN a Tube(RESTRAINT,可在管内获取信号瞬态的记录装置)",以实现在束缚期间进行神经生物学数据采集的连接操作8,9,20。另一种应对该障碍的方法是采用固定应激作为与束缚类似的技术——尽管固定应激与束缚常被互换使用,但两者存在重要差异25。固定应激是指将动物的四肢和头部固定于某一表面,而束缚则是将其置于限制性装置内部。因此,固定应激在限制动物活动的同时,仍可方便地接触实验对象,从而采集血液、脑脊液、瞳孔反应或其他应激研究中感兴趣的生理指标。其他已用于在啮齿类动物中诱导应激的应激源还包括环境冷应激、给予药理学试剂(如皮质酮或育亨宾)、具有生态学相关性的社会挫败或捕食者气味暴露,以及多模式应激(如慢性不可预测性应激,CUS)。这些替代性应激方式因其在模拟特定应激特征方面的优势而被选用。例如,尽管束缚是小鼠和大鼠CUS模型中的一个组成部分26,但CUS所产生的效应可能与等效的慢性束缚应激暴露所产生的效应明显不同27,28。重复束缚的可预测性会降低动物对未来束缚事件的反应,从而限制了同类型束缚应激的有效性。作为替代方案,CUS及其他异类型应激模型通过轮换应激源或应激环境以最小化习惯化现象11,18。这些不可预测的应激模型可能更有效地模拟人类精神疾病中的某些方面,全面体现失控感和预期丧失。束缚的另一个劣势在于其难以反映社会因素对应激易感性和应激缓冲作用的影响,而其他应激方式在这方面更具优势29,30,31。啮齿类动物和人类均为具有同种个体关系和社会等级的社会性动物。尽管束缚应激未包含社会互动成分,但诸如社会挫败应激等心理社会性应激源则为啮齿类动物提供了具有生态学相关性的应激刺激32,33,34。
在使用束缚应激时,施加的强度和重复频率是可调节的参数5。为了产生更强的束缚应激,实验设计可要求动物在束缚装置中停留更长时间。急性束缚应激的持续时间可短至5分钟,而长期束缚应激则可持续长达12小时35,36。一旦确定了束缚暴露的持续时间,应激源的重复频率也可能成为诱导不同程度应激反应的因素之一35,37。需要注意的是,重复束缚应激并不一定意味着观察到的效应会增强。通常情况下,重复束缚应激会导致应激反应的适应性或减弱18。在本研究展示的数据中,我们观察到重复束缚应激下皮质酮反应出现适应现象,但与此同时,仅在重复应激暴露组中检测到刺激性去甲肾上腺素释放的差异。因此,在确定是否存在适应效应之前,必须仔细评估重复束缚应激的影响35。
此外,采用束缚应激进行研究时,必须考虑饲养条件带来的影响。与处于应激状态的同种动物接触会影响啮齿类动物的应激反应30,38,39。因此,为了在不同实验组之间保持一致的应激反应,实验动物应单独饲养,或与笼内所有同伴共同饲养且均经历相同的应激条件37。但关键在于,这种将所有实验对象进行社会隔离的方法存在一个缺陷:社会隔离饲养本身也是一种应激源40,41。然而,无论采用何种饲养条件,如果可能,应激暴露应在隔离状态下进行,以防止社会缓冲效应对应激结果测量产生干扰30。除了饲养条件外,还应考虑应激暴露时间与环境光周期之间的关系14,15。正如一些研究指出的那样37,皮质类固醇水平具有昼夜节律性,因此在光周期的不同时间施加应激源可能导致不一致的效应。因此,建立并维持统一的束缚应激起始时间至关重要。例如,一篇研究运动应激对皮质酮昼夜节律调控作用的论文显示,在对照组小鼠中,皮质酮水平在光周期后期达到峰值,而在应激小鼠中,皮质酮水平持续升高且无稳定峰值13。鉴于这些发现,建议在光周期早期对啮齿类动物施加应激,以产生最显著的效应。
除了限制条件的参数外,在使用限制应激源的研究中,实验动物本身的特征也十分重要。例如,已有大量研究报道了在限制应激中存在性别差异12,35,37,42,43,44。理解这些差异背后的机制值得深入研究,可能有助于在人类面临应激时实现更公平有效的治疗。女性与男性可能在应激的体验和处理方式上存在不同,这可能导致女性中焦虑和抑郁的发生率更高44。例如,限制应激会降低雄性个体的学习表现,却能提高雌性个体的学习表现45。历史上,啮齿类动物的限制应激研究多局限于雄性个体,但未来我们应设计包含两种性别的实验。在小鼠或大鼠中使用限制(及其他)应激源进行实验设计时,另一个需要考虑的动物特征是品系46,47,48,49,50,51。在多种实验范式中均观察到品系效应,某些品系对限制应激表现出更强的反应。最后,在使用限制应激时还应考虑受试动物的年龄。从孕期母体受到限制应激对胎儿的影响,到老年群体中的限制应激,该方法可适用于生命周期的任何阶段。已有研究表明,应激反应在不同年龄阶段存在差异45,52,53,54,55,56。除了需要不同的限制装置以适应衰老过程中体型的变化外,还应考虑与年龄相关的应激经历对实验结果的影响。
选择适当的结果测量指标,无论是3.2节中描述的行为任务,还是3.3节中描述的神经生物学变量,都需要仔细考虑。一方面,已有研究表明,单次轻度应激暴露可增强某些学习任务中的表现,但强烈或长期的应激暴露则会损害学习和记忆任务的表现57。这些认知功能的变化被认为是由前额叶皮层、杏仁核和海马之间神经环路失调所调控的。然而,束缚应激对认知灵活性的影响结果较为混杂,不一致的研究发现使得难以清晰阐明不同束缚参数如何影响逆转学习或任务转换能力58。在药物行为效应方面,束缚应激与其他应激源类似,已被证明可增强多种药物类别相关的物质使用障碍行为59。然而,这些效应具有一定选择性:据报告,束缚应激在操作性条件反射的复吸模型中并不会驱动觅药行为,但确实会增强药物效应的关联性学习,这可通过条件性位置偏爱任务(包括复燃)进行测量60。这种差异被认为是因为束缚装置所处的环境与操作性条件反射箱不同,而足底电击应激则可在操作性环境中实施。为克服这一局限,将应激暴露与可在操作性自我给药实验期间呈现的线索配对,已证明可诱导出应激相关的药物摄取和觅药行为增加61。慢性束缚应激对药物相关行为的影响尚缺乏充分表征。在焦虑和抑郁等情绪障碍模型方面,无论是在人类还是动物模型中,应激暴露均会增加焦虑指标。在啮齿类动物中,评估束缚应激引起的焦虑行为包括在开放场装置中测量趋壁行为,即通过追踪动物在测试区域边缘与中心区域的运动反应进行比较。表现出类似焦虑行为的动物在束缚后会更多停留在四周区域,并减少进入中心区域的次数。另一种测量焦虑的方法是高架十字迷宫。该任务使用一个距地面约3英尺高的十字形装置,其中两个臂具有侧壁屏障,另两个臂为开放侧边。表现出类似焦虑行为的动物在封闭臂中停留的时间长于开放臂62,63。抑郁样行为通常通过强迫游泳任务进行评估,即将啮齿类动物置于盛水的圆柱形容器中,记录其挣扎行为与漂浮行为的时间64。尽管关于停止挣扎是否真正代表抑郁样行为仍存在争议65,但该任务已被证实可用于抗抑郁药物的筛选。抑郁样行为还可通过应激引起的蔗糖偏好降低来评估66。这种对甜味液体摄入量的变化被视为对临床抑郁症快感缺失特征的评估。
总之,对小鼠和大鼠进行束缚是一种经过验证的实验方法,可用于在生理学、遗传学、免疫学和神经科学的研究中诱发应激和焦虑反应。与其他诱导应激的方法相比,束缚法成本低廉、操作简便,适用于模拟人类多种疾病的部分特征,包括焦虑症、抑郁症、物质使用障碍以及创伤后应激障碍,并且可根据需要调整多种实验参数。正因如此,束缚应激仍然是研究啮齿类动物应激影响的一种有效方法。
披露
无利益冲突需要申报。
致谢
感谢Holly Rahurahu和Sam Shaffer提供的编辑意见。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 50 mL 通用螺口锥形管 | Globe Scientific | 6288 | |
| 一次性移液管接液槽 | Fisher Scientific | 13-681-500 | |
| 皮质酮 ELISA 试剂盒 | Arbor Assays | K014-H | |
| 尾静脉采血固定管 | Braintree Scientific | RTV |
参考文献
- McEwen, B. S., et al. Mechanisms of stress in the brain. Nat Neurosci. 18 (10), 1353-1363 (2015).
- Snyder, A. E., Silberman, Y. Corticotropin releasing factor and norepinephrine related circuitry changes in the bed nucleus of the stria terminalis in stress and alcohol and substance use disorders. Neuropharmacology. 201, 108814(2021).
- Morilak, D. A., et al. Role of brain norepinephrine in the behavioral response to stress. Prog Neuropsychopharmacol Biol Psychiatry. 29 (8), 1214-1224 (2005).
- Bali, A., Jaggi, A. S. Preclinical experimental stress studies: protocols, assessment and comparison. Eur J Pharmacol. 746, 282-292 (2015).
- Buynitsky, T., Mostofsky, D. I. Restraint stress in biobehavioral research: Recent developments. Neurosci Biobehavior Rev. 33 (7), 1089-1098 (2009).
- Grissom, N., Kerr, W., Bhatnagar, S. Struggling behavior during restraint is regulated by stress experience. Behav Brain Res. 191 (2), 219-226 (2008).
- Patel, S., Roelke, C. T., Rademacher, D. J., Hillard, C. J. Inhibition of restraint stress-induced neural and behavioural activation by endogenous cannabinoid signalling. Eur J Neurosci. 21 (4), 1057-1069 (2005).
- Luchsinger, J. R., et al. Delineation of an insula-BNST circuit engaged by struggling behavior that regulates avoidance in mice. Nat Commun. 12 (1), 3561(2021).
- Joffe, M. E., et al. Acute restraint stress redirects prefrontal cortex circuit function through mGlu5 receptor plasticity on somatostatin-expressing interneurons. Neuron. 110 (6), 1068-1083.e5 (2022).
- National Research Council (US) Committee for the Update of the Guide for the Care and Use of Laboratory Animals. Guide for the Care and Use of Laboratory Animals. , National Academies Press. Washington, DC. (2011).
- Grissom, N., Iyer, V., Vining, C., Bhatnagar, S. The physical context of previous stress exposure modifies hypothalamic-pituitary-adrenal responses to a subsequent homotypic stress. Horm Behav. 51 (1), 95-103 (2007).
- Fetterly, T. L., et al. α2A-Adrenergic receptor activation decreases parabrachial nucleus excitatory drive onto BNST CRF neurons and reduces their activity in vivo. J Neurosci. 39 (3), 472-484 (2019).
- Barriga, C., Martín, M. I., Tabla, R., Ortega, E., Rodríguez, A. B. Circadian rhythm of melatonin, corticosterone and phagocytosis: effect of stress. J Pineal Res. 30 (3), 180-187 (2001).
- Rybkin, I. I., Zhou, Y., Volaufova, J., Smagin, G. N., Ryan, D. H., Harris, R. B. S. Effect of restraint stress on food intake and body weight is determined by time of day. Am J Physiol. 273 (5), R1612-R1622 (1997).
- Bartlang, M. S., et al. Time matters: pathological effects of repeated psychosocial stress during the active, but not inactive, phase of male mice. J Endocrinol. 215 (3), 425-437 (2012).
- McElligott, Z. A., et al. Noradrenergic synaptic function in the bed nucleus of the stria terminalis varies in animal models of anxiety and addiction. Neuropsychopharmacology. 38 (9), 1665-1673 (2013).
- Pardon, M. -C., et al. Stress reactivity of the brain noradrenergic system in three rat strains differing in their neuroendocrine and behavioral responses to stress: implications for susceptibility to stress-related neuropsychiatric disorders. Neuroscience. 115 (1), 229-242 (2002).
- Grissom, N., Bhatnagar, S. Habituation to repeated stress: Get used to it. Neurobiol Learn Mem. 92 (2), 215-224 (2009).
- Ma, M., Chang, X., Wu, H. Animal models of stress and stress-related neurocircuits: A comprehensive review. Stress Brain. 1 (2), 108-127 (2021).
- Williford, K. M., et al. BNST PKCδ neurons are activated by specific aversive conditions to promote anxiety-like behavior. Neuropsychopharmacology. 48 (7), 1031-1041 (2023).
- Schmidt, K. T., et al. Stress-induced alterations of norepinephrine release in the bed nucleus of the stria terminalis of mice. ACS Chem Neurosci. 10 (4), 1908-1914 (2019).
- Cecchi, M., Khoshbouei, H., Javors, M., Morilak, D. A. Modulatory effects of norepinephrine in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuroscience. 112 (1), 13-21 (2002).
- López-Moraga, A., Beckers, T., Luyten, L. The effects of stress on avoidance in rodents: An unresolved matter. Front Behav Neurosci. 16, 983026(2022).
- Mantsch, J. R., Baker, D. A., Funk, D., Lê, A. D., Shaham, Y. Stress-induced reinstatement of drug seeking: 20 years of progress. Neuropsychopharmacology. 41 (1), 335-356 (2016).
- Molina, P., Andero, R., Armario, A. Restraint or immobilization: A comparison of methodologies for restricting free movement in rodents and their potential impact on physiology and behavior. Neurosci Biobehav Rev. 151, 105224(2023).
- Burstein, O., Doron, R. The unpredictable chronic mild stress protocol for inducing anhedonia in mice. J Vis Exp. (140), e58184(2018).
- Haile, C. N., GrandPre, T., Kosten, T. A. Chronic unpredictable stress, but not chronic predictable stress, enhances the sensitivity to the behavioral effects of cocaine in rats. Psychopharmacology. 154 (2), 213-220 (2001).
- Marin, M. T., Cruz, F. C., Planeta, C. S. Chronic restraint or variable stresses differently affect the behavior, corticosterone secretion and body weight in rats. Physiol Behav. 90 (1), 29-35 (2007).
- Kikusui, T., Winslow, J. T., Mori, Y. Social buffering: relief from stress and anxiety. Philos Trans R Soc Lond B Biol Sci. 361 (1476), 2215-2228 (2006).
- Watanabe, S. Social factors modulate restraint stress induced hyperthermia in mice. Brain Res. 1624, 134-139 (2015).
- DeVries, A. C., Glasper, E. R., Detillion, C. E. Social modulation of stress responses. Physiol Behav. 79 (3), 399-407 (2003).
- Martinez, M., Calvo-Torrent, A., Pico-Alfonso, M. A. Social defeat and subordination as models of social stress in laboratory rodents: A review. Aggr Behav. 24 (4), 241-256 (1998).
- Golden, S. A., Covington, H. E., Berton, O., Russo, S. J. A standardized protocol for repeated social defeat stress in mice. Nat Protoc. 6 (8), 1183-1191 (2011).
- Koolhaas, J. M., De Boer, S. F., Buwalda, B., Meerlo, P. Social stress models in rodents: Towards enhanced validity. Neurobiol Stress. 6, 104-112 (2017).
- Albonetti, M. E., Farabollini, F. Behavioural responses to single and repeated restraint in male and female rats. Behav Processes. 28 (1-2), 97-109 (1992).
- Glaser, R., Kiecolt-Glaser, J. K. Stress-induced immune dysfunction: implications for health. Nat Rev Immunol. 5 (3), 243-251 (2005).
- Olave, F. A., et al. Chronic restraint stress produces sex-specific behavioral and molecular outcomes in the dorsal and ventral rat hippocampus. Neurobiol Stress. 17, 100440(2022).
- Zalaquett, C., Thiessen, D. The effects of odors from stressed mice on conspecific behavior. Physiol Behav. 50 (1), 221-227 (1991).
- Sterley, T. -L., et al. Social transmission and buffering of synaptic changes after stress. Nat Neurosci. 21 (3), 393-403 (2018).
- Bartolomucci, A., et al. Individual housing induces altered immuno-endocrine responses to psychological stress in male mice. Psychoneuroendocrinology. 28 (4), 540-558 (2003).
- Krohn, T., Sørensen, D., Ottesen, J., Hansen, A. The effects of individual housing on mice and rats: a review. Anim Welf. 15 (4), 343-352 (2006).
- Chadda, R., Devaud, L. L. Differential effects of mild repeated restraint stress on behaviors and GABAA receptors in male and female rats. Pharmacol Biochem Behav. 81 (4), 854-863 (2005).
- Perrot-Sinal, T. S., Gregus, A., Boudreau, D., Kalynchuk, L. E. Sex and repeated restraint stress interact to affect cat odor-induced defensive behavior in adult rats. Brain Res. 1027 (1-2), 161-172 (2004).
- Ter Horst, G. J., Wichmann, R., Gerrits, M., Westenbroek, C., Lin, Y. Sex differences in stress responses: Focus on ovarian hormones. Physiol Behav. 97 (2), 239-249 (2009).
- Bowman, R. E. Stress-induced changes in spatial memory are sexually differentiated and vary across the lifespan. J Neuroendocrinol. 17 (8), 526-535 (2005).
- Beery, A. K., Holmes, M. M., Lee, W., Curley, J. P. Stress in groups: Lessons from non-traditional rodent species and housing models. Neurosci Biobehav Rev. 113, 354-372 (2020).
- Armario, A., et al. Differential hypothalamic-pituitary-adrenal response to stress among rat strains: Methodological considerations and relevance for neuropsychiatric research. Curr Neuropharmacol. 21 (9), 1906-1923 (2023).
- O'Mahony, C. M., Clarke, G., Gibney, S., Dinan, T. G., Cryan, J. F. Strain differences in the neurochemical response to chronic restraint stress in the rat: Relevance to depression. Pharmacol Biochem Behav. 97 (4), 690-699 (2011).
- O'Mahony, C. M., Sweeney, F. F., Daly, E., Dinan, T. G., Cryan, J. F. Restraint stress-induced brain activation patterns in two strains of mice differing in their anxiety behaviour. Behav Brain Res. 213 (2), 148-154 (2010).
- Mozhui, K., et al. Strain differences in stress responsivity are associated with divergent amygdala gene expression and glutamate-mediated neuronal excitability. J Neurosci. 30 (15), 5357-5367 (2010).
- Fox, M. E., Studebaker, R. I., Swofford, N. J., Wightman, R. M. Stress and drug dependence differentially modulate norepinephrine signaling in animals with varied HPA axis function. Neuropsychopharmacology. 40 (7), 1752-1761 (2015).
- Novais, A., Monteiro, S., Roque, S., Correia-Neves, M., Sousa, N. How age, sex and genotype shape the stress response. Neurobiol Stress. 6, 44-56 (2017).
- McEwen, B. S., Morrison, J. H. The brain on stress: Vulnerability and plasticity of the prefrontal cortex over the life course. Neuron. 79 (1), 16-29 (2013).
- Sadler, A. M., Bailey, S. J. Repeated daily restraint stress induces adaptive behavioural changes in both adult and juvenile mice. Physiol Behavi. 167, 313-323 (2016).
- Doremus-Fitzwater, T. L., Varlinskaya, E. I., Spear, L. P. Social and non-social anxiety in adolescent and adult rats after repeated restraint. Physiol Behav. 97 (3-4), 484-494 (2009).
- Brown, G. R., Spencer, K. A. Steroid hormones, stress and the adolescent brain: A comparative perspective. Neuroscience. 249, 115-128 (2013).
- Arnsten, A. F. T. Stress signalling pathways that impair prefrontal cortex structure and function. Nat Rev Neurosci. 10 (6), 410-422 (2009).
- Hurtubise, J. L., Howland, J. G. Effects of stress on behavioral flexibility in rodents. Neuroscience. 345, 176-192 (2017).
- Giovanniello, J., Bravo-Rivera, C., Rosenkranz, A., Matthew Lattal, K. Stress, associative learning, and decision-making. Neurobiol Learn Mem. 204, 107812(2023).
- Sinha, R., Shaham, Y., Heilig, M. Translational and reverse translational research on the role of stress in drug craving and relapse. Psychopharmacology. 218 (1), 69-82 (2011).
- Carter, J. S., et al. Long-term impact of acute restraint stress on heroin self-administration, reinstatement, and stress reactivity. Psychopharmacology. 237 (6), 1709-1721 (2020).
- Cecchi, M., Khoshbouei, H., Morilak, D. A. Modulatory effects of norepinephrine, acting on alpha 1 receptors in the central nucleus of the amygdala, on behavioral and neuroendocrine responses to acute immobilization stress. Neuropharmacology. 43 (7), 1139-1147 (2002).
- Khoshbouei, H., Cecchi, M., Morilak, D. A. Modulatory effects of galanin in the lateral bed nucleus of the stria terminalis on behavioral and neuroendocrine responses to acute stress. Neuropsychopharmacology. 27 (1), 25-34 (2002).
- Yankelevitch-Yahav, R., Franko, M., Huly, A., Doron, R. The forced swim test as a model of depressive-like behavior. J Vis Experiments. (97), e52587(2015).
- Molendijk, M. L., De Kloet, E. R. Immobility in the forced swim test is adaptive and does not reflect depression. Psychoneuroendocrinology. 62, 389-391 (2015).
- Mao, Y., Xu, Y., Yuan, X. Validity of chronic restraint stress for modeling anhedonic-like behavior in rodents: a systematic review and meta-analysis. J Int Med Res. 50 (2), 03000605221075816(2022).
重印与许可
