本文介绍了一种快速、低成本的工作流程,用于对成年黑腹果蝇(Drosophila)眼睛进行高分辨率成像,以量化其模式形成和生长缺陷。我们详细描述了样本制备的点状固定方法、高分辨率图像采集以及图像分析的实验方案。
本文内容
摘要
摘要
这 果蝇 复眼是一种具有精确排列模式的组织,可用于揭示驱动形态发生的分子机制和生物学过程。复眼由重复的结构单元——小眼(ommatidia)组成,是一种用于表征基因互作和基因功能的简单结构。影响复眼构型的突变易于检测和分析,因此该系统常被资源有限的科研机构采用。进一步的表型分析通常需要使用扫描电子显微镜(SEM)来获取适合定量分析的高倍图像。然而,SEM设备昂贵,所需试剂成本高,样品制备耗时数天,且通常需要专职人员进行样品处理和仪器维护。这限制了其在资源匮乏机构或财政紧缩时期的使用。在昆虫学中,高分辨率数字成像技术已被广泛用于物种的鉴定与特征描述。本文介绍了一种结合多种策略的方法,可实现对成虫的高分辨率数字成像 黑腹果蝇 使用开源软件 ImageJ 进行结构分析和定量分析。该工作流程是一种快速且适合学生的替代方法,可弥补资金和资源不足的研究设施的局限性,为定量表型分析提供一种经济高效且快速的解决方案。
引言
Drosophila melanogaster 是一种强大的遗传学模式生物,数十年来被广泛用于阐明分子信号通路和细胞行为。许多在进化上保守且对多细胞发育至关重要的信号通路,最初就是在 Drosophila 中被发现并阐明其作用机制的。1,2 大约 65–75% 的人类疾病相关基因在 Drosophila 中具有直系同源基因。成年 Drosophila 眼睛是一个重要的研究模型,支持了无偏倚的遗传筛选,促进了与人类疾病(包括癌症3,4、神经退行性疾病5 和代谢紊乱6)相关的重要保守基因的发现。
果蝇(Drosophila)的复眼由约800个小眼单元(称为小眼)组成,这些小眼在成体眼睛表面精确地排列成六边形模式7。每个小眼包含八个光感受神经元,它们位于一个不对称梯形结构中的特定位置。这些神经元由四个非神经的晶锥细胞和两个初级色素细胞支持,后者分泌晶状体和假锥结构,将光线聚焦到光感受神经元的感光微绒毛(rhabdomeres)上。相邻的小眼之间由单行的间小眼晶格细胞分隔,这些细胞包括次级色素细胞、三级色素细胞以及机械感受性刚毛复合体8,9,10。
眼睛发育异常在成体眼睛中表现为眼睛尺寸增大或减小、晶状体或刚毛数量或结构异常,或出现“粗糙眼”表型,即正常情况下高度有序的六边形排列结构遭到破坏,无法沿眼球表面连续追踪小眼单元的排列。这些表型可在组织宏观水平上利用解剖显微镜进行评分。传统上,对表型的详细分析包括扫描电子显微镜观察,随后进行定量图像分析11。然而,扫描电子显微镜需要昂贵的仪器设备、成本高昂的试剂、耗时数天的样品制备过程,且通常还需要专职人员进行维护。
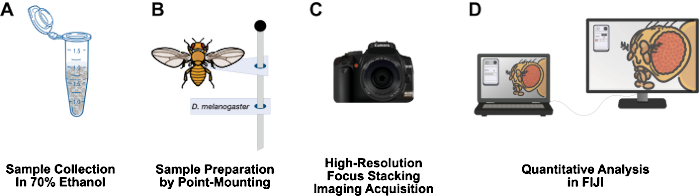
图1:成年个体成像工作流程 果蝇 结构 (A) 收集并固定成虫 果蝇 在70%乙醇中。B) 通过点样并固定在针头上,制备成像样品。C通过焦点堆叠与图像融合获取高分辨率图像。D使用 FIJI 量化图像。 请点击此处以查看此图的放大版本。
本文介绍了一种相对经济、样品制备时间短、可在3英尺实验台面上轻松搭建、无需使用危险材料的工作流程,有望长期应用于果蝇(Drosophila)研究实验室(图1)。针插法是一种昆虫学技术,用于风干并保存小型软体昆虫,比如果蝇(Drosophila)12。该方法结合显微镜物镜与高分辨率数码单反相机,实现10倍至1,000倍的有效放大。通过焦点堆叠技术——将一系列焦平面逐步穿过目标样本的图像拼接起来,可克服微距摄影固有的有限景深问题13。该方法可获得适用于表型定量分析的高分辨率图像,并可轻松扩展用于其他感兴趣结构的成像,例如翅、足、胸部和腹部。图像分析流程采用免费的图像分析软件FIJI(NIH ImageJ)。该技术方案使资源有限的机构中的本科生和科研人员也能便捷地开展样品制备、高分辨率成像及后续分析。
方案
1. 成年 果蝇 采集与固定
- 设置 Drosophila 杂交或选择品系,并将其放入含有果蝇食物的试管中。将试管在所需温度(通常为 25 °C)下培养,直至果蝇发育成熟并羽化为成虫(约在 25 °C 下 10–14 天)。
- 用 CO2 麻醉果蝇,并将其放置在 CO2 操作垫上。
- 使用羽毛对果蝇进行分选,并挑选具有目标表型的个体(例如直翅)。可通过修剪一支鹅毛,使其适配 1 mL 移液管的锥形末端,制成羽毛分选工具。
- 在 1.7 mL 微离心管中加入 1 mL 70% 乙醇。将挑选出的果蝇放入微离心管中,并置于冰上。将微离心管在 4 °C 下过夜保存(图 2A)。
注意:果蝇在乙醇中保存时间不得超过 24 小时。长期在 70% 乙醇中保存会导致眼色素和体色素丢失。
2. 通过点样法进行样品制备
注意:Drosophila 是软体昆虫,干燥后会变脆并塌陷;因此,本实验要求样品在封片当天完成成像。每次操作以约 5 只果蝇为一组,以防止样品丢失。可根据操作效率适当增加每组样品数量。若样品需要在成像前保存更长时间,可通过浓度递增的六甲基二硅氮烷(HMDS)进行脱水处理14。
- 使用专用的点状打孔器从存档用的65磅卡纸上裁剪出小三角形支点(7.1 mm × 2.7 mm)。用Dumont #5精细镊子将支点的尖端(最窄的25%部分)弯折成90°角,完成支点的制备(图2B)。
- 使用Dumont #5精细镊子将果蝇从微量离心管(步骤1.4)中取出。用无绒实验室纸巾轻轻吸去果蝇表面多余的乙醇。在解剖显微镜下,将每只果蝇侧置于索引卡片上,使其左侧朝下。
注意:从管中取出果蝇时,应夹持非目标区域的解剖结构;当需要成像头部时,应夹持翅膀或腿部。切勿夹持腹部,因为该部位将用于将果蝇粘附在支点上。 - 配制皮胶,并调整其稠度至所需黏度。在索引卡片上用移液管将1–2滴皮胶与1–2滴去离子水(DI水)混合均匀。用镊子夹住已制备好的支点宽端,将支点弯曲的尖端轻蘸于胶-水混合液中,在尖端附着少量稀释后的胶液(图2C)。
注意:胶液应具有可涂抹性,但不能过稀而流动。 - 将支点的弯曲尖端贴附于果蝇右侧腹部前端,位置约为第2–3腹节处(图2C)。在胶液干燥前,轻微调整果蝇的位置,使其前后轴与支点的弯曲部分保持垂直。
- 将一根3号固定针插入支点的宽端(图2D),并将其固定在昆虫插针板上(图2E)。对每根针或每排针标注相应的基因型。

图 2:样品制备。(A)根据表型标记对成年Drosophila进行分选,并收集到含有70%乙醇并置于冰上的带标签微量离心管中。果蝇于4°C下保存过夜。(B)使用#5镊子将纸制卡片针的窄端相对于卡片其余部分弯折90°,以制备卡片针。(C)从管中取出果蝇,短暂风干。将明胶胶水涂抹在已折叠的卡片针小端,然后将其粘附于成年果蝇腹部第2-3节处。(D)将标本连同标识标签一起固定在#3不锈钢昆虫针上。(E)带针的标本存放于样品板上,直至准备进行图像采集。请点击此处查看该图的放大版本。
3. 高分辨率聚焦堆叠成像采集
- 使用组装并定制的高分辨率图像堆叠成像系统获取果蝇复眼的高清照片。
- 使用数码单反相机机身,配合70-200 mm远摄镜头,并通过77 mm镜头转接环连接20倍Apo显微物镜进行拍摄。
- 确保标本通过漫射器接受闪光灯照明(图3)。
- 使用Stackshot控制器和微距轨道控制Z轴方向的位置。
- 将相机、闪光灯和电动载物台连接至一个坚固的阳极氧化铝制三脚架上。
- 将每个点状固定的样品置于通用万向支架上,调整头部方向,使复眼正对镜头。使用镊子轻轻移动头部以调整头部位置。
警告:大幅度或快速调整可能导致意外断头。 - 将相机连接至笔记本电脑后,在软件中调整采集设置。以20倍放大倍率拍摄标本,设置参数如下:闪光功率1/32,快门速度1/200,光圈F2.8,以及ISO 400。确保关闭所有自动对焦和图像稳定功能。
注意:这些参数在闪光照明、快门速度和景深之间实现了最佳平衡。若使用其他放大倍率或镜头组合,则需相应调整参数。 - 设置生成的图像堆栈(10–50张图像)的保存位置至目标文件夹。确保有足够的存储空间容纳图像(每张图像约8.5 MB)。
- 在Stackshot控制单元上以自动距离模式调整焦距堆栈设置。
- 将步长设为5 µm,通过设定焦距堆栈的起始和终止位置来计算步数。
- 在实时取景模式下观察标本,并将相机设为自动拍摄模式,以确定起始和终止位置。
- 移动轨道,使标本最近端处于焦点清晰状态(设定起始位置),再移动至最远关注特征清晰对焦的位置(设定终止位置)。
- 将相机返回至手动拍摄模式,并从Stackshot控制单元启动图像采集。
注意:图像采集时间取决于标本尺寸。对于大尺寸标本,所需景深越大,图像堆栈中包含的切片数量越多,整体采集时间越长。 - 在引用的图像堆叠软件中打开文件。点击堆叠 | 对齐并堆叠全部(PMax)生成合成图像。
- 点击文件 | 保存输出图像,将最终图像以.tif格式保存至计算机硬盘。
注意:根据堆叠图像的分辨率及成像标本数量,可能需要使用大容量外置硬盘(1 TB)进行图像备份。在本方案中,压缩前每张堆叠图像大小约为100 MB。
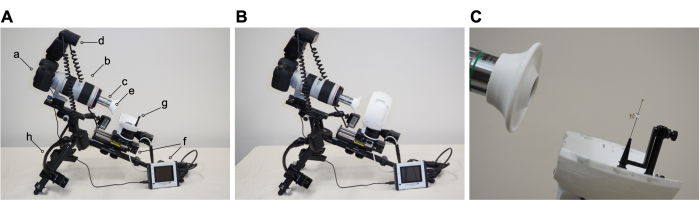
图3:图像采集。(A)成像装置,各部件标注如下:a)数码单反相机机身;b)长焦镜头;c)20倍复消色差显微镜物镜及转接器;d)闪光灯;e)镜头和圆顶漫射器;f)Stackshot控制器、微距轨道和旋转台;g)万向支架云台;h)三脚架。(B)安装好光源漫射器的成像装置。(C)固定好的标本在成像位置的特写。 请点击此处查看该图的放大版本。
4. 使用 FIJI 分析流程计算成年果蝇眼部面积
- 进行图像分析时,从 ImageJ.net 网站获取 FIJI 软件15。
- 选择用于分析的图像,确保眼睛居中、对齐良好,照明充足且周边模糊最小,表明与相机对位正确。
- 校准图像比例尺。
- 下载对应 20 倍放大倍数的标尺图像,该标尺对应 500 µm。或者,在图像采集时,使用相同设置拍摄一把刻度尺的照片,并在 FIJI 软件中打开该图像。
- 测量标尺的长度(图 4A)。使用直线工具精确描记标尺线段,然后点击分析 | 测量。此像素距离对应500 µm(图 4B)。
- 计算每微米对应的像素数,用于将像素测量值转换为微米测量值。
- 在 FIJI 中打开堆叠图像文件(图 4C)。
- 从工具栏中选择放大镜工具,以放大目标区域。尽量使眼睛及其周围头壳充满屏幕(图 4D)。
- 从工具栏中选择自由手绘选择工具,尽可能紧密地沿最外圈小眼的轮廓勾勒视网膜区域(图 4E)。若需删除部分选区,按住option键并选择要删除的像素;若需添加选区,同时按住option和shift键并选择要添加的像素。
- 计算面积时,从顶部菜单选择分析 | 测量(图 4F),将弹出一个显示面积、平均值、最小值和最大值参数的新窗口。将这些数据复制并粘贴至电子表格中,用于记录以及从像素转换为微米单位的计算。
- 进行适当的统计分析。
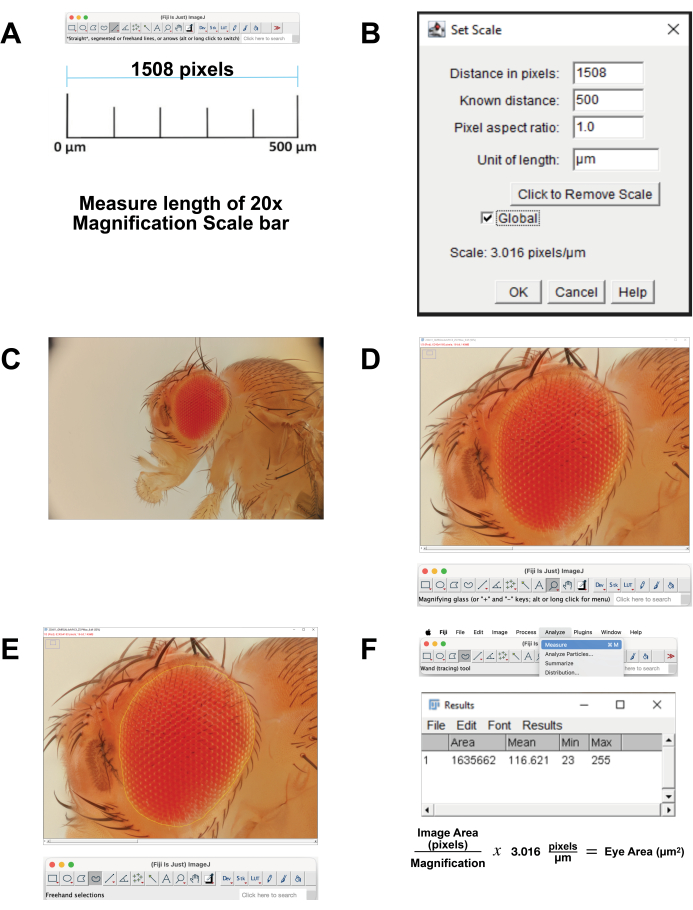
图 4:FIJI 中的图像分析。 (A) 对原始图像进行标度校准。下载校准图像,并测量 500 µm 标尺的长度。(B) 使用 设定标度(Set Scale) 功能调整标度。(C) 打开堆叠图像。(D) 放大图像,使眼睛居中并几乎充满整个屏幕。(E) 使用 自由手选区(Freehand Select) 工具,在最外层小眼与周围表皮之间的边界处勾勒出眼睛轮廓。(F) 通过点击 分析 | 测量 | 面积(Analyze | Measure | Area) 计算所选区域内的面积。请点击此处查看此图的放大版本。
结果
的 果蝇 眼睛是研究组织模式形成、生长调控和细胞死亡的优良模型系统。我们近期发表了一项研究,探讨细胞内pH值(pHi)如何影响组织生长。首先,我们建立了一个遗传系统,通过过表达钠-质子交换体 DNhe2 (哺乳动物NHE1的同源基因)在发育中的眼睛中导致图式形成缺陷和增殖增加16从酵母到哺乳动物的多种物种中均观察到,较高的细胞内pH值可促进增殖。17然而,我们也观察到,随着细胞内pH值升高,成年果蝇的眼睛相较于对照组显得更小。
为了确定DNhe2表达升高如何导致Drosophila眼睛组织尺寸减小,我们对成虫眼部区域进行了定量分析。我们首先使用目镜插入式显微镜获取低分辨率图像(图5A),但这些图像质量不足以进行定量测量。具体而言,眼睛边缘未处于焦点范围内,因而无法准确测量眼部面积。
我们测量了成年个体高分辨率图像中每只眼睛的面积 果蝇 眼睛(图5B). GMR>DNhe2表达该基因的果蝇眼睛显著较小(平均 74.28 µm2)而非遗传背景对照 w1118 果蝇(平均值 125.83 µm2或驱动程序控制 GMRGAL4 杂合子果蝇(均值 142.49 µm2),分别减少了41%和48%的面积(图 5C)。尽管细胞增殖增加,但眼睛尺寸减小可能归因于细胞死亡水平的升高。
已知的自噬相关基因,包括 Atg1,可诱导吞噬体形成的,在遗传相互作用研究中被使用(图5)。通过高分辨率摄影和面积分析定量成年果蝇复眼大小的变化(图5B)。眼的大小得到恢复(129.9 µm2 与 74.28 µm2) 在 GMR>DNhe2 杂合子果蝇 Atg13 与……相比 GMR>DNhe2 单独存在时与对照组相似(图5C结合分子标志物分析,我们的结果支持在较高胞内pH条件下自噬性细胞死亡增加。
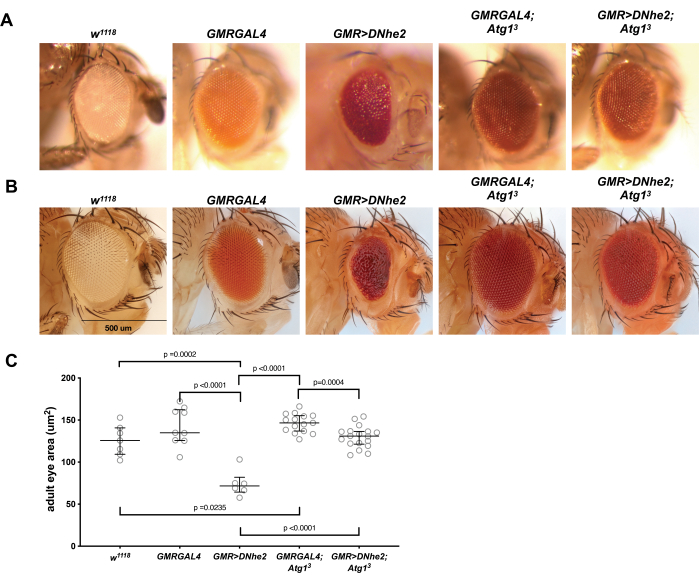
图5自噬减少导致细胞内pH升高,进而引起视网膜尺寸减小的挽救。 (A使用目镜插入式显微镜拍摄的成年果蝇眼睛的低分辨率图像。B用于以下基因型眼大小定量分析的成年果蝇眼睛的高分辨率图像: w1118; GMRGAL4; GMR>DNhe2; GMRGAL4;Atg13; GMR>DNhe2;Atg13. (C) 成年个体眼睛大小的平均测量值为: w1118 (125.83 µm2,N = 7; GMRGAL4 (142.49 µm2,N = 9),以及 GMR>DNhe2 (74.28 µm2,N = 6), GMRGAL4;Atg13 (146.4 µm2,N = 15; GMR>DNhe2;Atg13 (129.9 µm2,N = 19)并以中位数和四分位距表示。统计学显著性通过非配对 t-使用韦尔奇校正的检验。数据中的 B 和 C 此前已发表18. 请点击此处查看此图的放大版本。
样本制备、高分辨率成像以及本文所述的分析方法增强了我们的结论。这些方法使得能够对具有不同基因型的成年黑腹果蝇(Drosophila)眼睛大小进行精确且定量的描述。我们正在继续采用这一方法来评估其他遗传相互作用,以阐明pH依赖性生长调控的机制。
讨论
本文介绍了一种用于成年 Drosophila 结构的样品制备、高分辨率成像及分析的方法。Drosophila 的眼睛是一个遗传上易于操作的模型系统,已为理解包括癌症19、神经退行性疾病20 和代谢性疾病21 在内的多种疾病背后的分子机制提供了关键见解。特别是,可构建癌症患者的"替身模型",即构建携带致癌突变的转基因 Drosophila,用于高通量药物筛选22。尽管本文重点描述成年果蝇眼睛的分析,但该方案也可适用于其他感兴趣结构的分析,如翅膀、腿部、胸部和腹部。
精细操作技能在本方案的多个关键步骤中至关重要。成年样本的制备 果蝇 点样固定需要耐心和练习。我们建议初学者在处理稀有或珍贵样品前,先练习点样固定技术。该过程包含多个关键步骤,需要熟练的精细操作技能和仔细的注意力。
该实验方案中的第一个关键步骤是制备卡片点以及将胶水涂布于卡片点以将其粘附到腹部(实验方案步骤 2.4–2.5)。胶水量必须适中,因为若胶水过多或黏稠度不当,可能会覆盖目标解剖结构(即头部)。样品也必须被粘贴在合适的位置,使前后轴与固定针垂直。第二个关键步骤是调整头部位置以进行高分辨率成像(实验方案步骤 3.2)。必须确保头部朝向正确,使眼睛正对相机镜头。调整头部时需使用镊子进行微小调节,操作过程中轻柔且渐进的移动至关重要,过大幅度或用力的调整可能导致意外断头。另一个需要精细操作技能的步骤是在 FIJI 工具栏中使用自由选择工具 (实验方案步骤 4.6)。在此步骤中,必须尽可能紧贴复眼最外圈的小眼边缘进行描记。这种精确性对于实现严格且可重复的眼部面积测量至关重要(图 4E)。
扫描电子显微镜(SEM)等成像方法仍是观察和分析外部结构的主要手段。然而,SEM 实验流程要求操作者使用危险化学品,并操作多种仪器,包括临界点干燥仪、溅射镀膜仪以及 SEM 本身。样品制备过程耗时数天,且需要经过 intensive 的培训和熟练的技术。 学术机构面临的一个重大挑战是 在仪器维护方面的资金投入和持续承诺;根据我们的经验,具备此类设备维护和操作专业知识的人员通常无法获得机构层面的支持。本实验方案通过牺牲部分成像分辨率,显著降低了成本,并完全避免了对危险化学品的接触。
本研究中描述的系统为预组装套件,但其模块化特性允许通过替换为自制设备(例如样品台、闪光漫射器)、其他品牌或型号的组件,或实验室中可能已有的设备,来降低系统成本。尽管将显微镜物镜连接至微距相机在业余爱好者和专业摄影师中日益流行,但不同物镜与镜头的组合可能需要经过若干次尝试与调整。为复制本文所述系统,必须使用适当螺纹适配器将无限远校正的显微镜物镜连接至管镜(此处为长焦镜头)。在更换组件时还需注意,确保镜头的工作距离与相机安装装置、样品安装装置以及微距对焦轨道的尺寸相兼容。最后,本文选用的焦点堆叠软件为商业软件,但目前存在多种低成本或免费的后期处理焦点堆叠解决方案,包括ImageJ插件。
尽管本实验方案需要通过练习来掌握样品处理技术,但其设计旨在获取和分析高分辨率图像,以进行详细的表型分析。本文所述的操作步骤为传统成像方法提供了一种快速且低成本的替代方案。通过采用基于免费软件的数字成像技术进行定量分析,本方法具有良好的可及性,无需购买或更新昂贵的软件。成像系统的搭建需要一定的成本和投入,但一旦建立,可长期服务于黑腹果蝇(Drosophila)实验室。该方法能够获得适用于表型定量分析的高分辨率图像,并可轻松扩展应用于其他感兴趣的结构,如翅、足、胸部和腹部。本方法使样品制备、高分辨率成像及数据分析对于本科学生以及资源有限机构的科研人员而言更加易于实现。
披露
作者无任何利益冲突需要披露。
致谢
作者谨向 Grillo-Hill pHly 实验室成员致以感谢,感谢他们的讨论与支持。感谢 Tim Andriese、Randy Kirschner、Kitty (Ngoc-Huong) Nguyen、Marco Parent、Jonny Shaloub 和 Librado Veliz 提供出色的技术支持。本研究得到了 NIH SC3GM132049 和 1R16GM153640 项目资助(BKGH),加州州立大学生物技术师生研究奖(LM 和 BKGH),以及圣何塞州立大学理学院和生物科学系启动资金的支持。特别感谢 Bernd Becker 在本研究过程中展现出的应变能力与协助。感谢 BioIcons(https://bioicons.com/)社区为我们的图示提供高质量图标,尤其感谢 Serviere 提供的移液器图标,以及 DBCLS 提供的用于图 1和图 2的 Drosophila、镊子和台式电子显微镜图标,这些图标遵循 CC-BY 4.0 Unported 许可协议。同时感谢 SciDraw(https://scidraw.io/)社区为我们的图示提供高质量图标,尤其感谢 Diogo Losch De Oliveira(doi.org/10.5281/zenodo.3925953),这些图标遵循知识共享 4.0 许可协议(CC-BY)。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 1 mL 血清学移液管 | 赛默飞世尔科技 | 170353N | |
| 1.7 mL 微量离心管 | Genesee Scientific | 24-282LR | |
| 20x 复消色差显微镜物镜 | Mitutoyo Corp. | 378-804-3 | |
| 存档级65磅卡纸 | Neenah, Inc. | 91901 | |
| 佳能 EF 70-200 mm USM II 远摄镜头 | 佳能 | 3044C002 | |
| 佳能 EOS 6D Mark II 单反相机机身 | 佳能 | 1897C002 | |
| 漫射罩穹顶 | 宏观溶液 | PA-DIF-GIM-SM | |
| Mitutoyo M Plan APO 物镜用漫射器 | 宏观溶液 | mitutoyo-扩散器 | |
| 果蝇 小瓶和瓶塞 | Genesee Scientific | 32-117BF | |
| Dumont #5 细尖镊子 | Fisher Scientific | NC9889584 | |
| 鹅羽毛 | 亚马逊 | B01CMMJI6U | |
| 重型阳极氧化铝三脚架 | Really Right Stuff, LLC | TFA-32G | |
| Kimwipes | Fisher Scientific | 06-666A | 无绒实验室擦拭纸 |
| Levenhuk M1000 Plus 数字相机 | Levenhuk | 70358 | |
| 3号固定针 | Indigo Instruments | 33414-3 | |
| Nutri-Fly 布卢明顿 黑腹果蝇 培养基 | Genesee Scientific | 66-113 | 果蝇培养基 |
| 打孔器 | M.C. Mieth Manufacturing, Inc. | 448细节 | |
| 螺旋夹 | Really Right Stuff, LLC | SK-Clamp | 用于将相机滑轨连接至三脚架 |
| Stackshot 控制器与宏轨 | Cognisys 公司 | ST3X_100_BUNDLE | |
| 减焦环适配器 | RAF 相机 | 763461174207 | 用于将显微镜物镜连接至相机镜头的转接环 |
| Titebond 胶水 | 富兰克林国际 | 5013 | |
| Yongnuo YN-24-EX 微距双灯闪光灯 | 深圳永诺摄影器材有限公司 | YN-24EX | |
| <强>软件 | |||
| 佳能 EOS Utility(版本 3.16.1) | 佳能 | 采集软件 | |
| FIJI | 美国国立卫生研究院 | Fiji 依据 GNU 通用公共许可证作为开源软件发布。 FIJI 版本 2.14.0/1.54f | |
| GraphPad Prism | GraphPad 软件,美国马萨诸塞州波士顿 | Prism 版本 10.3.1 | |
| Zerene Stacker(v.1.04) | Zerene Systems, LLC | 焦点堆叠软件 |
参考文献
- Rubin, G. M., et al. Comparative genomics of the eukaryotes. Science. 287 (5461), 2204-2215 (2000).
- Ugur, B., Chen, K., Bellen, H. J. Drosophila tools and assays for the study of human diseases. Dis Model Mech. 9 (3), 235-244 (2016).
- Hodgson, J. A., Parvy, J. -P., Yu, Y., Vidal, M., Cordero, J. B. Drosophila larval models of invasive tumorigenesis for in vivo studies on tumour/peripheral host tssue interactions during cancer cachexia. Int J Mol Sci. 22 (15), 8317(2021).
- Lam Wong, K. K., Verheyen, E. M. Metabolic reprogramming in cancer: mechanistic insights from Drosophila. Dis Model Mech. 14 (7), dmm048934(2021).
- Bonini, N. M. A perspective on Drosophila genetics and its insight into human neurodegenerative disease. Front Mol Biosci. 9, e1060796(2022).
- Drummond-Barbosa, D., Tennessen, J. M. Reclaiming Warburg: using developmental biology to gain insight into human metabolic diseases. Development. 147 (11), dev189340(2020).
- Ready, D. F., Hanson, T. E., Benzer, S. Development of the Drosophila retina, a neurocrystalline lattice. Dev Biol. 53 (2), 217-240 (1976).
- Johnson, R. I. Hexagonal patterning of the Drosophila eye. Dev Biol. 478, 173-182 (2021).
- Weasner, B. P., Kumar, J. P. The early history of the eye-antennal disc of Drosophila melanogaster. Genetics. 221 (1), iyac041(2022).
- Pichaud, F., Casares, F. Shaping an optical dome: The size and shape of the insect compound eye. Semin Cell Dev Biol. 130, 37-44 (2022).
- Oster, I. I., Crang, R. E. Scanning electron microscopy of Drosophila mutant and wild type eyes. Trans Am Microsc Soc. 91 (4), 600-602 (1972).
- Gibb, T. J., Oseto, C. Insect collection and identification: Techniques for the field and laboratory. , Academic Press. (2019).
- Mertens, J., Roie, M. V., Merckx, J., Dekoninck, W. The use of low cost compact cameras with focus stacking functionality in entomological digitization projects. ZooKeys. 712, 141-154 (2017).
- Brown, B. V. A further chemical alternative to critical-point-drying for preparing small (or large) flies. Fly Times. 11, 10(1993).
- Schindelin, J., et al. Fiji: an open-source platform for biological-image analysis. Nat Method. 9 (7), 676-682 (2012).
- Grillo-Hill, B. K., Choi, C., Jimenez-Vidal, M., Barber, D. L. Increased H+ efflux is sufficient to induce dysplasia and necessary for viability with oncogene expression. eLife. 4, e03270(2015).
- White, K. A., Grillo-Hill, B. K., Barber, D. L. Cancer cell behaviors mediated by dysregulated pH dynamics at a glance. J Cell Sci. 130 (4), 663-669 (2017).
- Peralta, J., et al. Drosophila Nhe2 overexpression induces autophagic cell death. Mol Biol Cell. 35 (7), br13(2024).
- Munnik, C., Xaba, M. P., Malindisa, S. T., Russell, B. L., Sooklal, S. A. Drosophila melanogaster: A platform for anticancer drug discovery and personalized therapies. Front Genet. 13, 949241(2022).
- Nitta, Y., Sugie, A. Studies of neurodegenerative diseases using Drosophila and the development of novel approaches for their analysis. Fly. 16 (1), 275-298 (2022).
- Pletcher, R. C., et al. A genetic screen using the Drosophila melanogaster TRiP RNAi collection to identify metabolic enzymes required for eye development. G3: Genes|Genomes|Genetics. 9 (7), 2061-2070 (2019).
- Bangi, E., et al. A personalized platform identifies trametinib plus zoledronate for a patient with KRAS-mutant metastatic colorectal cancer. Sci Adv. 5 (5), eaav6528(2019).
重印与许可
