本方案介绍了评估组织(尤其是脑组织)中铁沉积分布和含量的方法。方案详细说明了样本制备、普鲁士蓝/DAB染色、图像采集和数据分析的操作步骤。
需要JoVE订阅才能观看此内容。 请登录或开始免费试用
方法文章
通过普鲁士蓝/DAB染色法评估5xFAD小鼠脑内铁沉积
* These authors contributed equally
本文内容
摘要
摘要
阿尔茨海默病(AD)是一种常见的神经退行性疾病,是老年人群中痴呆症的主要病因。铁沉积与AD的发病机制密切相关。在AD患者脑组织中,铁水平升高与典型的AD病理特征显著相关,包括β-淀粉样蛋白斑块、tau蛋白神经原纤维缠结以及细胞凋亡。越来越多的证据表明,由于铁代谢紊乱所导致的氧化应激在AD的病理生理过程中发挥着重要作用。因此,明确铁蓄积在AD病理过程中的作用,对于AD的治疗至关重要。一套完整的铁染色实验方案对于检测脑组织中铁的表达与分布具有重要意义。本方案旨在介绍一种评估脑组织中铁沉积量及其分布的方法。我们详细描述了试剂配制、小鼠处理以及脑切片制备的相关步骤。此外,本文还提供了一套详细的组织化学铁染色操作流程,用于脑组织切片中的铁检测,并配套提出一个系统性的分析框架,结合定量评估与形态学评价,以确保对染色结果进行全面解读。该实验方案将有助于研究人员深入理解脑内铁沉积现象,并推动阿尔茨海默病的相关研究。
引言
阿尔茨海默病(AD)是最常见的神经退行性疾病,已成为社会面临的严重问题。AD 的患病率随年龄增长而急剧上升1,2,3,4。阿尔茨海默病(AD)的主要病理特征包括 β-淀粉样蛋白(Aβ)斑块的沉积以及因 tau 蛋白异常磷酸化导致的神经纤维缠结(NFTs)。Aβ 是通过 β-分泌酶和 γ-分泌酶对淀粉样前体蛋白(APP)进行连续切割而生成的。Aβ 的生成或清除失调会导致其在脑内积聚,形成淀粉样斑块,这些斑块被认为是 AD 最早的病理标志之一。这些斑块不仅直接造成神经元损伤,还会引发一系列有害效应,包括神经炎症、氧化应激和突触功能障碍。这些过程共同导致神经元死亡以及 AD 中所观察到的进行性认知衰退5。尽管数十年的研究主要集中在阿尔茨海默病(AD)的病理特征上,如 Aβ 斑块沉积和过度磷酸化 tau 蛋白的聚集,但具有临床意义的治疗突破仍难以实现,现有干预措施在改变疾病进展方面疗效有限6。
铁是一种对维持大脑功能至关重要的金属元素,参与氧气运输、DNA合成、线粒体呼吸、髓鞘合成、神经递质合成及代谢过程。然而,当铁浓度超过细胞螯合能力时,便会变得有害6,7,8。在阿尔茨海默病(AD)患者的大脑皮层和海马区,已观察到铁沉积增加的现象,且通常与Aβ斑块共定位9,10。通过芬顿反应11,细胞内游离铁可生成羟基自由基(•OH)以及活性氧物种。这些有害物质不仅通过激活胶质细胞引发神经炎症,还会通过氧化应激攻击细胞内的生物分子,破坏正常细胞功能,导致突触功能障碍8,12。此外,铁含量升高还直接参与AD病理特征的发展:铁可促进Aβ的产生12,并加剧tau蛋白功能异常,从而导致神经纤维缠结的形成13。
已开发出多种技术用于评估脑内铁含量,包括磁共振成像(MRI)以及化学和组织化学方法14. 体内 利用磁共振成像对脑内铁含量进行定量在衰老及神经退行性疾病患者的临床评估中具有重要意义15MRI 具有无创且高度敏感的优势:能够检测疾病早期阶段的铁沉积。特别是依赖场强的 R2 增加(FDRI)技术,可区分不同形式的铁,如铁蛋白铁和血红素铁16然而,MRI 无法检测细胞水平的铁沉积,且费用较高,因此主要用于临床研究17.
比色法是一种化学方法,通过测定物质(如铁)在溶液中与显色剂反应所产生的颜色强度,来确定该物质的浓度。18该方法易于操作,且使用低成本的试剂和仪器,适合预算有限的实验室。18然而,该方法的准确性和灵敏度非常有限,因为结果易受环境因素、显色时间以及操作者主观判断的影响。火焰原子吸收光谱法(FAAS)是另一种可用于测定铁含量的方法。19该方法通过在高温炉中燃烧目标组织获得澄清的样品溶液,随后用盐酸溶解样品,并测定溶液中铁的浓度。 通过 原子吸收光谱法。该方法具有高灵敏度,适用于各类生物样本19然而,该过程耗时较长且需要昂贵的设备,因此其应用受到限制。
普鲁士蓝/DAB 染色法通过检测非血红素三价铁离子,是目前最常用的铁检测方法,与其他组织化学方法相比,具有高特异性和操作简便的优点14。与比色分析不同,普鲁士蓝染色是一种定性的组织化学染色方法,依赖铁离子与亚铁氰化钾反应生成蓝色沉淀,可用于在显微镜下直观显示铁在组织中的存在及分布情况。此外,该方法能够区分不同细胞类型中的铁沉积,并观察铁沉积的亚细胞定位,为阿尔茨海默病(AD)的研究提供了有效手段20。普鲁士蓝染色主要检测非血红素形式的三价铁,其原理基于普鲁士蓝复合物的形成:
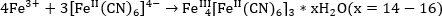
(普鲁士蓝)
然而,传统的普鲁士蓝染色法在铁含量较低时无法有效检测铁的定位。当加入二氨基联苯胺(DAB)后,其与六氰合铁酸铁反应生成一种棕色化合物,从而提高该检测方法的特异性21。
本实验方案旨在描述如何评估阿尔茨海默病(AD)小鼠模型脑组织中铁沉积的含量与分布情况。在本方案中,采用8月龄的5×FAD(C57BL/6J)转基因小鼠作为AD小鼠模型,并与同龄的野生型小鼠进行比较。本文详细介绍了化学试剂的配制、脑组织切片、Perls'/DAB染色以及染色后图像采集与分析的操作步骤。
访问受限。请登录或开始试用以查看此内容。
方案
所有操作均按照徐州医科大学实验动物管理和使用委员会的指南以及中国关于实验动物护理和使用的政府法规进行。
1. 动物灌注
- 配制固定液:将4%多聚甲醛(PFA)溶解于1×磷酸盐缓冲液(PBS)中(见表1)。
- 通过腹腔注射氯胺酮(100 mg/kg)和赛拉嗪(15 mg/kg)对小鼠进行麻醉。小鼠麻醉后,使用四枚图钉将其固定在灌注手术托盘上,以固定四肢。
注意:为确保充分麻醉,需检查小鼠是否丧失对脚趾夹捏的反应、四肢肌肉是否松弛,以及呼吸是否深、慢且平稳。 - 用剪刀剪开胸部以暴露心脏,并剪开右心房。用注射器向左心室注入20 mL 1× PBS以冲洗血液,随后注入20 mL 4% PFA进行固定。
注意:控制针头的深度和方向,避免刺穿室间隔。需注意,理想的灌注效果表现为肝脏呈苍白色,且在初始震颤后四肢变得僵硬。 - 将完成灌注的小鼠断头,用精细剪刀剪开颅骨周围骨骼,用钝头镊子小心抬起颅骨并取出脑组织。随后将脑组织置于4% PFA中,4 °C下过夜浸泡固定。
注意:4% PFA具有强烈呼吸道刺激性,操作时需佩戴合适的口罩,并在通风橱内进行。
注意:本实验所采用的安乐死方法已获徐州医科大学动物护理与使用计划IACUC批准,符合《安乐死指南:小鼠/大鼠》规定。
2. 脑组织冷冻切片
- 将脑组织置于梯度蔗糖溶液(15% 和 30%)中,4 °C 下各脱水 24 小时。最终脑组织应沉入蔗糖溶液底部。
- 用解剖刀沿大脑半球间裂将脑组织切为两半。将左侧半脑放入装有 1 mL 30% 蔗糖溶液和等体积最佳切割温度(OCT)包埋剂的 5 mL 微离心管中,以增强 OCT 与脑组织的接触。
- 用剃须刀片修剪左侧半脑的多余组织,并将其转移至 OCT 包埋平台。
- 使用铝箔制成的环形壁作为支撑,将组织包埋于 OCT 中。
- 在 −22 °C 的冷冻切片机中冷冻组织至少 1 小时,并将切片头温度设为 −19 °C。
注意:请记得将防卷板玻璃片和刷子与样本一同预先冷却。 - 安装冷冻组织块。根据目标区域再次修整组织块至合适位置,然后开始切取厚度为 20 µm 的矢状面切片。
注意:若切片发生折叠,可使用软毛刷轻轻展开。 - 将每张切片收集到明胶包被的载玻片上,在切片上滴加一滴 1× PBS。用细毛刷将脑切片翻转,然后迅速将其贴附于载玻片上。
- 在室温下干燥收集的切片过夜,随后于 −20 °C 保存。
注意:本方案可在此处暂停,最长暂停时间为 2 周。更长时间的储存可能影响组织质量,从而干扰实验结果。
3. 普鲁士蓝/DAB 染色
- 配制以下溶液:2% 亚铁氰化钾(K4[Fe(CN)6]·3H2O)、2% 盐酸(HCl)和 20× DAB 溶液(见表 1)。
- 将载有组织切片的玻片放入盛有 1× PBS 的染色缸中,并将染色缸置于摇床上,以 5 分钟时间洗涤去除组织中的 OCT 包埋剂。
注意:请谨慎调节摇床转速(推荐转速:20 rpm),避免高速下组织从玻片上脱落。 - 在 50 mL 离心管中,将 20 mL 的 2% 亚铁氰化钾溶液与等体积的 2% 盐酸混合。
- 使用塑料镊子将玻片转移至 50 mL 离心管中,随后将离心管置于 60 °C 水浴中加热 30 分钟。
- 用 1× PBS 冲洗玻片,并用纸巾轻轻吸去多余液体。
- 使用移液器向每张脑组织切片上加入 50 µL DAB 溶液,在室温下孵育 10 分钟。
- 用移液器吸除多余的 DAB 溶液,随后用 PBS 洗涤玻片 3 次。
- 依次使用梯度乙醇溶液(50%、70%、95%、100%)和二甲苯(100%、100%)对切片进行脱水处理,每次孵育时间为 3 分钟。
- 用中性树胶22封片,然后加盖盖玻片。
- 将玻片在通风橱中干燥 24 小时,之后存放在显微镜玻片盒中。
4. 成像
- 打开显微镜,调节光源亮度,并在4×物镜下对脑切片进行聚焦。
- 使用相机控制软件采集图像,并调整参数设置以防止过曝。具体设置(10×、40×物镜)见图1。
注意:避免使用自动白平衡,以确保每幅图像的曝光时间一致。 - 切换至10×物镜,移动显微镜载物台,对准普鲁士蓝/DAB染色信号较强的区域(尤其是海马和大脑皮层),并采集图像(图1A)。
- 切换至40×物镜,采集染色信号清晰的图像。
- 将每幅图像保存为8位TIFF格式,并导出用于后续分析。
5. 图像分析
- 在 ImageJ/Fiji 中,从菜单中选择 插件 > 图像拼接 > 网格/集合拼接,然后选择 未知位置 以选取需要拼接的图像(图 2A)。
- 选择 文件 > 另存为 > TIFF,将完成的图像保存为 TIFF 格式(图 2B)。
- 使用 ImageJ/Fiji 打开图像,并确保图像格式为 RGB 彩色(图 2C)。
- 从菜单中选择 插件 > IHC Profiler 图像,然后选择 模式 > 胞质染色图像 以及颜色分离默认选项 H DAB(图 2D)。随后将图像格式转换为 8 位灰度图像。
- 通过选择 分析 > 校准 > 未校准的 OD,将图像的灰度值转换为光密度(OD)值(图 2E)。
- 使用 阈值 功能选择 Perls'/DAB 阳性染色区域,然后调节水平滚动条,直至所有棕褐色信号点均被红色覆盖(图 2F)。
- 点击 分析 > 设置测量值,然后选择 面积、平均灰度值、积分密度,最重要的是选择 限制于阈值范围,以排除背景噪声(图 2G)。
- 选择 分析 > 测量 以获得结果表格(图 2H)。
- 对结果进行分组,并使用统计软件进行统计分析。在本研究中,我们比较了 5xFAD 转基因小鼠海马和皮层中的铁沉积情况与阴性对照组(野生型小鼠)的差异。对于三组间的比较,若数据符合标准差相同的正态分布,则采用单因素方差分析(ANOVA)。
访问受限。请登录或开始试用以查看此内容。
结果
为了研究阿尔茨海默病(AD)小鼠模型中铁的分布与蓄积情况,我们对8月龄5xFAD小鼠的矢状脑切片进行了普鲁士蓝/DAB染色。如图3所示,在8月龄5xFAD小鼠、8月龄野生型小鼠以及2月龄野生型小鼠中均观察到普鲁士蓝/DAB染色信号。在5xFAD小鼠中,海马和皮层区域,尤其是海马下脚区域,显示出强烈的普鲁士蓝/DAB染色信号。野生型小鼠作为经过验证的阴性对照,无论是2月龄还是8月龄组,其铁沉积信号均显著减弱(图3A),且可检测到但无显著差异的随年龄增长而积累的趋势。在40×放大倍数下,5xFAD小鼠中的信号出现在类似Aβ斑块的结构中,这与先前的研究结果一致9,10(图3B)。采用4×放大倍数图像拼接以观察5xFAD小鼠脑组织中铁染色的分布情况,结果显示皮层、海马和小脑区域的染色信号明显强于其他脑区(图3C...
访问受限。请登录或开始试用以查看此内容。
讨论
铁沉积与阿尔茨海默病密切相关。一方面,铁可通过多种机制促进 Aβ 的生成,包括增加淀粉样前体蛋白{NOTE:20}23的表达,以及增强 γ-分泌酶活性,从而加速 Aβ 的产生24;另一方面,铁水平升高所诱导的脂质过氧化可促进 tau 蛋白的聚合,并进一步导致神经元中 tau 蛋白异常磷酸化的增加25。普鲁士蓝染色(Perls' Prussian blue staining)是一种成熟的组织化学技术,用于在生物样本中特异性显示三价铁(Fe3+)的沉积。三价铁与亚铁氰化物反应生成蓝色的亚铁氰化铁(即普鲁士蓝)14。Perls'/DAB 染色是传统 Perls 染色的一种改良方法,将反应后的样本置于含 DAB(二氨基联苯胺)的溶液中,使普鲁士蓝形成棕褐色化合物。利用该方法,我们观察了 5xFAD 小鼠脑内铁沉积的空间分布,并对阿尔茨海默病模型小鼠与野生型小鼠的铁沉积水平进行了定量比较。
访问受限。请登录或开始试用以查看此内容。
披露
本研究受到国家自然科学基金面上项目(资助编号:32271010)的支持。
致谢
在本研究的撰写过程中,作者使用了 DeepSeek 以改进语言表达和可读性。在使用该工具/服务后,作者根据需要对内容进行了审阅和修改,并对出版物内容的准确性负全部责任。
访问受限。请登录或开始试用以查看此内容。
材料
| 姓名 | 公司 | 目录编号 | 评论 |
|---|---|---|---|
| 0.1 M PBS | biosharp | BL601A | 加入去离子水配制溶液 |
| 4% PFA | Beyotime | P0099 | 4 °C 保存以备使用 |
| 20X DAB 溶液 | Bioss | C-0003 | 取溶液 A 10 μl、溶液 B 10 μl 与 PBS 180 μl 混合 |
| 酒精 | Supelco | 107017 | |
| HCl | Sigma | 7647-01-0 | 加蒸馏水至 50 ml |
| ketamine | 中国医药集团 | H20193336 | 麻醉剂量为 100 mg/kg |
| 显微镜 | Olympus | CX43 | |
| 最佳切割温度包埋剂(OCT) | Sakura Finetek | 4583 | |
| 亚铁氰化钾溶液 | Sigma | 14038-43-8 | 加蒸馏水至 50 ml |
| 蔗糖 | Sigma | 57-50-1 | |
| xylazine | Y-S 生物技术公司 | YS-(BC)-2842 | 麻醉剂量为 15 mg/kg |
| 二甲苯 | Sigma | 1330-20-7 |
参考文献
- Karlawish, J., Jack, C. R., Rocca, W. A., Snyder, H. M., Carrillo, M. C. Alzheimer's disease: The next frontier-special report 2017. Alzheimer's Dement. 13 (4), 374-380 (2017).
- Praticò, D. Oxidative stress hypothesis in Alzheimer's disease: A reappraisal. Trends in Pharmacol Sci. 29 (12), 609-615 (2008).
- Sayre, L. M., et al. In situ oxidative catalysis by neurofibrillary tangles and senile plaques in alzheimer's disease. J. Neurochem. 74 (1), 270-279 (2001).
- Urrutia, P., et al. Inflammation alters the expression of dmt1, fpn1 and hepcidin, and it causes iron accumulation in central nervous system cells. J. Neurochem. 126 (4), 541-549 (2013).
- Hardy, J., Selkoe, D. J. The amyloid hypothesis of Alzheimer's disease: Progress and problems on the road to therapeutics. Science. 297 (5580), 353-356 (2002).
- Scheltens, P., et al. Alzheimer's disease. Lancet. 397 (10284), 1577-1590 (2021).
- Ficiarà, E., Munir, Z., Boschi, S., Caligiuri, M. E., Guiot, C. Alteration of iron concentration in alzheimer's disease as a possible diagnostic biomarker unveiling ferroptosis. Int J Mol Sci. 22 (9), 4479(2021).
- Yang, W. S., Stockwell, B. R. Ferroptosis: Death by lipid peroxidation. Trends in Cell Biol. 26 (3), 165-176 (2016).
- Lane, D. J. R., et al. Iron and Alzheimer's disease: An update on emerging mechanisms. J Alzheimers Dis. 64 (s1), S379-S395 (2018).
- Meadowcroft, M. D., Connor, J. R., Smith, M. B., Yang, Q. X. Mri and histological analysis of beta-amyloid plaques in both human Alzheimer's disease and app/ps1 transgenic mice. J Magn Reson Imaging. 29 (5), 997-1007 (2009).
- Winterbourn, C. C. Toxicity of iron and hydrogen peroxide: The Fenton reaction. Toxicol Lett. 82-83, 969-974 (1995).
- Silvestri, L., Camaschella, C. A potential pathogenetic role of iron in Alzheimer's disease. J Cell Mol Med. 12 (5a), 1548-1550 (2008).
- Gamblin, T. C., King, M. E., Kuret, J., Berry, R. W., Binder, L. I. Oxidative regulation of fatty acid-induced tau polymerization. Biochemistry. 39 (46), 14203-14210 (2000).
- Meguro, R., et al. Nonheme-iron histochemistry for light and electron microscopy: A historical, theoretical and technical review. Arch Histol Cytol. 70 (1), 1-19 (2007).
- Lehéricy, S., Roze, E., Goizet, C., Mochel, F. Mri of neurodegeneration with brain iron accumulation. Curr Opin Neurol. 33 (4), 462-473 (2020).
- Nabuurs, R. J. A., et al. High-field MRI of single histological slices using an inductively coupled, self-resonant microcoil: Application to ex vivo samples of patients with Alzheimer's disease. NMR Biomed. 24 (4), 351-357 (2010).
- Perl, D. P., Good, P. F. Comparative techniques for determining cellular iron distribution in brain tissues. Ann Neurol. 32 (S1), S76-S81 (1992).
- Riemer, J., Hoepken, H. H., Czerwinska, H., Robinson, S. R., Dringen, R. Colorimetric ferrozine-based assay for the quantitation of iron in cultured cells. Anal Biochem. 331 (2), 370-375 (2004).
- Luterotti, S., Kordić, T., Dodig, S. Simultaneous determination of iron and copper in children's sera by FAAS. Acta Pharm. 61 (1), 93-102 (2011).
- Hill, J. M., Switzer, R. C. The regional distribution and cellular localization of iron in the rat brain. Neuroscience. 11 (3), 595-603 (1984).
- Meguro, R., Asano, Y., Iwatsuki, H., Shoumura, K. Perfusion-perls and -turnbull methods supplemented by dab intensification for nonheme iron histochemistry: Demonstration of the superior sensitivity of the methods in the liver, spleen, and stomach of the rat. Histochem Cell Biol. 120 (1), 73-82 (2003).
- Liu, C., et al. S-nitrosylation of divalent metal transporter 1 enhances iron uptake to mediate loss of dopaminergic neurons and motoric deficit. J Neurosci. 38 (39), 8364-8377 (2018).
- Guillemot, J., Canuel, M., Essalmani, R., Prat, A., Seidah, N. G. Implication of the proprotein convertases in iron homeostasis: Proprotein convertase 7 sheds human transferrin receptor 1 and furin activates hepcidin. Hepatology. 57 (6), 2514-2524 (2013).
- Li, X., et al. Ferritin light chain interacts with pen-2 and affects γ-secretase activity. Neurosci Lett. 548, 90-94 (2013).
- Jin Jung, K., et al. Oxidative stress induces inactivation of protein phosphatase 2a, promoting proinflammatory nf-κb in aged rat kidney. Free Radic Biol Med. 61, 206-217 (2013).
- Connor, J. R., Menzies, S. L., Martin, S. M. S., Mufson, E. J. Cellular distribution of transferrin, ferritin, and iron in normal and aged human brains. J Neurosci Res. 27 (4), 595-611 (2004).
访问受限。请登录或开始试用以查看此内容。
重印与许可
标签
